Las proteínas a menudo contienen varios dominios que pueden ejercer diferentes funciones celulares. Genes knock-out (KO) no tienen en cuenta esta diversidad funcional. Aquí, se presenta un enfoque basado en la estructura-función de intercambio de casete de recombinación mediada (RMCE) en células madre embrionarias de KO que permite la disección molecular de varios dominios funcionales o variantes de una proteína.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Los estudios de estructura-función en las células madre embrionarias de ratón Usando mediada por recombinasa Cambio de Cassette
En este artículo
Resumen
Resumen
ingeniería de genes en embriones de ratón o células madre embrionarias (mESCs) permite el estudio de la función de una proteína dada. Las proteínas son los caballos de batalla de la célula y a menudo consisten en varios dominios funcionales, que pueden ser influenciados por modificaciones posteriores a la traducción. El agotamiento de la proteína completa en ratones condicional o constitutiva knock-out (KO) no tiene en cuenta esta diversidad funcional y la regulación. se informó previamente Una línea mESC y un modelo de ratón derivada, en la que se insertó un sitio de acoplamiento para FLPe intercambio casete de recombinación mediada (RMCE) dentro del locus ROSA26 (R26),. Aquí, se presenta en un enfoque de estructura-función que permite la disección molecular de las distintas funcionalidades de una proteína multidominio. Con este fin, los ratones compatible-RMCE deben ser cruzadas con ratones KO y mESCs KO compatibles RMCE-a continuación deben ser aislados. A continuación, un panel de construcciones de rescate putativos se puede introducir en el locus R26 a través de RMCE targeting. Los ADNc de rescate candidatos se pueden insertar fácilmente entre sitios RMCE de los ataques de vectores de clonación que utilizan la recombinación. A continuación, mESCs KO se transfectan con el vector de direccionamiento en combinación con un plásmido de expresión de la recombinasa FLPe. RMCE reactiva el gen de resistencia a neomicina sin promotor en los sitios de acoplamiento ROSA26 y permite la selección del evento orientación correcta. De esta manera, se obtienen altas eficiencias de focalización cercanos al 100%, lo que permite la inserción de múltiples construcciones de rescate putativo de una manera semi-alto rendimiento. Por último, una multitud de construcciones de rescate impulsadas-R26 puede ser probado por su capacidad para rescatar el fenotipo que se observó en mESCs KO parentales. Presentamos un estudio de estructura-función de prueba de principio en la catenina p120 (p120ctn) mESCs KO utilizando la diferenciación del endodermo en cuerpos embrioides (EBS) como la lectura fenotípica. Este enfoque permite la identificación de dominios importantes, las vías aguas abajo putativo, y el punto de enfermedad relevantemutaciones que subyacen fenotipos KO para una determinada proteína.
Introducción
Se estima que los genomas de mamíferos contienen alrededor de 20.000 genes codificadores de proteínas. Splicing alternativo y modificaciones postraduccionales aumentan aún más el repertorio de proteínas. Las proteínas tienen una estructura modular 1 y a menudo contienen varios dominios de interacción, que permiten su reclutamiento en diferentes complejos de proteínas y su participación en múltiples procesos celulares 2. Un ejemplo es la proteína multifuncional llamada p120ctn. p120ctn está codificada por el gen Ctnnd1 y consta de un gran dominio central armadillo repetición flanqueado por un N-terminal y una región C-terminal. El dominio armadillo de p120ctn se une a un dominio yuxtamembrana altamente conservada de cadherinas clásicas, que están implicadas en la adhesión célula-célula, pero también se une al represor transcripcional Kaiso. El dominio N-terminal de p120ctn interactúa con diferentes quinasas, fosfatasas, pequeñas RhoGTPases, y asociada a los microtúbulos proteins 3. Curiosamente, como resultado de corte y empalme alternativo, isoformas p120ctn pueden ser generados a partir de cuatro codones de inicio alternativos 4. p120ctn isoforma 1A es la más larga, ya que se traduce de la más-5' codón de inicio y contiene el segmento N-terminal de longitud completa. En p120ctn isoformas 3 y 4, este segmento N-terminal se suprime parcialmente y completamente, respectivamente. La comprensión del papel exacto de proteínas (o isoformas de proteínas) y sus dominios en diferentes funciones celulares sigue siendo un reto.
La orientación de genes en mESCs permite el estudio de la función de una proteína a través de la supresión genética del gen correspondiente y ha contribuido ampliamente a la identificación de genes y las vías de desarrollo importantes y relevantes de la enfermedad. Este avance en la genética inversa fue el resultado de los avances en los campos de aislamiento mESC y la orientación de genes debido a la recombinación homóloga 5 . La recombinación homóloga es un proceso en el que fragmentos de ADN se intercambian entre dos restos nucleicos similares o idénticos después de doble hebra (ds) se rompe de ADN. Normalmente, HR es ineficiente debido a roturas de ADN bicatenario son poco frecuentes. Recientemente, la eficiencia del gen homología dirigida de orientación podría aumentarse usando nucleasas específicas de sitio 6, 7, pero, por desgracia, estos son propensos a los efectos fuera del objetivo 8. Una técnica más fiable para permitir la orientación de genes es RMCE, que se basa en los sistemas de recombinación específica de sitio tales como Cre / loxP o FLPe / FRT. LoxP y la secuencia Frt se encuentran en bacteriófago P1 y Saccharomyces cerevisiae, respectivamente, y se componen de 34 pares de bases, incluyendo una secuencia de pares de bases asimétrica 8 que determina la orientación del sitio. Por otra parte, la orientación de, por ejemplo, dos sitios loxP dentro de un tramo de ADN determinará si el ADN floxed convierte escindió o inversed tras la recombinación mediada por Cre 9. Por otra parte, Cre también puede inducir una translocación si dos sitios están localizados en diferentes cromosomas. RMCE se aprovecha de sitios de recombinación heterospecific que no reaccionan de forma cruzada y que están incrustados en un locus genómico. En presencia de un plásmido donante que contiene un fragmento de ADN flanqueado por los mismos sitios heterospecific, la recombinasa se insertar este fragmento de ADN en el locus genómico compatible-RMCE debido a la translocación de doble simultáneo (Figura 1). Aquí, los clones solamente correctamente orientados RMCE pueden hacer de resistencia a fármacos gracias a un promotor en el vector entrante que restaura una "atrapado" promotor-menos gen de resistencia a neomicina (Neo R) presente en el genoma R26 de las células de conexión (Figura 1) 10, 11. Esto resulta en una eficiencia muy alta focalización, a menudo cerca de 100% 11, </ sup> 12. En conclusión, la selección de base RMCE es altamente eficiente y se puede utilizar para estudios de estructura-funciones; sin embargo, se requiere un locus genómico pre-ingeniería.
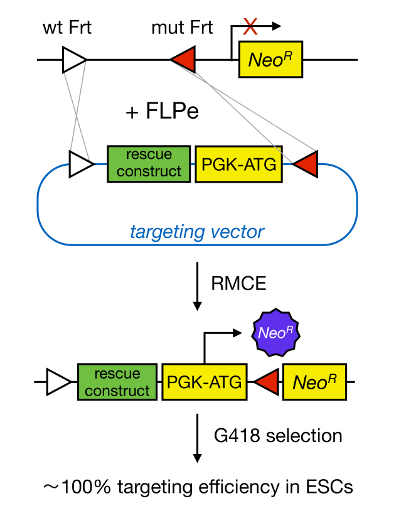
Figura 1. Representación esquemática de la orientación de RMCE mediada. RMCE permite el intercambio de segmentos de ADN a partir de un vector de dirección entrante a un locus genómico definido si ambos albergan dos sitios FRT heterospecific (representados por triángulos blanco y rojo). Además, el locus genómico de ingeniería contiene un gen truncado de resistencia a neomicina (Neo R) sin promotor y. Al proporcionar un promotor y el codón de inicio en el fragmento de ADN entrante, eventos de recombinación solamente correctas restaurar la resistencia a neomicina, dando como resultado altas eficiencias de focalización. Haga clic aquí para ver una versión más grande de tsu figura.
la ingeniería del genoma en mESCs permite la generación de ratones compatible-RMCE. En 1981, dos grupos tuvieron éxito en la captura de células pluripotentes de la masa celular interna (ICM) de blastocistos y en el mantenimiento de ellos en la cultura 13, 14. mESCs son capaces de auto-renovación y diferenciación en todos los tipos de células embrionarias y adultas, incluyendo el linaje de células germinales. Por lo tanto, la orientación de genes en mESCs permite estudios inversa genéticos mediante el desarrollo de ratones KO constitutivos o condicionales (utilizando el sistema cre / loxP). Sin embargo, la manera clásica para aislar células ES de ratón es muy ineficiente. Varias mejoras importantes han aumentado en gran medida la tasa de éxito para derivar líneas mESC, incluyendo el uso de un suero de reemplazo definido (SR) medio 15, alternando entre medio mESC que contenía suero bovino SR y fetal (FBS) 16, y el uso de fármacocompuestos lógicos como pluripotin o 2i 17. Pluripotin, una molécula sintética pequeña, permite la propagación de mESCs en un estado no diferenciado en ausencia del factor inhibidor de la leucemia (LIF) y fibroblastos embrionarios de ratón (MEFs) 18. Por último, se ha demostrado que mESCs se pueden aislar con una eficacia muy alta (cerca de 100%) cuando un / FBS protocolo alternancia medio SR se combina con LIF y pluripotin 19, 20. Estos protocolos permiten el aislamiento eficiente de mESCs KO compatible con RMCE que posteriormente pueden ser utilizados para estudios de estructura-función.
Este documento describe un método que permite identificar los dominios o residuos clave dentro de una proteína que son responsables de los procesos celulares específicos. Con este fin, una línea de tecnologías avanzadas que permiten el aislamiento eficiente mESC, montaje vector de dirección y orientación mESC era crearre. Como tales paneles grandes, con isoformas de proteínas, mutantes de dominio, y efectores aguas abajo pueden ser introducidas en mESCs KO y se pueden evaluar por su capacidad para rescatar el fenotipo vitro KO en.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Todos los experimentos con ratones se llevaron a cabo de acuerdo con las normas de origen animal institucionales, nacionales y europeas.
1. Aislamiento de mESCs KO compatibles con RMCE
- Breed ratones KO heterocigóticas con ratones compatible-RMCE, tales como ratones ROSALUC 10 o ratones ROSA26-iPSC 21. Ambos ratones compatibles con RMCE se mantuvieron en un / fondo mixto 129 C57BL6 / suizo.
NOTA: Al cruzar con ratones KO heterocigóticos se recomienda para superar la letalidad embrionaria en ratones KO homocigóticos. - Utilice PCR para seleccionar ratones KO heterocigotos que contienen un casete de RMCE en el locus R26 12.
- Raza, ratones KO heterocigóticas compatible-RMCE con ratones KO heterocigóticas y aislar, blastocistos KO homocigóticos compatible-RMCE.
- Configurar los apareamientos de tiempo en la noche y comprobar que la cópula se conecta a la mañana siguiente.
NOTA: Los enchufes son de secreciones coaguladas de los coagulantes y vesiculares glándulas del sexo masculino.Estos tapones de llenado de la vagina de la hembra y persisten durante 8 - 24 horas después de la cría. hembras tapados se considera que llevan 0,5 dpc (días postcoital) embriones.- Para comprobar si hay enchufes, levante la hembra por la base de su cola y examinar por su abertura vaginal para una masa blanquecina. Difundir los labios de la vulva ligeramente con una sonda en ángulo cuando el tapón es difícil de ver. hembras enchufados separarse de sus hombres.
- Recoger los blastocistos a 3,5 dpc.
- La eutanasia a las hembras embarazadas por el método aprobado (por ejemplo, la dislocación cervical). Hacer una incisión medioventral y diseccionar el útero y el oviducto (todavía unido entre sí) usando bien tijera y una pinza.
- Doblar una aguja de calibre 26 en un ángulo de 45 °. Adjuntar una jeringa de 1 ml lleno de medio M2 a esta aguja doblada y usarlo para eliminar los blastocistos de útero en la tapa de una placa de 10 cm.
- Insertar la aguja en el extremo del útero que está más cercael oviducto. Mantener la aguja en su lugar con unas pinzas finas mientras empuja el émbolo; inflamación del útero indica un lavado con éxito.
- Usar una pipeta de boca (con un diámetro de los 100 - 200 micras) para recoger todos los embriones y lavarlas dos veces en una gota de medio M2 fresco. Inmediatamente después de lavarlas, transferir los blastocistos a las placas de cultivo (véase a continuación).
NOTA: La disección y la manipulación de los blastocistos de que se debe hacer en el flujo de aire laminar.
- Configurar los apareamientos de tiempo en la noche y comprobar que la cópula se conecta a la mañana siguiente.
- Aislar mESCs RMCE compatible KO
- Preparar una placa de 12 pocillos con MEFs DR4 tratados con mitomicina-C (véase la Tabla de Materiales) un día antes del aislamiento de blastocisto.
NOTA: Estos MEFs fueron aisladas de ratones Tg (DR4) 1Jae / J que contienen cuatro genes seleccionable con las drogas y confieren resistencia a la neomicina, puromicina, higromicina, y 6-tioguanina 22.- Escudo todas las placas de cultivo con 0,1% de gelatina. Añadir 0,1% de gelatinaa las placas de cultivo, se incuba durante 5 min a 37 ° C en 5% de CO2, y aspirar la solución de gelatina. Seed cuarto de un vial de P2 MEFs en una placa de 12 pocillos y cultivarlas en 2 ml de medio de MEF (véase la Tabla 1, la Tabla de Materiales) a una monocapa confluente 19.
- Inactivar con mitomicina C (10 mg / ml) durante 3 h y lavar dos veces con solución salina tamponada con fosfato (PBS) 19.
- Usando una pipeta de boca, la placa de los blastocistos sobre las placas de 12 pocillos gelatinizados (1 así / embrión), con los MEFs tratadas con mitomicina C en medio de células SR-ES (2 ml / pocillo) suplementado con 2 pluripotin M o con 2i (1? M PD0325901 inhibidor de Erk y 3? M GSK3 inhibidor CHIR99021). Incubar a 37 ° C en 5% de CO2.
- Actualizar el medio celular SR-ES (suplementado con pluripotin o 2i) cada 2 - 3 días.
- Examinar cada blastocisto bajo un stereomicroalcance a un aumento de 4,0X y comprobar para incubar y unión a la capa de MEF.
NOTA: Cuando blastocistos escotilla, pierden la zona pelúcida que los encapsula. Los pozos con blastocistos solteras necesitan ser refrescado con el pipetear con la boca. - Escoja excrecencias ICM individuales (utilizando un estereomicroscopio) después de 10 - 12 días de cultivo utilizando una pipeta P10 con puntas desechables. La transferencia de la excrecencia en aproximadamente 10 l de medio a una, placa de 96 pocillos en forma de V que contiene 30! L / pocillo de PBS (a temperatura ambiente).
- Añadir 50? L de 0,25% de tripsina a cada pocillo usando una pipeta multicanal y se incuba durante 3 min a 37 ° C en 5% de CO2.
- Añadir 100 ml de FBS que contiene medio mESC; disociar las excrecencias ICM en células individuales pipeteando 10-15 veces; y transferir las células disociadas a la mitomicina-C-tratada, placas de 96 pocillos MEF que se prepararon un día antes de se recogen las colonias ICM.
- A partir de este paso adelante, omi t pluripotin o 2i del medio de mESC. En el día siguiente, cambiar el medio de FBS- a medio mESC contiene SR-(100! L / pocillo).
- Ampliar las líneas mESC establecidas a partir de 96 a formato de 24 pocillos 19.
- Lavar las células con 200 l de PBS, añadir 50 l de tripsina, y se incuba durante 5 min a 37 ° C en 5% de CO Añadir 100! L de medio de mESC a base de FBS.; disociar pipeteando 10 - 15 veces usando una pipeta multicanal; y transferir las células disociadas a mitomicina-C-tratada, placas de 24 pocillos MEF.
- Cambiar a medio basado en SR en el día siguiente. Ampliar los mESCs de una manera similar a partir de 24 a formato de 6 pocillos. Haga 3 - 4 heladas de un confluente placa de 6 pocillos 19.
- Identificar compatible-RMCE, mESCs KO homocigóticos usando cebadores de PCR para el locus R26 23 y KO alelo de elección (en este caso, p120ctn; PCRs para p120ctn nula y alelos floxed se describieron anteslass = "xref"> 12).
- Preparar una placa de 12 pocillos con MEFs DR4 tratados con mitomicina-C (véase la Tabla de Materiales) un día antes del aislamiento de blastocisto.
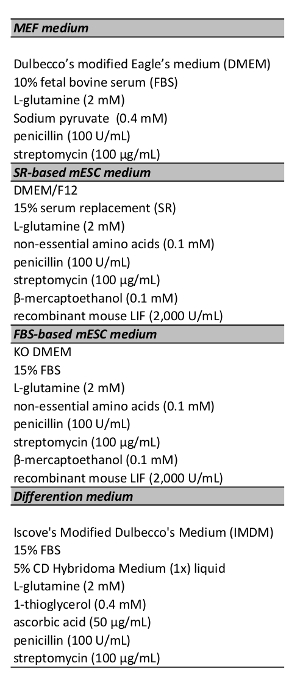
Tabla 1. Medios de cultivo. Todos los medios se almacenaron a 4 ° C y se calentó a 37 ° C 30 min antes de su uso.
2. Generación de un vector de dirección compatible-RMCE usando recombinación Cloning
- Clonar el rescate construye en vectores compatible-recombinación utilizando la enzima de restricción (RE) a base de o PCR basada en 24 técnicas de clonación. Asegúrese de que los ADNc contienen un codón de parada.
- Cebadores 24 Diseño AttB-tagged. Asegúrese de que el cebador directo contiene los siguientes elementos: un tramo GGGG, un sitio AttB1, un enlazador, una secuencia Kozak, y aproximadamente 25 nucleótidos de cDNA de rescate (a partir de su ATG). Asegúrese de que el cebador inverso tiene una composición similar: un tramo GGGG, un sitio AttB2, un enlazador, y cerca de 25 nucleotides de cDNA de rescate (complemento inverso).
- Amplificar el ADNc de rescate a través de PCR para obtener ADNc flanqueados-AttB.
- Realizar una reacción de 10-l BP con 100 ng de ADNc flanqueado-attB y 150 ng de vector donante compatible-recombinación, que contiene un gen de resistencia a kanamicina.
- Transformar 5 l de las mezclas de PA en MC1061 de Escherichia coli de choque térmico-competente (E. coli) bacterias (similares a los descritos en el paso 2.3).
- Identificar las colonias que contienen los vectores que contiene cDNA de rescate correctas (similares a los descritos en el paso 2.4)
- Realizar una reacción LR 10-l utilizando 100 ng de rescate vector que contiene cDNA-; 150 ng de extirpado-Cre vector pRMCE-DV1 11 (LMBP 8195); y 2! l de mezcla de recombinasa, que contiene una integrasa y escisionasa fago codificada y un factor de integración del anfitrión bacteriano. Incubar durante 2 h a 25 ° C.
NOTA: Una reacción LR es una recombinación reaccionarion en el que un clon de entrada que contiene los sitios attL y un vector de destino que contiene los sitios attR se recombinan por la mezcla de enzima clonasa LR. Esto da como resultado un clon de expresión que contiene los sitios attB que flanquean el gen de interés. - Transformar 5! L de las mezclas de LR en bacterias de E. coli MC1061 de E. de choque térmico-competente.
- Añadir 5 l de LR mezclas a un acanalado, bordeado, tubo de 2 ml con tapón de rosca con 40 l de bacterias de choque térmico-competentes de E. coli y se incuba durante 20 min en hielo. Incubar durante 5 min a 37 ° C.
- Añadir 1 caldo de Luria (LB) ml de medio de e incubar durante 1 h a 37 ° C. Plate 50! L de ampicilina (Amp; 100 mg / ml) que contienen placas de agar y crecer durante la noche a 37 ° C.
- Identificar las colonias con el vector de orientación correcta.
- Elige 5 colonias al azar usando una punta de p200. La transferencia de la punta de un tubo de ensayo de vidrio que contiene 2 - 5 ml de medio LB y crecer durante la noche a 37 ° C.
- ExTracto el ADN plasmídico a partir de los cultivos bacterianos utilizando kits disponibles comercialmente.
- Validarlos mediante digestiones con RE y secuenciación. Cortar 0,5-2 g de plásmido usando 0,2 l de RE (20 U / l) y 1 l del tampón 10x correspondiente en una reacción de 10-mL. Incubar durante al menos 1 h a 37 ° C y se separan en un gel de agarosa al 1%. Seleccionar para colonias con el patrón predicho de los fragmentos de ADN.
- Analizar los vectores confirmados (50 ng / l) con Tlox F (ATC ATG TCT GGA TCC CCA TC) y IRES R (GGG GCG GAA TTC GAT ATC AAG) cebadores (5 pmol / l) utilizando la secuenciación de Sanger.
3. mESC RMCE mediada por focalización de rescate Construye al R26 Locus
- Iniciar un cultivo de mESCs y el paso ellos KO compatible-RMCE al menos dos veces en MEFs en medio mESC a base de FBS. Dividir los mESCs en una placa de 6 pocillos gelatinizado.
- Al día siguiente, volver a cargar las células, a aproximadamente 50% de confluencia, con 1,5ml de medio mESC a base de FBS y transfectar las mESCs con un pRMCE-DV1 extirpado-Cre vector dirigido que contiene cDNA de rescate.
- Haga una mezcla de ADN. Añadir 1 g de vector dirigido y 1 g de plásmido FLPe-expresión 25 a 250 l de medio DMEM puro.
- Haga una mezcla de lipofección. Añadir 7 l de reactivo de transfección a base de lipofección (por ejemplo, Lipofectamine 2000) a 250 l de medio DMEM puro e incubar durante 5 min a temperatura ambiente (RT).
NOTA: RMCE similares focalización eficiencias se obtuvieron utilizando otros reactivos a base de lipofección (por ejemplo, Lipofectamine LTX y Effectene). - Mezclar la mezcla de ADN con la mezcla de lipofección y se incuba durante 20 min a TA. Pipetear la mezcla de transfección a las mESCs refrescado. Agitar suavemente y dejar toda la noche.
- Un día después de la transfección, dividir todos mESCs de la placa de 6 pocillos a una placa de cultivo de 10 cm con una capa confluente de MEFs DR4 y m basada en FBS 10 ml demedio ESC.
- Dos días después de la transfección, seleccionar clones mESC con el intercambio de casete FLPe mediada correcta mediante la adición de 0,2 mg / ml de G418 (100x) al medio.
NOTA: Haga una curva de muerte para cada lote de G418 para identificar la concentración más baja de G418 que mata todos los mESCs. - Actualizar los mESCs al día con medio mESC que contiene G418. Las colonias deben aparecer después de 7 - 10 días, así que escoja y ampliar estos como en el paso 1.4.
- Confirmar los clones correctos mediante PCR 11.
4. Diferenciación de mESCs en cuerpos embrioides (EB)
- Iniciar un cultivo de mESCs KO con construcciones de rescate impulsadas por R26 y el paso de al menos dos veces en MEFs en medio mESC a base de FBS. Passage las mESCs vez en placas de 6 pocillos gelatinizados para deshacerse de los MEFs.
- Lavar con PBS y trypsinize los cultivos casi confluentes mESC. Plate disociado mESCs en diferentes diluciones (1/20 y 1/40) sobre no adherente, animal doméstico bacteriana gradori-platos en medio de diferenciación.
- Permitir que los EB para formar en estos platos por 30 días. Actualizar el medio cada 2 - 3 días utilizando el siguiente procedimiento: transferir la suspensión EB a un tubo de 50 ml, dejar que los EBs se depositan por gravedad, eliminar el sobrenadante, se añade medio fresco, y transferir la suspensión EB de nuevo a un grado bacteriana plato.
- Analizar los mESCs dirigidos y EBs por inmunofluorescencia y microscopía electrónica de transmisión usando protocolos que se han descrito previamente 12.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
El procedimiento para aislar líneas KO mESC compatible-RMCE se representa en la Figura 2. Se requieren dos crías consecutivos para obtener blastocistos KO compatible con RMCE. En primer lugar, los ratones KO heterocigóticos se cruzaron con los ratones compatibles con RMCE obtener, ratones KO heterocigóticos compatible con RMCE. Estos ratones se usan entonces para apareamientos programados con otros ratones KO heterocigóticas para obtener 3,5-dpc, compatible-RMCE, blastoc...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Nuestro método de aislamiento mESC es fácil de usar y no requiere de técnicas y equipos avanzados, tales como la microcirugía de los blastocistos. Por lo tanto, esta tecnología se puede acceder a una gran parte de la comunidad científica. Cualquier persona con experiencia básica cultivo celular puede propagarse excrecencias ICM y establecer líneas mESCs. Sin embargo, el enrojecimiento y la manipulación de los blastocistos requiere algo de práctica. Una pipeta boca se utiliza para transferir los blastocistos y se compone...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Agradecemos a Jinke D'Hont, Frederique Van Rockeghem, Natalie Farla, Kelly Lemeire y Riet De Rycke por su excelente soporte técnico. Agradecemos también a Eef PARTHOENS, Evelien Van Hamme y Amanda Goncalves del Fondo para el Bioimagen Núcleo del Centro de Investigación inflamación por su ayuda experta. Reconocemos los miembros de nuestro grupo de investigación valiosa para los debates. Este trabajo fue apoyado por la política belga Ciencia (BELSPO Interuniversitario de atracción Postes - Premio IAP VII-07 DevRepair; https://devrepair.be), por la Fundación Reina Elisabeth médica, Bélgica (GSKE 2008-2010; http: // www .fmre-gske.be), y mediante la acción concertada de investigación (GOA) 01G01908 de la Universidad de Gante, Bélgica (http://www.ugent.be/en/ghentuniv). SG es un compañero postdoctoral de los fondos de Investigación Flandes (FWO-V).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| ROSALUC Ratones | hechos en casa | esperma congelado disponible a pedido | |
| Ratones R26-iPSC | hechos en casa | esperma congelado disponible a pedido | |
| Sonda de vaso | Fine Science Tools | 10160-13 | para verificar si hay tapones de cópula |
| M2 medio | Sigma-Aldrich | M7167 | hacer alícuotas y almacenar a -20 ° C |
| Pinzas finas (Dumont #5 Pinzas de punta estándar para estudiantes) | Fine Science Tools | 11251-10 | rocíe con 70% de EtOH antes de usar (no lo haga en autoclave) |
| Agujas de 23 G | Jeringas de 1 mL Fine-ject | 8697 | |
| de grado | Soft-ject | 6680 | |
| de 60 mm (para enjuagar) | Gosselin | BB60-01 | |
| Pipeta bucal | hecha en casa | ver discusión | |
| Fibroblastos embrionarios de ratón (MEFs, TgN (DR4)1 cepa Jae) | ATTC | SCRC-1045 | |
| TgN (DR4)1 Ratones Jae | The Jackson Laboratory | 3208 | |
| Mitomicina C | Sigma-Aldrich | M0503 | |
| Solución salina tamponada con fosfato (PBS) sin calcio ni magnesio | Ratones Gibco | 14190-094 | |
| Tg(DR4)1Jae/J | JAX | 3208 | que contienen cuatro genes seleccionables por fármacos y DR4 MEFS confiere resistencia a la neomicina, puromicina, higromicina y 6-tioguanina |
| 0,1% Gelatina | Sigma-Aldrich | G1393 | Disolver 0,5 g en 500 mL de agua destilada, esterilizar en autoclave y almacenar a 4 °C. |
| Tripsina (0,25%) | Gibco | 25200-056 | |
| 2 μ M pluripotin | Cayman Chemical | 10009557 | |
| pRMCE-DV1 | Colección BCCM/LMBP | LMBP 08870 | disponible al público en la colección BCCM/LMBP (http://bccm.belspo.be) |
| cRMCE-DV1 | BCCM/LMBP collection | LMBP 08195 | disponible al público en la colección BCCM/LMBP (http://bccm.belspo.be) |
| pCAG-FlpE-IRES-Puro-pA | Addgene | 20733 | |
| choque térmico competente DH5 y alfa; bacterias | hecho en casa | ||
| Gateway pDONR221 vector | Thermo Fisher | 12536-017 | contiene gen de resistencia a kanamicina |
| BP clonasa II mezcla | Thermo Fisher | 11789-020 | |
| LR clonasa II mezcla | Thermo Fisher | 11791-020 | |
| Caldo Luria (LB) | |||
| Ampicilina | |||
| Analizador de ADN Applied Biosystems 3730XL Thermo | Fisher | 3730XL | |
| G418 | Thermo Fisher | 11811-023 | |
| Reactivo de transfección Lipofectamine 2000 | Thermo Fisher | 11668027 | |
| Reactivo de transfección Lipofectamine LTX Reactivo | |||
| Effectene | Qiagen | 301425 | |
| GATEWAY pENTR 1A vector | Thermo Fisher | A10462 | vector compatible con la recombinación |
| monoclonal anti-p120ctn anticuerpo anti-p120ctn | Transduction Laboratories | 610134 | |
| anticuerpo monoclonal anti-Ecadherina de ratón | BD Transduction Laboratories | 610181 | |
| Equipo general | |||
| de disección estériles | Tijeras finas y pinzas para diseccionar el útero | ||
| Pipetas estériles: 5 mL, 10 mL y 25 mL | |||
| Tubos de centrífuga cónicos de 15 mL y 50 mL | |||
| Fondo en forma de V y fondo plano) | |||
| Placas de cultivo: 24 pocillos, 12 pocillos y 6 pocillos Pipetas | |||
| multicanal (para pipetear 30, 50, 100 y 200 μ L) | |||
| Reservorios multicanal estériles | |||
| Acceso a un flujo | |||
| Acceso a una incubadora a 37 ° C con 5% de CO2 | |||
| Acceso a un microscopio | |||
| Acceso a una centrífuga | |||
| Acceso a un microscopio estereoscópico con luz transmitida | |||
| Culture media | |||
| MEF Medium | almacenado a 4 & grados; C; caliente 30 min a 37 ° C antes de usar | ||
| Dulbecco' Águila modificada' s medio (DMEM) | Gibco | 41965-062 | |
| 10% suero fetal bovino (FBS) | Sigma-Aldrich | F-7524 | |
| L-glutamina (2 mM) | Gibco | 25030-024 | |
| Piruvato de sodio (0,4 mM) | Gibco | 11360-039 | |
| penicilina (100 U/mL) | Gibco | 15140-122 | |
| estreptomicina (100 y micro; g/mL) | Gibco | 15140-122 | |
| SR mESC medium | almacenado a 4 & grados; C; caliente 30 min a 37 ° C antes de usar | ||
| DMEM/F12 | Gibco | 31330-038 | mezclado en una proporción 1:1 |
| 15% de reemplazo de suero knock-out (SR) | Gibco | 10828– 028 | |
| L-glutamina (2 mM) | Gibco | 25030-024 | |
| 0,1 mM de aminoácidos no esenciales | Gibco | 11140-050 | |
| penicilina (100 U/mL) | Gibco | 15140-122 | |
| estreptomicina (100 y micro; g/mL) | Gibco | 15140-122 | |
| β-mercaptoetanol (0,1 mM) | Sigma-Aldrich | M 3148 | |
| 2.000 U/mL de ratón recombinante LIF | (Instalación de servicio de proteínas IRC/VIB) | ||
| FBS (similar al medio mESC basado en SR) | almacenado a 4° C; cálido 30 min a 37 ° C; C antes | ||
| de usar Knockout DMEM | Gibco | 10829-018 | |
| 15% FBS | Hyclone | SH30070.03E | |
| Differention Medium | almacenado a 4 & grados; C; caliente 30 min a 37 ° C antes | ||
| de usar el medio de Dulbecco modificado de Iscove (IMDM) | Gibco | 21980-032 | |
| 15% FBS | Hyclone | SH30070.03E | |
| 5% CD Hibridoma Medio (1x) líquido | Gibco | 11279-023 | |
| 2 mM L-glutamina | Gibco | 25030-024 | |
| 0,4 mM 1-tioglicerol | Sigma-Aldrich | M-6145 | |
| 50 μ g/mL de ácido ascórbico | Sigma-Aldrich | A-4544 | |
| penicilina (100 U/mL) | Gibco | 15140-122 | |
| estreptomicina (100 y micro; g/mL) | Gibco | 15140-122 | |
| 2i | |||
| 1 μ Inhibidor de M Erk PD0325901 | Axon Medchem | Axon 1408 | |
| 3 μ Inhibidor de M Gsk3 CHIR99021 | Axon Medchem | Axon 1386 |
Referencias
- Gul, I. S., Hulpiau, P., Saeys, Y., van Roy, F. Metazoan evolution of the armadillo repeat superfamily. Cell Mol Life Sci. , (2016).
- Valenta, T., Hausmann, G., Basler, K. The many faces and functions of beta-catenin. EMBO J. 31, 2714-2736 (2012).
- Pieters, T., van Hengel, J., van Roy, F. Functions of p120ctn in development and disease. Front Biosci. 17, 760-783 (2012).
- Keirsebilck, A., et al. Molecular cloning of the human p120ctn catenin gene (CTNND1): Expression of multiple alternatively spliced isoforms. Genomics. 50, 129-146 (1998).
- Capecchi, M. R. Gene targeting in mice: functional analysis of the mammalian genome for the twenty-first century. Nat Rev Genet. 6, 507-512 (2005).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153, 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154, 1370-1379 (2013).
- Fu, Y., et al. High-frequency off-target mutagenesis induced by CRISPR-Cas nucleases in human cells. Nat Biotechnol. 31, 822-826 (2013).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6, 7-28 (2004).
- Sandhu, U., et al. Strict control of transgene expression in a mouse model for sensitive biological applications based on RMCE compatible ES cells. Nucleic Acids Res. 39, 1(2010).
- Haenebalcke, L., et al. Efficient ROSA26-based conditional and/or inducible transgenesis using RMCE-compatible F1 hybrid mouse embryonic stem cells. Stem Cell Rev. 9, 774-785 (2013).
- Pieters, T., et al. p120 Catenin-Mediated Stabilization of E-Cadherin Is Essential for Primitive Endoderm Specification. PLoS Genet. 12, e1006243(2016).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292, 154-156 (1981).
- Martin, G. R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 78, 7634-7638 (1981).
- Cheng, J., Dutra, A., Takesono, A., Garrett-Beal, L., Schwartzberg, P. L. Improved generation of C57BL/6J mouse embryonic stem cells in a defined serum-free media. Genesis. 39, 100-104 (2004).
- Bryja, V., et al. An efficient method for the derivation of mouse embryonic stem cells. Stem Cells. 24, 844-849 (2006).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453, 519-523 (2008).
- Chen, S., et al. Self-renewal of embryonic stem cells by a small molecule. Proc Natl Acad Sci U S A. 103, 17266-17271 (2006).
- Pieters, T., et al. Efficient and User-Friendly Pluripotin-based Derivation of Mouse Embryonic Stem Cells. Stem Cell Rev. 8, (2012).
- Yang, W., et al. Pluripotin combined with leukemia inhibitory factor greatly promotes the derivation of embryonic stem cell lines from refractory strains. Stem Cells. 27, 383-389 (2009).
- Haenebalcke, L., et al. The ROSA26-iPSC Mouse: A Conditional, Inducible, and Exchangeable Resource for Studying Cellular (De)Differentiation. Cell Rep. 3, (2013).
- Tucker, K. L., Wang, Y., Dausman, J., Jaenisch, R. A transgenic mouse strain expressing four drug-selectable marker genes. Nucleic Acids Res. 25, 3745-3746 (1997).
- Nyabi, O., et al. Efficient mouse transgenesis using Gateway-compatible ROSA26 locus targeting vectors and F1 hybrid ES cells. Nucleic Acids Res. 37, 55(2009).
- Katzen, F. Gateway((R)) recombinational cloning: a biological operating system. Expert Opin Drug Discov. 2, 571-589 (2007).
- Schaft, J., Ashery-Padan, R., vander Hoeven, F., Gruss, P., Stewart, A. F. Efficient FLP recombination in mouse ES cells and oocytes. Genesis. 31, 6-10 (2001).
- Spencer, H. L., et al. E-cadherin inhibits cell surface localization of the pro-migratory 5T4 oncofetal antigen in mouse embryonic stem cells. Mol Biol Cell. 18, 2838-2851 (2007).
- Stryjewska, A., et al. Zeb2 Regulates Cell Fate at the Exit from Epiblast State in Mouse Embryonic Stem Cells. Stem Cells. , (2016).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the mouse embryo: A laboratory manual. , Cold Spring Harbor Laboratory Press. Third edn (2003).
- van den Berghe, V., et al. Directed migration of cortical interneurons depends on the cell-autonomous action of Sip1. Neuron. 77, 70-82 (2013).
- Li, J., et al. The EMT transcription factor Zeb2 controls adult murine hematopoietic differentiation by regulating cytokine signaling. Blood. , (2016).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
Etiquetas
Intercambio de casete mediado por recombinacióndireccionamiento al locus Rosa26inserción de constructo de rescateexpresión de la recombinasa FLPeselección por resistencia a la neomicinaensayo de diferenciación del endodermoknockout de la caterina p120formación de cuerpos embrioidescribado de rescate genético
