Este protocolo describe el uso de la única cadena MHC de clase I complejos para investigar las interacciones moleculares en la activación de células T CD8 + humana: generación de ingeniería antígeno que presenta las células que expresan la cadena sola construye, cultura del clon humano de células T CD8 + y experimentos de activación de la célula de T.
Artículo de método
Uso de la única cadena MHC tecnología investigar Co-agonismo humano CD8 + activación de células T
En este artículo
Resumen
Resumen
Complejos de MHC (pMHC) péptido del uno mismo no estimulantes no inducen las funciones de activación y efectora de la célula de T, pero pueden mejorar las respuestas de la célula de T a agonista pMHC, mediante un proceso denominado co-agonismo. Este protocolo describe un experimental sistema investigar co-agonismo durante la activación de células T CD8 + humana expresando MHC humano clase I moléculas que presentan péptidos determinados como solo polipéptidos (única cadena MHC) en una línea celular xenogeneicos. Expresamos sola cadena MHCs bajo condiciones donde se expresan bajos niveles de complejos de MHC p sola cadena agonista y altos niveles de complejos de cadena simple no estimulante p-MHC. Uso de este sistema experimental nos permitió comparar CD8 + células de T respuestas a pMHC agonista en presencia o ausencia de pMHC no estimulante. El protocolo describe la transfección de la célula línea con sola cadena MHC construcciones, líneas de generación de células estables, cultivo de células humanas de T de CD8 + hepatitis B virus-específica y activación de células T experimentos simultáneamente cuantificación producción de citoquinas y degranulación. Los métodos presentados se pueden utilizar para la investigación sobre diferentes aspectos de la activación de células T CD8 + en sistemas de células de T humanas con especificidad conocida péptido MHC.
Introducción
MHC de clase I (MHC-I) moléculas presentan péptidos cortos (8-10 aminoácidos) derivados de proteínas sintetizadas por cada célula. MHC-I las moléculas en las células sanas presentan autas péptidos derivados de proteínas endógenas. Infección viral conduce a la presentación de péptidos derivados de virus no-yo en MHC-I, pero las células infectadas aún presente no péptidos en presencia de grandes cantidades de péptido-MHC propio (pMHC). MHC-es reconocido por el receptor de célula T (TCR) y el correceptor CD8 de las células T. Afinidad de unión del TCR al péptido pMHC es altamente dependiente de la secuencia de péptidos presentados, considerando vinculante CD8 es independiente del péptido. Unión del TCR a pMHC mismo agonista complejo conduce a funciones de activación y efectora de la célula de T. No estimulante pMHC auto complejos no inducen las funciones de activación y efectora de la célula de T, pero pueden mejorar las respuestas de la célula de T a pMHC agonista, a través de un proceso denominado co-agonismo1,2,3. Agonismo de co se ha observado en ratones células de T de CD4 +4,5,6 , así como en ratón y humanos T CD8 + las células7,8,9,10, 11 , 12 , 13. bajo condiciones fisiológicas, las células T necesitan reconocer cantidades limitadas de agonista pMHC encendido antígeno que presenta las células (APCs) Co que presenta altos niveles de no estimulantes pMHC complejos, sugiriendo que co-agonismo contribuye a la óptima T respuestas de la célula in vivo. Celular total superficie MHC de clase los niveles son con frecuencia o durante infecciones virales14 y15de tumores. Esta estrategia de evasión inmune disminuye la presentación de pMHC agonista, pero también reduce la cantidad de agonista Co pMHC me disponibles para la mejora de la activación de células T. Por otra parte, los niveles de expresión superficial alta célula del MHC clase I molécula HLA-C ha demostrado correlacionar con mayor VIH control16, sugiriendo un papel crítico para el total de la clase MHC y expresión en la activación de células T. A pesar de la importancia fisiológica de co-agonismo, su mecanismo molecular aún incompleto se entiende. Esto es en gran parte debido a dificultades técnicas de controlar experimentalmente la cantidad de agonista co presentado pMHC manteniendo agonista pMHC constante.
Desarrollamos un experimental sistema investigar co-agonismo durante la activación de células T CD8 + humana expresando MHC humano clase I moléculas que presenta determinado péptido como polipeptídica única (única cadena MHC-I, figura 1A) en una celda xenogeneicos línea9,10. Cadena simple (sc) agonista pMHC se expresó bajo el control del promotor inducible por tetraciclina en la línea de celular de T-REx CHO derivado de hámster expresando represora tetraciclina; Esto permite muy baja expresión "agujereado" de sc agonista pMHC en la ausencia de tetraciclina y alta sc agonista pMHC expresión después de la adición de la tetraciclina (figura 1BC). Las células de T-REx CHO pMHC expresando agonista de sc fueron entonces supertransfected con no estimulantes agonistas Co sc pMHC-I bajo el control de un promotor constitutivo activo (figura 1BC). Uso de este sistema experimental nos permitió comparar CD8 + células de T respuestas a pMHC agonista en presencia o ausencia de niveles elevados de pMHC no estimulante. Críticamente, desde péptidos y MHC-I cadena pesada son covalente en la scMHC-formatear, esto permite la introducción de mutaciones en las moléculas de MHC que presentan péptidos determinados. Uso de scMHC-I tecnología así nos permitió modular específicamente propiedades TCR o CD8-Unión de agonista o agonista Co pMHC.
Co-agonismo en la activación de células T CD8 + se ha observado con MHC purificado-I complejos que presenta agonistas y agonistas Co péptidos en forma de heterodímeros11,17 o cuántica presentado en los puntos12,13. Primeros trabajos en co-agonismo en la activación de células T CD8 + en el contexto de reconocimiento de agonista pMHC en APC utilizan líneas de células deficientes en TAP2 como CPA. GRIFO se requiere para el transporte de péptidos del citoplasma el retículo endoplasmático, y deficiencia de TAP reduce severamente la piscina de los péptidos de-enlace de clase de MHC disponibles. En la ausencia de péptidos, el naciente complejo de MHC clase I cadena pesada y β2- microglobulina es inestable, resultando en MHC muy bajo-la expresión superficial de la célula. Inicialmente, comparación de las células T estimuladas con antígeno cargado TAP-suficiente - ratón deficiente RMA y líneas celulares de RMA-S, respectivamente, como APC, no reveló ninguna evidencia para co-agonismo en ratón de la activación de la célula de T18. Sin embargo, uso de este sistema experimental no permitían un control preciso sobre la cantidad de agonista pMHC presentado independientemente no estimulante pMHC del uno mismo. Por otra parte, estas dos variedades de células también pueden diferir en la expresión de otras moléculas que modulan la activación de células T, como ligandos a los receptores de la célula de T coestimuladoras o inhibitorios, o moléculas de adhesión.
Posteriormente, hemos desarrollado un protocolo para la carga de las células deficientes en TAP2 RMA-S con péptidos exógenos para permitir la presentación de una cantidad fija de agonista pMHC en la presencia o ausencia de pMHC no estimulante. Esto se logró a través de los siguientes: incubación de TAP2-deficiente RMA-S células a temperaturas más bajas (28 ° C, en lugar de los habituales 37 º C) para estabilizar el vacío MHC clase I cadena pesada/β2 microglobulina complejos19; incubación a 28 ° C con el péptido del agonista exógeno; incubación a 28 ° C en la presencia o ausencia de péptido no estimulantes exógeno; y la incubación a 37 ° C para reducir la expresión superficial de la célula de vacío MHC clase I complejos8,9. Uso de este montaje experimental reveló que la presencia de pMHC no estimulante mayor activación de timocitos de ratón, las células T CD8 + periféricas ingenuo y CTLs8. Mecánico, la presencia de pMHC no estimulantes puede inducir reclutamiento CD8 a la sinapsis inmune de la célula: APC T incluso en ausencia de agonistas pMHC, y pMHC no estimulantes puede mejorar la interacción del TCR con CD8 coreceptor7,8. Sin embargo, este sistema experimental no permite pruebas las contribuciones relativas de TCR y CD8 Unión de correceptores a pMHC agonistas y agonistas Co en la mediación de la mejora de la activación, como modificaciones alterando la Unión TCR o CD8 MHC de clase que me afecta a todas las moléculas de MHC, independientemente el péptido presentado. Por lo tanto utilizamos la clase de MHC sola tecnología de la cadena para superar este problema.
La clase de MHC de cadena única (sc) que formato se ha utilizado antes para mejorar presentación antigénica pMHC para estrategias terapéuticas y para responder preguntas fundamentales sobre los mecanismos de TCR y NK la activación del receptor de la célula y función20,21 . scMHC-consiste en péptidos, β2- microglobulina y MHC-I cadenas pesadas Unidas por dos enlazadores de serina/glicina-ricos flexibles (figura 1A), varias secuencias de vinculador diferentes han sido desarrollados y probados22. scMHC-puedo doblar independientemente de la llave de la complejo y acompañen las proteínas necesarias para pMHC convencional complejo Asamblea20. scMHC-me ha mostrado para doblar correctamente, como determinó la conformación-anticuerpo específico de tinción22 y resolviendo la estructura sc con Cristalografía de rayos x23. El scMHC básico-ha modificado el diseño para mejorar la Unión de baja afinidad péptidos24,25.
Este protocolo describe el uso de scMHC humano-I investigar co-agonismo en CTL humano clon de activación. El protocolo ha sido optimizado para clon humano CTL específico para un epitopo del virus de la Hepatitis B (VHB). HBV es un severo problema de salud en todo el mundo, ya que hay 350 millones las personas infectadas con HBV y la infección crónica de HBV pueden conducir al desarrollo de carcinoma hepatocelular (HCC). Células HCC resultando de la infección de HBV pueden presentar generalmente epítopos derivados de VHB y pueden ser reconocidas por las células de T humanas específicas. Remoción de HBV y el HCC se basa en la respuestas de células T humanas26, pero HCC pacientes a menudo sufren de agotamiento de la célula de T y la célula de T reducido respuestas27. Introducción de HBV específico TCR en las células de T del VHB ha sido probado como una estrategia potencial de inmunoterapia para eliminar de la infección de HBV crónica28. Sin embargo, se desconoce si este método será efectivo en un ajuste clínico, debido a los bajos niveles de superficie MHC-I en hepatocitos humanos29. Por lo tanto, comprender el mecanismo de coagonism puede proporcionar perspectivas alternativas para inmunoterapia de HBV, posiblemente mejorando la presentación de pMHC endógeno para inducir las respuestas de células T mediada por agonismo co. El protocolo abarca todas las medidas necesarias para la investigación en humano co-agonismo: transfección de las células de T-REx CHO con agonistas y agonistas Co sc pMHC, generación de líneas de celulares de T-REx CHO estables, cultura de HBV-específico humano CTL CD8 + T células y activación CTL experimentos de cuantificación de la producción de citoquinas y degranulación en respuesta a células T-REx CHO. Aunque nos centramos en el uso del MHC sc tecnología investigar co-agonismo durante la activación de células T HBV de clase I, debe ser observado que los métodos presentados fácilmente pueden ser adaptados para la investigación sobre otros aspectos de la activación de células T en sistemas de células de T humanas con pMHC conocido-me especificidad.
Este protocolo utiliza un humano CD8 + CTL línea específico para el péptido derivado de HBV E183-91 (FLLTRILTI: "E183")30 presentada en HLA-A2. las moléculas HLA SC que consta de una secuencia señal de humano β2-microglobulina, un péptido de unión de HLA-A2 de interés, un enlazador de glicina/serina, un humano β2-microglobulina, un enlazador de glicina/serina y una A2 cadena pesada puede ser comercialmente sintetizado (figura 1A ). Los plásmidos codificación scA2 construcciones con agonista E183 péptido, o péptidos de31 coagonist VIH GAG (SLYNTVATL) son de los autores a petición. La secuencia del péptido puede cambiarse mediante mutagénesis dirigida de sitio. Un vector inducible por tetraciclina pcDNA5/a se utiliza para expresar la cadena único agonista HLA-A2 con E183 péptido (sc E183-HLA-A2). En presencia del represor de la tetraciclina, la pcDNA5/a plásmido permite sólo muy baja, "leaky" expresión de la proteína de interés; alta expresión puede ser inducida por la adición de la tetraciclina (figura 1BC). Uso de un sistema de expresión inducible por tetraciclina permite control sobre la cantidad de células superficiales agonista pMHC expresión. Una expresión constitutiva plásmido pcDNA3.1 se utiliza para expresar coagonist scA2 con péptido de mordaza (GAG-HLA-A2 de la sc). La expresión regulada de tetraciclina línea de células CHO (T-REx) (línea de células de hámster, no MHC humano endógeno) fue utilizada para expresar construcciones sc-HLA-A2 agonistas y conjunta agonista. Este sistema experimental permite un control preciso sobre pMHC presentación (figura 1): no presentación pMHC (untransfected T-REx), una alta cantidad de presentación de pMHC Co agonista (sc constitutiva expresión de HLA-A2-GAG), una baja cantidad de agonista pMHC presentación (sc E183-HLA-A2 en la ausencia de la tetraciclina), una alta cantidad de presentación pMHC de agonista (sc E183-HLA-A2 en presencia de tetraciclina), una baja cantidad de agonista pMHC presentación y alta expresión de agonista Co pMHC (sc E183-HLA-A2 en el ausencia de tetraciclina y sc constitutiva expresión de HLA-A2-GAG). Uso de este sistema experimental permite un control preciso de cantidades superficie celular de agonista y pMHC coagonist.
Protocolo
Nota: Todos los pasos que implican el uso de células vivas, no fija debe realizarse en una campana de bioseguridad y los residuos con riesgo biológico deben ser desechado según las regulaciones locales de seguridad y salud.
1. CHO transfección de la célula y la generación de las líneas celulares CHO estable
-
Transfección de células CHO
Nota: esta sección describe la transfección de células CHO uso de polietilenimina (PEI). Sin embargo, métodos alternativos pueden utilizarse, como las células CHO son relativamente fáciles de transfectar utilizando reactivos de transfección de lípidos disponibles comercialmente.- Cultura CHO células en completa F12 (cF12, F12 suplementado con 5% FBS, 100 U/mL de penicilina, estreptomicina 100 de μg/mL y 10 μg/mL blasticidin para mantener la expresión de la represora tetraciclina). Las células de paso cada 3-4 días en un 1:10 cociente.
- Un día antes de la transfección, preparar la suspensión de células CHO. Células de CHO de lavado en el matraz con PBS (10 mL de PBS para un matraz T75, 5 mL de PBS para un matraz T25). Añadir 0,05% Trypsin/0.02% EDTA en PBS (2 mL en un matraz T75, 1 mL para un frasco de T25) al matraz e incube durante 5-10 min a temperatura ambiente (RT). Usando un microscopio de luz, comprobar que las células han separado y parar la tripsinización añadiendo cF12 al matraz (8 mL en un matraz T75, 4 mL para un frasco de T25).
- Transferir la suspensión de células CHO a un tubo de 15 mL y centrifugar a 300-400 x g durante 5 min a 4 ° C o RT. eliminar sobrenadante y Resuspenda en cF12 (10 mL en un matraz T75, 5 mL para un frasco de T25) contar usando un hemocitómetro.
- Ajustar la concentración celular de CHO de 60.000-100.000 células/mL. Añadir 5 mL de suspensión de células CHO (células CHO de 300.000-500.000) por pozo en una placa bien 6. Incubar durante una noche a 37 ° C, 5% CO2.
- En el día de la transfección, añadir 400 μL de suero F12 medios o medios bajos del suero a un tubo de 1,5 mL. Añadir 3 μg de plásmido a 400 μL de medios de comunicación. Mezclar por pipeteo. Añadir 6 μg de PEI (6 μL de solución 1 mg/mL PEI) a la mezcla de ADN los medios de comunicación y vortex inmediatamente por 10 s.
- Incubar la mezcla de medios/ADN/PEI a temperatura ambiente durante 10-15 minutos. Durante la incubación, sustituir los medios de comunicación del celular CHO en la placa de la pozo 6 con 5 mL de medio fresco cF12.
- Añadir la solución de los medios de comunicación/ADN/PEI a las células CHO. Añadir la solución gota a gota y de manera uniforme sobre el pozo. Incubar durante una noche a 37 ° C, 5% CO2.
-
Generación de líneas de células CHO estables
- Un día después de la transfección, eliminar los medios de comunicación de los pozos y añadir 5 mL de cF12 que contienen los antibióticos de selección adecuada a cada pocillo. Utilizar 0.3 mg/mL Higromicina para plásmidos basada en pcDNA5TO y geneticin de 1 mg/mL para plásmidos pcDNA3-basado.
- Si el alcance de las células más que confluencia de 90% a las 24 h post transfección, trypsinize las células.
- Lavar los pocillos con 1 mL de PBS por pozo, añadir 1 mL de trypsin/0.02% 0.05% EDTA en PBS e incube durante 5-10 min en RT. usando un microscopio de luz, comprobar que las células han separado y parar la tripsinización añadiendo 3-4 mL de cF12 por pozo.
- Transferir la suspensión de células CHO a un tubo de 15 mL y centrifugar a 300-400 x g durante 5 min a 4 ° C o RT. eliminar el sobrenadante y Resuspenda en 10 mL de cF12. Añadir 5 mL de suspensión de células por pocillo en la placa de la pozo 6. Utilice dos pozos para maximizar el rendimiento de las células transfected.
- Incubar las placas bien 6 a 37 ° C, 5% CO2. Supervisar la muerte celular y el crecimiento de colonias resistentes usando un microscopio de luz. Quitar los medios de comunicación y sustituirla por medios frescos que contienen los antibióticos apropiados después de 4-5 días, o cuando se observa muerte celular importante.
- Una vez que alcance las células resistentes a más de 70% de confluencia, trypsinize las células como se describe en paso 1.2.2 y transferir a un matraz de T25 para expansión. La selección antibiótica dura 1-2 semanas.
- Una vez que las células CHO resistente a los antibióticos en el matraz de la T25 alcanzan 70-80% de confluencia, realizar tinción de anticuerpo para comprobar la expresión de superficie de célula de los constructos de interés. Un día antes de la tinción de anticuerpo, trypsinize las células como se describe en el paso 1.2.2 y ajustar la concentración celular a 200.000 células/mL y añadir 1 mL de la suspensión celular a la placa de la pozo 12. Para la prueba de construcciones inducible por tetraciclina, añadir 50-60 ng/mL de la tetraciclina. Incubar durante una noche a 37 ° C, 5% CO2.
- Use el raspador de la célula para separar las células CHO de la parte inferior del pozo. Este método es preferible a la tripsinización, ya que reduce el riesgo de daños al epitopo por clivaje proteolítico.
- Transferir 1 mL de medios de comunicación que contiene las células CHO a un tubo de FACS. Desactivación a 300-400 x g, 4 ° C por 5 min resuspender en 100 μL de anticuerpo anti-HLA diluido en FWB. Incubar 30 min a 4 ° C en hielo. Realizar esta tinción con anticuerpos anti-A2 para detectar niveles de expresión superficial de la célula de A2 total y anti-TCR-como específicos para A2 en complejo con péptido E183 detectar pMHC agonista-niveles de la expresión superficial de la célula.
- Después de verificar la expresión de MHC, FACS-tipo células positivas y mantener las células ordenadas en medios con antibióticos para reducir la pérdida del transgen. Para las células CHO expresando agonista pMHC, única célula clasificación se recomienda, para asegurar a agonista comparable pMHC expresión con y sin supertransfection con agonistas Co pMHC. 2-3 semanas se requieren para el crecimiento de las células CHO siguiendo la clasificación de la célula.
2. específica de VHB CTL cultura
-
Preparación de PBMCs como alimentadores para el re-estímulo de CTL humana específica de VHB
Nota: para el clon CTL A2-E183-específico, la estimulación PBMCs recién aislados, en lugar de PBMCs descongeladas, da los mejores resultados.
PRECAUCIÓN: Obtener todas las aprobaciones éticas necesarias antes de reclutar voluntarios para las donaciones de sangre. Con el propósito de este trabajo, se recogieron PBMC de voluntarios sanos en el protocolo aprobado por el IRB de NUS. Se obtuvo consentimiento informado de todos los donantes. Siga todas las precauciones necesarias cuando se trabaja con sangre humana para reducir el riesgo de transmisión de enfermedades transmitidas por sangre.- Antes de comenzar, fijar la temperatura de la centrífuga a 19-20 ° C y caliente previamente el gradiente de densidad (por ejemplo, Ficoll) a RT.
- Añadir 15 mL de temperatura gradiente de densidad para tubo de 50 mL. Centrifugar a 400 x g durante 5 min a 19-20 ° C. Esto es para asegurar que no es ningún gradiente de densidad en el lado del tubo.
- Recoger 20 mL de sangre de un donante voluntario sano a través de venopunción. Añadir 15 mL de PBS a 20 mL de sangre en un tubo de 50 mL. Mezclar mediante pipeteo arriba y abajo.
- Lentamente, agregue los 35 mL de sangre diluida en PBS sobre los 15 mL de gradiente de densidad en el paso 2.1.2. Asegúrese de que la sangre y el gradiente de densidad no se mezclan. Centrifugar los tubos a 19 ° C, 1.200 x g durante 20 min con los frenos apagado.
- Eliminar aproximadamente el 70% de la capa de plasma. Aspirar cuidadosamente la capa de PBMC (la capa sobre la capa de gradiente de densidad claro nublada) usando un Pasteur pipeta y colocarla en un nuevo tubo de 50 mL.
- Añadir PBS a PBMCs para obtener un volumen total de 50 mL. Centrifugar el tubo a 4 ° C, 300-400 x g por 10 minutos Retire con cuidado el sobrenadante utilizando los Desaireadores en vacío y estéril vidrio pipeta Pasteur, o por decantación.
- Resuspenda las células en 50 mL de PBS. Centrifugar el tubo a 4 ° C, 300 x g por 10 minutos Retire con cuidado el sobrenadante utilizando los Desaireadores en vacío y estéril vidrio pipeta Pasteur, o por decantación.
- Resuspenda las células en 2 mL de células T humano completo medios (medios libres de suero suplementados con 2% de suero humano). Contar las células mediante hemocitómetro. Este protocolo da en promedio 1-2 x 10⁶ PBMCs por 1 mL de sangre.
-
Estimulación a CTL usando PBMCs como células de alimentador
- Irradiar PBMCs en 30 Gy para inhibir la proliferación en respuesta a la estimulación posterior.
PRECAUCIÓN: Asegúrese de una formación adecuada y el cumplimiento con el laboratorio de requisitos de seguridad al usar el irradiador. - Vuelva a suspender las PBMCs irradiados en medios de comunicación de células T humano completo 2 x 10⁶ células/ml. Añadir citocinas y lectinas de Phaseolus vulgaris (PHA) para estimular a la CTL en concentración de 2 x en la suspensión PBMC. El final del cytokine y concentraciones de PHA son: 20 U/mL recombinante humano IL-2, 10 recombinante ng/mL IL-7, 10 ng/mL recombinante humano IL-15 y 1,5 mg/mL PHA.
- Descongelar lo congelado vial CTL en un baño de agua de 37 ° C. Transferir las células descongeladas en un tubo de 15 mL con 10 mL de medio de células T humano completo. Desactivación a 300-400 x g a 4 ° C por 5 minutos Retire con cuidado el sobrenadante utilizando los Desaireadores en vacío y estéril vidrio pipeta Pasteur, o por decantación.
- Resuspender los CTLs en 2 mL de medio de células T humano completo. Contar las células mediante hemocitómetro. Agregar medios de células T humano completo para obtener la concentración de células de 106 células/mL.
- En una placa bien 24, Añadir 0,5 mL de PBMCs irradiados (106 células) con 2 x cytokines y PHA (paso 2.2.2) y 0,5 mL de CTLs (0,5 x 10⁶ células) por pozo. El número de pozos utilizados depende del número total de CTLs o PBMCs disponibles. Incubar a 37 ° C, 5% CO2.
- Después de 4-5 días, cuando ráfagas CTL son visibles y los medios de comunicación se convierte en amarillo, transferencia de los cultivos en placas bien 6 y completar el volumen inicial de 1 mL con 4 mL de medio de células T humano completo con IL-2 de 20 U/mL, 10 ng/mL IL-7 y 10 ng/mL de IL-15 (no PHA).
- Después de 2-3 días, transferir las culturas en un matraz T75, añadir 40 mL de medio de células T humano completo con citoquinas (paso 2.2.2, no PHA) y la cultura en posición vertical.
- Mantener CTLs en una concentración de 1-2 x 10⁶ células/mL mediante la adición de medios frescos con citoquinas (paso 2.2.2, no PHA) en un volumen igual a la del volumen existente de la cultura en el día. CTL puede utilizarse para los experimentos de 7-14 días después de la estimulación.
- Irradiar PBMCs en 30 Gy para inhibir la proliferación en respuesta a la estimulación posterior.
3. experimentos de activación de la célula de T
Nota: Un experimento típico requiere varias líneas de T-RExCHO: untransfected T-REx CHO cells (control negativo), T-REx CHO células expresando pMHC no estimulantes sólo (scA2 GAG; control negativo), T-REx CHO células expresan cantidades bajas de agonista pMHC-I () scA2-ENV sin tetraciclina, muestra experimental), T-REx CHO células expresan cantidades bajas de agonista pMHC y altas cantidades de no estimulación agonista Co pMHC (scA2-ENV y GAG de scA2, sin tetraciclina, muestra experimental), y las células de T-REx CHO expresando cantidades elevadas de agonista pMHC-I scA2-ENV con tetraciclina, control positivo), como se muestra en la figura 1D.
-
Células CHO de la galjanoplastia como células de presentación de antígeno
- Células de CHO cultivos en matraz T75, tal como se describe en el paso 1.1.1. Utilizar células en 70-90% de confluencia para obtener mejores resultados. Experimentar un día antes de la activación de células T, trypsinize las células como se describe en la sección 1.1.2. Después de la tripsinización, transfiera la suspensión de células en un tubo de 15 mL, centrifugar a 400 x g durante 5 min a 4 ° C o RT, eliminar el sobrenadante por pipeteo o decantación.
- Resuspenda el precipitado de células en 5 mL de cF12. Contar las células CHO usando un hemocitómetro.
- Ajustar la concentración celular a 2 x 10⁵/ml usando cF12. Añadir 50-60 ng/mL de la tetraciclina para el agonista solo muestras para inducir altas cantidades de agonista pMHC-expresión como control positivo (figura 1). Células CHO serán establecerse en tubos de 15 mL, así que asegúrese de mezclar por pipeteo o vórtex antes de chapado.
- Para análisis de activación de la célula de T, añada 100 μL de la suspensión de células CHO por pozo a inferior de U 96 placa bien y utilice triplicados por línea celular CHO. Para la tinción de anti-MHC de células CHO, añadir 1 mL de la suspensión celular a 12 placa bien y utilice triplicados por línea celular. Incubar durante una noche a 37 ° C, 5% CO2.
-
Análisis de activación de la célula de t
Nota: este ensayo de activación de la célula de T permite cuantificación simultánea del degranulation de la célula de T (CD107a tinción, una medida de la citotoxicidad de células T) y producción de citoquinas.- El día antes del experimento, centrifugar las células CTL a 400 x g a 4 ° C por 5 min, contar usando hemocitómetro y resuspender las células en 106 células/mL en medios de comunicación de células T humano completo sin citoquinas o PHA. Incubar a 37 ° C, 5% CO2. El propósito de este paso de resto es disminuir la sensibilidad CTL, como hemos observado la activación máxima en respuesta a cantidades bajas de antígeno sin este paso.
- En el día del experimento, las células T de la centrifugadora a 400 x g a 4 ° C por 5 min, retirar el sobrenadante por decantación o pipetear y resuspender las células en medios libres de suero completo 2 mL (sin citoquinas o PHA). Cuenta de células T vivas usando un hemocitómetro y ajustar la concentración de la célula de T a 106 en células/mL medio de células T humano completo (sin citoquinas o PHA).
- Añadir el anticuerpo anti-humana CD107a en una dilución de 1: 100 (concentración final de 2,5 μg/mL), añadir brefeldin A una dilución 1: 1000 (concentración final de 1 μg/mL).
- Eliminar los medios de comunicación de las células CHO en la placa de la pozo 96 por aspiración con pipeta Pasteur de vidrio o por sacudiendo la placa. Por pozo, añadir 200 μL de las células T suspensión (0,2 x 10⁶ células) que contiene anti-CD107a y brefeldin A. cocultivo células T con células CHO para 3-4 h.
- Al final de la cultura de colaboración, realizar tinción de antígeno de superficie de célula de T. Desactivación del 96 bien placa a 300-400 x g, 5 min a 4 ° C y eliminar el sobrenadante por aspiración o sacudiendo. Añadir 2,5 μL de CD3 y 2,5 μL de anticuerpos CD8 en 50 μL de 0.5% de BSA en PBS (tampón de lavado de flujo, FWB) por pozo para tinción de antígenos de superficie celular. Incubar las muestras en hielo durante 30 min en la oscuridad.
- Lavar las muestras añadiendo 150 μL de FWB por pozo. Desactivación del 96 bien placa a 300-400 x g, 5 min a 4 ° C y eliminar el sobrenadante por aspiración o sacudiendo.
- Realizar los pasos de fijación/permeabilización con un kit de fijación/permeabilización. Añada 100 μl de solución de fijación/permeabilización (desde el kit de fijación/permeabilización) por pocillo, mezclar mediante pipeteo. Incubar en hielo por 20 min.
- Centrifugar a 300-400 x g y 4 ° C por 5 min y eliminar el sobrenadante por aspiración o moviéndose. Añadir 200 μL de 1 x de tampón de lavado/perm (diluir 10 x buffer stock perm/lavado del antes del kit uso) por pozo. Repita este paso.
- Resuspenda el sedimento celular en 50 μL de tampón de perm/lavado de x 1 que contiene anticuerpo anti-IFN-γ en 0.3 μg/mL. Incubar en hielo por 30 min en oscuridad.
- Añadir 150 μL de tampón de lavado de perm 1 x. Centrifugar a 300-400 x g durante a 4 ° C por 5 min y eliminar el sobrenadante por aspiración o moviéndose. Añadir 200 μL de 1 x de tampón de lavado de perm, centrifugar a 300-400 x g durante a 4 ° C por 5 min y eliminar el sobrenadante por aspiración o moviéndose.
- Vuelva a suspender cada muestra en 200 μL de FWB. Proceda con el análisis cytometric del flujo.
-
CHO de la célula MHC de clase I de tinción
Nota: es fundamental para verificar la scMHC-célula de niveles superficiales de las células utilizadas en cada experimento, como líneas celulares pueden perder la expresión del transgén. Cuando prepare 96 placa bien para la estimulación de células T, configurar placa 12 bien para la tinción de células CHO, como se indica en la sección 3.1.4.- Use un raspador celular para separar las células CHO desde el fondo del pozo. Este método es preferible a la tripsinización, ya que reduce el riesgo de daños al epitopo por clivaje proteolítico.
- Transferir 1 mL de medios de comunicación que contiene las células CHO al tubo de FACS. Desactivación a 300-400 x g a 4 ° C por 5 min resuspender en 100 μL de anticuerpo anti-HLA diluido en FWB. Incubar durante 30 min a 4 ° C en hielo.
- Realizar esta tinción con anticuerpos anti-A2 para detectar niveles de expresión superficial de la célula de A2 total y anti-TCR-como específicos para A2 en complejo con E183 péptido32 para detectar pMHC agonista-niveles de la expresión superficial de la célula.
- Añadir 1 mL de FWB a cada muestra CHO, desactivación a 300-400 x g, 4 ° C, 5 min y luego volver a suspender la muestra en 0,3 mL de FWB. Proceder con el análisis de citometría de flujo.
Resultados
El sc de MHC de clase I tecnología utilizada aquí permite un control preciso de la expresión superficial de la célula de MHC de clase I con péptidos conocidos, ligados covalentemente, inducir activación de las células T. Hemos generado un ingeniería xenogeneicos sistema APC (figura 1A, B, C) que permite la presentación de los niveles bajos de agonista pMHC en la presencia o ausencia de agonista Co pMHC (figura 1, E). Críticamente, hemos utilizado un TCR-como anticuerpo específicos para HLA-A2 actual E183 péptido para mostrar esa presentación de la sc de agonista que E183-HLA-A2 no se altera con coexpresión de agonista Co sc GAG-HLA-A2 (Figura 1E). Sin embargo, debe señalarse que el anticuerpo específico de TCR-como E183-HLA-A2 muestra algunos Unión a HLA-A2 péptido GAG que se presenta (Figura 1E). Antígeno ingeniería similar que presentan sistemas de células puede ser construido utilizando diferentes péptidos o moléculas MHC para investigar los requisitos moleculares para interacciones TCR o correceptor de las células T humanas con diferentes especificidades.
Utilizamos estos vehículos blindados diseñados para estimular una E183-HLA-A2-específico humano CD8 + T copia de la célula. Tres controles negativos se utilizaron: T células solamente, untransfected CHO de T-REx, y célula de las células de T-REx CHO expresan altas cantidades de co agonista sc GAG-HLA-A2 para probar el potencial T por cualquier moléculas presentes en las células de T-REx CHO (CHO untransfected del T-REx las células en comparación con solamente la célula de T) y para la activación de la célula de T por sc-GAG-HLA-A2 (células de T-REx CHO expresando altos niveles de sc-GAG-HLA-A2 en comparación con las células de T-REx CHO untransfected). Untransfected células CHO T-REx o T-REx CHO expresando sc-GAG-HLA-A2 no indujo la activación de clones de CD8 + CTL E183-HLA-A2-específico, determinado mediante la cuantificación de la producción de IFN-γ y la expresión del marcador CD107a de degranulación como una medida de la célula de T citotoxicidad (figura 2AB). Expresión de altos niveles de agonista sc E183-HLA-A2, utilizado como control positivo, por muy eficiente producción de IFN-γ y degranulación (figura 2AB), demostrando que el constructo de HLA-A2 sc puede ser reconocido por un TCR específico para activar Funciones de la célula de t efectoras. Expresión de bajos niveles de sc E183-HLA-A2 induce niveles más bajos de la producción de IFN-γ y degranulación, y esto fue realzado por la presencia de co agonista sc GAG-HLA-A2 (figura 2AB). Cabe señalar que se observaron porcentajes muy altos de células T CD107a + incluso en respuesta a bajos niveles de antigénico pMHC (figura 2B), consistente con informes anteriores de requisitos relativamente bajo para la cantidad de agonista pMHC para la inducción de células T citotoxicidad de33. La IMF CD107a, indicando la cantidad de degranulación en forma unicelular, proporciona un mejor rango dinámico (figura 2B). El análisis de activación de la célula de T utilizado permite la cuantificación simultánea de dos funciones effector principales: cytokine producción y citotoxicidad y proporciona la lectura muy sensible con buen rango dinámico.
Utilizamos la tecnología de la cadena solo para probar si la Unión del TCR a pMHC agonista Co es necesario para la mejora de la activación dependiente de pMHC Co agonista. Nos mutó valina en la posición 152 en el borde de la ranura de unión de péptido HLA-A2 (figura 3B) a ácido glutámico para crear a V152E mutante, que esta mutación se ha divulgado para abolir la Unión del TCR al HLA-A234. Luego Probamos si la mutación de V152E puede abolir la Unión TCR para el clon de CTL E183-HLA-A2 utilizado por introducir esta mutación en agonista sc E183-HLA-A2 y expresando la mutante agonista sc construcción en células CHO T-REx. Tipo salvaje, pero no V152E, sc E183-HLA-A2 inducida por activación de la copia CTL E183-HLA-A2-específico utilizada (Figura 3A). Debe ser observado que cualquier mutación de TCR-obligatoria en la clase de MHC debe analizarse por separado para cada clon de células TCR/T individual utilizado, como el efecto de la mutación dependerá de las interacciones moleculares precisas entre el TCR y el complejo pMHC, y difieren entre TCRs diferentes. Por ejemplo, probamos ocho mutaciones, ya sea divulgado previamente TCR-enlace mutaciones o mutaciones predice para interrumpir la Unión TCR sin abrogar enlace péptido en HLA-A2. De estos, V152E fue la única mutación que suprimió la activación del clon de células T específicas E18310. Luego presentó la mutación de V152E en la sc Co agonista GAG-HLA-A2 y co expresado peso o V152E sc GAG-HLA-A2 con niveles bajos de agonista sc E183-HLA-A2. PESO y V152E sc GAG-HLA-A2 mayor producción de IFN-γ y degranulación (figura 3D), sugiriendo que Unión TCR a pMHC Co agonista no es requerido para la estimulación de la activación de agonista co dependiente de pMHC T CD8 + celular. Sola cadena MHC clase I tecnología, tal como se presenta aquí, puede utilizarse para modificar TCR o coreceptor vinculante a la clase de MHC con el péptido conocido para investigar los requisitos moleculares para reconocimiento del antígeno de célula T y la activación.
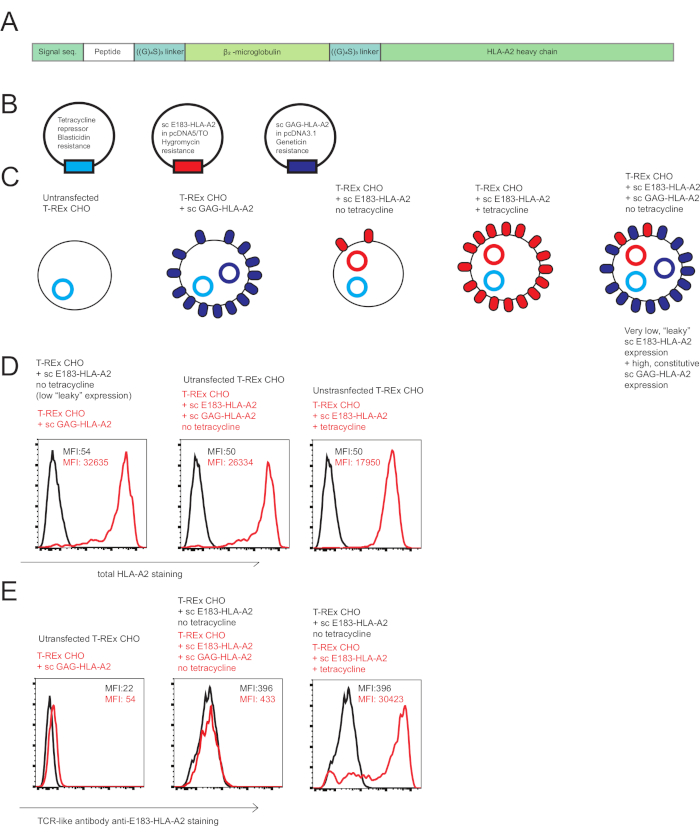
Figura 1: solo cadena HLA-A2 construye para investigar Co agonista en la activación de células T CD8 + humana. (A) esquema de un constructo scHLA-A2, que consiste en covalente señal secuencia de fundido humana β2 microglobulina, péptido de la elección, linker flexible glicina-serina (GGGGSGGGGS GGGGS), humana β2 microglobulina, flexible vinculador de glicina-serina y cadena pesada de HLA-A2. (B) esquema de la plásmidos utilizados para generar ingeniería antígeno que presenta las células para investigar co-agonismo en la activación de células T CD8 + humana: represor de tetraciclina, agonista sc E183-HLA-A2 bajo control del promotor inducible por tetraciclina, no estimulantes agonistas Co sc GAG-HLA-A2 bajo control del promotor constitutivo activo. (C) esquema de ingeniería antígeno que presenta las células utilizadas para investigar co-agonismo: células de T-REx CHO (no expresión de MHC humana), las células de T-REx CHO expresar constitutivamente elevados de sc GAG-HLA-A2 (no estimulante agonista Co pMHC), Las células de T-REx CHO expresan bajos niveles "agujereados" de sc E183-HLA-A2 en la ausencia de tetraciclina (nivel bajo de péptido agonista), células de T-REx CHO expresando altos niveles de HLA-A2-E183 sc en presencia de tetraciclina (nivel alto de péptido agonista), T-REx CHO células expresan niveles bajos de sc E183-HLA-A2 y altos niveles de sc GAG-HLA-A2 (nivel bajo de péptido agonista) y nivel alto de péptido Co agonista. (D) célula de coloración superficial del antígeno ingeniería que presenta líneas celulares usando anticuerpos anti-HLA-A2. Los números indicados denotan valores MFI para mancha de MHC en la puerta de la célula viva. Resultados representativos de 5 experimentos independientes (E) de la célula superficie tinción del antígeno ingeniería presentando líneas de células con TCR-como anticuerpos específicos contra HLA-A2 actual E183 péptido. Los números indicados denotan valores MFI para mancha de MHC en la puerta de la célula viva. Resultados representativos de 5 experimentos independientes. Haga clic aquí para ver una versión más grande de esta figura.
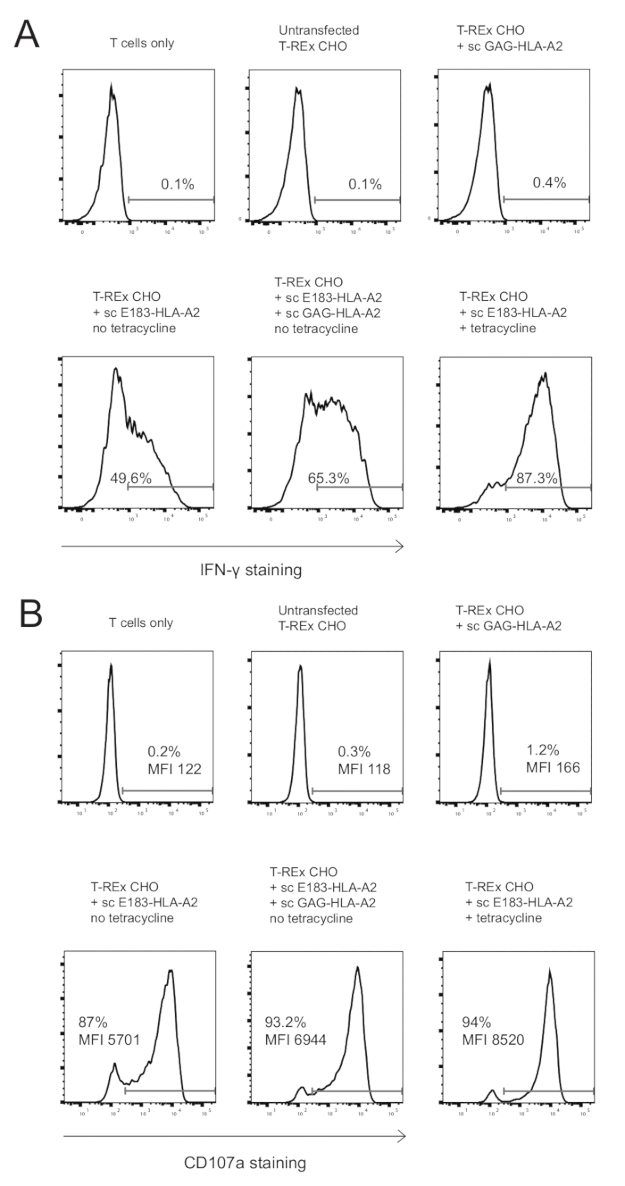
Figura 2: presencia de agonista Co pMHC mayor producción de citoquinas y degranulación de clon humano de CD8 + CTL E183-HLA-A2-específico. (A) intracelulares IFN-γ tinción de clon de CD8 + CTL humano HLA-A2-específico después de la estimulación de 3 h con la indicada diseñado células presentadoras de antígeno. Los números mostrados indican el porcentaje positivo para la tinción de IFN-γ. Datos representativos de 3 experimentos independientes, cada uno realizado con técnica triplicado. (B) célula superficie CD107a tinción de clon de CD8 + CTL humano HLA-A2-específico después de estimulación de 3 h con la indicada diseñado células presentadoras de antígeno. Los números mostrados indican el porcentaje de positivo para la tinción de CD107a o la IMF CD107a para la población de células T CD8 +. Datos representativos de 3 experimentos independientes, cada uno realizado con técnica triplicado. Haga clic aquí para ver una versión más grande de esta figura.
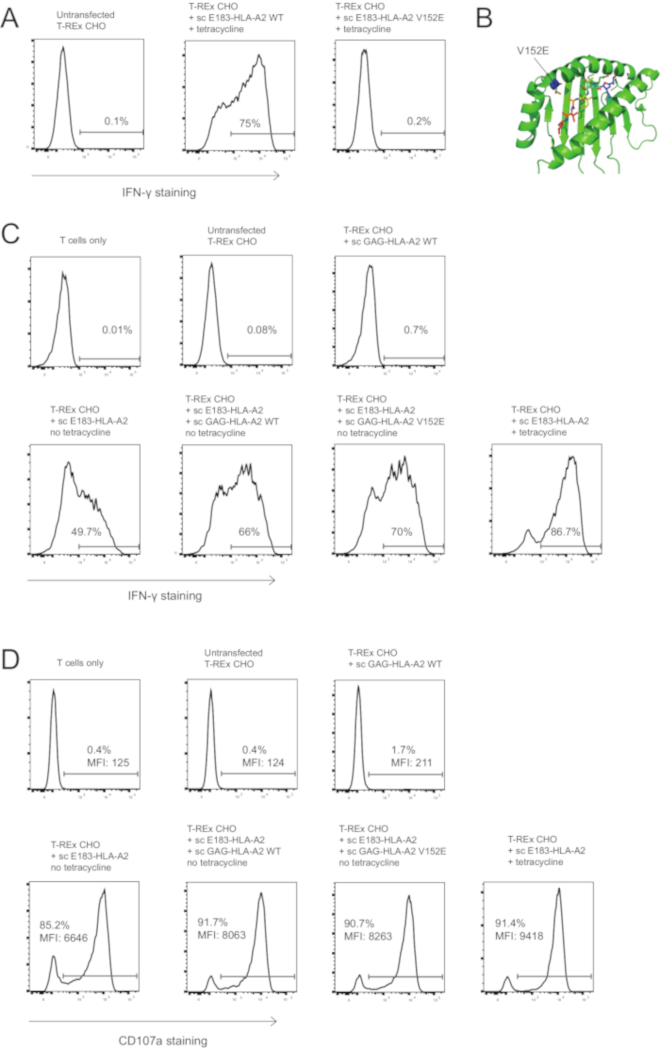
Figura 3: agonista Co – mejora de activación de células T mediada no requiere unión de TCR para el agonista Co pMHC complejo. (A) mutación de V152E en sc E183-HLA-A2 suprime la activación del clon humano de CD8 + CTL E183-HLA-A2-específico. Las células de T-REx CHO expresando altos niveles (inducción de la tetraciclina) de peso o V152E mutante sc E183-HLA-A2 se utilizan para estimular E183-HLA-A2-específico humano CD8 + CTL clon para 3h. Activación de la célula de t se cuantificó usando tinción intracelular de IFN-γ. Los números mostrados indican el porcentaje positivo para la tinción de IFN-γ. Datos representativos de 3 experimentos independientes, cada uno realizado con técnica triplicado. (B) localización de la mutación V152E en el surco de unión de péptido de HLA-A2. (C) mutación de V152E en sc GAG-HLA-A2 agonista Co pMHC complejo no abolir la mejora co-agonist-dependiente de la activación. Intracelulares IFN-γ tinción de clon de CD8 + CTL humano HLA-A2-específico después de la estimulación de 4h con la indicada diseñado células presentadoras de antígeno. Los números mostrados indican el porcentaje positivo para la tinción de IFN-γ. Datos representativos de 3 experimentos independientes, cada uno realizado con técnica triplicado. (D) mutación de V152E en sc GAG-HLA-A2 agonista Co pMHC complejo no abolir la mejora co-agonist-dependiente de la activación. Superficie CD107a tinción de clon de CD8 + CTL humano HLA-A2-específico después de estimulación de 3h con la indicada diseñado células presentadoras de antígeno de la célula. Los números mostrados indican el porcentaje de positivo para la tinción de CD107a o la IMF CD107a para la población de células T CD8 +. Datos representativos de 3 experimentos independientes, cada uno realizado con técnica triplicado. Haga clic aquí para ver una versión más grande de esta figura.
Discusión
El protocolo presentado constituye una herramienta sólida para la investigación de las interacciones moleculares durante la activación de células T CD8 + humana. Un paso crítico para la investigación del co-agonismo durante la activación de células T humanas es control agonista pMHC superficial la expresión célula para asegurar a igual agonista pMHC presentación sobre los vehículos blindados con o sin expresión de pMHC Co agonista. En nuestro sistema experimental, esto se logra utilizando un clon de célula expresan cantidades bajas de agonista pMHC, seguido de supertransfection con un agonista Co pMHC construir y agonista pMHC cuantificación usando anticuerpos TCR-como10, 32. como expresión de agonista sc pMHC cambian con el tiempo, es fundamental para cuantificar la expresión superficial de agonista pMHC en APC utilizado en cada experimento utilizando anticuerpos de TCR-como. Si no está disponible, ningún anticuerpo específico TCR-como agonista scMHC-puedo expresar como fusión de la proteína fluorescente, y su expresión superficial de la célula se puede entonces cuantificar mediante un método de microscopia sensibles, tales como microscopía de fluorescencia de reflexión interna total 35 , 36. por otra parte, expresión superficial de la célula de agonista Co pMHC disminuye con el tiempo, debido a la metilación dependiente - independiente y silenciamiento del promotor CMV37y deben ser supervisada con anticuerpo de tinción y flujo cytometry análisis, repetidas FACS-clasificación cuando sea necesario. Hemos cultivado células CHO durante 5 semanas con pérdida relativamente limitada de sc pMHC expresión. Se recomienda congelar las células CHO pronto después de su selección/clasificación para asegurar un stock confiable de células con expresión de MHC conocido sc.
Los varios pasos de los protocolos presentados pueden ser modificados, dependiendo de la disponibilidad de equipos, o dependiendo de los objetivos específicos de investigación. Por ejemplo, PBMC proliferación potenciales puede ser inhibido (paso 3.2.1) usando métodos alternativos que no requieran de una gamma (o x) Irradiador, tales como el tratamiento con mitomicina C38. Un buffers de disociación no enzimática de la célula que contienen quelantes de metal39 pueden utilizarse en lugar de raspar en paso 3.3.1 de la célula. Por otra parte, el antígeno que presenta el sistema puede ser modificado para hacerlo más conveniente para los clones humanos CTL expresando diferentes TCRs. CHO células hámster expresa MHC clase I moléculas, y aunque estas son irrelevantes para la línea CTL estudiada aquí (figura 2A y Figura 3A, observaron no hay respuestas de células T células CHO untransfected), existe la posibilidad que otros TCRs humanas pueden mostrar algunos xenoreactivity. En que caso, hámster MHC clase I expresión puede reducirse al noquear a hámster β2-microglubulin o toque usando CRISPR/Cas9; o una línea APC humana puede utilizarse después de noquear CRISPR/Cas9-mediada β2-microglubulin o grifo.
El sistema experimental presentado aquí permite el control preciso de interacciones CD8 TCR con las moléculas de MHC que presentan péptidos previamente definidos. Por ejemplo, nos hemos demostrado previamente que mutaciones supresión CD8 enlace40 a pMHC coagonist eliminaron mejorar la activación mediada por el coagonist en murinos y humanos T CD8 + células9,10, mientras que abroga TCR interacción con Co agonista pMHC no tuvo efecto en la activación mediada por coagonist mejora10. Sin embargo, el uso de construcciones sola cadena MHC tiene varias limitaciones. Por ejemplo, es tiempo y consumo de mano de obra para probar múltiples péptidos Co agonista secuencias utilizando este sistema experimental, como se trata de generación de múltiples plásmidos codifican sc MHC péptidos diferentes y posterior transfecciones y clasificación celular. Anteriormente, hemos utilizado la línea de celular TAP-deficiencia murine RMA-S para probar múltiples péptidos Co agonista en ratón de8,de activación de la célula de T9, pero este acercamiento no tuvo éxito con el grifo-deficiencia humana T2 celular línea10, probablemente debido a la presentación de péptidos de grifo independiente41. Otra limitación de nuestro sistema experimental es que no proporciona un método rápido para alterar la cantidad de agonista Co pMHC moléculas con el fin de determinar la cantidad crítica de agonista Co pMHC necesaria para desencadenar la activación de la célula de T. Por otra parte, el sistema inducible por tetraciclina no permite valoración de agonista pMHC cantidad a nivel unicelular cambiando la concentración de la tetraciclina, como diferentes concentración de tetraciclina altera la proporción de células positivas de HLA-A2, en lugar de los niveles de HLA-A2 en base al celular. Un enfoque alternativo que estamos investigando actualmente es usar lipídicas bicapas42, utilizado anteriormente para investigar co-agonismo murino CD4 + T células activación4 o granos cantidad fija actual de pMHC agonista en la presencia de cantidades variables de co agonista pMHC. Cuando se utiliza junto con UV escindibles péptido tecnología4,43, estos sistemas experimentales alternativos deben permitir la prueba rápida de múltiples secuencias de péptidos de agonista Co así como diferentes cantidades de co agonista pMHC .
La tecnología de MHC sc puede ser también aplicable a la investigación de la co-agonismo en células T CD4 humanas o murinas, según sola cadena MHC clase II las moléculas que presentan los péptidos se han expresado con éxito en células de mamífero superficies44. Por otra parte, el uso de la tecnología de sc MHC puede ampliarse a la investigación de las moléculas de MHC no clásicas como HLA-E. SC HLA-E se ha descrito antes, y su expresión se ha demostrado para inhibir la activación de células T humanas45. Otra molécula de MHC no clásicas de interés es el CD1, que presenta lípidos en lugar de péptidos46. SC construcciones de cadena pesada CD1 y β2-microglobulina han demostrado ser expresado en la superficie celular y enlazar lípidos correspondientes ligandos47. Cadena única tecnología MHC tiene un gran potencial como herramienta de investigación para investigar las interacciones moleculares durante la activación de células T y NK.
Divulgaciones
Los autores declaran a no hay intereses contrapuestos.
Agradecimientos
Esta investigación fue apoyada por el Consejo de Ministerio de salud Singapur Nacional de investigación médica bajo su CBRG/0064/2014 a N.R.J.G., por crear bajo su R571-002-012-592 a p.a.m., Investigatorship de la Fundación de investigación nacional R571-000-272-281 de P.A.M. . y por un premio de investigador de investigación traslacional (estrella) Singapur (NMRC/estrella/013/2012) a A.B. Agradecemos al Dr. Paul Hutchinson y el Sr. Teo Guo Hui de instalaciones centrales de flujo de programa NUS Inmunología para la selección de expertos de la célula. Agradecemos a Elijah Chen lectura crítica del manuscrito.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Aim-V (medios sin suero) | Gibco | 12055091 | |
| Blasticidin | Gibco | R21001 | |
| Cytofix/Cytoperm (kit de fijación/permealibización) | BD | 554714 | |
| F12 | Gibco | 10565-018 | |
| Suero fetal bovino (FBS) | HyClone | SH3007103 | |
| Geneticin | Gibco | ||
| GolgiPlug (Brefeldin A) | BD | 555029 | |
| Suero humano | Sigma-Aldrich | H4522 | |
| Higromicina | Gibco | 10687010 | |
| Lectina de Phaseolus vulgaris (PHA) | Sigma-Aldrich | L4144 | |
| Opti-MEM (medios séricos bajos) | Bibco | 31985070 | |
| 10x PBS | Vivantis | PB0344 – 1L | |
| Penicilina/Estreptomicina | HyClone | SV30010 | |
| Polietilenina (PEI) | Sigma-Aldrich | 408727 | |
| IL2 humana recombinante | R& D Systems | 202-IL | |
| IL7 humano recombinante | R& D Systems | 207-IL | |
| IL15 humano recombinante | R& D Systems | 247-ILB | |
| Tetraciclina | Sigma-Aldrich | T7660 | |
| T-REx Línea celular CHO | Thermo Fisher Scientific | R71807 | |
| 10 x Tripsina/EDTA | Gibco | 15400054 | |
| Anticuerpos | |||
| CD3 | BD | 347347 | Clon SK7, RRID:AB_400287 |
| CD8&alfa; | BD | 563795 | clon RPA-T8, RRID:AB_2722501 |
| CD107a | BD | 566261 | clon H4A3, RRID:AB_2739639 |
| HLA-A2 | eBioscience | 17-9876-41 | clon BB7.2, RRID:AB_11151522 |
| IFN-γ | eBioscience | 12-7319-41 | Clon 4S. B3, RRID:AB_1311250 |
Referencias
- Gascoigne, N. R. Do T cells need endogenous peptides for activation? Nature Reviews. Immunology. 8 (11), 895-900 (2008).
- Gascoigne, N. R., Zal, T., Yachi, P. P., Hoerter, J. A. Co-receptors and recognition of self at the immunological synapse. Current Topics in Microbiology and Immunology. 340, 171-189 (2010).
- Krogsgaard, M., Juang, J., Davis, M. M. A role for "self" in T-cell activation. Seminars in Immunology. 19 (4), 236-244 (2007).
- Krogsgaard, M., et al. Agonist/endogenous peptide-MHC heterodimers drive T cell activation and sensitivity. Nature. 434 (7030), 238-243 (2005).
- Ebert, P. J., Jiang, S., Xie, J., Li, Q. J., Davis, M. M. An endogenous positively selecting peptide enhances mature T cell responses and becomes an autoantigen in the absence of microRNA miR-181a. Nature Immunology. 10 (11), 1162-1169 (2009).
- Lo, W. L., et al. An endogenous peptide positively selects and augments the activation and survival of peripheral CD4+ T cells. Nature Immunology. 10 (11), 1155-1161 (2009).
- Yachi, P. P., Ampudia, J., Gascoigne, N. R., Zal, T. Nonstimulatory peptides contribute to antigen-induced CD8-T cell receptor interaction at the immunological synapse. Nature Immunology. 6 (8), 785-792 (2005).
- Yachi, P. P., Lotz, C., Ampudia, J., Gascoigne, N. R. T cell activation enhancement by endogenous pMHC acts for both weak and strong agonists but varies with differentiation state. The Journal of Experimental Medicine. 204 (11), 2747-2757 (2007).
- Hoerter, J. A., et al. Coreceptor affinity for MHC defines peptide specificity requirements for TCR interaction with coagonist peptide-MHC. The Journal of Experimental Medicine. 210 (9), 1807-1821 (2013).
- Zhao, X., et al. Nonstimulatory peptide-MHC enhances human T-cell antigen-specific responses by amplifying proximal TCR signaling. Nature Communications. 9 (1), 2716(2018).
- Juang, J., et al. Peptide-MHC heterodimers show that thymic positive selection requires a more restricted set of self-peptides than negative selection. The Journal of Experimental Medicine. 207 (6), 1223-1234 (2010).
- Anikeeva, N., et al. Quantum dot/peptide-MHC biosensors reveal strong CD8-dependent cooperation between self and viral antigens that augment the T cell response. Proceedings of the National Academy of Sciences of the United States of America. 103 (45), 16846-16851 (2006).
- Anikeeva, N., Gakamsky, D., Scholler, J., Sykulev, Y. Evidence that the density of self peptide-MHC ligands regulates T-cell receptor signaling. PloS One. 7 (8), e41466(2012).
- Schuren, A. B., Costa, A. I., Wiertz, E. J. Recent advances in viral evasion of the MHC Class I processing pathway. Current Opinion in Immunology. 40, 43-50 (2016).
- Bubenik, J. MHC class I down regulation, tumour escape from immune surveillance and design of therapeutic strategies. Folia Biologica. 51 (1), 1-2 (2005).
- Apps, R., et al. Influence of HLA-C expression level on HIV control. Science. 340 (6128), New York, N.Y. 87-91 (2013).
- Cebecauer, M., et al. CD8+ cytotoxic T lymphocyte activation by soluble major histocompatibility complex-peptide dimers. The Journal of Biological Chemistry. 280 (25), 23820-23828 (2005).
- Sporri, R., Reis e Sousa, C. Self peptide/MHC class I complexes have a negligible effect on the response of some CD8+ T cells to foreign antigen. European Journal of Immunology. 32 (11), 3161-3170 (2002).
- Ljunggren, H. G., et al. Empty MHC class I molecules come out in the cold. Nature. 346 (6283), 476-480 (1990).
- Kotsiou, E., Brzostek, J., Gould, K. G. Properties and applications of single-chain major histocompatibility complex class I molecules. Antioxidants & Redox Signaling. 15 (3), 645-655 (2011).
- Hansen, T. H., Connolly, J. M., Gould, K. G., Fremont, D. H. Basic and translational applications of engineered MHC class I proteins. Trends in Immunology. 31 (10), 363-369 (2010).
- Yu, Y. Y., Netuschil, N., Lybarger, L., Connolly, J. M., Hansen, T. H. Cutting edge: single-chain trimers of MHC class I molecules form stable structures that potently stimulate antigen-specific T cells and B cells. Journal of Immunology. 168 (7), Baltimore, Md. 3145-3149 (2002).
- Mitaksov, V., et al. Structural engineering of pMHC reagents for T cell vaccines and diagnostics. Chemistry & Biology. 14 (8), 909-922 (2007).
- Truscott, S. M., et al. Disulfide bond engineering to trap peptides in the MHC class I binding groove. Journal of Immunology. 178 (10), Baltimore, Md. 6280-6289 (2007).
- Truscott, S. M., et al. Human major histocompatibility complex (MHC) class I molecules with disulfide traps secure disease-related antigenic peptides and exclude competitor peptides. The Journal of Biological Chemistry. 283 (12), 7480-7490 (2008).
- Bertoletti, A., Ferrari, C. Innate and adaptive immune responses in chronic hepatitis B virus infections: towards restoration of immune control of viral infection. Postgraduate Medical Journal. 89 (1051), 294-304 (2013).
- Boni, C., et al. Characterization of hepatitis B virus (HBV)-specific T-cell dysfunction in chronic HBV infection. Journal of Virology. 81 (8), 4215-4225 (2007).
- Gehring, A. J., et al. Engineering virus-specific T cells that target HBV infected hepatocytes and hepatocellular carcinoma cell lines. Journal of Hepatology. 55 (1), 103-110 (2011).
- Gehring, A. J., et al. The level of viral antigen presented by hepatocytes influences CD8 T-cell function. Journal of Virology. 81 (6), 2940-2949 (2007).
- Bertoni, R., et al. Human histocompatibility leukocyte antigen-binding supermotifs predict broadly cross-reactive cytotoxic T lymphocyte responses in patients with acute hepatitis. The Journal of Clinical Investigation. 100 (3), 503-513 (1997).
- Goulder, P. J., et al. Patterns of immunodominance in HIV-1-specific cytotoxic T lymphocyte responses in two human histocompatibility leukocyte antigens (HLA)-identical siblings with HLA-A*0201 are influenced by epitope mutation. The Journal of Experimental Medicine. 185 (8), 1423-1433 (1997).
- Sastry, K. S., et al. Targeting hepatitis B virus-infected cells with a T-cell receptor-like antibody. Journal of Virology. 85 (5), 1935-1942 (2011).
- vanden Berg, H. A., et al. Cellular-level versus receptor-level response threshold hierarchies in T-cell activation. Frontiers in Immunology. 4, 250(2013).
- Moots, R. J., Matsui, M., Pazmany, L., McMichael, A. J., Frelinger, J. A. A cluster of mutations in HLA-A2 alpha 2 helix abolishes peptide recognition by T cells. Immunogenetics. 34 (3), 141-148 (1991).
- Crites, T. J., Chen, L., Varma, R. A TIRF microscopy technique for real-time, simultaneous imaging of the TCR and its associated signaling proteins. Journal of Visualized Experiments. (61), (2012).
- Axmann, M., Schutz, G. J., Huppa, J. B. Single Molecule Fluorescence Microscopy on Planar Supported Bilayers. Journal of Visualized Experiments. (105), e53158(2015).
- Mariati,, Koh, E. Y., Yeo, J. H., Ho, S. C., Yang, Y. Toward stable gene expression in CHO cells. Bioengineered. 5 (5), 340-345 (2014).
- Matsushita, S., Tanaka, Y., Matsuoka, T., Nakashima, T. Clonal expansion of freshly isolated CD4T cells by randomized peptides and identification of peptide ligands using combinatorial peptide libraries. European Journal of Immunology. 31 (8), 2395-2402 (2001).
- Heng, B. C., Cowan, C. M., Basu, S. Comparison of enzymatic and non-enzymatic means of dissociating adherent monolayers of mesenchymal stem cells. Biological Procedures Online. 11, 161-169 (2009).
- Smith, K., et al. Sensory adaptation in naive peripheral CD4 T cells. The Journal of Experimental Medicine. 194 (9), 1253-1261 (2001).
- Wei, M. L., Cresswell, P. HLA-A2 molecules in an antigen-processing mutant cell contain signal sequence-derived peptides. Nature. 356 (6368), 443-446 (1992).
- Vardhana, S., Dustin, M. Supported Planar Bilayers for the Formation of Study of Immunological Synapses and Kinapse. Journal of Visualized Experiments. (19), (2008).
- Bakker, A. H., et al. Conditional MHC class I ligands and peptide exchange technology for the human MHC gene products HLA-A1, -A3, -A11, and -B7. Proceedings of the National Academy of Sciences of the United States of America. 105 (10), 3825-3830 (2008).
- Rhode, P. R., et al. Single-chain MHC class II molecules induce T cell activation and apoptosis. Journal of Immunology. 157 (11), Baltimore, Md. 4885-4891 (1996).
- Crew, M. D., Cannon, M. J., Phanavanh, B., Garcia-Borges, C. N. An HLA-E single chain trimer inhibits human NK cell reactivity towards porcine cells. Molecular Immunology. 42 (10), 1205-1214 (2005).
- Van Kaer, L., Wu, L., Joyce, S. Mechanisms and Consequences of Antigen Presentation by CD1. Trends in Immunology. 37 (11), 738-754 (2016).
- Im, J. S., et al. Direct measurement of antigen binding properties of CD1 proteins using fluorescent lipid probes. The Journal of Biological Chemistry. 279 (1), 299-310 (2004).
Reimpresiones y permisos
