Aquí se presenta un protocolo para utilizar el sistema CRISPR-Cas9 para reducir la producción de una proteína en el cerebro adulto de abeja sellos para probar la especificidad de anticuerpos.
Artículo de método
Pruebas de anticuerpos anti-RDL y anti-mGlutR1 en secciones de cerebro de abeja con CRISPR-Cas9
* These authors contributed equally
En este artículo
Resumen
Resumen
Cluster Regularly Interspaced Short Palindromic Repeats (CRISPR)/CRISPR-associated protein 9 (Cas9) es una técnica de edición genética ampliamente utilizada en estudios de la función génica. Utilizamos este método en este estudio para comprobar la especificidad de los anticuerpos desarrollados contra el insecto GABAA subunidad receptor Resistencia a la dieldrina (RDL) y un receptor de glutamato metabotrópico mGlutR1 (mGluRA). Los anticuerpos se generaron en conejos contra los péptidos conjugados específicos de las moscas de la fruta (Drosophila melanogaster) así como a las abejas melíferas (Apis mellifera). Usamos estos anticuerpos en secciones del cerebro de abeja sellos para estudiar la distribución de los receptores en cerebros de abejas. Los anticuerpos fueron purificados con afinidad contra el péptido y probados con inmunoblotting y el método clásico de preadsorción con conjugados de péptidos para mostrar que los anticuerpos son específicos de los conjugados de péptidos correspondientes contra los que fueron criados. Aquí desarrollamos la técnica CRISPR-Cas9 para probar la reducción de dianas proteicas en el cerebro 48 h después de la inyección CRISPR-Cas9 con ARN guía diseñados para el receptor correspondiente. El método CRISPR-Cas9 también se puede utilizar en análisis de comportamiento en las abejas adultas cuando uno o varios genes necesitan ser modificados.
Introducción
El sistema CRISPR/Cas9 recientemente descubierto es una poderosa herramienta que se ha utilizado para alterar el ADN genómico en varios sistemas y organismos modelo. Ha acelerado la investigación biomédica y los grandes avances tecnológicos al hacer que la modificación del genoma sea más eficiente y robusta que los métodos anteriores1. Nativo de las bacterias S. pyogenes, el sistema se basa en una endonucleasa Cas9, cuya actividad conduce a roturas de doble cadena (DSB) en el ADN, y un ARN guía (gRNA) que dirige la proteína Cas9 a una ubicación específica, dependiente de la secuencia2. Los descansos de doble cadena generados por CRISPR/Cas9 se pueden reparar a través de unión final no homóloga (NHEJ), un proceso propenso a errores que puede conducir a cambios de marcos o reparación directa de homología cuando hay una plantilla de donante presente. El propio ARNm consiste en un ARN CRISPR (CRRNA) específico de cada objetivo y un crRNA universal transactivador (tracrRNA) que puede sintetizarse químicamente y administrarse con nucleasa Cas9 purificada como complejo ribonucleoico (RNP)2,3. El etiquetado fluorescente del ARNm o de la nucleasa Cas9 puede permitir la detección y visualización intracelular de componentes moleculares mediante microscopía fluorescente4.
En nuestro trabajo actual, aprovechamos el sistema CRISPR-Cas9 para reducir los niveles de proteínas en cerebros adultos de abejas. Estudiamos los anticuerpos receptores metabotrópicos (mGluR) y anti-mGlutR1 y la subunidadreceptora GABA A RDL y anticuerpos anti-RDL. Desarrollamos un método sencillo para reducir la cantidad de proteína en el cerebro de la abeja adulta y la utilizamos para impulsar pruebas adicionales de los anticuerpos desarrollados contra las proteínas correspondientes. El seguimiento de la fluorescencia de CRISPR-Cas9 nos permitió estimar las áreas y células implicadas en la reducción de la proteína.
Usando este método, también caracterizamos los anticuerpos anti-mGlutR1 que se hicieron en conejos contra el péptido conjugado. El genoma de abejas codifica un AmGluRA altamente conservado (llamado mGlutR1 según la nomenclatura NCBI) receptor de glutamato metabotrópico5. El gen mGlutR1 de abeja tiene cuatro variantes de empalme predichas según la base de datos NCBI. Se ha informado que se expresa en el sistema nervioso central (SNC) de las etapas de abejas pupal y adulto y está involucrado en la formación de la memoria a largo plazo5. Los anticuerpos desarrollados contra mGlutR1 pueden ser una herramienta esencial para el estudio del sistema glutamatérgico en el proceso de aprendizaje y memoria en las abejas melíferas.
En nuestros estudios, también caracterizamos anticuerpos anti-RDL desarrollados en conejos inmunizados con péptidos conjugados de la subunidad receptora Aps mellifera RDL. El gen Honeybee Rdl, AmRdl (XM_006565102.3, base de datos NCBI), tiene 14 variantes de empalme pronosticadas. Se ha notificado un fragmento parcialmente clonado en la base de datos NCBI AF094822.1. La función receptora RDL y su fisiología está bien estudiada en insectos6,7,8,incluyendo abejas melísas9,10,11. Los anticuerpos desarrollados contra el anti-RDL pueden ser una herramienta esencial para estudiar el sistema GABAérgico en el proceso de aprendizaje y memoria en las abejas melíferas.
Un estudio anterior sobre el papel de los receptores de octopamina y tiramina utilizado RNAi inyectado en el cerebro con una prueba posterior de la cantidad de proteína por Western blot12,13. Sin embargo, el ARNI tiene algunas limitaciones significativas. Sólo hay una breve ventana de tiempo después de la inyección de ARNi dentro de la cual se produce una reducción de la proteína13. CRISPR-Cas9 se utilizó muy recientemente en embriones de abeja sellos para eliminar o modificar genes en todo el animal14,15,16. Informamos del uso de CRISPR-Cas9 para reducir la cantidad de proteína en la abeja adulta. Desarrollamos este enfoque para las abejas melíferas debido a la capacidad de acoplarlo a estudios conductuales de aprendizaje y memoria bajo condiciones de laboratorio controladas17.
En el presente trabajo, desarrollamos anticuerpos contra dos receptores y los probamos en las secciones adultas del cerebro de abeja después de que la proteína se redujera mediante la inyección CRISPR-Cas9. Al mismo tiempo, establecimos un diseño experimental que permite el uso del método para experimentos conductuales.
Protocolo
El protocolo descrito aquí sigue las pautas de cuidado animal de la Universidad Estatal de Arizona.
1. Aislamiento total de proteínas de Brains of Apis mellifera
NOTA: Utilice Apis mellifera New World Carniolan foragers de edad desconocida para este experimento.
- Coloque una pantalla de malla de aluminio sobre la entrada a la colmena para capturar las abejas más forrajeras17. Capturar cada abeja en un vial con un pequeño agujero en cada tapa. Coloque los viales que contienen las abejas en hielo para bajar su temperatura corporal e inmovilizarlas. Deje las abejas en hielo durante no más de 3 minutos.
- Asegure las abejas inmovilizadas en soportes metálicos previamente preparados. Asegúrese de que los soportes metálicos estén construidos para que la abeja pueda ser asegurada con pequeños trozos de cinta adhesiva, pero todavía tienen su tórax posterior, alas y cabeza expuestas.
ADVERTENCIA: Asegúrese de que las abejas estén completamente inmovilizadas antes de intentar colocarlas en los soportes. - Alimente a las abejas con una solución de sacarosa de 1 M utilizando una jeringa de 5 ml hasta que ya no tengan hambre. Coloque las abejas aseguradas en una caja con una toalla de papel húmeda para garantizar un ambiente húmedo.
- Disecciona el cerebro de la abeja rápidamente cortando la cabeza con tijeras Barraquer Iris (ver Tabla de Materiales)y usa las tijeras para abrir la cabeza desde el frente.
- Cortar el cerebro de la cápsula de la cabeza, tomar el cerebro con #5 fórceps, y colocarlo en 100 s de tampón de lisis fría (4-8 oC). El tampón de lisis consta de 120 mM Tris-HCl, 2% de dodecilo sulto sódico (SDS), 5% glicerol, 0,2 mM ditiothreitol, 1% Triton X-100 y 1-5 g/ml de los inhibidores de la proteasa PMSF (fenimetilsulfonilfluoruro), aprotinina, benzamidina (pH 6,8) a 4oC. Homogeneizar el cerebro en la solución de lisis girando en un pestillo durante aproximadamente 2 min.
- Centrifugar la muestra a 12.000 x g durante 20 min. Aspirar 90 sL del sobrenadante y desechar el pellet.
- Tomar 1 l del sobrenadante para cuantificar la proteína total utilizando un fluorímetro. La concentración aproximada de la proteína total fue de entre 2-3 mg/ml por abeja. Tomar 10 l del sobrenadante y añadir 10 l del tampón de lisis y 10 l de un tampón de Laemmli 6x18. Gire brevemente y hierva durante 3 minutos, luego enfríe sobre hielo. Gire durante 1 min a 10.000 x g para eliminar todos los residuos. Una décima parte de un cerebro de abeja contiene aproximadamente 25 ng de proteína total.
2. Western Blotting19
- Hacer 30 ml de 10% de gel de carrera que contenga 12,15 ml de agua destilada ultrapura, 7,5 ml de 1,5 M Tris-HCl (pH 8,8), 0,3 mL de 10% SDS, 10 ml de solución de acrilamida-bis acrilamida al 30%, 0,15 ml de persulfato de amonio al 10% (APS) y 20 l de tetrametiletilediamina (TEMED ).
- Lanzar el gel entre dos placas de vidrio separadas por espaciadores.
- Hacer un gel apilante de 20 ml que contenga 12,1 ml de agua destilada ultrapura, 5,0 ml de Tris-HCl de 0,5 M (pH 6,8), 0,2 ml de 10% de SDS, 2,6 ml de acrilamida acrilamida, 0,1 ml de 10% APS y 20 ml de TEMED.
- Cuando el gel de carrera se solidifica verter un gel de apilamiento. Agregue con cuidado el separador de plástico para lanzar el carril de carga, evitando burbujas. Espere 15-30 min, hasta que el gel se solidifique.
- Comience a cargar el gel utilizando 5 s l de estándares proteicos. Cargar 20 ml de la mezcla de lisado a partir del paso 1.8 por carril, correspondiente a 1/15 de un cerebro de abeja o 16 ng de proteína total por carril. Ejecuta las muestras para un total de 3,5-4 h a 16 mA en el gel de apilamiento y 32 mA en el gel de carrera. Deténgase cuando el tinte deje el gel.
- Transfiera las proteínas a membranas de nitrocelulosa en tampón de transferencia (25 mM Tris-HCl, 192 mM de glicina, 15% de metanol) a 0,45 mA durante 1 h 30 min a 4 oC.
- Para evaluar la eficiencia de la transferencia de proteínas después de SDS-PAGE antes de inmunoblotting, agregue la solución de tinción Ponceau S (añadir 0,1 g de Ponceau S y 5 ml de ácido acético al agua a un volumen final de 100 ml). Conservar a 4oC durante 1 min y enjuagar rápidamente con agua destilada.
- Etiquete cada carril con un bolígrafo, corte la membrana que contiene dos carriles con homogeneato cerebral y un carril con marcador de proteína y coloque cada uno en una caja de incubación de la mancha occidental. Lavar 3 veces durante 5 min cada uno en solución salina tamponada de fosfato (PBS) que contiene 0.1% Tween 20 (PBS-Tw).
- Bloquear la membrana con 10% NGS (1 ml de suero de cabra normal a 10 ml de PBS-Tw) en una caja de incubación de la mancha occidental durante 1 h. Hacer una dilución anti-mGlutR1 (5 l de anticuerpo en 10 ml de 10% NGS). Hacer diluciones anti-RDL1 y anti-RDL2 (5 l de anticuerpos en 10 ml de 10% NGS cada una). Sustituya la solución de bloqueo en cada caja por los anticuerpos diluidos y déjela durante la noche (16-24 h) a 4oC.
- Lavar la membrana 3x durante 5 min cada uno en PBS-Tw. Incubar la membrana con anticuerpos secundarios conjugados con conjugados con pre-conejo IgG HRP a 1:10,000 en 10% NGS PBS-Tw para 2 h a temperatura ambiente (RT). Lavar las membranas 3x en PBS-Tw, luego 1x en PBS.
- Detectar las bandas utilizando sustrato de HRP quimioluminiscente occidental. Mezclar dos sustratos 1:1 (v/v) en RT, poner todas las membranas en la misma caja y cubrirlas con la mezcla de sustrato durante 2 minutos (en una habitación oscura con una luz roja) en RT. Proceder a la detección de proteínas utilizando una película de autoradiografía con varios tiempos de exposición. Por lo general, un anticuerpo se prueba en una membrana que contiene la misma dilución de homogeneizado cerebral en dos o tres carriles y un carril con el marcador de peso.
3. Procedimientos inmunocitoquímicos
- Para diseccionar cerebros de abejas melíceas para inmunocitoquímica, inmovilice a las abejas melísores en el hielo durante 30 s. Después de que las abejas sean inmovilizadas, desdigitaliza la abeja con tijeras y coloca la cabeza en una solución de 4% de paraformaldehído en PBS. Trabaje bajo la campana de humos.
ADVERTENCIA: El cuerpo debe ser cuidadosamente desechado porque el abdomen todavía puede picar después de la decapitación. - Retire con cuidado pero rápidamente las antenas, los ojos compuestos y corte todo el exoesqueleto superior con tijeras Barraquer Iris. Deje que las cabezas se sentén en la solución fijativa durante 10 min. Retire el resto del exoesqueleto de la cabeza y corte todas las tráqueas restantes.
- Coloque cada cerebro en un tubo de microcentrífuga de 1,5 ml que contenga al menos 1 ml de solución de paraformaldehído al 4% y déjelo durante la noche a 4-8 oC.
- Hacer una solución de agarosa del 7,6% mezclando 3,8 g de agarosa y 50 ml de agua destilada en un matraz Erlenmeyer. Microondas la solución hasta que la agarosa se licua.
NOTA: Se puede colocar un pequeño trozo de papel tisú en la abertura del matraz para evitar que la solución de agarosa se desborde durante el calentamiento. - Coloque los cerebros fijos de abeja (3-4 cerebros) en una placa Petri de 35 mm y retire el exceso de fijador con papel tisú. Vierta la solución de agarosa líquida sobre los cerebros. Orientar los cerebros en la agarosa para que los lóbulos de la antena estén mirando hacia arriba. Deje que la agarosa se enfríe y solidifique.
- Después de que la agarosa se haya solidificado, corte bloques de agarosa cada uno que contenga un cerebro.
- Para el seccionamiento del vibratome, prepare una placa de 24 pocillos con cada pocto que contenga una cesta con una malla hidrófoba en la parte inferior. Llene cada pozo con 600 s de PBS.
- Corte cada bloque en secciones transversales de 70 m con la máquina de vibratome y coloque las secciones en la cesta que contiene PBS.
NOTA: Asegúrese de que las secciones del mismo cerebro se colocan en la misma cesta. - Lave las secciones cerebrales 6x durante 10 min cada una con PBS-TX para asegurarse de que no quede ningún fijador en las secciones. Coloque la placa multipozo en un agitador orbital y lave los cerebros a 210 rpm. Antes de cada lavado, asegúrese de reemplazar la solución PBS-TX por una solución nueva de PBS-TX. Bloquear con 1% de suero de burro normal durante el último lavado.
- Para probar el anticuerpo primario anti-mGlutR1, prepare una dilución 1:112 de anticuerpos anti-mGlutR1 añadiendo 9 ml de PBS-TX a 80 l de anticuerpos anti-mGlutR1 en un tubo centrífugo de 15 ml. Vortex el tubo brevemente para mezclar a fondo. La dilución de trabajo de los anticuerpos se determinó en experimentos preliminares.
- Para probar el anticuerpo primario anti-RDL, prepare una dilución 1:100 de anticuerpos anti-RDL añadiendo 30 ml de péptido anti-RDL 1, 30 l de péptido anti-RDL 2 y 6 ml de PBS-TX en un tubo de centrífuga de 15 ml. Vortex el tubo brevemente para mezclar a fondo. La dilución de trabajo de los anticuerpos se determinó en experimentos preliminares.
- Añadir 800 l de solución de anticuerpos a cada pocal de la placa. Cubra la placa multipocilla y envuélvala en papel de aluminio para evitar la degradación de la exposición a la luz. Coloque la placa envuelta en papel de aluminio en un agitador orbital y agite a 210 rpm durante 2 h. A continuación, dejar pasar la noche en RT sin temblar.
- Después de que las secciones cerebrales se hayan dejado durante la noche, lavar con PBS-TX durante 10 min. Repita el paso de lavado 6x.
- Preparar los anticuerpos secundarios (anticonejo del burro) haciendo una dilución 1:225 de anticuerpos secundarios añadiendo 40 l de anticuerpos secundarios a 9 ml de PBS-TX.
- Añadir 800 l de la dilución secundaria de anticuerpos a cada poca. Cubra la placa y envuélvala en papel de aluminio. Coloque la placa envuelta en papel de aluminio en el agitador orbital y agite a 210 rpm durante 2 h. Entonces déjalo durante la noche en RT.
- Lave las secciones cerebrales 3x durante 10 min cada una con PBS-TX y 3x con solución regular de PBS.
- Para incrustar las secciones en las diapositivas, prepare la solución de incrustación de medios de montaje/glicerol modificada de Rodriguez et al.20. Añadir 5 g del medio de montaje en 20 ml de PBS y remover durante 16 h con un agitador magnético. Añadir 10 ml de glicerol y remover durante otras 16 h con un agitador magnético. Centrífuga durante 15 min a 4.000 x g,tome el sobrenadante homogéneo líquido y la alícuota en tubos de 1 ml. Mantener a -20 oC
- Incruste las secciones en las diapositivas con una gota del medio de montaje preparado en el paso 3.17, asegurándose de que cada diapositiva contenga secciones de un cerebro.
- Control de preadsorción de inmunomancha con péptidos conjugados
- Para péptidos anti-RDL y conjugados, incubar la dilución de trabajo de anticuerpos anti-RDL con el correspondiente péptido conjugado durante la noche en RT en la coctelera: condición 1) 500 g péptido conjugado con Keyhole Limpet Hemocyanin (KLH) a través de glutaraldehído; condición 2) sin ningún conjugado.
- Centrifugar cada mezcla durante 10 min a 10.000 x g y recoger el sobrenadante de ambas condiciones (paso 3.19.1).
- Incubar las secciones seriales del cerebro de abeja con cada sobrenadante y procesar con los anticuerpos secundarios descritos anteriormente. Las secciones en serie son secciones que se siguen entre sí durante los procedimientos de seccionamiento del vibratome, por lo que la misma parte del cerebro estará expuesta a controles positivos y negativos.
- Para el péptido anti-mGlutR1 y conjugado, incubar la dilución de trabajo de los anticuerpos anti-mGlutR1 en RT con el péptido conjugado KLH que contiene el péptido 10-4 M (condición 1) y sin ningún conjugado (condición 2).
- Centrifugar cada mezcla durante 10 min a 10.000 x g y recoger el sobrenadante de ambos controles.
- Incubar las secciones seriales del cerebro de abeja con sobrenadante tanto de condiciones como de proceso con los anticuerpos secundarios (pasos 3.14-3.15).
- Incruste secciones de ambas condiciones en la diapositiva mediante medios de incrustación (paso 3.17).
4. Prueba de la expresión de proteína RDL y mGlutR1 por Inmunocitoquímica (sección 3) en el cerebro de abeja después de la inyección del sistema CRISPR-Cas9 correspondiente
- Diseñe las guías utilizando una herramienta de diseño en línea CRISPR-Cas921 utilizando las secuencias de ADN genómicas de AmRdl (XM_006565102.3) y las secuencias de mGlutR1 (XM_006566244.3) (Tabla 1). Ordene como Cas9 crRNA y Cas-9 tracrRNA con el tinte fluorescente ATTO550 en el extremo de 5'. Ordene la Cas9 Nuclease V3 (Ver Tabla de Materiales).
- Prepare los componentes para el sistema CRISPR-Cas 9 haciendo un stock de 100 M de cada crRNA guía y tracrRNA utilizando agua libre de nucleasas. Aliquot y almacenar a -20oC. Preparar la concentración de trabajo de la solución de Cas-9 añadiendo 2,5 l de Cas 9 nucleasa V3 (10 mg/ml) a 47,5 ml de tampón libre de nucleótidos para obtener una concentración final de 0,5 g/l. Hacer gRNA y RNP inyectable.
- Preparar la formación compleja de GRNA para cada ARN guía por separado (guideRNA:tracrRNAATTO550)
- Etiquetar un tubo de ensayo con el nombre del gRNA, añadir 92 ml de tampón libre de nucleótidos, 4 l de 100 m CRISPR-Cas9 tracrRNA- 5'ATTO550 y 4 l de la solución de crRNA guía. Mezclar suavemente y girar.
NOTA: Ejemplo de etiquetado de tubos gRNA para RDL: GRDL1, GRDL2, GRDL3 (correspondiente a ARN guía RDL en el Cuadro 1). Ejemplo de etiquetado de tubos de ARNG para mGlutR1: GMGL1, GMGL2, GMGL3 (Tabla 1). - Calentar la solución a 95 oC durante 5 min para crear gRNA. Enfríe la mezcla a RT durante 10 min.
- Etiquetar un tubo de ensayo con el nombre del gRNA, añadir 92 ml de tampón libre de nucleótidos, 4 l de 100 m CRISPR-Cas9 tracrRNA- 5'ATTO550 y 4 l de la solución de crRNA guía. Mezclar suavemente y girar.
- Preparar la formación compleja DeR (gRNA: S.p Cas9Nuclease), mezclas de entrega y control.
- Etiquetar un tubo de ensayo con el nombre del RNP, añadir 6 l de solución de gRNA y 6 l de 0,5 g/L S.p Cas9 Nuclease V3. Mezclar suavemente e incubar las soluciones a 37oC durante 10 min antes de la inyección.
NOTA: Ejemplo de etiquetas de tubo RNP: RRDL1, RRDL2, RRDL3. - Haga una RNPRDLmix. Para preparar la mezcla final utilizada para las inyecciones, añadir 4 l de cada RNP de RDL juntos. Mezcla de RNP/RDL a 4 l de RRDL1 + 4 l de RRDL + 4 l de RRDL3.
- Haga una mezcla RNPmGlutR1mix. Mezclar 4 l de cada RNP de mGlutR1 para preparar la mezcla final utilizada para las inyecciones (RNPmGlutR1mix) a 4 L de RMG1 + 4 L de RMG2 + 4 L de RMG3.
NOTA: Ejemplo de etiquetas de tubo RNP: RMG1, RMG2, RMG3. - Realice una solución de ARN no guía de control mezclando 4 ml de tracrRNA, 92 ml de tampón y 4 l de agua en lugar de ARN guía (ver sección 4.3). Mezclar 6 l de esta solución de noguideRNA y 6 l de 0,5 g/l Cas9 Nuclease V3 (paso 4.4.1) para producir la solución de inyección de control.
- Etiquetar un tubo de ensayo con el nombre del RNP, añadir 6 l de solución de gRNA y 6 l de 0,5 g/L S.p Cas9 Nuclease V3. Mezclar suavemente e incubar las soluciones a 37oC durante 10 min antes de la inyección.
5. Procedimiento de inyección
- Inmovilizar cada abeja como se describe en el paso 1.3 y alimentarlos como en el paso 1.4. A continuación, prepare dos juegos de dos cajas de madera para liberar las abejas después de la inyección: una caja blanca (condición experimental) y una caja negra (control). Cada caja debe contener un peine pequeño y un plato Petri de alimentación. Un lado de cada caja está hecho de vidrio para permitir la observación.
- Hacer la alimentación de los platos Petri. Tome la cubierta de un plato petri de 35 mm, coloque la cera dentro de la superficie y coloque la parte inferior de la placa Petri en la cera. Fije la placa en la caja.
- Con una jeringa de 5 ml, inyecte una solución de sacarosa de 1M entre la cubierta y la parte inferior del plato. Las abejas pueden poner rápidamente sus probóscis entre las dos placas y permanecerán secas durante un período de incubación de 48 horas. Ponga un plato en cada caja.
- Para preparar el sistema de microinyección, llene los capilares con aceite mineral sin burbujas de aire. Coloque los capilares en el soporte del inyector del sistema de microinyección. Para cargar el capilar con la solución de inyección deseada, coloque una película hidrófoba sobre una superficie plana y pipetee la solución sobre ella. Inyectar el aceite de los capilares y reemplazar la mezcla con la mezcla RNP correspondiente.
- Usando el sistema de microinyección, inyectar 345 nL de solución de mezcla RNP directamente en la mediana de ocelli de cada abeja.
- Para la inyección RDL-CRISPR-Cas9, inyecte ocho abejas con el RNPRDLmix preparado como se describe en el paso 4.4.2. Alimentarlos con sacarosa 1M después de la inyección. Suéltalos en la caja blanca (experimental) con el pequeño peine y alimentando la placa Petri durante 48 h. Use otras ocho abejas como controles sin inyecciones, alimentelas y suéltelas en la caja negra (control).
- Para mGlutR1 CRISPR-Cas9, inyectar nueve abejas con el RNPmGlutR1mix preparado como se describe en el paso 4.4.3. Para el control, inyecte ocho abejas con mezcla de ARN sin guía (RNAmix_noguide) preparada como se describe en el paso 4.4.4. Alimentarlos con sacarosa 1M después de la inyección. Libere las abejas de sus soportes en la caja blanca (condición experimental) o la caja negra (control) preparada como se describe en la sección 5.1.
- Coloque las cajas en un recipiente de poliestireno con papel húmedo en el interior para la humedad. Dejar las abejas durante 48 h y observar 2 veces al día para asegurarse de que tienen suficiente comida y buena humedad.
- Diseccionar el cerebro de cada abeja después de 48 h (paso 3.1) y el proceso de inmunocitoquímica como se describe en la sección 3. Para las inmunomanchas anti-mGlutR1 utilice el paso 3.11 y para las inmunomanchas anti-RDL utilice el paso 3.12.
- Realizar imágenes confocales para evaluar el nivel de fluorescencia en las secciones cerebrales teñidas por imágenes inmunitarias.
- Para evaluar la reducción de proteínas en cerebros inmunoetiquetados, utilice la recolección de imágenes confocales al mismo nivel de ganancia tanto para el control como para los cerebros inyectados.
6. Ensayo desplegable basado en qPCR para evaluar el ADN GENico modificado RDL 48 H después de la inyección CRISPR Cas9 RNPRDLmix
- Diseñe las imprimaciones, la sonda de control y la sonda de entrega para evaluar la cantidad de ADN modificada por la inyección CRISPR-Cas9. Cada imprimación está diseñada para que flanquee al menos una guía CRISPR-Cas 9 y el tamaño del amplificador sea de 132 bp. Las imprimaciones y sondas utilizadas se indican a continuación:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: CAACGAGGCGAACACCAT
RDL1_control_probe: /5HEX/CGA+C+G+TTT+A+C+CT/3IABkfQ/
RDL1_Drop-off_probe: /56-FAM/CCTA+C+C+G+T+CA+A+GT/3IABkfQ/- Asegúrese de que las imprimaciones corresponden a secuencias únicas específicas del área. Asegúrese de que la sonda de entrega esté diseñada para el área que se superpone con la guía RDL-CRISPR-Cas9.
- Para comprobar si hay una modificación del ADNG en el área guía, inyectar 12 abejas en el ocelli con la mezcla de RNP_RDL descrita en el paso 5.3.1 y utilizar ocho abejas no inyectadas como controles.
- Diseccionar los cerebros de las abejas sin los lóbulos ópticos 48 h después de las inyecciones y extraer el ADN gde cada cerebro de abeja inyectado y controlar los cerebros de las abejas (sin lóbulos ópticos) utilizando el kit siguiendo el protocolo del fabricante (ver Tabla de Materiales).
- Evaluar la cantidad, calidad y pureza del ADNado extraído utilizando un espectrofotómetro.
- Cuantifique la expresión relativa del ADNr modificado de AmRDL utilizando el protocolo de entrega basado en qPCR y el ciclor de PCR en tiempo real.
- Resuspenda los oligos a 100 oM, diluya las imprimaciones a 10 oM y las sondas a 5 m.
- Configure la reacción de PCR en la placa de 96 pocillos, como se muestra aquí para una muestra de GDNA (3 repeticiones): 10 l de mezcla maestra (ver Tabla de materiales),1 l de imprimación delantera, 1 l de imprimación inversa, 1 l de sonda de control, 1 l de sonda de entrega, 2 l de GDNA (50 ng), 4 l de agua libre de nucleasas para llevar el volumen de reacción final a 20 l.
NOTA: Los controles son la solución en lugar de las muestras y el agua en lugar de las sondas. - Configure el programa de ciclismo de la siguiente manera para un ciclor de PCR en tiempo real: 95 oC durante 3 min seguido de 40 ciclos de 95 oC para 15 s, 60 oC durante 1 min.
- Evaluar la modificación relativa del gen utilizando el método de 2-Ct, donde
 Y

7. Cuantificación relativa del ARN RDL 48 H después de la inyección de RNPRDLmix
- Para probar si hay una reducción del ARNm RDL, inyectar 20 abejas en el ocelli con RNP_RDL mezcla como se describe en el paso 5.3.1 y utilizar 12 abejas no inyectadas como controles. Diseccionar los cerebros de las abejas (sin lóbulos ópticos) 48 h después de las inyecciones, extraer el ARNm total de cada abeja inyectada, y separar utilizando el protocolo del fabricante (ver Tabla de Materiales).
- Retire cualquier residuo de ADN que quede en la muestra utilizando un kit libre de ADN (ver Tabla de Materiales).
- Evaluar la calidad y la pureza del ARN extraído utilizando un espectrofotómetro.
- Cuantifique la expresión de AmRDL utilizando un kit RT-PCR verde fluorescente disponible comercialmente(Tabla de materiales)en un ciclor de PCR en tiempo real utilizando el protocolo del fabricante para una placa de pozo 384.
NOTA: En este experimento, se utilizaron imprimaciones publicadas anteriormente. Para AmRDL (AmRDL_F GGTCGATGGGCTACTACCTG; AmRDL_R TCGATCGACTTGACGTAGGA)22 y cebantes de actina como gen de referencia [AmActin_F TGCCAACACTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]23. La expresión génica relativa se calculó utilizando el método 2- -Ct (paso 6.6).
8. Ensayo de entrega basado en qPCR para evaluar el ADN genómico modificado 48 H después de la inyección de RNPmGlutR1mix
- Diseñe las sondas de imprimación, control y entrega para evaluar la cantidad de ADN modificada por la inyección CRISPR-Cas9. Diseñe las imprimaciones para que flanqueen al menos una guía CRISPR-Cas 9 y el tamaño del amplificador sea de 96 bp.
mGlutR1_For: GGTGAAACGAACGACGGA
AmGlurR1_Rev: GGAGAGAGGGAGCGAGAA
AmGlurR1_control_probe: /5HEX/CGAGG+G+AAA+CGA+GT/3IABkfQ/
AmGlurR1_Drop-off_probe: /56-FAM/CGA+C+A+C+CG+TC/3IABkfQ/
NOTA: Asegúrese de que las imprimaciones corresponden a secuencias únicas específicas del área que se deben haber modificado. La sonda de entrega está diseñada para el área que se superpuso con la guía CRISPR-Cas9. - Para probar si hay una modificación del ADNG en el área guía, inyectar 12 abejas en el ocelli con RNP_ mezcla GlutR1 como se describe en el paso 5.3.1 y utilizar ocho abejas no inyectadas como controles.
- Diseccionar los cerebros de las abejas (sin lóbulos ópticos) 48 h después de las inyecciones y extraer el ADN GDNA de cada cerebro de abeja inyectado y controlar (sin lóbulos ópticos) utilizando el protocolo del fabricante (ver Tabla de Materiales).
- Evaluar la cantidad, calidad y pureza del ADNado extraído utilizando un espectrofotómetro.
- Cuantifique la modificación relativa de gDNA AmGlutR1 utilizando el protocolo de entrega qPCR y para el ciclor de PCR en tiempo real como se describe en el paso 6.5.
- Evaluar la modificación relativa del gen utilizando el método de 2-Ct, donde
 Y

9. Cuantificación del ARN mGlutR1 48 h Después de la inyección de RNPmGlutR1mix
- Para probar si hay una reducción en el ARNm de ARN mGlutR1, inyectar seis abejas en el ocelli con la mezcla de RNP_RDL como se describe en el paso 5.3.2 y utilizar seis abejas no inyectadas como controles. Diseccionar los cerebros de las abejas (sin lóbulos ópticos) 48 h después de las inyecciones, extraer el ARNm total de cada abeja inyectada, y separar utilizando el protocolo del fabricante para el aislamiento de ARN (ver Tabla de Materiales).
- Retire cualquier residuo de ADN que quede en la muestra utilizando un kit libre de ADN (ver Tabla de Materiales).
- Evaluar la calidad y la pureza del ARN extraído utilizando un espectrofotómetro.
- Cuantifique la expresión de mGlutR1 utilizando un kit RT-PCR verde SYBR (ver Tabla de materiales)en un ciclor de PCR en tiempo real con el protocolo proporcionado para el kit de pozos 384. Utilice los siguientes imprimadores para mGlutR1 (mGlut_F CCTCCTCAACECTCCTTCATA; mGlut_R TGCCGTTGTTCCGATTT) y imprimaciones de actina como gen de referencia [AmActin_F TGCCAACACTGTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]. Calcule la expresión génica relativa utilizando el método 2--Ct (paso 8.6).
Resultados
Pruebas de anticuerpos anti-RDL
Los anticuerpos se produjeron contra los conjugados de péptido RDL como se muestra en la Figura 1A. El primer paso para caracterizar los anticuerpos anti-RDL es comprobar el homogeneizado de la proteína extraída del cerebro de las abejas utilizando una mancha occidental con anticuerpos anti-RDL y un anticuerpo secundario IgG de cabra con etiqueta HRP(Figura 1A, insertar). Ambos anticuerpos anti-RDL reconocieron la banda situada en 50-60 kD (flecha), correspondiente al peso estimado de las proteínas isoformes de la subunidad RDL. Para demostrar que los anticuerpos anti-RDL reconocieron el péptido en las rebanadas cerebrales, utilizamos un control de preadsorción(Figura 1B,C). Cuando los anticuerpos fueron preincubados con péptidos conjugados, la tinción en la sección estaba ausente. Esto demostró que los anticuerpos anti-RDL reconocieron el péptido conjugado contra el que se plantearon. Para demostrar que los anticuerpos anti-RDL reconocen la proteína en el tejido cerebral fijo, utilizamos CRISPR-Cas9 para eliminar el gen RDL que produce la proteína RDL en las células. Figura 1D1-3, muestra secciones del cerebro de abeja frontal de control que fueron etiquetadas con anticuerpos anti-RDL. Esta abeja no se inyectó con RDL-CRISPR-Cas9 RNP. En la Figura 1D1,las etiquetas anti-RDL se neuropils en la sección frontal del cerebro de las abejas. La misma sección frontal de la Figura 1D2 muestra la ausencia de fluorescencia de ATTO550, porque el complejo RDL-CRISPR-Cas9 no se inyectó.
La Figura 1E1-E3 muestra una sección cerebral de una abeja inyectada con RDL-CRISPR-Cas 9 y luego procesada con la misma cantidad de anticuerpos que el cerebro de control en la Figura 1D1-D3. La tinción anti-RDL se redujo significativamente en todo el cerebro 48 h después de la inyección, y la distribución de la tinción ATTO550 en el cerebro (Figura 1E2) muestra el éxito de las inyecciones de RDL-CRISPR-Cas 9 en la mediana de la abeja ocelli. Las múltiples células dispersas del cerebro exhiben ATTO550. La inyección exitosa de RDL-CRISPR-Cas 9 redujo la expresión proteica en comparación con el control(Figura 1E1-3). A partir de ocho cerebros de abejas inmunomanchados, sólo un cerebro tenía un alto nivel de distribución del RDL-CRISPR-Cas9 en las células del cuerpo de la seta, protocerebrum y lóbulo antenal, mientras que otros cerebros tenían tinción celular con ATTO550 en el cáliz del cuerpo de setas, complejo central, pero no lóbulo antenal. Es importante tener en cuenta que en estas abejas, la inmunomancha anti-RDL de reducción no fue tan dramática como en el cerebro se muestra en la Figura 1E1.
A continuación, para estimar el nivel del ADNr RDL modificado en las abejas 48 h después de la inyección de RDL-CRISPR-Cas9, realizamos una prueba de entrega qPCR, donde la sonda de entrega fue diseñada para que coincida con el área de uno de los RDL gRNAs. En estos experimentos, en los cerebros de abeja inyectados con RDL-CRISPR-Cas 9, la reducción relativa de la fluorescencia correspondió al número de GDNA modificado en las muestras. En nuestras pruebas, el área correspondiente a esta guía en ADN a gDNA en 12 abejas inyectadas con RDL-CRISPR-Cas9 fue del 64 % (media de 30 % SD) en comparación con el ADNente en las abejas no inyectadas(Figura 3A).
A continuación, para estimar el nivel del ARN RDL en las abejas 48 h después de la inyección, realizamos qRT-PCR en un grupo separado de abejas(Figura 3B). Comparamos el nivel de ARN RDL de las abejas inyectadas RDL-CRISPR-Cas 9 (n a 19) con el nivel de ARN en las abejas que no se inyectaron (n x 12). En estos experimentos, la reducción relativa del ARNm RDL fue del 59% (media de 15% SE) en comparación con el nivel de ARN en las abejas no inyectadas. Cuando examinamos el nivel de ARN RDL en cada abeja individualmente, sólo 13 abejas de 19 abejas mostraron una reducción significativa del ARN. Estos datos indican que la inyección de RDL-CRISPR-Cas9 a través del ocelli podría no llegar siempre a un gran número de células cerebrales, lo que confirma los datos con las abejas inyectadas RDL-CRISPR-Cas9 teñidas por imágenes inmunitarias. En estas preparaciones, sólo una abeja de 8 tenía RDL CRISP-Cas9 en muchas células cerebrales (cuerpo de setas, protocerebrum y lóbulo de antena) en comparación con otros cerebros de abejas, donde la distribución del RDL-CRISPR-Cas9 se concentró en células en el protocerebrum (cáliz corporal de setas y complejo central) pero no en el lóbulo antenal(Figura 4A-D).
Pruebas de anticuerpos antimGlutR1
Utilizamos los anticuerpos anti-mGlutR1 producidos en conejo contra péptidos conjugados específicos de Drosophila melanogaster (Figura 2A). La secuencia de este péptido muestra una identidad del 94% con el péptido de abeja (CLSDKTRFDYFARTVPPD) Figura 2A. Primero, revisamos los anticuerpos contra la proteína del cerebro de abeja usando inmunoblotting. El homogeneato cerebral de abeja fue separado por un 10% de SDS-PAGE y transferido electroforóticamente de una membrana de nitrocelulosa y manchado con anti-mGlutR1. La plaquita de la Figura 2A muestra dos bandas con pesos estimados (103 y 83 kD) correspondientes a dos isoformas. Cuando probamos este anticuerpo en cerebros de abejas, encontramos que etiquetan perfiles neuropilares y células en las secciones del cerebro de abeja como se ilustra en la Figura 2B, D. Después de la preadsorción del anticuerpo anti-mGlutR1 con péptido conjugado-mGlutR1, la tinción específica desapareció en la rebanada del cerebro de la abeja(Figura 2C). Esto confirma que los anticuerpos anti-mGlutR1 reconocen el péptido(Figura 2C). A continuación, inyectamos una mezcla de mGlutR1-CRISPR-Cas9 en la mediana de ocelli y usamos el noguideRNA de control. En las abejas de control (n.o 7), la fluorescencia de ATTO550 no se concentró en las células. Algunos cerebros tenían etiquetado ATTO550 de fluorescencia dispersa. Por lo tanto, la preparación de control en la Figura 2D1-3 muestra la tinción anti-mGlutR1 en el cerebro, pero no la fluorescencia ATTO550. Cuando mGlutR1-CRISPR-Cas9 fue inyectado en el ocelli y tomado por muchas células, el nivel de fluorescencia de los anticuerpos secundarios se redujo significativamente en el área que toma el mGlutR1RNP funcional(Figura 2E1-3). Las abejas fueron monitoreadas durante 48 horas, y una abeja de cada condición experimental fue encontrada muerta. Así, en este experimento, comprobamos siete abejas de control y ocho abejas CRISPR-Cas9. Todas las abejas inyectadas con CRISPR-Cas9 tenían células que tomaban mGlutR1-CRISPR-Cas9. La mayoría de estas células estaban en el cuerpo del hongo cáliz, complejo central, y protocerebrum posterior. Sólo dos abejas de siete mostraron etiquetado ATTO550 en muchas células en el cuerpo de la seta, complejo central, y el lóbulo antenal. Un ejemplo de una de estas abejas se muestra en la Figura 2E. La reducción del nivel de tinción mGlutR1 en estos preparados fue significativa. Las otras cinco abejas tienen el etiquetado ATTO550 correspondiente a la entrega exitosa del mGlutR1 CRISPR-Cas9 en el cuerpo de la seta y el protocerebrum posterior, pero no en los lóbulos antenales.
A continuación, para estimar el nivel del mGlutR1 gDNA modificado en las abejas 48 h después de la inyección, realizamos una prueba de entrega basada en qPCR, donde la sonda de entrega fue diseñada para estar en el área cerca de la guía mGlutR1. En estos experimentos, en los cerebros de abejainyectados con mGlutR1-CRISPR-Cas 9, la modificación relativa del ADNes en 12 abejas fue del 59% (media de 33 % SD) en comparación con el ADNr en las abejas no inyectadas(Figura 3A).
Estos resultados también fueron confirmados por pruebas qRT-PCR en un grupo diferente de abejas, donde estimamos los niveles de ARN mGlutR1 utilizando qRT-PCR en las abejas 48 h después de las inyecciones con RNPmGlutR1mix(Figura 3B). Comparamos el nivel de ARN mGlutR1 de las abejas inyectadas mGlutR1-CRISPR-Cas9 (n x 6) con los niveles de ARN en las abejas que no se inyectaron (n x 6). En estos experimentos, la reducción relativa de la ARNm mGlutR1 en las abejas inyectadas fue del 53% (media de 18% SE) en comparación con las abejas no inyectadas(Figura 3B).
La sección de cuatro abejas diferentes que expresaelan el RNP RDL-CRISPR-Cas9 en Kenyon célula del cuerpo de la seta se muestra en la Figura 4A-D. La abeja ejemplo con fluorescencia ATTO550 en el cuerpo del hongo y el lóbulo de la antena se muestra en la Figura 4E,F.
| Guías | Secuencias | gRNA | Rnp |
| [guideRNA:tracrRNA] | [gRNA:Cas9 Nuclease] | ||
| RDL_Guide1 | ACCGTAACGCGCCCGCT | GRDL1 | RRDL1 |
| RDL_Guide2 | AACGTCGATCGACTTGACGT | GRDL2 | RRDL2 |
| RDL_Guide3 | CCATGACGAAACACGTGCCC | GRDL3 | RRDL3 |
| mGlu_Guide 1 | CGAAAGTTATCTGACGGTGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | TTCAACGAGAGCAAGTTCAT | GMGL2 | RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGTAGGAGTGA | GMGL3 | RMGL3 |
Tabla 1: Secuencias de nucleótidos de guías diseñadas para RDL y mGlutR1.
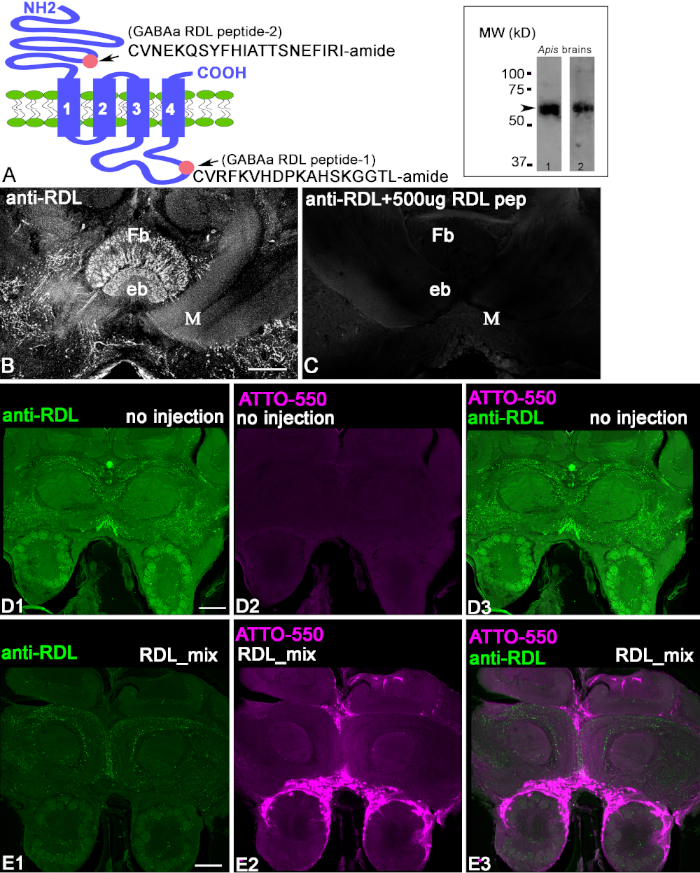
Figura 1: Caracterización de anticuerpos anti-RDL. (A) Esquema de la subunidad RDL, donde los círculos rosados indican la localización del péptido 2 (CVNEKQSYFHIATTSNEFIRI-amida) en el Término N y el péptido 1 (CVRFKVHDPKAHSKGGTL-amida intracelular) en el Término C. El inserto en A muestra las bandas en la mancha occidental de extractos de cerebro de abeja procesados con los anticuerpos anti-RDL correspondientes (uno con pep1 anti-RDL y pep2 anti-RDL). Cada inmunoblot muestra el tamaño aparente de la proteína 50-60 kD, correspondiente a los pesos estimados de las diversas isoformas de las subunidades RDL. (B,C) Preadsorción de los anticuerpos anti-RDL con péptido conjugado 1. La imagen en C muestra una reducción en la tinción en la sección cuando los anticuerpos fueron preincubados con péptido conjugado 1. El cuerpo en forma de abanico (Fb) y el cuerpo elipsoide (eb) son estructuras complejas centrales en el cerebro. M - lóbulo medial del cuerpo de la seta. (D1-3) Tinción anti-RDL de un control, sección de cerebro de abeja no inyectada después de 48 h. Verde indica el perfil positivo anti-RDL en el cerebro. (D2) Esta abeja no se inyectó y no contiene fluorescencia ATTO550. (D3) Imágenes combinadas de D1 y D3. (E1-3) La inyección de RDL-CRISPR-Cas9 redujo la tinción anti-RDL después de 48 h. (E2) fluorescencia ATTO550 en los núcleos celulares indicó que la administración exitosa de RDL-CRISPR-Cas9. (E3) La imagen combinada de anti-RDL (verde) y ATTO550 (rojo). Barra de escala a 100 m (B-E). Haga clic aquí para ver una versión más grande de esta figura.
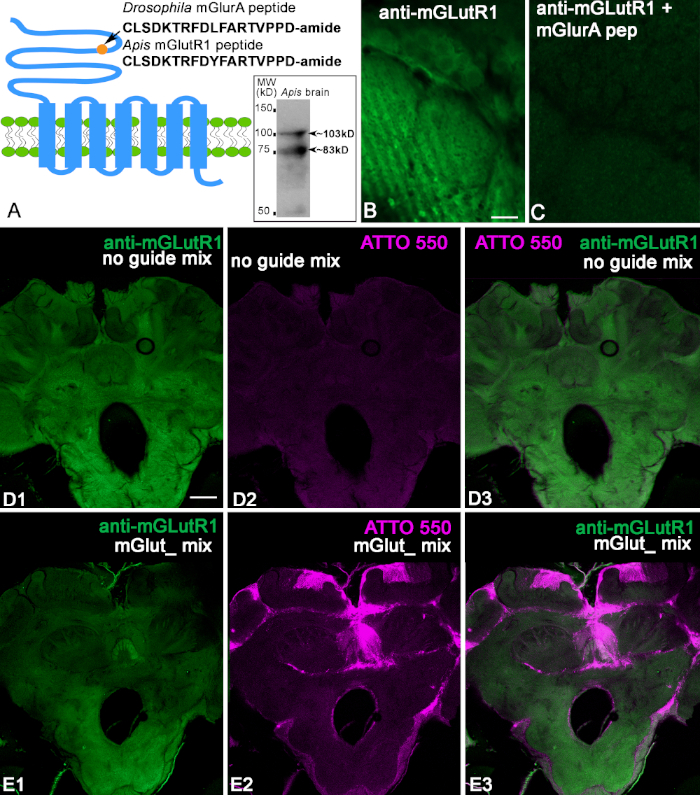
Figura 2: Caracterización de anticuerpos anti-mGlutR1. (A) Esquema de GCPR mGluR que muestra el péptido Drosophila melanogaster utilizado para la inmunización. Para la comparación, el péptido Apis mellifera se muestra a continuación. El círculo indica la localización del péptido en el N-terminus del dominio extracelular del receptor mGlutR1. El inserto en A muestra que los anticuerpos anti-mGlutR1 reconocieron dos bandas en la mancha occidental de cerebros de abejas de 103 kD y 83 kD que corresponden a los pesos estimados de las isoformas conocidas. (B,C) Control de preadsorción del anticuerpo anti-mGlutR1 en dos secciones consecutivas del lóbulo antenal glomérulos. La imagen de anti-mGlutR1 en la sección de glomérulos antenales en C muestra la reducción de la tinción como resultado de la preincubación del péptido anti-mGlutR1 con el anticuerpo anti-mGlutR1. Este procedimiento hace que el anticuerpo se precipite fuera de la solución, lo que elimina la tinción en comparación con B (control, ausencia del péptido en la preincubación). (D1) muestra la tinción de anti-mGlutR1 en una rebanada de cerebro de abeja después de una inyección de control en la mediana de ocellus. Esta inyección carecía del gRNA mGlutR1 que permite el derribo de los receptores mGlutR1 por CRISPR-Cas9, y por lo tanto la tinción del anticuerpo anti-mGlutR1 no se redujo (verde). (D2) La ausencia de fluorescencia ATTO550 indica la ausencia de CRISPR-Cas9 funcional en el cerebro. (D3) Imágenes combinadas de anti-mGlutR1 y ATTO550. (E1-E3) muestra nifura de anti-mGlutR1 en una sección cerebral donde mGlutR1 ha sido derribado permanentemente 48 h después de la inyección con mGlutR1-CRISPR-Cas 9 en la mediana de ocelo. Por lo tanto, la tinción en este cerebro se reduce en gran medida debido al éxito de la mGlutR1 en muchas células. (E2) La tinción ATTO550 en muchos núcleos celulares en el cerebro de las abejas indica que la inyección de mGlut1-CRISPR-Cas 9 fue exitosa. (E3) Imagen combinada de ATTO550 (rojo) y anti-mGlutR1 (verde). Barra de escala a 10 m (B,C); 100 m (D,E). Haga clic aquí para ver una versión más grande de esta figura.
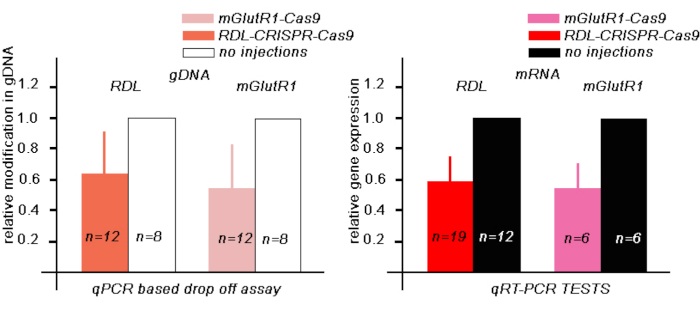
Figura 3: Evaluación del ADNr modificado y expresión de ARNm de RDL y mGlutR1 mRNA en cerebros de abeja48 h después de la inyección con 345 nL de RPN CRISPR-Cas9 correspondiente. (A) La prueba de ensayo de entrega basada en qPCR para evaluar la cantidad de gDNA con un área de modificación se calculó utilizando el método de 2- .Ct y se normalizó contra el control, cerebros no inyectados. Los datos se expresan como media + SD. (B) La prueba qRT-PCR se utilizó para evaluar la cantidad de ARNm en las abejas inyectadas y no inyectadas de CRISPR-Cas9. AmActin se utilizó como un gen de referencia. La expresión génica relativa se calculó utilizando 2métodos -Ct y se normalizó contra el control, cerebros no inyectados. Los datos se expresan como media + SE. Por favor, haga clic aquí para ver una versión más grande de esta figura.
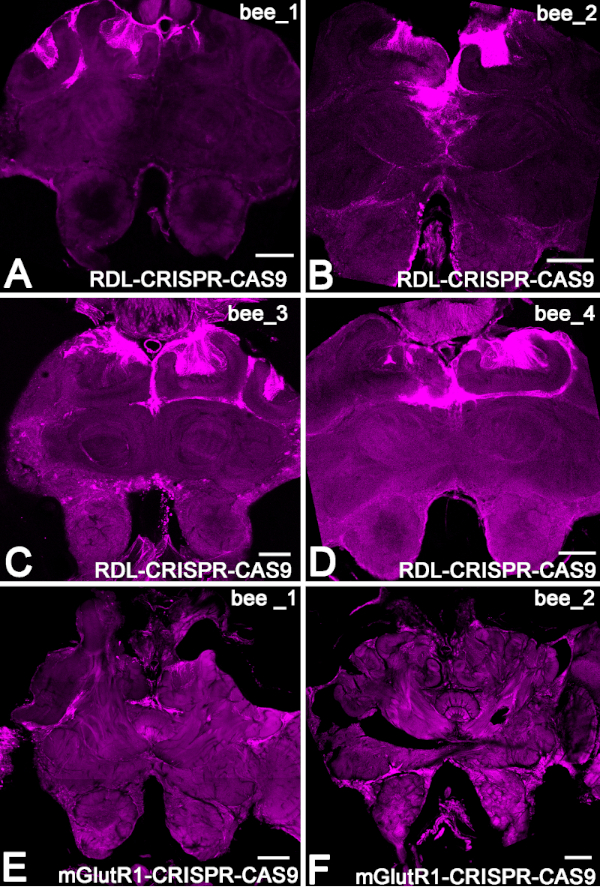
Figura 4: Ejemplo de la distribución de RNP CRISPR-Cas9 en cerebros de abejas a través de fluorescencia ATTO550. (A-D) Las secciones cerebrales de cuatro abejas diferentes que expresaron el RNP RDL-CRISPR-Cas9 en la célula Kenyon del cuerpo de la seta. (E,F) Ejemplo de dos cerebros 48 h después de la inyección con RNPmGlutR1 CRISPR-Cas9. Barra de escala a 150 m (A-F). Haga clic aquí para ver una versión más grande de esta figura.
Discusión
Caracterización del anti-RDL y anti-mGlutR1
En primer lugar, caracterizamos los anticuerpos anti-RDL y anti-mGlutR1 por inmunoblot y pre-adsorción en las rebanadas de cerebros fijos de abejas. Cada anticuerpo fue hecho para reconocer todas sus isoformas conocidas, y el análisis occidental muestra que reconocen las bandas que corresponden a sus pesos moleculares predichos. A continuación, ambos anticuerpos fueron bloqueados por el péptido conjugado contra el cual se produjeron en secciones del cerebro de abeja.
Uno de los primeros objetivos de nuestro estudio fue establecer que los anticuerpos producidos contra el péptido conjugado específico son específicos de su proteína en el tejido cerebral fijo. Para ello, aprovechamos el sistema CRISPR-Cas9. Diseñamos guías específicas para las abejas melísetas RDL y mGlutR1 y las utilizamos para hacer CRISPR-Cas9 etiquetado con la sonda fluorescente ATTO550. Para cada receptor, inyectamos una mezcla de tres ribonucleoproteínas CRISPR-Cas9 diferentes en el ocelli para reducir la cantidad de proteína dirigida en el cerebro adulto de abejas al eliminar el gen correspondiente en las células que tomaron nuestro sistema Cas9 diseñado. En nuestro estudio, logramos este paso.
Uno de los primeros pasos cruciales para el éxito de estos experimentos es diseñar los ARN de guía adecuados. Recomendamos diseñar hasta cinco ARN guía, ubicados al principio, al medio y al final de la secuencia genética. En nuestro trabajo preliminar, los probamos en varias combinaciones en tres a cinco abejas. También probamos diferentes concentraciones de inyecciones, así como tiempos después de la inyección, y varias mezclas de RNP en las inyecciones. Diseccionamos cerebros y los procesamos usando anticuerpos anti-RDL y anti-mGlutR1. En estas pruebas iniciales, establecimos la combinación adecuada, tiempo post-inyección, así como la concentración y la cantidad de CRISPR-Cas9 para inyección. Estas pruebas iniciales fueron la base para configurar los experimentos que describimos en detalle aquí.
El objetivo era doble: 1) demostrar en una abeja que nuestra tinción de anticuerpos se redujo después del tratamiento con CRISPR-Cas9 y 2) para trabajar a través de las mejores condiciones experimentales para estudios conductuales. Por lo tanto, mostramos que si muchos núcleos celulares contienen CRISPR-Cas9 48 h después de la inyección, la reducción de la tinción anti-RDL y anti-mGlutR1 es significativa. Además, eso demuestra que los anticuerpos probados reconocen específicamente la proteína mGlut1 y RDL en la preparación del cerebro de abeja y que se pueden utilizar para estudios de localización en el cerebro de abeja.
Ajuste experimental CRISPR-Cas9 para el estudio del comportamiento
A continuación, creamos los experimentos para que CRISPR-Cas9 pudiera utilizarse en estudios de comportamiento. Se recogieron ocho o nueve abejas para el control y los tratamientos experimentales. Se probaron de forma conductual antes y después de la inyección, y luego sus cerebros fueron procesados para ATTO550 y/o inmunocitoquímica para determinar las regiones cerebrales que mostraron la reducción de la proteína diana. Aquí es esencial tener en cuenta que el número de abejas tomadas para un conjunto de experimentos se limitó a no más de 8-9 abejas para el control y las condiciones experimentales. De esta manera ambas condiciones podrían ser probadas en el mismo día. Además, una vez que preparamos las mezclas CRISPR-Cas9 para inyección, nunca las congelamos. La mezcla CRISPR-Cas9 no cambió de potencia cuando se usaba 3 días seguidos y se mantenía a 4-8 oC. Sin embargo, no lo probamos después de 3 días.
Como describimos en la sección Resultados para ambos conjuntos de inyecciones experimentales y para ambos anticuerpos, sólo tres abejas de 16 probados mostraron una gran distribución ATTO550 en el cuerpo del hongo, protocerebrum, y lóbulos antenales. En todas las demás abejas, la distribución de CRISPR-Cas9 se limitó al cuerpo del hongo, complejo central, y / o protocerebrum posterior. Es esencial entender para cualquier estudio de comportamiento que el uso de este método de inyección la reducción de la proteína diana se limitará sólo al cuerpo de la seta en la mayoría de las abejas. No se extenderá al lóbulo antenal o al ganglio subesofágico. Por lo tanto, la técnica de inyección que utilizamos es adecuada para estudiar el efecto de la reducción de receptores en el cuerpo de la seta y complejo central en experimentos conductuales, mientras que un método diferente de introducción de CRISPR-Cas9 será más adecuado para el estudio de otras regiones cerebrales.
En conclusión, nuestro estudio demostró la aplicación exitosa de CRISPR-Cas9 como un control para la tinción de anticuerpos en el cerebro. Tanto para los anticuerpos (anti-RDL como anti-mGlutR1), cuando la ingesta de mGlutR1-CRISPR-Cas9 o RDL-CRISPR-Cas9 fue exitosa, el nivel de tinción de anticuerpos correspondiente también se redujo significativamente. Además, es esencial tener en cuenta que la inyección en el ocelli condujo a una distribución de CRISPR-Cas9 en el cerebro que no era homogénea. La distribución varió desde un área mínima que rodea el cuerpo de ocelli y setas a muchas células en todo el cerebro. La variabilidad de la ingesta de mGlutR1-o RDL-CRISPR-Cas9 por las células probablemente se debió a la variación en las inyecciones. Nuestros datos muestran que el sistema CRISPR-Cas9 funciona en abejas, pero el método de inyección debe mejorarse para reducir la variabilidad de la ingesta de CRISPR-Cas9 a través de cerebros de abejas individuales. Dentro de estas restricciones, ahora es posible emplear esta técnica para manipular genes en abejas adultas para experimentos conductuales.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Este trabajo fue apoyado por los siguientes premios a BHS: Human Frontiers Science Program; NIH NIGMS (R01 GM113967); NSF Ideas Lab (1556337). El péptido y los anticuerpos para DmGluRA fueron diseñados en el laboratorio Dr. Serge Birman (Marseille, Luminy, Francia) cuando IS fue apoyado por el Programa d'Urgence FRM/Postdocs UFP20060306548 de la Fondation pour la Recherche Medicale. Agradecemos a Daniela Junqueira Marosi y Alex Hanter de Integrated DNA Technology (IDT) por la ayuda con el diseño de guías RDL y ensayos de entrega qPCR.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Ácido Acético | Sigma-Aldrich | A6283_100 mL | blot |
| Acrylamide-bis Acrylamida | Bio-Rad | 500 mL 1610156 | Western blot |
| Agarosa | Sigma-Aldrich | A0169-250g | utilizado con agua destilada para fijar el cerebro de la abeja melífera en bloques |
| Alexa Fluor 488 AffiniPure F(ab')2 Fragmento Burro Anti-Conejo IgG (H+L) | Jackson Laboratorios de investigación | 711-546-152 | anticuerpo secundario para revelar los anticuerpos primarios del conejo |
| Alt-R CRISPR-cas9 tracrRNA-5'ATTO | IDT 1075934 | con ARN guía diseñado, crea gRNA | |
| Alt-R S.p. Cas9 nucleasa V3 | IDT | 1081058 | enzima utilizada para producir ribonucleoproteínas para el sistema CRISPR |
| Persulfato de amonio | Bio-RAD | 10 g 1610700 | Western blot |
| Anticuerpos anti-mGlutR1 | Covalab (FRANCIA)/21st Century Biochemical | caracterizado por los autores en el presente artículo | Utilizado para la incubación primaria de mGlut 1 en abejas melíferas |
| Anticuerpos anti-RDL | 21st Century Biochemical | caracterizado por los autores en el presente artículo | Utilizado para la incubación primaria de RDL en abejas melíferas |
| Aprotinina | Sigma-Aldrich | Y0001154 inhibidor de la proteasa | |
| Tijeras Barraquer Iris 7mm Hoja Punta afilada | World Precision Instruments | 14128-G | utilizado para la disección cerebro de abeja melífera |
| Benzamidina | Sigma-Aldrich | 12072 | inhibidor de la proteasa |
| Cuchilla (rompible) para soporte de cuchilla | Fine Science Tool | 10050-00 | disección para Western blot |
| Portacuchillas y rompedor | Fine Science Tool | 15309 | disección para Western blot |
| Capilares de vidrio de borosilicato | World Precision Instruments | 1B100 F | para procedimiento de inyección |
| Sustrato quimioluminiscente de detección de Western blot | Bio-Rad | 1705062 | Western blot |
| Cloroformo | Sigma-Aldrich | 472476-50mL Aislamiento de | ARN |
| Dithiothreitol | Bio-Rad | 1610611 | Western blot |
| Kit fácil de ADN | QIAGEN | 69504 | Extracción de ADNUJ |
| Kit sin ADN | INVITROGEN | AM1907 | Se utiliza para extraer ADN |
| Pipeta Eppendorf Research plus, paquete de 3 | Sigma-Aldrich | Z683884 | |
| Falcon 24 Pocillos Multipocillo Poliestireno | Multipocillo Falcon | 351147 | Multipocillos |
| Cápsulas de inclusión de fondo plano, | microscopía electrónica de polietileno Cesta Science | 70021 | para secciones cerebrales |
| Pinzas Dumont #5 (par) | Fine Science Tool | 11254-20 | para la disección del cerebro de abeja melífera desde la cabeza |
| Pinzas Dumont #5S (par) | Fine Science Tool | 11252-00 | para limpiar el cerebro de la tráquea antes de la disección |
| Expresión génica Master Mix | Integrated DNA Technologies | 1055770 | Ensayo |
| de caída de qPCRGlutaraldehído | EMS | 16220 | utilizado para la preparación de péptidos conjugados para el control de la peabsorción |
| Glicerol | Sigma-Aldrich | G5516-500 mL | blot, medios de inclusión |
| Glycine | Bio-Rad | 1610718 | western blot |
| Hidrofóbico filtrado de nylonmesh Spectrum | Labs | 145910 | para el fondo de la cesta para secciones cerebrales |
| Isopropyl alcohol | Sigma-Aldrich | I9030-50mL Aislamiento de | ARN |
| Hemocianina de lapa Keyhole | Sigma-Aldrich | H7017 | utilizado para la preparación de conjugados para el control |
| LSM800 microscopio cofocal | Zeiss | ||
| mGlu_Guide 1 | IDT | diseñado ARN guía para CRISPR-Cas 9. Secuencias del genoma mGlutR1 diana | |
| mGlu_Guide 2 | IDT | para CRISPR-Cas 9. Las secuencias del genoma mGlutR1 diana | |
| mGlu_Guide 3 | ARN | para CRISPR. Secuencias del genoma de mGlutR1 | |
| objetivo: metanol | Sigma-Aldrich | 34860 | Western blotting |
| Microplaca de PCR de 96 pocillos | Biosistema aplicado | 4346907 | ensayo de caída de qPCR y qRT-PCR |
| Microplaca de PCR de 384 pocillos | Sigma-Aldrich Z374911 | qRT-PCR | |
| Aceite mineral | Sigma-Aldrich | M5904_500mL | para procedimiento de inyección |
| Modelo p87 Extractor de micropipetas marrón llameante | Sutter Instrument Co. | Preparación capilar | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | para la solución de inclusión |
| Nanolitro 2000 | World Precision Instruments Aparato | inyección | |
| Suero de burro normal Jackson | Research Laboratories Agente | AB_2337258 | para inmunocitoquímica |
| Suero de cabra no inmune | Invitrogen | 50-062Z 100 mL | Agente bloqueante para inmunotransferencia |
| Tampón sin nucleasas | IDT | 1072570 | Tampón sin nucleasas que se utiliza en la preparación de la inyección de CRISPR-Cas9 |
| Agua sin nucleasas | IDT | AM9337 | Agua libre de nucleasas que se utiliza en la preparación del sistema CRISPR-Cas 9 |
| OrbitalShaker Mp4 | Genemate | ||
| Paraformaldehído | Sigma-Aldrich | 158127-500 g | utilizado con PBS para hacer fijador para cerebros de abejas |
| Fluoruro de fenilmetilsulfonilo (PMSF) | Sigma-Aldrich | P7626-250 mg | inhibidor de la proteasa |
| Tampón de fosfato solución salina | Sigma-Aldrich | P4417-100TAB | Utilizado con paraformaldehído como fijador; tampón para anticuerpos |
Referencias
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
Reimpresiones y permisos
