Este protocolo describe el flujo de trabajo para el etiquetado metabólico de células senescentes y no en división con SILAC pulsado, análisis de espectrometría de masas no dirigido y un cálculo simplificado de las vidas medias de las proteínas.
Artículo de método
Medición de las tasas de recambio de proteínas en células cultivadas senescentes y no divisorias con etiquetado metabólico y espectrometría de masas
En este artículo
Resumen
Resumen
La creciente evidencia ha demostrado que la acumulación de células senescentes en el sistema nervioso central contribuye a trastornos neurodegenerativos como las enfermedades de Alzheimer y Parkinson. La senescencia celular es un estado de detención permanente del ciclo celular que generalmente ocurre en respuesta a la exposición a tensiones subletales. Sin embargo, al igual que otras células que no se dividen, las células senescentes permanecen metabólicamente activas y llevan a cabo muchas funciones que requieren demandas transcripcionales y traslacionales únicas y cambios generalizados en los proteomas intracelulares y secretados. Comprender cómo la síntesis de proteínas y las tasas de descomposición cambian durante la senescencia puede iluminar los mecanismos subyacentes de la senescencia celular y encontrar posibles vías terapéuticas para las enfermedades exacerbadas por las células senescentes. Este artículo describe un método para la evaluación a escala de proteoma de las vidas medias de proteínas en células que no se dividen utilizando el marcado de isótopos estables pulsados por aminoácidos en cultivo celular (pSILAC) en combinación con espectrometría de masas. pSILAC implica el etiquetado metabólico de células con versiones estables de aminoácidos que contienen isótopos pesados. Junto con los enfoques modernos de espectrometría de masas, pSILAC permite la medición del recambio de proteínas de cientos o miles de proteínas en mezclas complejas. Después del etiquetado metabólico, la dinámica de recambio de las proteínas se puede determinar en función del enriquecimiento relativo de isótopos pesados en péptidos detectados por espectrometría de masas. En este protocolo, se describe un flujo de trabajo para la generación de cultivos de fibroblastos senescentes y fibroblastos quiescentes detenidos de manera similar, así como un curso de tiempo de etiquetado pSILAC simplificado de un solo punto de tiempo que maximiza la cobertura de las tasas de rotación de proteínas anticipadas. Además, se presenta una tubería para el análisis de los datos de espectrometría de masas pSILAC y el cálculo fácil de usar de las tasas de degradación de proteínas utilizando hojas de cálculo. La aplicación de este protocolo se puede extender más allá de las células senescentes a cualquier célula cultivada que no se divida, como las neuronas.
Introducción
La senescencia se identificó por primera vez como un estado de detención indefinida del crecimiento exhibido por las células primarias cultivadas después de alcanzar el agotamiento replicativo1. Desde entonces se ha demostrado que la senescencia puede surgir en respuesta a numerosos insultos celulares, incluyendo tensiones genotóxicas, mitocondriales y oncogénicas, entre otras2. Si bien la senescencia tiene varias funciones fisiológicamente importantes, como la supresión de tumores y la cicatrización de heridas, la acumulación de células senescentes durante el envejecimiento se asocia con una serie de efectos nocivos sobre la salud3, incluidas varias afecciones neurodegenerativas 4,5,6. La senescencia celular ocurre en múltiples tipos de células cerebrales, incluidas las neuronas 7,8,9,10, los astrocitos11, la microglía12 y los precursores de oligodendrocitos13, y contribuye a la neurodegeneración y la disfunción cognitiva. Se ha demostrado que los oligómeros beta amiloides, una de las características distintivas de la enfermedad de Alzheimer14, aceleran la senescencia neuronal 13,15,16. También se ha asociado una mayor prevalencia de células senescentes con la enfermedad de Parkinson17, especialmente derivada de factores estresantes ambientales11,18. Es importante destacar que la eliminación selectiva de células senescentes en modelos preclínicos extiende la vida útil y mitiga una multitud de enfermedades relacionadas con la edad 3,5,12 y mejora los déficits cognitivos 8,11,12,13. Por lo tanto, las células senescentes han surgido como objetivos terapéuticos prometedores para el tratamiento de muchas afecciones relacionadas con la edad.
Gran parte del efecto perjudicial de las células senescentes es causado por el fenotipo secretor asociado a la senescencia (SASP), una mezcla compleja de moléculas bioactivas secretadas por las células senescentes que pueden causar inflamación local, angiogénesis, destrucción de la matriz extracelular y propagación de la senescencia en el tejido circundante 19,20,21 . El SASP también representa un interesante fenómeno biológico de senescencia porque requiere un considerable esfuerzo transcripcional y traslacional durante un estado de detención del ciclo celular. De hecho, se ha demostrado que las células senescentes exhiben disminuciones en la biogénesis del ribosoma 22,23,24 que deberían reducir la síntesis de proteínas. En cambio, las células senescentes traducen robustamente algunas proteínas, particularmente los factores SASP, e influyen en el metabolismo del tejido circundante25. Por lo tanto, existe un interés considerable en comprender cómo las células senescentes que sufren una detención permanente del ciclo celular continúan manteniendo la homeostasis de las proteínas mientras que al mismo tiempo expresan de manera robusta los factores SASP y otras proteínas seleccionadas.
Este método describe cómo utilizar la espectrometría de masas y el etiquetado de isótopos pulsados-estables por aminoácidos en cultivo celular (pSILAC) para medir globalmente la vida media de las proteínas en células senescentes a escala de proteoma. En el SILAC tradicional, las células cultivadas están completamente marcadas metabólicamente con isótopos pesados y ligeros no radiactivos de aminoácidos para el análisis posterior de la abundancia de proteínas. Este método se ha aplicado previamente para evaluar los cambios de abundancia de forma exhaustiva y cuantitativa en el SASP de fibroblastos cultivados26. En pSILAC, las células se etiquetan metabólicamente de manera similar con un pulso de isótopo pesado que sigue el pre-etiquetado con isótopos ligeros, y luego se cosechan en uno o más intervalos de tiempo. Las tasas de incorporación de isótopos pesados en referencia a isótopos ligeros preexistentes se utilizan para calcular las tasas relativas de recambio de proteínas. Generalmente, los isótopos de arginina y lisina se utilizan porque la tripsina se escinde en esos residuos; por lo tanto, todos los péptidos de la digestión estándar contendrán potencialmente la etiqueta pesada. Los pares de péptidos que difieren solo por la presencia o ausencia de lisina pesada o arginina son químicamente idénticos y pueden diferenciarse y cuantificarse mediante un espectrómetro de masas. Después del análisis de espectrometría de masas, los péptidos pueden identificarse como recién sintetizados o preexistentes en función de la presencia o ausencia de la etiqueta isotópica en las identificaciones peptídicas resultantes. Las tasas de recambio de proteínas se pueden determinar ajustando la proporción de péptidos pesados (13 C-15N) sobre ligeros (12 C-14N) para una proteína dada a modelos cinéticos para el crecimiento exponencial o la desintegración27,28. pSILAC se ha utilizado en varias comparaciones de las tasas de recambio de proteínas 29,30,31,32 y actualmente es el método más completo y de alto rendimiento para la medición de las vidas medias de las proteínas.
Este protocolo detalla la preparación de células senescentes en paralelo con células inactivas pareadas por crecimiento similar en cultivo, seguidas de un etiquetado metabólico con pSILAC. Las células se cosechan, homogeneizan en lisados y se procesan para la adquisición y el análisis de espectrometría de masas. Los datos obtenidos de la espectrometría de masas se utilizan para determinar las vidas medias de las proteínas utilizando un método cuantitativo simplificado que emplea un solo punto de tiempo y cálculos de vida media realizados en una hoja de cálculo. Usando este enfoque, las estimaciones de las vidas medias de las proteínas se pueden medir de una manera integral y cuantitativa que es más auténtica para las condiciones celulares imperturbables que los protocolos que utilizan bloqueadores de la síntesis o recambio de proteínas.
Protocolo
1. Preparación de células inactivas y células senescentes por exposición a radiaciones ionizantes (IR)
NOTA: La senescencia y la inactividad celulares se pueden inducir utilizando múltiples métodos, como se describe en detalle en otra parte 33,34,35. Los estímulos utilizados para inducir la senescencia y la inactividad pueden depender del tipo de interés celular y de la cuestión biológica bajo investigación. Las células utilizadas en este estudio están disponibles comercialmente.
- Descongelar fibroblastos diploides humanos IMR-90 (~1 x 10⁶ células) de un criovial y colocarlos en placas en 20 mL de DMEM suplementados con 10% fetal bovino (FBS) (Tabla 1) en una placa de 150 mm.
- Cultivar las células en condiciones fisiológicas de oxígeno (3% O2, 5% CO2, 37 °C) y expandir los cultivos en medios que contienen 10% de FBS hasta que se hayan establecido suficientes réplicas para células quiscentes y senescentes (se recomiendan al menos 3-5 réplicas por condición).
NOTA: El cultivo de células a oxígeno fisiológico (3%) es ideal para las células primarias de fibroblastos humanos, pero las condiciones de cultivo adecuadas para otros tipos de células pueden variar y deben determinarse caso por caso. - Generar células senescentes exponiendo las células proliferantes a 15 grises (Gy) de radiación ionizante (IR).
NOTA: La intensidad de la exposición a la radiación puede variar según el tipo de célula. Mientras que 15 Gy se usa aquí, 10 Gy también es una dosis de radiación comúnmente utilizada para los fibroblastos; otras células, como los monocitos, pueden requerir una dosis tan baja como 5 Gy. La dosis generalmente se determina empíricamente sopesando la viabilidad contra la inducción de senescencia.- Exponer las células a una confluencia del 40% -60% a IR en medios que contengan un 10% de FBS.
- Después de la exposición a IR, cambie a medios nuevos que contengan 10% de FBS.
- Cambie el medio (20 ml, que contiene 10% de FBS) cada 2 días durante 8 días.
NOTA: Las células se exponen a IR en menor confluencia porque las células tratadas con IR se expandirán en cultivo antes de que dejen de crecer. En este experimento, las células no fueron células divididas durante el establecimiento de la senescencia, y aunque se volvieron más confluentes, todavía mostraban marcadores de células senescentes en la cosecha. En los fibroblastos, el fenotipo senescente se desarrolla dentro de 7-10 días.
- Generar células de control inactivas cambiando los medios en células proliferantes chapadas a medios que contienen 0.2% fbS (inanición sérica) (Tabla 1).
- Continúe cultivando células que se utilizarán para el control de la inactividad en medios que contengan 10% de FBS hasta el día 4 después de que las células senescentes se expongan a IR, dividiéndose cuando sea necesario.
- El día 4 después de ir, cambie los medios de las células inactivas a 20 ml de medios que contengan 0.2% fbS (Tabla 1) y continúe creciendo durante otros 6 días, cambiando los medios cada 2 días.
NOTA: Incluso en medios que contienen 0.2% de FBS, los fibroblastos continuarán creciendo un poco y pueden parecer confluentes al final de la cosecha. Como regla general, trate de recolectar células inactivas cuando hayan alcanzado una confluencia similar a la de los cultivos de células senescentes.
2. Etiquetado de células para SILAC pulsado y cosecha de lisados
- Cambie los medios en las células senescentes y quiescentes (12 placas) a SILAC Light (Tabla 1) y crezca durante 2 días.
NOTA: Este etiquetado ayuda a reducir el ruido de fondo ya que hay una baja abundancia natural de 13C y 15N. Este paso se puede omitir en condiciones limitantes de reactivos, pero dará lugar a una ligera sobreestimación de la síntesis de nuevas proteínas. - Reemplace los medios con SILAC DMEM (Tabla 1) para el etiquetado metabólico.
NOTA: Los medios SILAC DMEM están especialmente formulados para contener isótopos puramente ligeros o pesados de arginina y lisina para el etiquetado metabólico. No deben sustituirse por formulaciones estándar de DMEM en los subpasos 2.2.1 o 2.2.2.- Para tres placas senescentes y tres inactivas, reemplace el medio con 30 ml de luz SILAC (Tabla 1) y crezca durante 3 días sin cambiar el medio.
- Para un mínimo de tres placas senescentes y tres inactivas, reemplace el medio con 30 ml de SILAC Heavy (Tabla 1) y crezca durante 3 días sin cambiar de medio.
NOTA: Hay una opción en este punto para cosechar lo que serán las células marcadas con luz inmediatamente, en lugar de etiquetarlas durante 3 días adicionales. Para un solo punto de tiempo, es preferible etiquetar celdas pesadas y ligeras durante el mismo período que se hace en este protocolo para minimizar los efectos por lotes.
- Separe las células de las placas de cultivo agregando 5 ml de reactivo de tripsina precalentado a cada plato e incubando durante 5 min a 37 °C.
- Resuspend las células separadas en 5 mL del mismo medio utilizado para el cultivo (ya sea SILAC Light o SILAC Heavy) a un volumen total de 10 mL.
- Cosechar las células para la extracción de lisados y validación de marcadores de senescencia.
- Para cada suspensión, alícuota 0,6 x 10⁶ de células en 2 ml de medios que contengan 0,2% de FBS en un plato de 6 pocillos (dos platos, uno para células cultivadas silac ligeras y otro para células cultivadas SILAC heavy) y colóquelo a 37 °C para incubación nocturna.
NOTA: Estas placas (subpaso 2.5.1) se utilizarán para la detección de la actividad de β-galactosidasa asociada a la senescencia (SA-βGal) (paso 3.1). - Para cada suspensión, alícuota 1 x 10⁶ de células en un tubo de microcentrífuga y gire hacia abajo en una centrífuga de mesa a toda velocidad durante 1 min. Retire el sobrenadante y vuelva a suspender el pellet en 1 ml de fenol; en este paso, el ARN puede purificarse completamente como se describe en el manual del proveedor de fenol o almacenarse a largo plazo a -80 ° C.
PRECAUCIÓN: El fenol es corrosivo y debe manipularse exclusivamente en una capucha con guantes y una bata de laboratorio.
NOTA: El ARN extraído se utilizará para la detección de ARNm que codifican factores SASP mediante transcripción inversa (RT) seguida de análisis de PCR cuantitativa (RT-q) en tiempo real (RT-qPCR) (paso 3.2). Otro ensayo confiable para la inducción de senescencia es una prueba para la incorporación de 5-etinil dihidroxi uridina (EdU), que indica la presencia de células proliferantes. La ausencia de proliferación puede utilizarse para confirmar la inactividad y la senescencia. - Transfiera las células restantes al hielo y gire hacia abajo a 300 x g y 4 ° C.
- Para cada suspensión, alícuota 0,6 x 10⁶ de células en 2 ml de medios que contengan 0,2% de FBS en un plato de 6 pocillos (dos platos, uno para células cultivadas silac ligeras y otro para células cultivadas SILAC heavy) y colóquelo a 37 °C para incubación nocturna.
- Retire el sobrenadante y lave las células dos veces en 1 ml de PBS frío para eliminar la contaminación de medios/tripsina y proteínas exógenas del suero bovino fetal del medio de cultivo.
- Gire hacia abajo las células nuevamente, retire el sobrenadante y proceda a la lisis.
- Resuspender los gránulos celulares en 150 μL de recién preparado 8 M de urea 50 mM de lysis Buffer de lisis de amonio (Tabla 1), y mezclar mediante pipeteo hacia arriba y hacia abajo.
- Sonicar los lisados en un sonicador de agua durante 2,5 min con 30 s encendido/apagado a potencia media a 4 °C.
- Transfiera los lisados a un bloque de calor precalentado de 95 °C y desnaturalice durante 4 min.
- Girar hacia abajo los lisados; Los lisados ahora se pueden almacenar a -80 °C o utilizarse inmediatamente para la cuantificación.
- Haga un stock de 30 μL de diluciones de 1:10 para cada lisado en Lysis Buffer.
- Mida la concentración de proteínas con el BCA Assay Kit utilizando una curva estándar preparada en 1/10x Lysis Buffer diluido en ddH2O. Los lisados ahora se pueden almacenar a -80 °C indefinidamente.
3. Validación de la senescencia mediante la actividad de la β-galactosidasa asociada a la senescencia (SA-βGal) y análisis RT-qPCR de los ARNm asociados a la senescencia
NOTA: El material de partida para estos pasos se recopila durante el paso 2.5
- A partir de las placas de 6 pocillos que se establecieron en el subpaso 2.5.1, analice las células para la actividad de SA-βGal utilizando el kit de tinción de senescencia β-galactosidasa siguiendo el protocolo del fabricante. Visualice la tinción debajo del campo brillante con el color habilitado, como se describió anteriormente36.
NOTA: SA-βGal se cuantifica comparando el porcentaje de células positivas (color azul visible) en condiciones de control senescentes versus quiescentes. Un mínimo del 70% de las células deben ser SA-βGal positivas para la confirmación exitosa de la senescencia. Las células de control inactivas deben ser menos del 10% positivas para SA-βGal. - Extraiga el ARN de la suspensión de fenol (subpaso 2.5.2) y analice utilizando RT-qPCR para detectar mayores niveles de ARNm que codifican factores SASP (IL6, CXCL8, IL1B), marcadores del ciclo celular (CDKN2A / p16, CDKN1A / p21) y otros indicadores de senescencia (pérdida de LMNB1 y PCNA).
NOTA: El ARN es inestable y, por lo tanto, debe manipularse con equipo libre de RNasa, guantes frescos y en hielo, a menos que se indique lo contrario en el protocolo.- A partir de la suspensión de fenol, añadir 200 μL de cloroformo por 1 ml de fenol y girar hacia abajo a 12.000 x g durante 15 min a 4 °C.
- Retire cuidadosamente la fase acuosa y agregue 1: 1 volumen de isopropanol, 15 μg de coprecipitante de glucógeno, y luego incube a 4 ° C durante 10 minutos para precipitar el ARN.
- Después de la incubación, granular el ARN por centrifugación a 12.000 x g durante 20 min a 4 °C seguido de un lavado en EtOH al 75% igual a 1 volumen de fenol utilizado. Resuspendir el ARN en 50 μL de agua destilada libre de nucleasa; El ARN se puede almacenar a -80 °C indefinidamente.
- A las muestras de ARN, agregue 38 μL de agua destilada libre de nucleasa, 10 μL de tampón de reacción 10x DNAse y 2 μL de DNasa I seguido de mezcla.
NOTA: La mejor práctica es generar una mezcla común de todos los reactivos en el subpaso 3.2.3 multiplicado por el número de muestras para el tratamiento para una distribución equitativa a las muestras. - Incubar muestras de ARN tratadas con DNasa I a 37 °C durante 30 min.
- Retire la DNasa de las muestras utilizando 1 volumen de una mezcla de fenol/cloroformo/alcohol isoamílico (25:24:1) mediante vórtice e hilado a máxima velocidad en una centrífuga de mesa durante 5 min; el ARN estará contenido en la fase acuosa.
- Repita los subpasos 3.2.2 y 3.2.3 para precipitar el ARN. Resuspend en 20 μL de agua destilada libre de nucleasas; El ARN se puede almacenar a -80 °C indefinidamente.
- Generar ADNc a partir de ARN purificado incubando 0.5-1.0 μg de ARN purificado con 200 U de transcriptasa inversa, 100 cebadores aleatorios pMol y 10 mM de una mezcla de dNTP en un tampón de reacción 1x suministrado con la transcriptasa inversa; incubar durante 10 min a 25 °C, luego durante 30 min a 50 °C, con un paso de inactivación final a 85 °C durante 5 min.
- Analizar el ADNc desde la etapa RT (subpaso 3.2.3) del control en reposo y las células senescentes utilizando análisis de PCR en tiempo real, cuantitativo (q) para evaluar el nivel de marcadores de ARNm que se sabe que están aumentados (CDKN2A / p16, CDKN1A / p21, IL1B, IL6 y CXCL8 mRNAs) o disminuidos (LMNB1 y PCNA mRNAs) con senescencia como se describe en otra parte. El ARNm de ACTB , que codifica la proteína de limpieza β-actina, es a menudo un buen ARNm para normalizar las diferencias en el material de entrada. Los cebadores utilizados se encuentran en la Tabla 2.
NOTA: El análisis RT-qPCR relativo depende de supuestos de igual eficiencia de unión entre los pares de cebadores objetivo y un par de cebadores de referencia. Estos supuestos deben probarse para nuevos conjuntos de imprimación como se detalla en otra parte37. Además, los marcadores de referencia deben ser constantes entre los tipos de células que se comparan, y se han identificado previamente varias opciones adicionales para las células senescentes38.
4. Digestión de tripsina en solución
NOTA: A partir de este momento, es fundamental utilizar tampones, disolventes y productos químicos de grado espectrométrico de masas para evitar la interferencia de impurezas durante el análisis de espectrometría de masas. Todos los tampones deben estar compuestos de ingredientes adecuados para el análisis de espectrometría de masas en tándem de cromatografía líquida, incluyendo agua y acetonitrilo. Consulte la Tabla de materiales para obtener una lista de productos químicos y disolventes adecuados.
- Alícuota 50 μg de cada muestra de proteína en nuevos tubos y llévela a volúmenes iguales con Lysis Buffer.
- A cada muestra, agregue TDT a una concentración final de 20 mM para reducir los enlaces disulfuro.
- Incubar las muestras a 37 °C durante 30 min con agitación, y luego dejar que las muestras se enfríen a temperatura ambiente (RT, ~10 min).
- Agregue yodoacetamida a una concentración final de 40 mM para alquilar irreversiblemente los grupos sulfhidrilo que se redujeron en el paso anterior. Incubar las muestras en RT en la oscuridad durante 30 min.
- Diluya cada muestra a menos de 1 M de urea con un tampón compuesto de bicarbonato de amonio de 50 mM. Compruebe si el pH es de aproximadamente 8 pipeteando una pequeña cantidad de muestra en tiras de pH.
- Agregue 1 μg de tripsina a cada muestra para 50 μg de proteína inicial, o en una proporción de tripsina:proteína de 1:50, en masa, si digiere una cantidad de proteína diferente. Por ejemplo, se agregarían 3 μg de tripsina para la digestión de 150 μg de proteína.
- Incubar las muestras durante la noche a 37 °C con agitación para digerir las proteínas en péptidos.
- Agregue ácido fórmico al 1%, por volumen, de cada muestra para calmar la digestión de proteínas.
NOTA: El experimento se puede pausar aquí. Congele las muestras a -80 °C y continúe con el siguiente paso en una fecha posterior si es necesario.
5. Limpieza de muestras con extracción en fase sólida (SPE)
NOTA: Este protocolo de extracción en fase sólida requiere cartuchos de extracción en fase sólida y una configuración de colector de vacío. Otros protocolos equivalentes de extracción en fase sólida (SPE) se pueden llevar a cabo a discreción del investigador antes del análisis de espectrometría de masas.
- Prepárese para SPE colocando cartuchos de extracción en fase sólida en un colector de vacío, utilizando un cartucho de extracción para cada muestra.
NOTA: Consulte las directrices del fabricante para conocer la cantidad de sorbente que se utilizará en el protocolo SPE. Para 50 μg de muestras de péptidos, se recomienda utilizar cartuchos sorbentes de 10 mg. - Acondicione cada cartucho SPE añadiendo 800 μL de tampón de elución SPE (Tabla 1) y utilice la succión al vacío para extraer el disolvente a través del cartucho.
- Repita el paso 5.2.
- Equilibre cada cartucho agregando 800 μL de tampón de lavado SPE (Tabla 1) y use la succión al vacío para extraer el búfer a través de los cartuchos.
- Repita el paso 5.4 dos veces adicionales para un total de tres veces.
- Cargue las muestras de péptidos en cartuchos SPE y use la succión al vacío para extraer muestras a través de los cartuchos.
NOTA: En este punto, los péptidos se unen al sorbente dentro de los cartuchos. - Lave cada cartucho con SPE Wash Buffer y use la succión al vacío para extraer el búfer a través de los cartuchos.
- Repita el paso 5.7 dos veces adicionales para un total de tres lavados.
- Antes de la etapa de elución, coloque los tubos de recolección dentro del colector de vacío debajo de cada cartucho, asegurando cuidadosamente la alineación entre los tubos de recolección y los cartuchos.
- Para eluir péptidos, agregue 800 μL de SPE Elution Buffer a cada cartucho y elute péptidos en tubos de recolección con succión al vacío.
- Repita el paso 5.10 con 400 μL de SPE Elution Buffer.
- Retire las muestras de péptidos del colector de vacío y séquelas completamente en un concentrador de vacío (el secado tarda aproximadamente 3 h).
NOTA: El experimento se puede pausar aquí. Congele las muestras a -80 °C y continúe en una fecha posterior si es necesario.
6. Análisis de espectrometría de masas de adquisición dependiente de datos (DDA)
- Resuspend las muestras peptídicas a una concentración de 400 ng/μL en un tampón compuesto por ácido fórmico al 0,2% en agua.
- Para ayudar en la resolubilización de péptidos, vórtice las muestras durante 5 min. Luego, sonicar las muestras durante 5 minutos en un sonicador de baño de agua.
- Pellet cualquier material insoluble mediante centrifugación de muestras a 15.000 x g durante 15 min a 4 °C. Transfiera los sobrenadantes peptídicos a viales de EM.
- Agregue los estándares de péptidos de elección de tiempo de retención indexado (iRT) a cada muestra a una concentración de 1:30 iRT:sample, por volumen.
- Envíe las muestras para el análisis proteómico mediante el análisis de espectrometría de masas en tándem por cromatografía líquida (LC-MS/MS).
- Utilice la configuración LC-MS/MS recomendada para el análisis no dirigido por la instalación de espectrometría de masas. Los ajustes de ejemplo para el análisis se muestran en la Figura 3, configurado para el análisis en un espectrómetro de masas Orbitrap acoplado a un sistema de cromatografía nano líquida en modo de nanoflujo. A continuación se muestra un protocolo de ejemplo.
- Cargue 1 μg (5 μL) de cada muestra en una columna de trampa (1 cm de largo x 100 μm de diámetro) y lávelas con disolvente de carga (Tabla 1) a un caudal de 10 μL/min durante 5 min.
- Cargue las muestras en una columna analítica (50 cm de largo x 100 μm de diámetro) con un caudal de 400 nL/min.
- Eluir los péptidos sobre un gradiente lineal de 90 min con un disolvente orgánico (0,2 % de ácido fórmico y 99,8 % de acetonitrilo) y disolvente inorgánico (0,2 % de ácido fórmico en 99,8 % de agua), que oscila entre 5% y 35 % de disolvente orgánico.
- Adquiera datos de espectrometría de masas en modo dependiente de datos con un ciclo continuo de escaneos de encuesta MS1 (resolución de 60,000, objetivo de AGC 3e6, tiempo de acumulación máximo de 100 ms y rango de masa de 400-1,600 m / z) seguido de 20 escaneos MS2 dependientes de datos (resolución de 15,000, objetivo de AGC 1e5, tiempo de inyección máximo de 25 ms y ventanas de aislamiento de ancho de 1.6 m / z) con fragmentación HCD (energía de colisión normalizada del 27%).
- Después de la adquisición de MS de todas las muestras, importe archivos de espectrometría de masas en bruto en una herramienta de software de análisis proteómico de espectrometría de masas para la identificación y cuantificación de áreas de pico de péptidos.
NOTA: Para la identificación de péptidos y proteínas en este experimento, se utilizó la herramienta de búsqueda de la base de datos Mascot con la base de datos revisada de secuencias de proteomas humanos UniProt (ID de proteoma: UP000005640). Los siguientes parámetros de búsqueda se especificaron en Mascot:- Cuantificación: SILAC K+8 R+10 [MD] Enzima: Tripsina/p Modificación fija: carbamidometil (C)
- Modificaciones variables: acetilo (proteína N-término), Gln->piro-Glu (N-término Q), Oxidación (M), Etiqueta: 13C (6) 15N (2) (K), Etiqueta: 13C (6) 15N (4) (R)
- Tolerancia a la masa peptídica: 10 ppm
- Tolerancia de masa del fragmento: 0.08 Da
- Máximos escotes perdidos: 2
- Todos los parámetros no especificados eran predeterminados
- Cuantificar las áreas de pico de péptidos para péptidos pesados y ligeros en la herramienta de software de cuantificación de proteomas. Para la cuantificación de las zonas pico en este experimento, se utilizó la plataforma de software gratuita y de código abierto Skyline39,40. Exporte áreas pico de péptidos pesados y ligeros para la estimación de vidas medias de proteínas.
7. Cálculo de la vida media de las proteínas
- Abra el libro de trabajo de análisis SILAC (Tabla 3) en la primera hoja denominada 1) Datos sin procesar y pegue los ID de UniProt, los nombres de genes, las áreas de pico pesado y las áreas de pico ligero en las columnas indicadas (SH = Senescent-Heavy, SL = Senescent-Light, CH = Control (quiescente)-Heavy, CL = Control (quiescente)-Light).
- Abra las hojas 2-4 y asegúrese de que las columnas UniProt ID y Gene coincidan con el número de proteínas identificadas a partir del análisis (estos experimentos identificaron 841 proteínas). El resto de las columnas se llenarán automáticamente con datos después de que hayan sido arrastradas para cubrir las proteínas identificadas.
- Abra la cuarta hoja denominada 4) Análisis y elimine las filas donde las columnas G y H indican que la muestra está fuera del rango; mantenga las filas que leen dentro del rango. La gráfica del volcán en la quinta hoja se rellenará automáticamente.
Resultados
Este protocolo describe un método para comparar globalmente las vidas medias de las proteínas entre las células de control senescentes y no dividientes, inactivas utilizando pSILAC y puntos de tiempo mínimos. Este protocolo detalla la generación de células senescentes y quiescentes en cultivo, el etiquetado metabólico de células con isótopos estables de arginina y lisina durante 3 días, la cuantificación de las abundancias relativas de isótopos peptídicos pesados y ligeros mediante espectrometría de masas, y un cálculo directo y accesible de las vidas medias de proteínas utilizando fórmulas de hoja de cálculo (Figura 1). Este método es altamente flexible y se puede adaptar a numerosos tipos de células y condiciones.
Como parte de la generación de células senescentes para este protocolo, se utilizan dos métodos de validación de senescencia: células SA-βGal-positivas visualizadas por microscopía y aumento de los niveles de marcadores senescentes cuantificados mediante análisis RT-qPCR. La medición de los marcadores senescentes debe proporcionar distinciones claras entre las células inactivas y senescentes para que las comparaciones de las poblaciones de las dos células se consideren válidas. Para la actividad de SA-βGal, las células senescentes deben aparecer azules, mientras que las células de control inactivas no tienen o tienen muy poco color (Figura 2A). Este ensayo se puede cuantificar contando las células positivas teñidas de azul como un porcentaje del número total de células, y luego comparando la tasa de positividad porcentual entre el control inactivo y las células senescentes. Es importante que este protocolo se realice al mismo tiempo para la comparación de ambos estados celulares; La actividad de SA-βGal se basa en el pH de la solución de tinción, por lo que los resultados pueden variar sustancialmente entre los ensayos y deben considerarse una medida cualitativa.
El análisis RT-qPCR de marcadores senescentes mostrará altos niveles de los ARNm que codifican los factores SASP (IL6, CXCL8, IL1B) y los inhibidores del ciclo celular (CDKN2A/p16, CDKN1A/p21) en la mayoría de los modelos senescentes. Aunque se espera alguna variación basada en el tipo de célula, la condición de cultivo y el inductor senescente 41,42, la mayoría de las células senescentes muestran niveles más altos que cinco veces más altos de IL6, CXCL8 y CDKN1A / p21 mRNAs en comparación con las células de control inactivas; por el contrario, los niveles de ARNm LMNB1 y PCNA, que codifican marcadores de proliferación, deben ser bajos o ausentes en las células senescentes en comparación con las células inactivas (Figura 2B). En conjunto, un porcentaje significativo de positividad de SA-βGal y la expresión esperada de un panel de marcadores de ARNm asociados a la senescencia son suficientes para confirmar la inducción de la senescencia en un experimento.
El procesamiento de muestras de proteínas para el análisis de espectrometría de masas consiste en la digestión en solución (2 días) y la extracción en fase sólida (4-6 h). Para realizar un análisis proteómico no dirigido, los péptidos resultantes se envían para el análisis LC-MS/MS utilizando la adquisición dependiente de datos (DDA). En los instrumentos Orbitrap, se puede especificar un método DDA en el editor de métodos de software de instrumentos de espectrometría de masas. Los ajustes del espectrómetro de masas utilizados en este estudio se muestran en la Figura 3A. La configuración de cromatografía líquida también se puede especificar en el editor de métodos. Para este estudio se utilizó un gradiente lineal de 90 min con fase orgánica creciente (acetonitrilo) (Figura 3B). Después de una adquisición exitosa, la corriente iónica total (TIC) debe contener una señal intensa durante la porción de gradiente lineal del método (Figura 3C). Este protocolo describe un protocolo de ejemplo en un instrumento Orbitrap, pero el cálculo de la vida media de la proteína se puede realizar sobre los datos obtenidos de cualquier espectrómetro de masas que se recopiló en modo DDA, que está disponible en varios tipos de instrumentos (por ejemplo, Orbitraps e instrumentos de tiempo de vuelo) y proveedores. Los ajustes de adquisición serán exclusivos del tipo y la configuración del instrumento utilizado, y se recomienda utilizar los ajustes sugeridos por la instalación de espectrometría de masas. Este método también es compatible con métodos no DDA (SRM, PRM, DIA), siempre que las áreas de pico cromatográficas cuantitativas para picos pesados y ligeros se puedan extraer de los archivos de datos sin procesar e ingresar en las fórmulas de la hoja de cálculo.
Los archivos de espectrometría de masas en bruto se buscan con una de las muchas herramientas de búsqueda de bases de datos proteómicas disponibles para identificar péptidos y proteínas. Por ejemplo, este estudio utilizó el motor de búsqueda Mascot43. Para obtener áreas de pico cromatográficas para la cuantificación de péptidos pesados y ligeros, los resultados de búsqueda de la base de datos se importan a un software proteómico capaz de áreas de pico cromatográficas como Skyline39,40. El examen de los cromatogramas iónicos extraídos de péptidos (Figura 4) revelará la proporción relativa de señales peptídicas pesadas y ligeras. Una menor proporción de señal de péptido pesado en relación con la señal de péptido ligero en células senescentes indica una tasa de renovación de proteínas más lenta (Figura 4A), y una señal de péptido pesado más alta en relación con la luz indica una tasa de renovación de proteínas más rápida (Figura 4B). Las muestras no etiquetadas deben mostrar poca o ninguna señal peptídica pesada. Cualquier señal aparente de péptido pesado en las muestras no etiquetadas se considera ruido de fondo y se restará durante los cálculos finales. La cuantificación de las zonas de pico cromatográficas para péptidos ligeros y pesados para todas las condiciones de tratamiento y etiquetado debe exportarse para el cálculo posterior de las tasas de recambio de proteínas y el análisis estadístico.
Mediante el uso de análisis de un solo punto de tiempo, la cuantificación de las vidas medias de las proteínas es fácil de realizar y se puede hacer convenientemente en hojas de cálculo. En la Tabla 3, se calcularon las vidas medias de 695 proteínas identificadas a partir del análisis de espectrometría de masas. A partir de las abundancias de isótopos pesados y ligeros a nivel de proteína para cada proteína en las muestras (entrada para la 1) hoja de datos en bruto ), un porcentaje de isótopo pesado (denominado Ratio, R) se calcula automáticamente en la hoja titulada 2) Ratio H | H +L. En este paso, la R de muestras pesadas etiquetadas se normaliza restando la R de muestras no etiquetadas para producir una R final para los triplicados quiescentes y senescentes. Dado que las muestras no etiquetadas no deben tener ningún isótopo pesado añadido exógenamente, se utilizan para eliminar la señal de fondo. A partir de R, el kdeg (tasa de rotación) se calcula utilizando la siguiente fórmula:
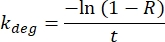
La vida media (H, en días) se determina para cada proteína en el control quiescente y triplicatos senescentes (hoja titulada 3) Vida media (días)) utilizando la siguiente fórmula:

Estas vidas medias se promedian entre los triplicados quiescentes y senescentes para generar una vida media quiescente y senescente media para cada proteína, así como un valor p. Las vidas medias calculadas se filtran para los valores que son negativos, lo que ocurre cuando la señal pesada de las células marcadas como ligeras (el fondo) es mayor que la señal pesada de las células marcadas con luz. Este filtrado dio como resultado 707 proteínas de 841 identificadas con vidas medias válidas para los resultados presentados aquí.
La vida media se informa entonces como una relación log2 de células de control senescentes sobre quiescentes (log2FC) y se traza en una gráfica de volcán (Figura 5). Por ejemplo, al observar la hoja de análisis 5), se puede ver que la proteína del receptor de trombina de coagulación II (F2R) tiene una vida media en células inactivas de 0,51 días (columna B) y una vida media en células senescentes de 1,07 días (columna C) que produjo un log2FC de ~ 1,06 (columna D) con un valor p de 0,001.
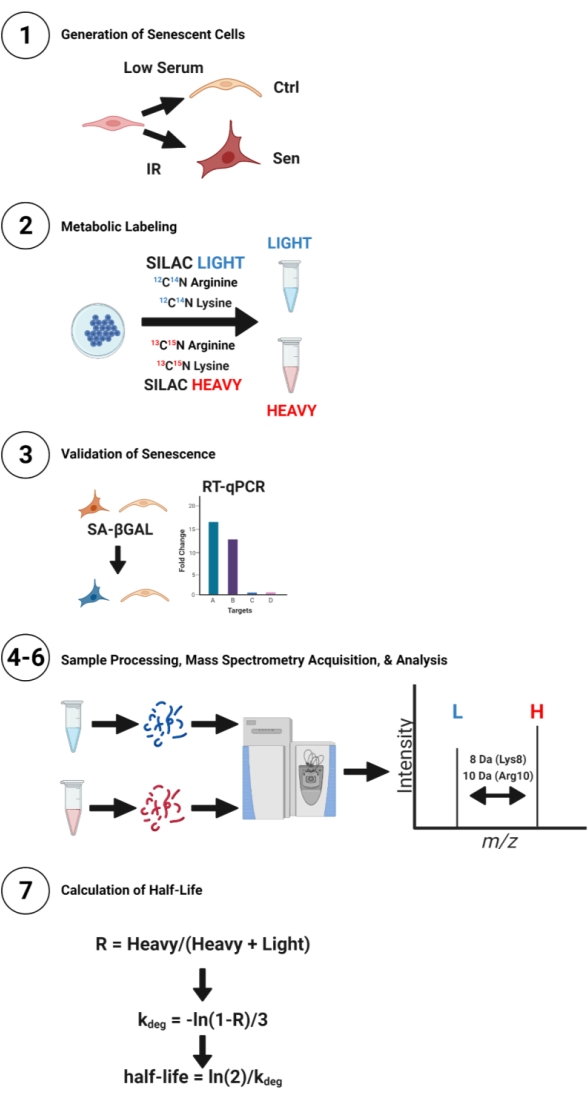
Figura 1: Diagrama del flujo de trabajo de pSILAC para celdas de control senescentes y inactivas. Los fibroblastos IMR-90 humanos se utilizaron para preparar cultivos celulares quiescentes (bajo suero) o senescentes (IR) para la comparación de las vidas medias de las proteínas. Las células se etiquetaron con medios SILAC Light o SILAC Heavy con arginina isotópica y lisina durante 3 días. Los lisados se extrajeron de las células, se digirieron, se desalaron y se analizaron mediante espectrometría de masas. Los picos de isótopos peptídicos pesados y ligeros corresponden a péptidos recién sintetizados y preexistentes, respectivamente. Las vidas medias se calcularon utilizando una ecuación para el decaimiento exponencial. Haga clic aquí para ver una versión más grande de esta figura.
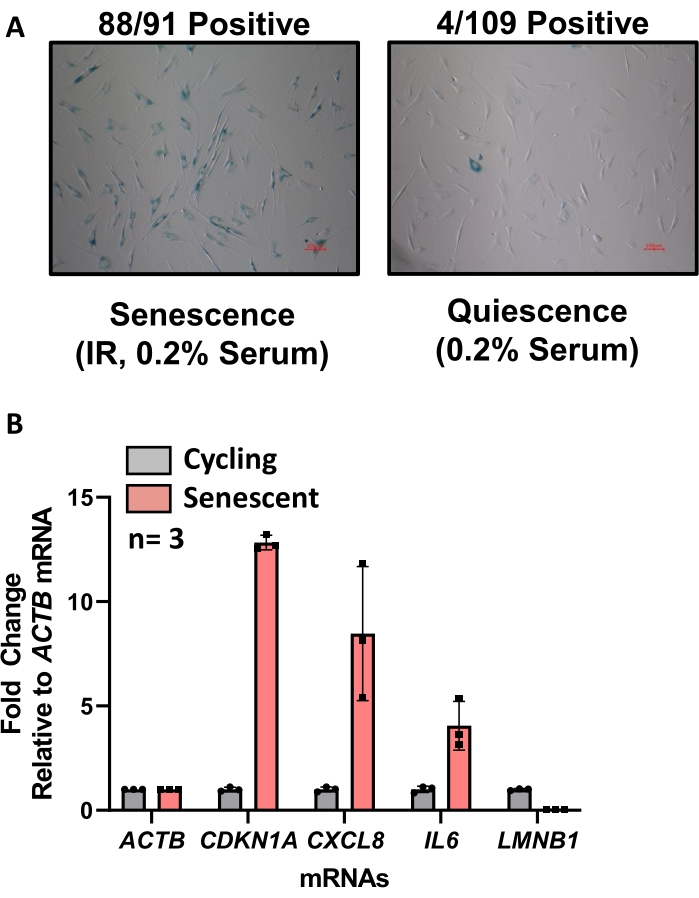
Figura 2: Validación de fenotipos senescentes mediante análisis SA-βGal y RT-qPCR. (A) Las células senescentes y quiescentes se vuelven a chapar en el momento de la cosecha en una placa de 6 pocillos y se tiñen para SA-βGal utilizando el kit de tinción SA-βGal. El color azul en el cuerpo celular es positivo para la senescencia. Las imágenes se toman en campo brillante con color a un aumento de 10x, marcador de tamaño en rojo. (B) Análisis RT-qPCR que compara células senescentes (rojas) y células ciclativas (grises) de un experimento no relacionado. Los aumentos en los niveles de CDKN1A/p21, CXCL8 e IL6 mRNAs son indicativos de senescencia, al igual que la disminución en los niveles de ARNm LMNB1 . Haga clic aquí para ver una versión más grande de esta figura.
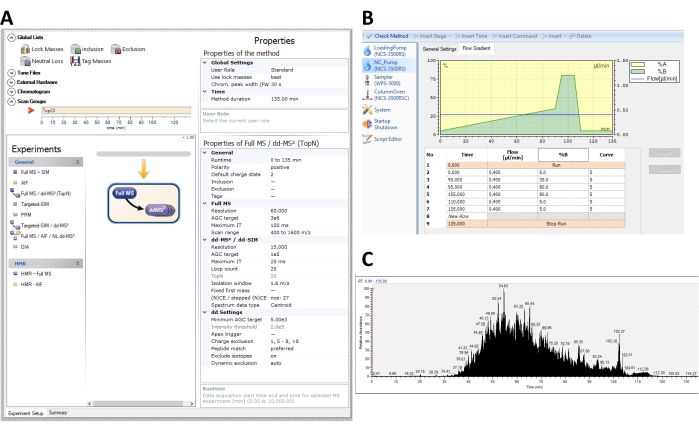
Figura 3: Métodos representativos para exploraciones de adquisición dependiente de datos (DDA) y gradiente de cromatografía líquida de cultivos de pSILAC en el espectrómetro de masas de orbitrap Q-Exactive HF. (A) Configuración recomendada del instrumento en el software del instrumento para el análisis dependiente de datos de lisados de células enteras a partir de un experimento pSILAC. (B) Ejemplo de configuración del método de gradiente de flujo de cromatografía líquida. Los péptidos se eluyen sobre un gradiente lineal de 90 minutos que oscila entre el 5% y el 35% del tampón B (0,2 % de ácido fórmico y 99,8% de acetonitrilo), seguido de un lavado de 10 minutos con un búfer B del 80% y 25 minutos de equilibrio con un tampón B al 5%. (C) Un cromatograma iónico total (TIC) representativo de una adquisición por espectrometría de masas de péptidos fibroblásticos IMR-90 adquiridos con los ajustes especificados. Haga clic aquí para ver una versión más grande de esta figura.
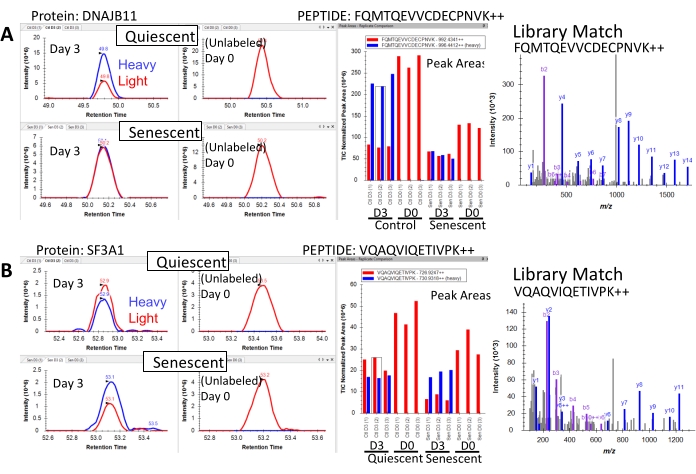
Figura 4: Cromatogramas iónicos extraídos representativos de péptidos con recambio alterado durante la senescencia. (A) Áreas de pico cromatográficas del péptido FQMTQEVVCDECPNVK++ de la proteína DnaJ homólogo de la subfamilia B miembro 11 (DNAJB11) en células senescentes y no senescentes. Después de 3 días de SILAC, las células senescentes incorporan isótopos menos pesados en este péptido en comparación con las células inactivas (no senescentes), como lo indica una reducción en el área pico del péptido que contiene isótopos pesados (azul) en relación con el péptido claro (rojo), lo que indica que este péptido ha reducido el recambio en las células senescentes. (B) Áreas de pico cromatográficas del péptido VQAQVIQETIVPK++ de la proteína Factor de empalme 3a Subunidad 1 (SF3A1) en células senescentes y no senescentes. Después de 3 días de SILAC, las células senescentes incorporan una mayor proporción de isótopos pesados en este péptido en comparación con las células inactivas (no senescentes), como lo indica una reducción en el área pico del péptido que contiene isótopos pesados (azul) en relación con el péptido ligero (rojo), lo que indica que este péptido ha aumentado el recambio en las células senescentes. Las condiciones no etiquetadas (Día 0) no muestran incorporación de isótopos pesados para ambos péptidos, como se esperaba. Haga clic aquí para ver una versión más grande de esta figura.
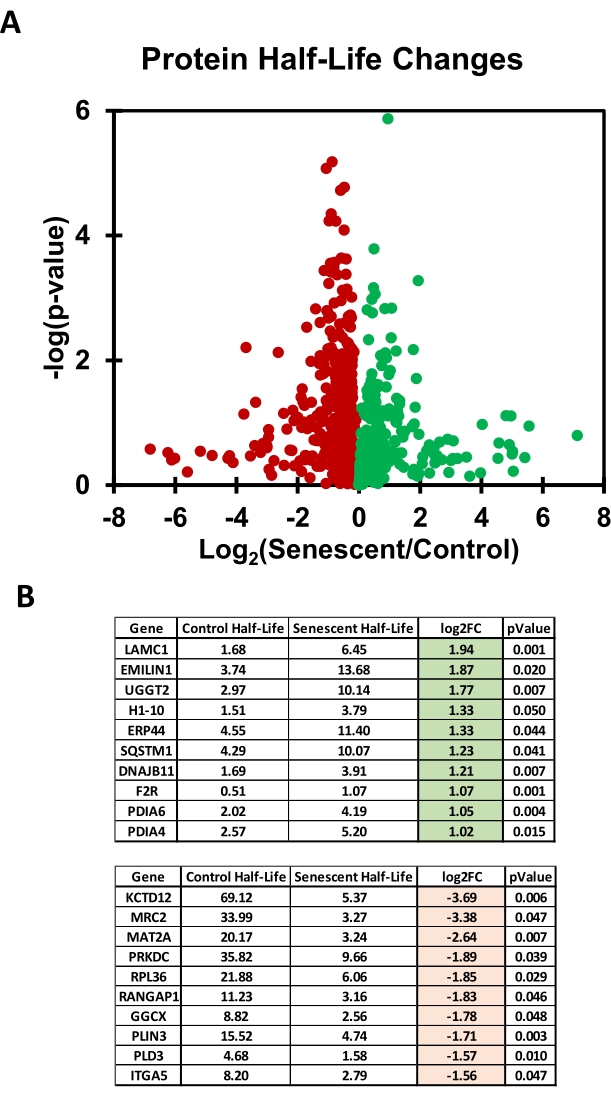
Figura 5: Comparación de las vidas medias de proteínas en células senescentes y inactivas determinadas a partir del etiquetado pSILAC. (A) Diagrama de volcán que muestra la relación log2 de senescente / control (inactivo) para cada una de las 695 proteínas identificadas; en este experimento, los medios de etiquetado Light and Heavy no contenían glucosa ni rojo fenol. (B) Tablas que muestran las 10 proteínas principales con las vidas medias más aumentadas o disminuidas en las células inactivas frente a las células senescentes (izquierda y derecha, respectivamente). Haga clic aquí para ver una versión más grande de esta figura.
Tabla 1: Medios y búferes utilizados en este protocolo. Haga clic aquí para descargar esta tabla.
Tabla 2: Cebadores RT-qPCR utilizados en este protocolo. Haga clic aquí para descargar esta tabla.
Tabla 3: Libro de trabajo de análisis SILAC para el cálculo de vidas medias de proteínas, cambios de pliegue y pruebas t. Haga clic aquí para descargar esta tabla.
Discusión
pSILAC es una técnica poderosa que permite la cuantificación global de las tasas de renovación de proteínas en múltiples condiciones celulares. Este artículo detalla el uso de pSILAC para comparar las vidas medias de proteínas globales entre las células senescentes y inactivas, incluidas las instrucciones para la preparación de células senescentes y inactivas, el etiquetado y la cosecha de SILAC y, en última instancia, el análisis utilizando espectrometría de masas DDA. Además, se describe una prueba de dos pasos para la validación del fenotipo de senescencia utilizando el análisis SA-βGal y RT-qPCR de un panel de ARNm que codifican proteínas asociadas a la senescencia. Además de la validación de la senescencia con los dos enfoques descritos, se puede realizar una tercera validación de la senescencia después del análisis de espectrometría de masas mediante la búsqueda de cambios en los marcadores de senescencia conocidos entre las células senescentes y inactivas a nivel proteómico. Las proteínas asociadas a la senescencia que se espera que estén elevadas incluyen p16, p21 y BCL2, entre otras, descritas en otra parte44,45. En el protocolo descrito anteriormente, se utilizó radiación ionizante para la inducción de la senescencia y la inanición sérica para las células inactivas. Para la inducción de la senescencia, existen múltiples opciones disponibles y existe una heterogeneidad sustancial entre ellas 41,42,46. Actualmente, no existe un método senescente que se considere el "más fisiológico", por lo que la elección del inductor senescente se basa en gran medida en el contexto del experimento. Sin embargo, se recomiendan experimentos con el objetivo de establecer un fenómeno general sobre la senescencia para usar al menos dos inductores senescentes diferentes. Discutir la gama de paradigmas de senescencia está más allá del alcance de este artículo, pero algunos métodos comunes para inducir la senescencia incluyen desencadenar daño en el ADN (IR, doxorrubicina, agotamiento replicativo), expresar proteínas oncogénicas (HRAS, BRAF) e interrumpir la funciónmitocondrial 2.
Además de la elección del inductor senescente, la elección de las células de control es una consideración igualmente importante. Las células senescentes están, por definición, bajo detención indefinida del crecimiento, por lo que a menudo se elige una comparación con otras células detenidas por el crecimiento. Para pSILAC, las células detenidas del ciclo celular son generalmente preferibles porque no se replican y, por lo tanto, son más fáciles de usar para los cálculos de vida media de proteínas47. Sin embargo, dado que las células cultivadas a menudo retendrán algunas células en división, es importante que los métodos utilizados para inducir la detención del ciclo celular produzcan una respuesta lo más homogénea posible para minimizar el error de las células que aún están proliferando. Para calcular las tasas de degradación de proteínas para células cicladoras que utilizan pSILAC se requieren cálculos adicionales para compensar la velocidad a la que la proteína se diluye en células hijas27. Sin embargo, la detención del crecimiento inactivo en sí misma no está exenta de complicaciones. Existen dos métodos generales para la detención del ciclo celular: la privación sérica y la inhibición por contacto48. No todas las células pueden quedar inactivas a través de la inhibición del contacto, aunque se ha demostrado que algunos fibroblastos demuestran inactividad después de varios días de cultivo49. Este método utilizó la privación sérica porque se usa más comúnmente para comparaciones de células senescentes, aunque requiere que la célula senescente esté igualmente privada de suero para comparaciones precisas. El suero activa el complejo mTOR y, por lo tanto, la privación sérica tiene varios efectos posteriores en la célula, además de la detención del ciclo celular50. En particular, se ha demostrado que las células senescentes muestran un SASP reducido tras la privación sérica o la inhibición de mTOR51,52.
Otro punto importante a considerar en pSILAC es cuántos puntos de tiempo probar. Este protocolo recolectó células en un solo punto de tiempo (3 días de etiquetado ligero o pesado), lo que simplifica sustancialmente el análisis resultante. La elección del punto de tiempo debe basarse en el objetivo del experimento. Para el análisis global, se espera que 3 días capturen la mayoría de las proteínas, aunque las vidas medias de las proteínas de vida corta que se renuevan completamente dentro de los 3 días (se pierde toda la señal de luz) no se pueden medir en este punto de tiempo. Por el contrario, las proteínas de larga vida con muy poca rotación en 3 días también son difíciles de cuantificar y, a menudo, parecen tener vidas medias extremadamente grandes (del orden de semanas) que generalmente son solo una consecuencia de muy poca acumulación de señal pesada. Debido a la relación no lineal en la proporción de señales peptídicas pesadas y ligeras versus el porcentaje de proteína recién sintetizada en puntos de tiempo más cortos y más largos, la cuantificación de vidas medias podría mejorarse agregando puntos de tiempo de etiquetado adicionales. Para las comparaciones relativas entre dos estados celulares, como en este protocolo, una vida media aproximada puede ser suficiente, pero se pueden usar puntos de tiempo adicionales para mejorar la precisión cuantitativa.
Este protocolo describe cómo realizar un análisis no dirigido basado en DDA de la rotación de proteínas. Sin embargo, los cálculos de recambio de proteínas se pueden aplicar generalmente a cualquier esquema de adquisición que sea capaz de derivar la abundancia relativa de pares de péptidos pesados y ligeros. Por ejemplo, los métodos basados en MS2, como la adquisición independiente de datos (DIA/SWATH), también se pueden aplicar para el cálculo de las tasas de rotación con éxito53. Además, la instrumentación y las canalizaciones de software distintas de las descritas en este protocolo se pueden utilizar para realizar análisis de DDA, identificación de proteínas y cuantificación de proteínas. Cuando se utilizan plataformas de software de cuantificación de proteínas como Skyline para extraer áreas de picos de péptidos, es recomendable inspeccionar manualmente los cromatogramas de iones extraídos en el espacio de trabajo de documentos, identificar picos que se integraron erróneamente y picos no cuantitativos, y curar el documento en consecuencia. Una extensa colección de tutoriales está disponible en línea para Skyline (skyline.ms).
pSILAC representa uno de los métodos más ideales para la cuantificación global de las vidas medias de las proteínas en células cultivadas debido a la multiplexación superior (cobertura del proteoma) y el rendimiento. Si bien pSILAC no proporciona tasas directas de síntesis o degradación, ya que el cambio en la señal ligera y pesada se debe a una confluencia de factores, pSILAC es muy útil para comparaciones entre condiciones y diferentes tipos de células. Los métodos de bajo rendimiento a menudo se dividen en dos tipos: 1) tratamiento de células con cicloheximida para bloquear la síntesis y cosecha de proteínas en intervalos de tiempo después de la adición para monitorear la descomposición, o 2) tratamiento de células con un inhibidor de la descomposición de proteínas y cosecha en intervalos de tiempo después de la adición para monitorear la acumulación de proteínas, infiriendo así las tasas de descomposición de proteínas. La limitación de ambos métodos es que tales tratamientos inevitablemente causarán cambios sustanciales en la fisiología celular. En contraste, pSILAC no requiere una intervención sustancial y teóricamente no tiene efectos detectables en la fisiología celular, ya que los aminoácidos isotópicos difieren en un solo neutrón de sus contrapartes no isotópicas. Por lo tanto, el método descrito aquí para pSILAC representa un protocolo simple para la medición global de las vidas medias de proteínas más fisiológicas en células que no se dividen.
Las alteraciones en el recambio proteico tienen una estrecha relación con el envejecimiento, las enfermedades relacionadas con la edad, la neurodegeneración y la longevidad54,55. Este protocolo describe un método para interrogar estas relaciones mediante el uso de un marcado de isótopos estables de aminoácidos en cultivo celular para medir las tasas de renovación de proteínas en células de senescencia. Sin embargo, existen numerosos métodos análogos para realizar estudios en el contexto del envejecimiento y la neurodegeneración in vivo en organismos enteros como los ratones. De hecho, estos estudios han enfatizado la importancia de medir las tasas de recambio de proteínas en el contexto de las enfermedades relacionadas con la edad 56,57,58,59.
En este estudio, las proteínas ribosómicas y las proteínas que residen en el retículo endoplásmico se destacaron como dos categorías de proteínas con vidas medias disminuidas y aumentadas en células senescentes, respectivamente. Si bien se requiere un análisis adicional de los niveles de estado estacionario para las conclusiones definitivas, estos resultados sugieren además que las células senescentes pueden regular de manera única la traducción a través de la disminución de la vida media de las proteínas ribosómicas. En el futuro, la aplicación de enfoques de marcado de isótopos estables para estudiar la relación entre la senescencia celular y la neurodegeneración in vivo en modelos de ratón será una extensión prometedora del enfoque de etiquetado de isótopos descrito por este protocolo.
Divulgaciones
Los autores no tienen revelaciones.
Agradecimientos
Este trabajo fue apoyado por los Institutos Nacionales de Salud (NIH) y el Programa de Investigación Intramuros (IRP), Instituto Nacional sobre el Envejecimiento (NIA). N.B. fue apoyado por Longevity Impetus Grants y el Programa de Becarios de la Oficina de Suplementos Dietéticos (ODS). La Figura 1 se creó con BioRender.com.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Acetonitrilo (grado LC-MS) | Grainger | AH015 | |
| Bicarbonato de amonio | Millipore-Sigma | 9830 | |
| Antibiótico-Antimicótico (100x) | ThermoFisher | 15240062 | |
| BCA Kit de ensayo | ThermoFisher | 23227 | |
| Ditiothreotol (DTT) | Sigma | D9779 | |
| DMEM, alto contenido de glucosa, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| Suero fetal bovino, certificado, inactivado por calor | ThermoFisher | 10082147 | |
| Ácido fórmico | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | cesio para células | |
| GlycoBlue | ThermoFisher | AM2238 | |
| Yodoacetamida (IAA) | Sigma | I1149 | |
| Fibroblastos pulmonares primarios IMR-90 | ATCC | CCL-186 | |
| iRT Kit (tiempo de retención indexado) | Biognosys | Ki-3002-2 | Patrones de péptidos de tiempo de retención indexado |
| Isopropanol | ThermoFisher | 423835000 | |
| Mascot | Matrix Science | Mascot Daemon 2.8 | Software de búsqueda de bases de datos proteómicas |
| Maxima Reverse Transcritase (200 U/µ L) | ThermoFisher | EP0742 | |
| MEM Solución de aminoácidos no esenciales (100x) | ThermoFisher | 11140050 | |
| Nano LC System | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB Extracción en fase sólida Cartirdges | Waters | 186000383 | |
| Orbitrap Espectrómetro de masas | ThermoFisher | Q Exactive HF Orbitrap | |
| Fenol/Cloroformo/Alcohol isoamílico (25:24:1), EDTA 100 mM, pH 8,0 | ThermoFisher | 327110025 | |
| solución salina tamponada con fosfato (PBS) | ThermoFisher | 10010023 | |
| Pierce Kit de cuantificación de proteínas SILAC (tripsina) -DMEM | ThermoFisher | A33972 | |
| Sistema de PCR en tiempo real QuantStudio 6 | ThermoFisher | ||
| Random Hexamer Primer | ThermoFisher | SO142 | |
| Senescence β-Galactosidasa Staining Kit | Cell Signaling | 9860 | |
| Skyline | University of Washington | Skyline-Daily v21.2.1.424 | Software proteómico qantiativo gratuito y de código abierto. Disponible en www.skyline.ms |
| baño de agua Sonicator | Branson | CPX-952-516R | |
| Reactivo TRIzol | ThermoFisher | 15596018 | Referido como fenol en el texto; |
| peligroso TRYPle | Express ThermoFisher | 12605010 | |
| Tripsina (grado de secuenciación) | Promega | V5113 | |
| TURBO Dnase (2U/ uL) | ThermoFisher | AM2238 | |
| Urea | ThermoFisher | 29700 | |
| Agua (grado LC-MS) | Grainger | AH365 |
Referencias
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
Reimpresiones y permisos
