En este protocolo, describimos un método para la recolección simultánea de tejido cerebral fetal, así como suero no hemolizado de alta calidad del mismo embrión de ratón. Hemos utilizado esta técnica para interrogar cómo la exposición dietética materna afecta los perfiles de macronutrientes y el neurodesarrollo fetal en ratones heterocigotos para Nf1 (Neurofibromatosis Tipo 1).
Artículo de método
Recolección simultánea de cerebro y suero murino fetal para evaluar los efectos de la dieta materna en la nutrición y el neurodesarrollo en la neurofibromatosis tipo 1
En este artículo
Resumen
Resumen
Se ha demostrado que la obesidad materna inducida por la dieta altera el desarrollo neurológico en la descendencia, lo que puede conducir a una reducción de la capacidad cognitiva, hiperactividad y deficiencias en el comportamiento social. Los pacientes con el trastorno genético clínicamente heterogéneo Neurofibromatosis tipo 1 (NF1) pueden presentar déficits similares, pero actualmente no está claro si los factores ambientales, como la dieta materna, influyen en el desarrollo de estos fenotipos y, de ser así, el mecanismo por el cual se produciría tal efecto. Para permitir la evaluación de cómo la exposición materna a la dieta obesogénica afecta a los factores sistémicos relevantes para el neurodesarrollo en NF1, hemos desarrollado un método para recolectar simultáneamente suero no hemolizado y cerebros enteros o microdisecados regionalmente de descendientes fetales de madres murinas alimentadas con una dieta de control frente a una dieta alta en grasas y sacarosa. Los cerebros se procesaron para crioseccionar o congelar rápidamente para su uso en el posterior aislamiento de ARN o proteínas; La calidad del tejido recolectado se verificó mediante inmunotinción. La calidad del suero se verificó mediante el análisis de perfiles de macronutrientes. Utilizando esta técnica, hemos identificado que la dieta obesogénica materna aumenta el colesterol sérico fetal de manera similar entre las crías WT y Nf1-heterocigóticas.
Introducción
La neurofibromatosis tipo 1 (NF1) se considera una RASopatía, un grupo de trastornos caracterizados por mutaciones genéticas de la línea germinal que dan lugar a la activación de la vía de señalización RAS/MAPK (virus del sarcoma RAt/proteína quinasa activada por mitógenos). Los pacientes con RARA NF1 tienen riesgo de desarrollar muchas manifestaciones diferentes, incluyendo tumores benignos y malignos del sistema nervioso central (glioma de la vía óptica 1,2, glioma de alto grado 3,4) y periférico (neurofibroma plexiforme 5,6, tumor maligno de la vaina del nervio periférico 7,8), así como displasias óseas9 y anomalías pigmentarias de la piel10 (pecas axilares, máculas café con leche). El efecto de este trastorno sobre la cognición y el neurodesarrollo está siendo cada vez más reconocido, y los pacientes con NF1 muestran una mayor incidencia de déficits de aprendizaje, hiperactividad y trastorno del espectro autista 11,12,13. Sin embargo, existe una heterogeneidad significativa en el desarrollo de estos fenotipos entre los pacientes 13,14,15,16,17, y no está claro por qué algunos pacientes muestran deterioros cognitivos significativos mientras que otros no se ven afectados. Se ha demostrado que la obesidad materna inducida por la dieta afecta de manera similar el aprendizaje y el comportamiento en la población general 18,19,20,21,22,23,24,25,26,27,28, lo que sugiere que las exposiciones dietéticas maternas diferenciales en NF1 podrían ser una fuente de esta heterogeneidad clínica. En particular, los hijos de madres obesas muestran un mayor riesgo de desarrollar hiperactividad 18,19,20,23,25,26, autismo 19,24,27, déficits de la función ejecutiva21,23 y tienen puntuaciones de CI a escala completa más bajas22,28. Sin embargo, los pacientes con NF1 tienen fenotipos metabólicos alterados en comparación con la población general, incluyendo una menor incidencia de obesidad y diabetes 29,30,31, por lo que no está claro si responderían de manera similar a los estímulos dietéticos.
Para responder a estas preguntas, deseábamos determinar si los cambios inducidos por la dieta obesogénica en el perfil de macronutrientes en la descendencia fetal con Nf1 contribuían a los cambios en el desarrollo neurológico. Previamente hemos recolectado tejido entero de alta calidad y microdisecado regionalmente apropiado para aplicaciones de neurodesarrollo del cerebro fetal32. Sin embargo, la recolección de sangre fetal es un desafío debido al pequeño tamaño corporal y al bajo volumen sanguíneo33. La recolección de sangre a través del drenaje asistido por gravedad después de la decapitación condujo a volúmenes de recolección bajos y hemólisis significativa en nuestras muestras, lo que puede afectar la interpretación de la aplicación posterior. La recolección por aspiración del corazón fetal o de los vasos torácicos, como se ha reportado previamente33, fue técnicamente desafiante y también resultó en hemólisis frecuente. Por lo tanto, desarrollamos un método para la recolección de suero fetal, que utiliza tubos capilares especializados para permitir una recolección de mayor volumen sin un esfuerzo de cizallamiento significativo.
Aquí, presentamos este método para recolectar simultáneamente cerebros embrionarios y suero fetal de cachorros heterocigotos Nf1 expuestos a una dieta alta en grasas y azúcares en comparación con una dieta de control en el útero (Figura 1 y Tabla Suplementaria S1). Los cerebros se crioincrustaron para su posterior análisis por inmunofluorescencia o se microdiseccionaron regionalmente y se congelaron rápidamente para su uso posterior en aplicaciones de biología molecular. Se obtuvo un suero de alta calidad, adecuado para aplicaciones posteriores como el perfil de macronutrientes. Utilizando este método, identificamos que la exposición dietética materna alta en grasas y alta en sacarosa conduce a la elevación de los niveles de colesterol sérico tanto en cachorros heterocigotos WT como Nf1.
Protocolo
Todos los procedimientos con animales en este estudio siguieron las pautas de los NIH y fueron aprobados por el Comité Institucional de Cuidado y Uso de Animales de la Universidad de Washington en St. Louis. Los animales se alojaron con un ciclo estándar de luz:oscuridad de 12 horas y acceso libre a comida y agua.
1. Dieta materna
- Coloque a los ratones hembra en comida de control (CD) o dieta obesogénica (Ob) a las 4 semanas de edad.
- A las 8-12 semanas de edad, establezca un apareamiento cronometrado monitoreando el tapón mucoso de la madre temprano en la mañana para determinar la edad de recolección correcta. Para verificar la obesidad inducida por la dieta, pesa a las hembras en el momento del apareamiento.
NOTA: Se utilizó un rango de 8 a 12 semanas para la configuración inicial del apareamiento para garantizar que las hembras alimentadas con dieta obesogénica tuvieran sobrepeso en comparación con sus contrapartes, lo que no siempre ocurría a las 8 semanas de edad. El día del tapón se considera embrionario día 1 (E1), y todos los animales utilizados en este estudio se recolectaron en E19. Se eligió el punto de tiempo fetal tardío debido a los cambios en el desarrollo neurológico observados previamente en este momento en animales expuestos a la dieta obesogénica (datos no mostrados).
2. Extracción del feto de la madre
- En primer lugar, asegúrese de que la madre tenga un aspecto grávido (forma y plenitud abdominal, palpación abdominal o movimiento fetal). En caso de duda, vuelva a pesar a la hembra para medir el aumento de peso.
NOTA: Las ratas embarazadas tardías deben mostrar al menos 3-4 g de aumento de peso. Para aumentar la probabilidad de concepción en el período de tiempo deseado, se puede agregar aserrín sucio (que contiene orina y feromonas) de la jaula de un macho a la jaula de la hembra diariamente durante 3 días antes del apareamiento para inducirel celo. - Eutanasiar el dique colocándolo en una cámara con una toalla de papel que contenga 3 mL de isoflurano, teniendo cuidado de evitar el contacto directo entre el dique y la toalla de papel empapada en anestésico. Después de que el animal esté sedado, colóquelo sobre una toalla de papel, sujételo por la cola, coloque las tijeras de disección en el cuello y luego fuerce las tijeras hacia arriba hacia la cabeza para realizar la dislocación cervical. Alternativamente, realizar la decapitación después de la sedación con isoflurano.
NOTA: El suero se puede recolectar de la presa en este paso, utilizando una metodología similar a la que se describe a continuación, pero con tubos capilares más grandes. Si esto se desea, se debe realizar la decapitación en lugar de la luxación cervical. Se debe tener cuidado de asegurar que el fenotipo de interés no se vea alterado por la administración de isoflurano inmediatamente antes de la eutanasia. - Coloque la presa con el lado ventral hacia arriba en un plato de 100 mm. Pellizque la piel que cubre el abdomen y haga una incisión en la línea media con unas tijeras de disección. Hacer incisiones adicionales perpendiculares a la incisión de la línea media para crear colgajos de piel que expongan el útero que contiene los embriones.
- Saca el útero de la cavidad abdominal. Con unas tijeras, desconecte el útero del dique. Coloque el saco embrionario intacto ("perlas en un hilo") que contiene los embriones en un plato con solución salina fría y estéril tamponada con fosfato (PBS) 1x. Coloca el plato de fetos con hielo.
NOTA: Como cada camada suele contener de 6 a 10 crías que se cosecharán tanto para el cerebro como para el suero, los fetos se mantienen en hielo para evitar la degradación del tejido. Además, colocar a los cachorros en hielo garantiza una eutanasia adecuada de los cachorros, ya que la eutanasia materna por sí sola no siempre es suficiente. Si solo se desea la recolección de suero, se puede preferir la recolección a temperatura ambiente.
3. Colección de suero fetal
- Retire el feto del saco embrionario diseccionándolo cuidadosamente con pinzas #5. Transfiera el embrión a una placa usando pinzas curvas con 1x PBS fresco y estéril frío.
- Seque suavemente al animal con una toalla de papel para eliminar el líquido amniótico residual y el PBS de la muestra.
- Sostenga al animal por el abdomen. Decapitar parcialmente al animal con micro tijeras haciendo una incisión en el cuello ventral. Asegúrese de que los vasos sanguíneos estén cortados, pero que la piel que mantiene la cabeza aún esté unida.
NOTA: La cabeza debe permanecer unida para que la sangre pueda recogerse del cuerpo y de la cabeza simultáneamente. - Sostenga el cuerpo en un ángulo de 45° con la incisión hacia abajo. Sostenga la minivette (tubo capilar) de 50 μL paralela al sitio de incisión del dique donde la sangre forma una gota. Deje con cuidado que el tubo capilar de 50 μL se llene de sangre.
NOTA: El tubo capilar x2 o el tubo capilar de 100 μL se pueden utilizar para recolectar hasta ~75 μL de sangre. - Coloque la cabeza en un plato nuevo de 60 mm que contenga 1x PBS frío y estéril para una mayor recolección de tejido (sección 4).
- Después de que la sangre esté dentro del tubo capilar, presione el émbolo rápidamente en un tubo de 1,5 ml. Agite el tubo o gírelo rápidamente para asegurarse de que la sangre esté en el fondo del tubo.
- Repita para el resto de la camada.
NOTA: Mantener a las crías en hielo y moverlas rápidamente entre ellas es esencial para reducir el riesgo de coagulación postmortem que limitará el volumen de recolección. - Coagular la sangre a temperatura ambiente durante 30 min.
- Centrifugar las muestras de sangre a 4 °C, 16.000 × g durante 20 min.
- Transfiera el suero a tubos nuevos de 500 μL con una pipeta de 200 μL, sin alterar la pastilla de células sanguíneas en el fondo del tubo.
NOTA: El suero debe ser de color pajizo sin residuos rojos. Cada feto debe producir entre 15 y 30 μL de suero. - Almacene el suero recogido a -80 °C.
4. Recolección de cerebro fetal
- Mirando a través del microscopio de disección, sostenga el hocico con pinzas curvas y use las pinzas # 5 para despegar cuidadosamente la piel de la tapa del cráneo, manteniéndola unida al hocico para facilitar la sujeción. Ángulo # 5 pinzas a 45 ° en relación con el cráneo, perfore con cuidado la membrana transparente que es el cráneo en desarrollo, desplace las pinzas paralelas al cráneo, insértelas debajo de la tapa del cráneo y luego pelar y pelar hacia un lado. Después de quitar un lado, agarre el lado restante con pinzas # 5 y despegue hacia el otro lado.
- Saque suavemente el cerebro del cráneo con una microcuchara y transfiera el cerebro a un plato fresco de 60 mm que contenga 1x PBS frío.
NOTA: En este punto, se pueden fijar e incrustar cerebros enteros para la inmunotinción. Véase la metodología publicada anteriormente32. - Si el tejido debe congelarse rápidamente para otras aplicaciones moleculares, subdiseccione el área de interés. A continuación se describe el aislamiento del tejido periventricular alrededor de los ventrículos lateral, tercero y cuarto.
- Usando las pinzas curvas, sostenga el cerebro en la unión del cerebro posterior y el prosencéfalo con la mano no dominante. Con la mano dominante, sostenga el bisturí con la hoja paralela a la superficie del cerebro. Presione firmemente hacia abajo en la región cortical media (Figura 1).
- Todavía sosteniendo el cerebro posterior, haga una segunda incisión delante del cerebro posterior para separarlo del prosencéfalo (Figura 1). En la sección más anterior, busque dos pequeños espacios semicirculares ubicados dentro del plano horizontal, que son los ventrículos laterales. Use las pinzas curvas colocadas en el centro de cada ventrículo para mantener el cerebro en su lugar, diseccione cuidadosamente el revestimiento con pinzas # 5 y retírelo a un tubo de microcentrífuga limpio de 1.5 mL.
- En la sección media, busque un pequeño espacio lineal en la superficie ventral, que es el tercer ventrículo. Con las pinzas #5, pellizque con cuidado el revestimiento a cada lado de la superficie ventricular, luego retírelo a un tubo de microcentrífuga de 1.5 mL limpio y nuevo.
- En la sección más posterior, busca un pequeño espacio lineal en el centro del cerebro posterior, que es el cuarto ventrículo. Diseccione el revestimiento en ambos lados con pinzas # 5, luego retírelo a un tubo de microcentrífuga de 1.5 mL limpio y nuevo.
NOTA: Si el corte del cerebro posterior no es un corte limpio, el tejido del cuarto ventrículo puede oscurecerse y/o destruirse. - Para los pasos 4.3.2-4.3.4, inmediatamente después de que el tejido se haya colocado en los tubos de microcentrífuga, coloque los tubos rápidamente en un recipiente crioseguro que contenga nitrógeno líquido.
NOTA: Los tubos se pueden mantener en nitrógeno líquido hasta que se hayan diseccionado las muestras restantes. PRECAUCIÓN: El nitrógeno líquido puede causar congelación severa. No meta las manos directamente en nitrógeno líquido y evite salpicaduras. - Coloque los tubos congelados sobre hielo seco y transfiera el pañuelo congelado a un congelador a -80 °C hasta su uso.
Resultados
Para ilustrar la calidad del tejido cerebral obtenido a través de esta técnica, mostramos muestras de cerebros fetales de ratones Nestin-CFPnuc35, inmunoteñidos para GFAP según una técnica previamente reportada32. Las células Nestin+ se observan recubriendo el ventrículo lateral (Figura 2A), con filamentos GFAP+ que se extienden desde la superficie. No observamos diferencias entre la expresión de nestina o GFAP en el ventrículo lateral de los ratones con EC frente a los ratones expuestos a Ob en las cepas heterocigóticas WT o Nf1 (Figura 2A,B). A continuación, evaluamos la calidad del tejido microdisecado. Primero realizamos Western blot36 para la proteína de mantenimiento β-actina en el tejido microdisecado aislado de los ventrículos laterales de los ratones EC frente a los ratones expuestos a Ob. Todas las muestras mostraron una fuerte expresión de β-actina (Figura 2C), como se esperaba. A continuación, aislamos el ARN del tejido microdisecado según la metodología previamente informada32. El ARN aislado mostró una alta pureza (260/280 ≥ 2) e integridad (valores de RIN ≥ 9), lo que indica ARN no degradado de alta pureza (Figura 2D).
A continuación, comparamos los diferentes métodos de aislamiento sérico. Utilizando nuestro método minivette, recolectamos rutinariamente mayores volúmenes de suero no hemolizado, mientras que el drenaje por gravedad y la punción torácica resultaron en una recolección de volumen muy variable y hemólisis en muchas muestras (Figura 3A, B). Para ilustrar la calidad del suero obtenido a través de esta técnica, medimos los niveles de colesterol sérico total utilizando el reactivo de colesterol total según las instrucciones del fabricante. Los niveles de colesterol fetal estaban dentro del rango esperado para las crías de gestación tardía según estudios previos en fetos humanos37. Los niveles aumentaron en los ratones expuestos a Ob en comparación con los expuestos a CD tanto para las crías de tipo salvaje (Figura 3C, izquierda) como para las heterocigóticas Nf1 (Figura 3C, derecha). Tenga en cuenta que el panel derecho muestra datos combinados de dos cepas heterocigóticas Nf1 diferentes con mutaciones de la línea germinal identificadas por el paciente (R681X, C383X)32,38,39, ya que se observaron perfiles similares en ambas cepas.
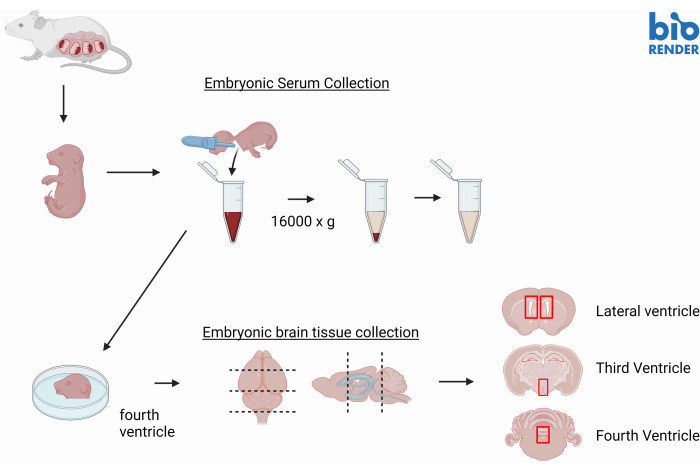
Figura 1: Resumen gráfico del flujo de trabajo. Las crías se aíslan primero de las madres preñadas. A continuación, se extrae el suero de las crías. Por último, se aíslan cerebros enteros de las crías y, si se desea, se microdiseccionan en busca de regiones de interés. Gráfico creado con BioRender.com. Haga clic aquí para ver una versión más grande de esta figura.
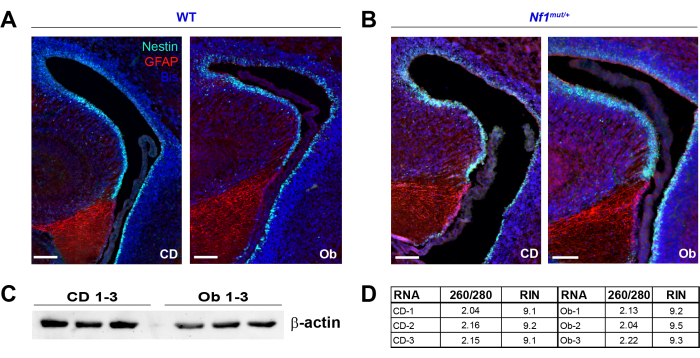
Figura 2: Resultados ilustrativos, tejido cerebral. (A) Los cerebros criseccionados de ratones Nestin-CFPnuc , que expresan una proteína fluorescente cian localizada nuclearmente bajo el control del promotor Nestin, se recolectaron con este método y se inmunotindieron para GFAP (rojo) según la metodología previamente informada32. Las células nestin-positivas se visualizan a través de la expresión endógena de Nestin-CFPnuc (verde). Los núcleos se contratiñeron con bis-benzimida (azul). No hubo diferencias significativas entre los cerebros con TC y los cerebros con WT expuestos a Ob. Barra de escala = 100 μm. (B) Nestin-CFPnuc; Las críasde Nf1 mut/+ se evaluaron de manera similar. La distribución de GFAP y Nestin-CFP pareció similar a la WT y no varió con las condiciones dietéticas. Barra de escala = 100 μm. (C) La proteína se aisló del tejido microdisecado del VI. La transferencia de Western se realizó según la metodología previamente reportada36 con 20 μg de proteína cargada por carril. Se detectó una fuerte expresión de β-actina en todas las muestras. (D) El ARN se aisló a partir de tejido microdisecado según la metodología previamente reportada32. La calidad del ARN se evaluó mediante proporciones 260/280 y valores de RIN. Todas las muestras mostraron excelentes relaciones 260/280 (≥2) y valores de RIN (≥9), lo que indica un buen aislamiento del ARN no degradado. Abreviaturas: CFP = proteína fluorescente cian; GFAP = proteína ácida fibrilar glial; WT = tipo salvaje; VI = ventrículo lateral; RIN = número de integridad del ARN. Haga clic aquí para ver una versión más grande de esta figura.
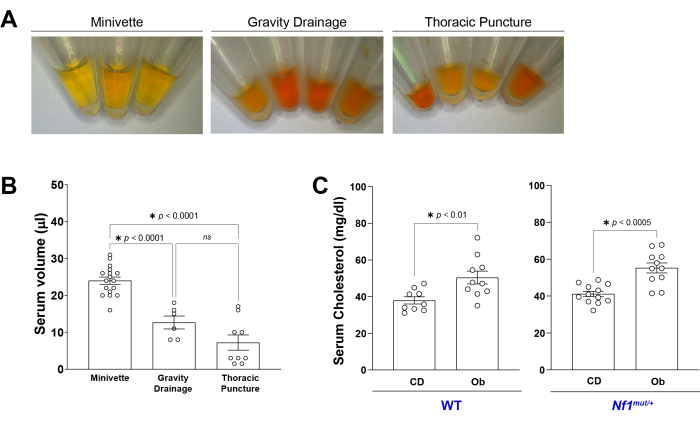
Figura 3: Resultados ilustrativos y suero. (A) Se recolectó suero de cada uno de los métodos descritos. La recolección con la minivette permitió la recolección rutinaria de suero no hemolizado en comparación con el drenaje asistido por gravedad y la punción torácica. (B) Se muestran los volúmenes típicos de recolección de suero. La colección Minivette permitió una colección más reproducible de mayores volúmenes de suero. Significación estadística determinada por ANOVA de un factor con comparaciones múltiples. Barras de error: SEM. (C) El colesterol sérico total se midió a partir de CD frente a WT expuesto a Ob (izquierda) y suero fetal heterocigoto Nf1 (derecha); Los animales expuestos a ob mostraron un colesterol sérico más alto en ambos genotipos. Significación estadística determinada por t-test. Barras de error: SEM. Abreviaturas: WT = tipo salvaje; CD = dieta de control; Ob = dieta obesogénica. Haga clic aquí para ver una versión más grande de esta figura.
Tabla suplementaria S1: Composiciones dietéticas. Se muestra la composición de las dietas control y obesogénicas utilizadas en este manuscrito. NOTA: Para una dieta baja en grasas y sin sacarosa que controle mejor los componentes dietéticos individuales en D12331, se puede preferir la dieta D12328 (researchdiets.com). Haga clic aquí para descargar este archivo.
Discusión
Los métodos tradicionales para recolectar sangre de ratones incluyen retrobulbar, vena de la cola, vena safena, vena facial y sangrado de la vena yugular 40,41,42. Desafortunadamente, estos métodos no son ideales para la recolección de sangre embrionaria debido al tamaño del animal y a la pequeña y delicada vasculatura. La recolección de sangre a través del drenaje asistido por la gravedad después de la decapitación condujo tanto a bajos volúmenes de recolección como a una hemólisis significativa en nuestras muestras. Los protocolos anteriores informaron de una mejora de los volúmenes mediante el uso de una aguja modificada de 20 G para drenar la sangre de los vasos sanguíneos torácicos33; Sin embargo, encontramos esta técnica técnicamente desafiante y observamos altas tasas de hemólisis, lo que la hace inadecuada para muchas aplicaciones posteriores. Nuestro método tiene la ventaja de la recolección a través del flujo sanguíneo pasivo, lo que disminuye el riesgo de hemólisis por estrés puro inducido por aspiración. El émbolo del tubo capilar también proporciona una forma rápida y eficiente de suministrar sangre al tubo de recolección, minimizando la exposición al aire y limitando la fragmentación de los coágulos de sangre. Es importante destacar que el tejido cerebral entero o microdisecado regionalmente se puede recolectar posteriormente del mismo animal, lo que reduce las necesidades totales de los animales experimentales.
Este protocolo no está exento de ajustes para optimizar la calidad y la eficiencia de la recolección. Para la recolección de suero, es crucial eliminar suavemente el líquido embrionario y el PBS adicional del animal antes de la recolección de sangre, ya que el exceso de líquido puede hacer que el animal se vuelva resbaladizo y aumentar la probabilidad de una posición deficiente o inestable que afecte negativamente la calidad de la recolección de sangre. Además, la posición de los dedos mientras se sostiene el embrión es fundamental, ya que la sangre se adherirá a un dedo enguantado durante la recolección si el dedo está adyacente al tubo capilar. También es importante mantener la abertura del tubo capilar adyacente a la sangre que fluye, en lugar de sumergirla en ella; La recolección capilar se interrumpirá si el tubo se sumerge. Por último, hay que considerar cuidadosamente la aplicación posterior para optimizar la recogida de suero. Por ejemplo, la glucosa se degrada con el tiempo en tubos no tratados a temperatura ambiente, por lo que puede ser necesaria la recolección en tubos de fluoruro de sodio o EDTA para cuantificar con precisión los niveles de glucosa43,44.
Para la recolección de tejido cerebral, la extracción cuidadosa de la piel y el cráneo transparente en ambos lados de la cabeza es fundamental para una extracción limpia. Si solo se disecciona un lado, el cerebro puede pegarse al cráneo con un intento de extirpación, lo que resulta en desgarro y distorsión del tejido. Para seccionar el cerebro, es importante hacer cortes individuales y limpios para separar la corteza anterior de la media y la corteza media del cerebro posterior. Tener múltiples cortes puede alterar la integridad estructural del tejido u oscurecer su punto de referencia para la microdisección posterior. Por último, mantener las muestras en hielo hasta su fijación o congelación instantánea es crucial para evitar la degradación de la muestra.
Si bien preferimos este método debido a la recolección rutinaria de suero no hemolizado de mayor volumen, no está exento de inconvenientes. Aunque la hemólisis se reduce en comparación con otras técnicas, este método no elimina el riesgo. El tubo capilar también puede obstruirse con un coágulo de sangre una vez que la sangre deja de fluir, por lo que es importante trabajar rápidamente después de la decapitación para mitigar el riesgo de una recolección fallida debido a la coagulación. Mantener las muestras en hielo, que se hace para preservar la integridad de la muestra en este protocolo, también puede afectar negativamente a algunos fenotipos y puede no ser apropiado para todas las aplicaciones.
En conclusión, esta metodología se puede utilizar para aislar simultáneamente suero y cerebros enteros o microdisecados regionalmente del mismo feto. Esta técnica se puede utilizar para abordar cómo los factores sistémicos, como un cambio en el perfil de macronutrientes inducido por la dieta materna, podrían afectar el desarrollo neurológico en la NF1 u otros trastornos.
Divulgaciones
Los autores no tienen ningún conflicto de intereses.
Agradecimientos
N Brossier cuenta con el apoyo del Programa Francis S. Collins Scholars en Investigación Clínica y Traslacional de Neurofibromatosis financiado por el Programa de Aceleración Terapéutica de Neurofibromatosis (NTAP, Subvención # 210112). Esta publicación fue financiada en parte por el NTAP de la Facultad de Medicina de la Universidad Johns Hopkins. Su contenido es responsabilidad exclusiva de los autores y no representa necesariamente los puntos de vista oficiales de la Facultad de Medicina de la Universidad Johns Hopkins. Apoyo adicional del St. Louis Children's Hospital (FDN-2022-1082 a NMB) y el Centro de Investigación de la Diabetes de la Universidad de Washington en St. Louis (NIH P30 DK020579). La microscopía se realizó mediante el uso del Centro de Imágenes Celulares de la Universidad de Washington (WUCCI), con el apoyo de la Facultad de Medicina de la Universidad de Washington, el Instituto de Descubrimiento Infantil de la Universidad de Washington y el Hospital Infantil de St. Louis (CDI-CORE-2015-505 y CDI-CORE-2019-813) y la Fundación para el Hospital Judío Barnes (3770 y 4642). Grigori Enikolopov (Renaissance School of Medicine, Stony Brook University, NY) proporcionógenerosamente 35 ratones Nestin-CFPnuc para una mutación de la línea germinal R681X o C383X 32,38,39 y David Gutmann (Facultad de Medicina de la Universidad de Washington, St. Louis, MO). La Figura 1 se creó con BioRender.com.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| #5/45 Pinzas | Dumont | 11251-35 Forma de | la punta: angulado 45 grados; |
| 4200 Tapestation | Agilent | G2991BA | Verificar la integridad y la calidad del ARN, medición de los valores RIN |
| Contenedor de nitrógeno líquido de sobremesa | Thermo Fisher | 2122 | U otro contenedor crioseguro |
| Control Chow | PicoLab | 5053 | También se pueden utilizar dietas de investigación D12328 (bajas en grasa, bajas en azúcar). |
| Pinzas curvas | Cole Parmer | UX-10818-25 | Forma de la punta: curvada 90° |
| Mango de cuchilla de disección | Cole-Parmer Essentials | 10822-20 | SS Siegel-Type, cuchillas #10 a #15 |
| EMS SuperCut Tijeras | disección Ciencias del microscopio electrónico | 72996-01 | 5½ " (139,7 mm), Anticuerpo |
| GFAP | Abcam | ab7260 | Diluido 1:350. Bloquea con un 10% de suero que contiene 0,3 M de glicina. |
| Cuchillas quirúrgicas de acero al carbono Glassvan, tamaño 11 | MYCO medical | 2001T-11 | #11 permiten un corte recto y plano |
| Cuchara de laboratorio Micro | Az Scilab | A2Z-VL001 | acero inoxidable, esterilizable en autoclave |
| Micro tijeras | Rubis | 78180-1C3 | modelo 1C300 |
| Minivette POCT neutro | Sarstedt | 17.2111.050 | volumen nominal: 50 y micro; L, sin preparación |
| Nanorop | Thermo Fisher | 13-400-519 | Medir la concentración de ARN, proporciones 260/280 |
| Dieta obesogénica | Researchdiets.com | D12331 | alto en grasas y sacarosa |
| Thermo Fisher | TR13421 | Detección colorimétrica | |
| β-anticuerpo de actina | Señalización celular | 8457 | Diluido 1:1.000. |
Referencias
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
Reimpresiones y permisos
