El parto prematuro (parto < 37 semanas) es un problema de salud mundial urgente con opciones de prevención y tratamiento subóptimas. Presentamos un modelo de ratón de parto prematuro inducido por infección bacteriana vaginal ascendente y describimos cómo analizar la morbilidad y mortalidad neonatal resultante.
Artículo de método
Modelado de infección vaginal ascendente, parto prematuro y morbilidad neonatal en ratones
En este artículo
Resumen
Resumen
El parto prematuro sigue siendo una causa principal de mortalidad y morbilidad neonatal a nivel mundial, con tratamientos preventivos limitados. Existe una necesidad imperiosa de clínicamente
modelos animales relevantes y reproducibles para la traducción de intervenciones innovadoras
para que se convierta en una realidad. Existen varios modelos de ratones de parto prematuro. Sin embargo, no recapitulan las morbilidades neonatales humanas, incluidos los cambios neuropatológicos y
lesión pulmonar, que son secuelas características de la infección ascendente y el parto prematuro. Hemos caracterizado un modelo que, hasta donde sabemos, es el único que imita el escenario humano en el que estas morbilidades neonatales están presentes después de la inducción del parto prematuro por una bacteria viva que asciende desde la vagina. Este artículo demuestra la administración intravaginal de una cepa bioluminiscente de Escherichia coli y detalla la evaluación de los resultados neuropatológicos y la lesión pulmonar mediante técnicas inmunohistoquímicas e histológicas.
Introducción
El parto prematuro (TBP; parto < las 37 semanas) es el principal contribuyente a la mortalidad neonatal en todo el mundo 1,2. Representa el 11% de todos los nacimientos, es un importante problema de salud mundial con una etiología compleja que no se conoce bien, lo que dificulta su predicción y prevención 3,4,5. Los sobrevivientes neonatales de PTB pueden experimentar resultados adversos en el desarrollo neurológico, incluida la parálisis cerebral, trastornos respiratorios, como la displasia broncopulmonar (DBP) y trastornos gastrointestinales como la enterocolitis necrotizante (ECN)6,7,8. Por lo tanto, existe una necesidad urgente de modelos animales clínicamente relevantes y reproducibles para abordar las vías biológicas que contribuyen al PTB y desarrollar intervenciones innovadoras.
Hay una serie de posibles mecanismos subyacentes a la TBP espontánea, como la senescencia decidual, la ruptura de la tolerancia materno-fetal, el estrés, la longitud cervical corta o el daño cervical9. Sin embargo, se informa que al menos el 40% de los PTB espontáneos están asociados con la infección microbiana10,11. Los microbios que ascienden desde el canal vaginal a través del cuello uterino hasta el útero son hipótesis y ampliamente aceptados como una vía común de infección debido a la correlación entre los microbios aislados del líquido amniótico y los residentes en la microbiota vaginal 12,13,14. Los microorganismos que a menudo se asocian con el parto prematuro incluyen especies de Mycoplasma, Ureaplasma, Fusobacterium y Streptococcus, y la mayoría de los casos son polimicrobianos15,16.
Los ratones se utilizan a menudo para modelar el PTB, siendo el enfoque más común la administración de la toxina bacteriana lipopolisacárido (LPS), que puede administrarse por vía intrauterina, intraperitoneal o intraamniótica para inducir los niveles de inflamación necesarios para iniciar el parto17. Sin embargo, el LPS no modela la infección microbiana viva y, lo que es más importante, los resultados neonatales no se pueden medir en estos modelos, ya que el LPS induce la muerte fetal18. En los últimos años, se han desarrollado modelos animales de infección bacteriana vaginal ascendente, pero recapitular tanto el parto prematuro como los resultados neonatales asociados ha sido un desafío 19,20,21,22,23,24.
Nuestro grupo ha establecido un modelo novedoso de infección bacteriana vaginal ascendente, parto prematuro y morbilidad neonatal que recapitula la fisiopatología del PTB humano25. Aquí, demostramos cómo evaluar la neuropatología neonatal y la lesión pulmonar en crías expuestas a infección vaginal ascendente materna con una cepa patógena de Escherichia coli (E. coli) que se ha relacionado con la meningitis neonatal humana. Este modelo ofrece una oportunidad única para explorar la fisiopatología de la infección ascendente, así como para proporcionar los medios para evaluar la efectividad de las intervenciones de trabajo de parto prematuro para mejorar los resultados neonatales.
Protocolo
Los procedimientos se llevaron a cabo bajo una Licencia del Ministerio del Interior del Reino Unido (PAD4E6357) de acuerdo con la Ley de Procedimientos Científicos Animales (1986) y las pautas ARRIVE. La temperatura (19-23 °C), la humedad (~55%) y los ciclos de luz/oscuridad de 12 h se controlaron estrictamente. Los ratones machos vírgenes C57BL / 6 Tyrc-2J (de 6 a 12 semanas) se aparearon durante la noche durante 16 a 18 h. La evidencia del tapón copulatorio se asignó como día embrionario (E) 0,5.
E . coli patógena O18:K1 (A192PP)26, una cepa de A192 (DSM. No. 10719)27, fue modificado para contener el operón lux (luxCDABE), originario del simbionte nematodo Photorhabdus Luminescens ATCC29999 (cepa Hb), e incluyendo un casete de resistencia a la kanamicina (Km2)28. Esta cepa está clasificada como Grupo de Peligro 2 por el Comité Asesor del Gobierno del Reino Unido sobre Patógenos Peligrosos (ACDP). Use el equipo de protección personal (EPP) adecuado y siga las pautas locales al manipular y desechar agentes biológicos.
1. Modelo de ratón de infección bacteriana vaginal ascendente
- Preparación de cultivos de E. coli
- Preparar el caldo Luria-Bertani (LB) disolviendo el polvo en agua destilada (dH2O) para hacer una solución al 20% y esterilizar en autoclave. Una vez que el LB se haya enfriado a temperatura ambiente, agregue 50 μg / ml de kanamicina. Conservar a 4 °C hasta 1 semana.
- Prepare una solución de gel plurónico F127 al 20% disolviendo el sólido en solución salina estéril tamponada con fosfato (PBS). Agitar en vórtice para mezclar y agitar a 4 °C durante la noche.
- Agregue 10 ml de caldo LB tratado con antibióticos a un recipiente universal estéril de 30 ml. Retire un stock de glicerol congelado de E. coli del almacenamiento a -80 °C. Con una punta de pipeta estéril, raspe el caldo de glicerol congelado de E. coli para cubrir ligeramente el extremo de la punta y expulse la punta directamente en el caldo LB. Asegure el recipiente universal con parafilm, etiquételo como un riesgo biológico y colóquelo en un agitador orbital durante la noche (200 rpm) a 37 ° C.
- A la mañana siguiente, diluir el cultivo bacteriano 1:100 (0,1 mL de cultivo + 9,9 mL de caldo LB fresco) y devolverlo al agitador orbital durante 1,5-3 h (200 rpm a 37 °C), comprobando regularmente el crecimiento del cultivo midiendo la absorbancia a 600 nm. Pipetee 100 μL del cultivo por duplicado en una placa transparente de 96 pocillos de fondo plano. Mida la absorbancia en un espectrofotómetro con la corrección de longitud de trayectoria activada. Un OD600 entre 0,5 y 0,7 significa la fase logarítmica media del crecimiento.
- Cuando se alcanza OD600 0.5-0.7 (~ 108-9 unidades formadoras de colonias [UFC]), retire 100 μL del cultivo bacteriano y diluya en 900 μL de PBS estéril. Centrifugar a 14.000 × g durante 1 min para lavar el pellet bacteriano y retirar el caldo LB. Retire el sobrenadante, vuelva a suspender el gránulo bacteriano en PBS estéril y diluya 1:10,000 en PBS estéril (a 102-3 UFC).
- Desinfecte todas las puntas y recipientes expuestos a bacterias antes de desecharlos.
- Anestesia
- En E16.5, anestesiar ratones preñados mediante la inhalación de isoflurano (5% para inducción, 1,5% para mantenimiento en oxígeno). Transfiera el flujo de anestesia y luego el animal al cono de la nariz, colocando a la hembra en posición prona. Confirme la anestesia mediante la ausencia de un reflejo de pellizco en el dedo del pie y mantenga el isoflurano en el porcentaje mínimo requerido para el procedimiento.
PRECAUCIÓN: El isoflurano es un irritante de los ojos y la piel y un tóxico para el sistema nervioso central. Use el EPP adecuado. Utilice siempre un sistema de barrido. - Administrar 20 μL de E. coli en fase medialogarítmica (1 × 10²-3 UFC resuspendidas en PBS estéril) o PBS estéril (control del vehículo) en la vagina utilizando una punta de pipeta estéril de 200 μL (Figura 1). Con una punta de pipeta nueva y estéril de 200 μl, administre 20 μl de gel Pluronic Gel F127 al 20 % en la vagina para evitar fugas bacterianas. Con una gasa estéril, aplique polvo de quinina en el introito para disuadir a los ratones de limpiar la suspensión bacteriana. Registre la fecha y hora del tratamiento.
NOTA: Las UFC utilizadas se basaron en experimentos de titulación para lograr el fenotipo deseado (parto prematuro con crías vivas). La UFC se puede determinar realizando diluciones en serie y siembra en placas de agar LB29. - Enjaular individualmente a los animales en jaulas ventiladas individualmente (IVC) y permitir que se recuperen de la anestesia antes de devolver la jaula a la sala de espera; marque claramente la jaula como un peligro biológico. Supervise a los animales hasta que se haya reanudado su comportamiento normal.
NOTA: Este procedimiento no debe tomar más de 5 minutos y los animales deben recuperarse rápidamente (dentro de 2-5 minutos).
- En E16.5, anestesiar ratones preñados mediante la inhalación de isoflurano (5% para inducción, 1,5% para mantenimiento en oxígeno). Transfiera el flujo de anestesia y luego el animal al cono de la nariz, colocando a la hembra en posición prona. Confirme la anestesia mediante la ausencia de un reflejo de pellizco en el dedo del pie y mantenga el isoflurano en el porcentaje mínimo requerido para el procedimiento.
- Medición de los resultados gestacionales
- Configure CCTV colocando una cámara en el exterior de cada jaula para monitorear a los ratones en busca de signos de parto y parto de cachorros. Registre el tiempo transcurrido hasta el parto como el número de horas desde el momento de la administración intravaginal de E. coli o PBS (paso 1.2.2) hasta el parto del primer cachorro.
- Registre el número de cachorros vivos / muertos en el momento del parto y calcule un porcentaje de supervivencia por camada. Observe a la madre y a las crías diariamente, registrando la supervivencia de las crías hasta 7 días postnatales y asegurando la recuperación de las madres. Tome otras medidas, como el peso y la longitud del cachorro, durante este período.
NOTA: Las señales de parto incluyen un mayor aseo, girar en círculos y estirar y patear las patas traseras. Como se trata de una infección bacteriana viva, las madres desarrollarán síntomas con el tiempo (generalmente 24 h después del tratamiento). La hembra debe recuperarse de la infección, pero si todavía presenta síntomas de infección después del parto, no ha construido un nido o alimentado a sus cachorros durante el primer día, entonces sacrificar humanamente a los animales utilizando métodos de la Lista 1 (como la exposición al CO2 en una concentración creciente y confirmar la muerte por dislocación cervical).
- Imágenes de bioluminiscencia
- Después de la inoculación bacteriana, obtenga imágenes de las hembras a las 24 h y 48 h para rastrear la propagación de la infección, como se describe a continuación. Imágenes de las crías en el día postnatal (P)0 hasta P14 sin necesidad de anestesia.
- Después de abrir el software de imágenes, haga clic en Inicializar y espere a que la cámara alcance la temperatura de funcionamiento (la barra de temperatura se volverá verde y se "bloqueará"). Marque la casilla de Imágenes luminiscentes y confirme que el filtro de excitación esté configurado en Bloquear y el filtro de emisión esté configurado en Abierto.
- Anestesiar a las hembras adultas mediante la inhalación de isoflurano (5% para inducción, 1,5% para mantenimiento en oxígeno). Coloque a los animales en posición supina en la máquina de imágenes de bioluminiscencia (con una platina calentada) mientras mantiene la anestesia de los ratones. Seleccione Tiempo de exposición automático o ajuste manualmente el tiempo de exposición (rango de exposición: 1 min - 5 min). Después de las imágenes, devuelva a los animales a sus jaulas para que se recuperen de la anestesia antes de devolverlos a la sala de espera.
- Para medir cuantitativamente la radiación de los fotones, seleccione regiones de interés (ROI) en las imágenes del ratón y registre los fotones por segundo por centímetro cuadrado por esteradián (fotones ∙ (segundo cm2) -1 ∙ SR-1).
2. Análisis de tejido fetal y neonatal
- Recolección de tejido perinatal
- En E18.5, sacrifique la madre por exposición al aumento de la concentración deCO2 y confirme la muerte por luxación cervical y realice una mini laparotomía para extirpar el útero; Luego, haga una incisión en el útero con unas tijeras.
- Si recolecta líquido amniótico, haga una pequeña incisión en las membranas y recoja el líquido con una pipeta Pasteur o una jeringa sin aguja.
- Con fórceps, con una mano sostenga el exterior del útero en el punto donde se adhiere la placenta y, con fórceps curvos en la otra mano, separe suavemente la placenta de la pared uterina interna separando los tejidos, guiando cuidadosamente al feto, con las membranas y la placenta unidas, fuera del útero. Nuevamente, con fórceps en cada mano, sostenga suavemente la placenta y agarre y arranque las membranas en el punto donde se encuentran con la placenta (asegúrese de que se desprendan limpiamente).
- Ahora que los tejidos están separados, recolecte los tejidos gestacionales necesarios (p. ej., útero, placenta, membranas fetales, cuello uterino y vagina) y diseccione los tejidos fetales (p. ej., cerebro, pulmones e intestino).
- Congele inmediatamente los tejidos en hielo seco o en nitrógeno líquido y / o fije los tejidos en paraformaldehído (PFA; 4% en PBS).
- Almacenar el tejido congelado a -80 °C y fijar los tejidos durante 24-48 h; a continuación, conservar en sacarosa al 30% a 4 °C.
PRECAUCIÓN: El PFA es inflamable y puede causar irritación ocular, cutánea y respiratoria. Prepare una solución al 4% en un gabinete de bioseguridad y use el EPP adecuado cuando lo manipule.
- Recolección de tejido postnatal
- En P7, anestesiar a las crías con isoflurano (5% para inducción, 1,5% para mantenimiento en oxígeno).
- Realice la exanguinación y la perfusión tisular haciendo una incisión en la aurícula derecha e inyecte 10 ml de PBS en el ventrículo izquierdo. Decapitar el cadáver y extraer el cerebro y los pulmones con tijeras y fórceps estériles. Procese y almacene el tejido como se describe anteriormente.
NOTA: El tejido materno y fetal congelado se puede analizar en busca de mediadores inflamatorios y de otro tipo mediante qPCR, ELISA y western blot. Los protocolos para estas técnicas están fácilmente disponibles en los fabricantes de reactivos o en otras publicaciones 25,30,31.
- Criosección de cerebros fetales y neonatales
- Con una cuchilla, retire el cerebelo para crear una superficie plana y congele el tejido en hielo seco. Monte el tejido congelado en el portamuestras utilizando un compuesto de temperatura de corte óptima (OCT) y cubra el tejido con una capa delgada de OCT. Deje congelar (1-2 min).
- Con un criostato ajustado a -20 °C, asegúrese de que la palanca esté bloqueada y cargue el portamuestras. Ajuste finamente la posición del tejido y bloquéelo en su lugar. Recorte el tejido y comience a recolectar secciones de tejido en microportaobjetos de la fusión del cuerpo calloso, congelando inmediatamente las secciones en hielo seco. Corte 50 secciones seriadas de 40 μm de cada tejido.
PRECAUCIÓN: Tenga cuidado con la cuchilla afilada. - Almacenar las secciones congeladas en microportaobjetos a -80 °C.
- Inmunohistoquímica
NOTA: El siguiente protocolo se puede utilizar para identificar astrocitos (proteína ácida fibrilar glial; GFAP), microglía (factor inflamatorio 1 del aloinjerto; IBA-1) y neutrófilos (miembro de la familia G del antígeno linfocitario 6; Ly6G). La información sobre anticuerpos se puede encontrar en Cuadro 1.- Seleccione cinco secciones por cerebro, separadas por 400 μm, lo que permitirá la evaluación de diferentes regiones cerebrales a profundidades variables del cerebro. Rehidratar las secciones congeladas con una gota de dH2O y extender y desplegar el tejido con dos pinceles finos. Seque el pañuelo bajo un ventilador durante 20-30 min. Con un bolígrafo hidrofóbico (PAP), dibuje con cuidado alrededor del tejido sin tocarlo.
- El día 1, prepare formaldehído (FA) al 4% agregando 5,4 ml de formaldehído en 50 ml de tampón de fosfato (PB) 0,1 M para una cubeta de 50 ml (capacidad de 15 portaobjetos). Sumerja los portaobjetos en FA durante 5 min para fijar las criosecciones, permitiendo la adhesión a los portaobjetos e inmovilizar los antígenos.
PRECAUCIÓN: La FA es inflamable y puede causar irritación ocular, cutánea y respiratoria. Prepare una solución al 4% en un gabinete de bioseguridad y use el EPP adecuado cuando lo manipule. - Preparar suero de albúmina bovina (BSA) al 0,1% añadiendo 0,4 g de BSA a 400 mL de 0,1 M PB. Lave las secciones 2 veces sumergiéndolas en 0,1 M PB, seguido de un lavado en BSA (~ 3 s por lavado). Almacenar diapositivas en
cubetas que contienen BSA hasta que se necesiten. - Prepare las cámaras de humedad humedeciendo papel de seda con dH2O y colóquelas en la cámara, drenando el exceso de agua.
- Preparar suero de cabra al 5% (50 μL de suero de cabra en 1 mL de 0,1 M PB). Seque cuidadosamente el portaobjetos alrededor de la sección de tejido con papel de seda, asegurándose de que el borde de la pluma PAP esté intacto, luego aplique 50 μL de la solución por sección de tejido. Incubar en la cámara de humedad durante 30 min.
- Retire el suero golpeando el portaobjetos sobre papel de seda limpio y agregue el anticuerpo primario diluido en BSA (los anticuerpos y las diluciones se presentan en la Tabla 1). Incubar durante la noche a 4 oC.
- El día 2, incube el anticuerpo secundario en suero de ratón (ver Tabla 1) durante 30 min a 37 oC y agréguelo a BSA (dilución 1:100) (p. ej., 5 ml de BSA + 100 μl de suero de ratón + 50 μl de anticuerpo secundario).
- Lave los portaobjetos 2 veces sumergiéndolos (~ 3 s) en BSA y luego una vez en 0,1 M PB. Sostenga los portaobjetos en cubetas que contengan BSA y seque el borde alrededor de cada sección de tejido. Aplicar 50 μL de la solución de anticuerpos secundarios por sección de tejido e incubar durante 1 h en la cámara de humedad.
- Prepare el complejo de biotina de avidina (ABC) (dilución al 0,1%) agregando 10 μL de A y 10 μL de B en 1 mL de 0,1 M PB. Sumerja (~3 s) los portaobjetos 2 veces en BSA y una vez en 0,1 M PB, luego coloque los portaobjetos en una cubeta que contenga 0,1 M PB. Seque los portaobjetos, aplique 50 μl de solución ABC por portaobjetos e incube durante 1 h en la cámara de humedad.
- Prepare la solución de diaminobenzidina (DAB). Pesar 25 mg de DAB por cubeta, disolver en 50 ml de PB 10 mM y filtrar con papel de filtro n.º 4.
PRECAUCIÓN: El DAB es un peligro para la salud con posible mutagenicidad y carcinogenicidad en las células germinales. Use el EPP adecuado y deséchelo de manera segura. - Lave los portaobjetos 3 x 3 s con 10 mM PB y colóquelos en cubetas que contengan 10 mM PB. Agregue peróxido de hidrógeno (H2O2) a la solución DAB antes de verter inmediatamente la solución en cubetas nuevas (16,7 μl de H2O2 por cubeta). Mueva los portaobjetos a las cubetas DAB y déjelos durante ~ 3 min (máximo 5 min), mientras verifica constantemente la intensidad de la tinción bajo el microscopio.
PRECAUCIÓN: H2O2 puede irritar los ojos, la piel y la garganta. Use el EPP adecuado. - Lave los portaobjetos (3 s) una vez en 10 mM PB y 2 veces en dH2O y deje que los portaobjetos se sequen. Sumerja los portaobjetos secos 3 veces en xileno. Aplique una gota de medio de montaje DPX en un cubreobjetos y colóquelo sobre la sección de tejido, teniendo cuidado de evitar burbujas de aire.
PRECAUCIÓN: El xileno y el DPX son inflamables y pueden causar irritación ocular, cutánea y respiratoria. Manipule en un gabinete de bioseguridad y use siempre guantes al manipular.
- Tinción de Nissl
- El día 1, rehidratar y esparcir el tejido en dH2O. Preparar FA al 4% añadiendo 5,4 mL de FA en 50 mL de PB 0,1 M y utilizar inmediatamente. Incube los portaobjetos en FA al 4% durante la noche.
- El día 2, mueva los portaobjetos de 4% de FA a 70% de etanol (EtOH) e incube durante la noche.
- Prepare la tinción de Nissl disolviendo 4 g de violeta de cresilo en 40 ml de EtOH al 100% en un tubo cónico cerrado de 50 ml. Invierta durante 15 min, agregue la solución a 360 ml de dH2O tibio y mezcle en una placa de agitación durante 20 min. Filtrar la solución antes de usar.
- El día 3, siga el procedimiento de tinción descrito en la Tabla 2 y cubra las secciones de tejido con DPX.
- Etiquetado terminal de desoxinucleotidiltransferasa dUTP en el extremo de la muesca (TUNEL)
- Rehidratar y extender el tejido en dH2O, luego incubar los portaobjetos en FA al 4% durante 5 min. Mueva los portaobjetos a una solución de H2O2 y metanol (CH3OH) (1:10) e incube durante 15 min. Lave los portaobjetos durante 2 x 3 s en 0,1 M PB y colóquelos en cubetas que contengan 0,1 M PB.
- Prepare la solución TUNEL con hielo de acuerdo con las instrucciones del fabricante. Añadir la solución a los portaobjetos (50 μL por sección de tejido) e incubar en una cámara de humedad a 37 oC durante 2 h.
- Después de 1 h de incubación, preparar la solución ABC como se describe en el paso 2.4.9 e incubar a temperatura ambiente.
- Después de 2 h, mueva los portaobjetos a la solución TUNEL STOP (300 mM de NaCl, 30 mM de citrato de sodio) durante 10 min y sumerja los portaobjetos para lavar 3 x 3 s en una solución de PBS de 10 mM. Incubar los portaobjetos en solución ABC durante 1 h.
- Preparar sulfato de cobalto (1,55 g de CoSO4 anhidro en 100 mL de dH2O) y cloruro de níquel hexahidratado (2,38 g de NiCl 2,6H 2O en 100 mL de dH2O). Preparar la solución de DAB Co-Ni (10 mM PB + 25 mg DAB + 1 mL/100 mL de Co + 1 mL/100 mL de Ni). Filtra la solución al vacío y mantenla en la oscuridad. Inmediatamente antes de verter la solución DAB en las cubetas, agregue 16,7 μl de H2O2 por cubeta de 50 ml.
- Después de 1 h, mueva los portaobjetos a las cubetas DAB e incube durante ~ 3 min a temperatura ambiente, verificando constantemente la intensidad de la tinción. Detenga la reacción moviendo los portaobjetos a cubetas que contengan 10 mM PB. Lavar sumergiendo 2 x 3 s en dH2O y dejar secar las secciones de tejido antes de cubrirlas con DPX.
- Tinción de hematoxilina y eosina (H&E)
- Rehidratar y extender el tejido en dH2O y dejar que las secciones se sequen al aire.
- Sumerja los portaobjetos en hematoxilina durante 2 min.
PRECAUCIÓN: La hematoxilina puede causar irritación de los ojos y la piel. Use el EPP adecuado. - Enjuague los portaobjetos con agua corriente del grifo durante 5 minutos, decolore con alcohol ácido durante 1 segundo y enjuague con agua del grifo.
- Contratinción en eosina al 0,5% (1,5 g disueltos en 300 mL de EtOH al 95%) durante 30 s.
PRECAUCIÓN: La eosina es inflamable y puede causar irritación en los ojos y la piel. Prepare las soluciones en un gabinete de bioseguridad y use el EPP adecuado. - Deshidratar las secciones de tejido en un gradiente de EtOH: 50%, 70%, 95% y finalmente 100% de EtOH, cada una durante 3 min. Mueva los portaobjetos al xileno durante 2 x 5 min. Cubreobjetos con DPX.
3. Evaluaciones histológicas e inmunohistoquímicas para neuropatología y lesión pulmonar
NOTA: Las evaluaciones se pueden realizar en las siguientes regiones: corteza, corteza piriforme, cápsula externa, cuerpo estriado, hipocampo y tálamo (Figura 2). Para los cerebros E18.5, el cuerpo calloso también se puede incluir ya que la diferenciación de las células aún no está completa y las células gliales no han migrado a todas las regiones del cerebro. El evaluador debe estar cegado a los grupos de tratamiento.
- Muerte celular TUNEL+
- Con un microscopio convencional, cuente las células positivas para la tinción TUNEL bilateralmente con un aumento de 20x en todas las regiones del cerebro (Figura 2).
- Evalúe tres campos ópticos seleccionados al azar por región del cerebro y calcule el número promedio de células por región del cerebro.
- Evaluación de la morfología de Nissl
- Capture imágenes de tejido completo con una cámara a color con un aumento de 1x y guárdelas como un archivo TIFF u otro formato deseado. Importe las imágenes a ImageJ para su posterior análisis.
- Describa las regiones cerebrales de interés (p. ej., corteza e hipocampo) y mida con la herramienta a mano alzada (Figura 2).
- Para obtener la medición del tejido, aplique la fórmula: (mm2 × 400 μm) = volumen × 100 (revisado32).
- Índice de ramificación microglial
- Usando un microscopio con una característica de cuadrícula cuadrada de 0.049 mm x 0.049 mm, con un aumento de 40x, cuente el número de cuerpos celulares IBA-1+ dentro de la cuadrícula (C) y el número promedio de ramas que cruzan las líneas de cuadrícula (B). Realice esto en tres campos seleccionados al azar (ver Figura 3) para cada región del cerebro que se muestra en la Figura 2.
- Utilice la fórmula (B2 / C) para calcular el índice de ramificación microglial.
- Luminosidad óptica para la intensidad de tinción GFAP
- Usando el software de referencia (Tabla de materiales) y una cámara a color con un aumento de 40x, capture tres campos seleccionados al azar por región del cerebro (Figura 2). Presione Ctrl+H para obtener un histograma que muestra la media y la desviación estándar (DE). Registre los valores medios y SD en una hoja de cálculo. Capture una imagen de control solo del vidrio circundante (es decir, sin tejido) y registre los valores medios y SD como antes
- Utilice la siguiente fórmula para calcular los valores de luminosidad óptica (OLV) en una hoja de cálculo:
OLV = (media del vidrio − desviación estándar del vidrio) − (media de [media por imagen − desviación estándar por imagen])
NOTA: Por ejemplo:
Vidrio circundante
Media ± DE = 143,5 ± 8,56
Región del cerebro (p. ej., corteza)
1. 136,7 ± 10,6
2. 140,6 ± 10,4
3. 137,4 ± 11,3
OLV = (143,5 - 8,56) - (media de [136,7 - 10,6], [140,6 - 10,4], [137,4 - 11,3])
OLV = 134,94 - 127,47
OLV = 7.47 - Promedie cada valor por región, por animal y luego por grupo experimental.
- Evaluaciones de la morfología pulmonar
- Capture secciones de H&E con un aumento de 40x (tres campos ópticos por diapositiva, mida los espacios aéreos por campo), guárdelas como TIFF (o equivalente) e importe imágenes a ImageJ. Seleccione al azar campos que sean representativos de toda la sección pulmonar.
- Con la herramienta a mano alzada, delinee los espacios aéreos y registre la medición (Figura 4A). Encuentre el promedio de tres espacios aéreos por campo, luego entre los tres campos por sección y, en última instancia, entre las tres secciones por muestra.
- Afluencia de neutrófilos en los pulmones
- Capture imágenes de muestra con una cámara a color con un aumento de 40x, tres veces por sección de tejido pulmonar, y guarde el archivo original como un archivo TIFF u otro formato deseado. Importe las imágenes a ImageJ y cuente manualmente neutrófilos individuales en tres campos del mismo pulmón. Calcule el promedio de neutrófilos por pulmón.
Resultados
Este protocolo presenta un modelo de ratón de infección vaginal ascendente y describe métodos para evaluar la neuropatología neonatal y los resultados respiratorios. El procedimiento para inducir una infección vaginal ascendente debe ser rápido (en 5 minutos) y los ratones deben recuperarse en un par de minutos. Las madres desarrollaron síntomas de infección después de aproximadamente 24 h25. Esto incluye movimientos lentos, piloerección y una postura encorvada. El tiempo medio aproximado de parto en los ratones infectados fue de 40,3 h después de la administración de E. coli (media media del grupo de control de PBS 52,7 h), que se produjo en E18,5 en comparación con el parto a término del grupo de control de PBS en E19,531. El porcentaje de crías nacidas vivas por camada se redujo (del 100% al 71,4%) con la infección, al igual que su supervivencia durante 7 días postnatales (Figura 5)25. Cuando se utilizan bacterias bioluminiscentes, las imágenes pueden rastrear la propagación de la infección en madres y cachorros. Se observaron bacterias en el útero, las membranas fetales, la placenta y en algunos fetos dentro de las 18 h posteriores a la administración (Figura 6), y los mediadores inflamatorios, medidos por qPCR y ELISA, se regularon al alza en estos tejidos, así como en los tejidos perinatales de las crías, como el cerebro, los pulmones y el intestino 25,29,31.
Se realizó una batería de evaluaciones neuropatológicas, como la evaluación de la morfología, la muerte celular, la activación microglial y la activación de astrocitos, en los fetos y neonatos utilizando histología e inmunohistoquímica 25,31,33. También se puede evaluar el tejido pulmonar (Figura 4 y Figura 7). La tinción positiva para TUNEL sugiere degradación del ADN, una etapa posterior de la muerte celular34. Vemos un aumento significativo de la tinción de TUNEL en la corteza, la corteza piriforme, la cápsula externa, el hipocampo y el tálamo en los cerebros de las crías expuestas a la infección por E. coli durante el embarazo (Figura 8A, B)31. La microglía marcada con IBA-1, las células inmunes residentes del cerebro, se pueden clasificar por su estado morfológico, por lo que la ramificación sugiere un fenotipo en reposo, mientras que las células activadas y fagocíticas se vuelven ameboides o de forma redondeada35. Por lo tanto, en lugar de cuantificar las células microgliales, presentamos una estrategia para evaluar su fenotipo como una indicación de su estado. Vemos un aumento en la ramificación de IBA1+ en la corteza externa y el cuerpo estriado de las crías de E. coli, en comparación con el grupo PBS (Figura 8C, D)31. Los astrocitos reactivos marcados con GFAP, que pueden estar asociados con inflamación y lesión neurológica, aumentaron en la corteza piriforme y la cápsula externa en las crías de E. coli (Figura 8E, F) 31,36,37. La tinción de Nissl permite evaluar los cambios morfológicos macroscópicos en la estructura del cerebro; El violeta de cresilo es una tinción histológica estándar para las neuronas y marca tanto los gránulos de ARN extranuclear como los núcleos celulares. En el grupo de E. coli, vemos un grosor reducido de la corteza (Figura 9)31. Del mismo modo, la H&E, que tiñe respectivamente el núcleo y el citoplasma de las células, permite evaluar la morfología pulmonar (Figura 4)31. Vemos un aumento de los espacios aéreos en ratones expuestos a E. coli, así como un aumento en el número de neutrófilos Ly6G+, una indicación de inflamación (Figura 7)31.
Para los análisis de datos, el tiempo hasta la entrega se analizó mediante una prueba t no pareada si los datos se distribuyeron normalmente. Para los datos porcentuales de las crías nacidas vivas, primero se requirió una transformación de raíz cuadrada de arcoseno para transformar una distribución de proporción (limitada por el rango de 0 a 1) a una distribución normal, que es uno de los requisitos para poder realizar una prueba t. La supervivencia de las crías se analizó mediante una prueba de rango logarítmico (Mantel-Cox). Para histología e inmunohistoquímica, se utilizó la prueba U de Mann-Whitney o múltiples pruebas t con corrección de Welsh, dependiendo del tipo de datos y si se distribuyeron normalmente. Para obtener suficiente poder estadístico, recomendamos utilizar un mínimo de cinco madres por grupo de tratamiento.
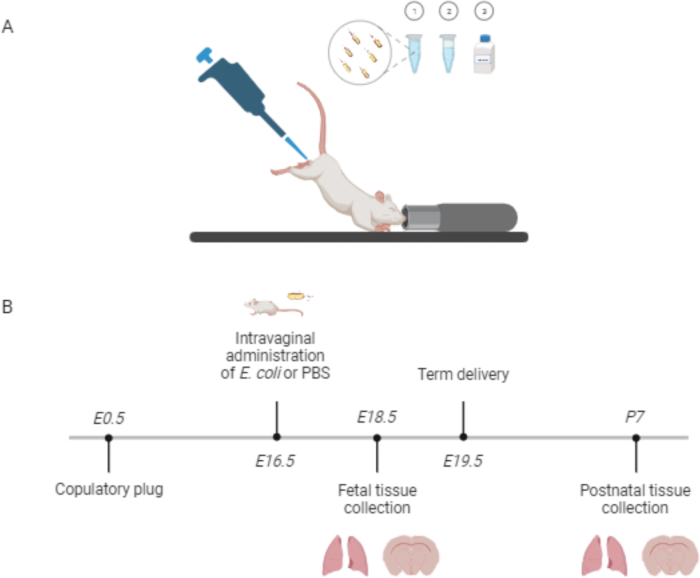
Figura 1: Administración intravaginal de Escherichia coli y la línea de tiempo del tratamiento para inducir el parto prematuro y la morbilidad neonatal en ratones. (A) E. coli [1], seguido de gel plurónico F127 al 20% [2], se administra en la vagina del ratón utilizando una punta de pipeta estéril de 200 μl. Se agrega polvo de quinina al introito [3]. (B) E. coli se administra en la vagina el día embrionario 16.5. Los tejidos, como los pulmones y el cerebro, se pueden recolectar durante el período fetal o neonatal. Abreviatura: EN = día embrionario N; NP = día postnatal N; PBS = solución salina tamponada con fosfato. Haga clic aquí para ver una versión más grande de esta figura.
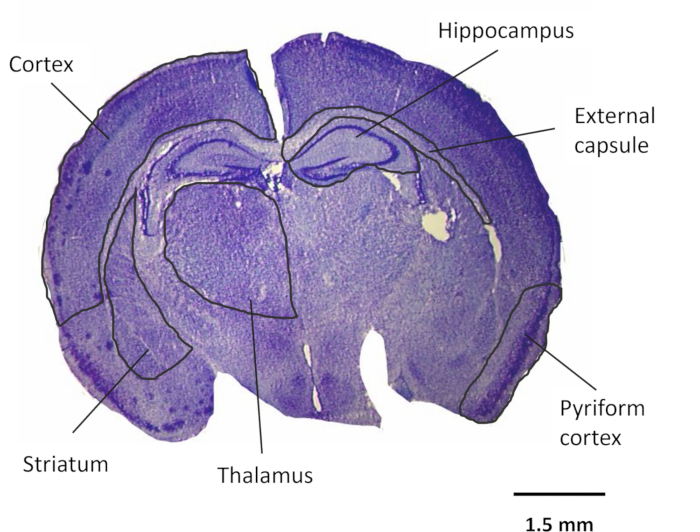
Figura 2: Regiones cerebrales evaluadas para neuropatología. Un ejemplo de tinción de Nissl del cerebro de un cachorro neonatal y las regiones que podrían evaluarse para detectar neuropatología. Todas las regiones del cerebro se pueden evaluar para TUNEL, IBA-1 y GFAP. Elegimos evaluar la morfología de la corteza y el hipocampo utilizando Nissl. Aumento: 1x. Barra de escala = 1,5 mm. Abreviaturas: TUNEL = etiquetado terminal de la desoxinucleotidil transferasa dUTP; IBA-1 = factor inflamatorio 1 del aloinjerto; GFAP = proteína ácida fibrilar glial. Haga clic aquí para ver una versión más grande de esta figura.
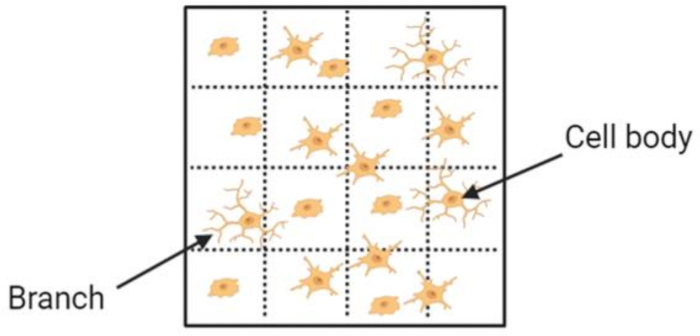
Figura 3: Evaluación positiva del índice de tinción y ramificación de IBA-1. Para cuantificar el índice de ramificación de las células IBA-1+ , cuente el número de cuerpos celulares dentro de la cuadrícula y el número promedio de ramas que cruzan las líneas de cuadrícula horizontales y verticales. Abreviatura: IBA-1 = factor inflamatorio 1 del aloinjerto. Haga clic aquí para ver una versión más grande de esta figura.
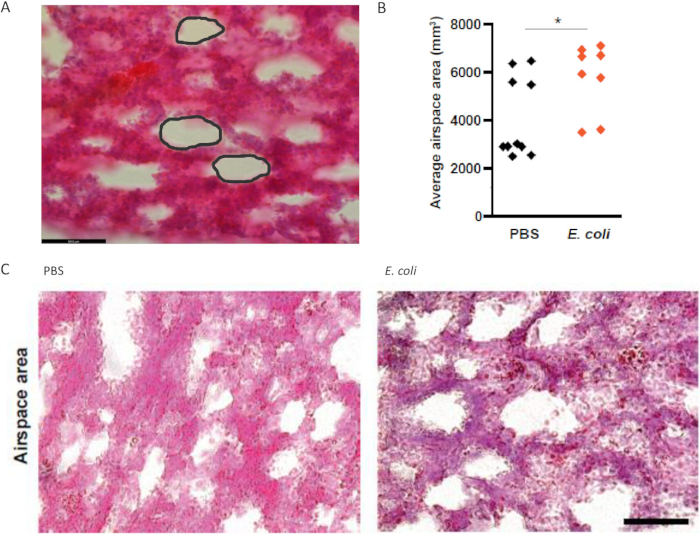
Figura 4: Mediciones del espacio aéreo en los pulmones de las crías (tinción de H&E). (A) Delinee los espacios aéreos y mida con la herramienta a mano alzada en ImageJ. (B) El área promedio del espacio aéreo aumenta en las crías expuestas a E. coli en comparación con PBS. (C) Imágenes representativas de H&E de pulmones de cachorros expuestos a PBS y E. coli en el útero. Aumento: 40x. Barra de escala = 59,5 μm. Abreviaturas: H = hematoxilina; E = eosina. n = 2 de 4 camadas. *p < 0,05. Esta figura fue adaptada de Boyle et al.31. Haga clic aquí para ver una versión más grande de esta figura.
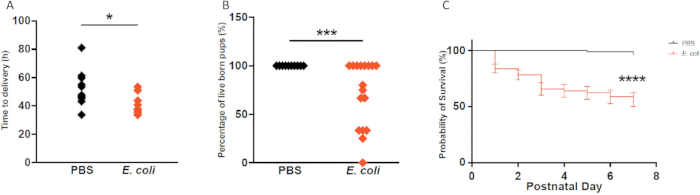
Figura 5: Efectos de E. coli intravaginal en el tiempo hasta el parto y la supervivencia de las crías. (A) El tiempo hasta el parto se reduce en presencia de E. coli. (B) El porcentaje de cachorros nacidos vivos se reduce significativamente y (C) la supervivencia de los cachorros se reduce en los cachorros expuestos a E. coli. Tiempo hasta el parto: n = 8-10 camadas por grupo; crías nacidas vivas: n = 10-17 camadas por grupo; Supervivencia de las crías: n = 10-12 camadas por grupo. *p < 0,05, ***p < 0,001. Esta figura fue adaptada de Boyle et al.31. Haga clic aquí para ver una versión más grande de esta figura.
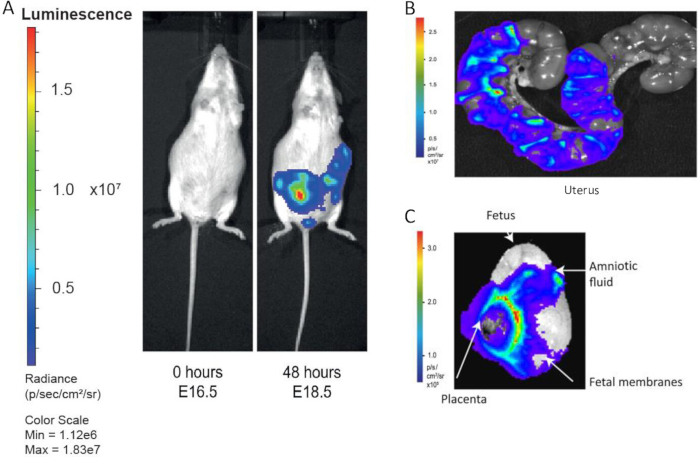
Figura 6: Imágenes de bioluminiscencia para monitorear la propagación de E. coli . (A) E. coli bioluminiscente asciende desde la vagina hacia los cuernos uterinos dentro de las 48 h. (B) Los cuernos uterinos disecados muestran infección con E. coli dentro de las 18 h, (C) al igual que la placenta y las membranas fetales. Esta figura fue adaptada de Suff et al.25 y Boyle et al.31. Haga clic aquí para ver una versión más grande de esta figura.
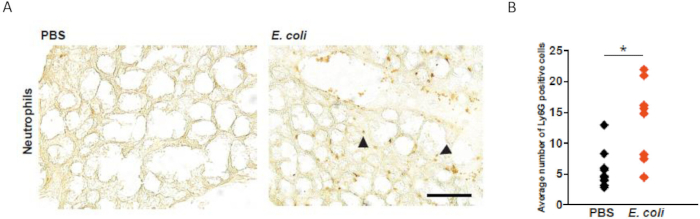
Figura 7: Tinción de Ly6G para neutrófilos en pulmones fetales. (A) Tinción de Ly6G (positiva: puntas de flecha), para evaluar la afluencia de neutrófilos, en fetos expuestos a PBS y E. coli . (B) El número promedio de células Ly6G + aumenta significativamente en los fetos de E. coli . Aumento: 40x. Barra de escala = 59,5 μm. n = 10 de 5 camadas por grupo. *p < 0,05. Abreviaturas: Ly6G = locus G6D del complejo del antígeno linfocitario 6. Esta figura fue adaptada de Boyle et al.31. Haga clic aquí para ver una versión más grande de esta figura.
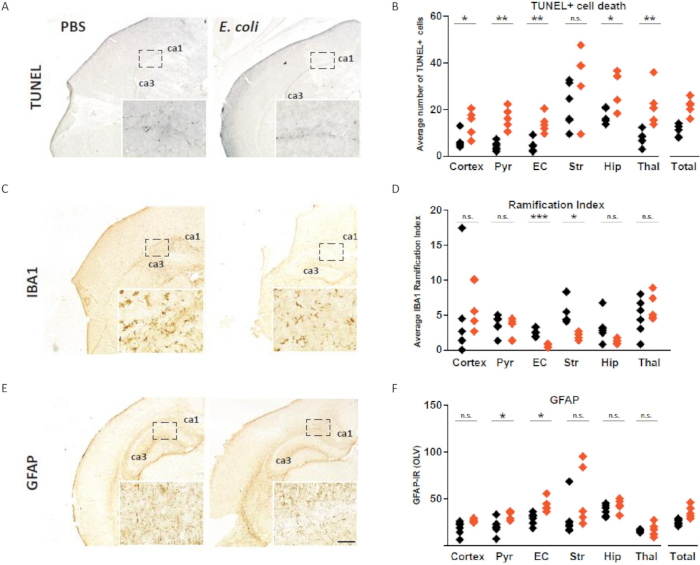
Figura 8: Ejemplos de tinción TUNEL, IBA1 y GFAP. (A) Tinción TUNEL para la muerte celular en el cerebro de la cría posnatal expuesto a PBS o E. coli. (B) El número promedio de células TUNEL + aumenta en la corteza, la corteza piriforme, la cápsula externa, el hipocampo y el tálamo. (C) Inmunohistoquímica IBA1 para microglía en grupos PBS y E. coli . (D) El índice de ramificación, como medida de la activación de la microglía, aumenta en la cápsula externa y el cuerpo estriado en las crías de E. coli . (E) Tinción GFAP para astrocitos, (F) que aumenta en la corteza piriforme y la cápsula externa en las crías de E. coli . Barra de escala = 59,5 μm. Abreviaturas: GFAP = proteína ácida fibrilar glial; TUNEL = etiquetado terminal de la desoxinucleotidil transferasa dUTP; Pyr = Corteza piriforme; EC = cápsula externa; Str = estriado; Cadera = hipocampo; thal = tálamo; total = todas las regiones; CA = cornu amoníaco; OLV = valores de luminosidad óptica. Análisis inmunohistoquímicos: n = 5-7 de 5 camadas por grupo. *p < 0,05, **p < 0,01, ***p < 0,001, n.s. - no significativo. Esta figura fue adaptada de Boyle et al.31. Haga clic aquí para ver una versión más grande de esta figura.
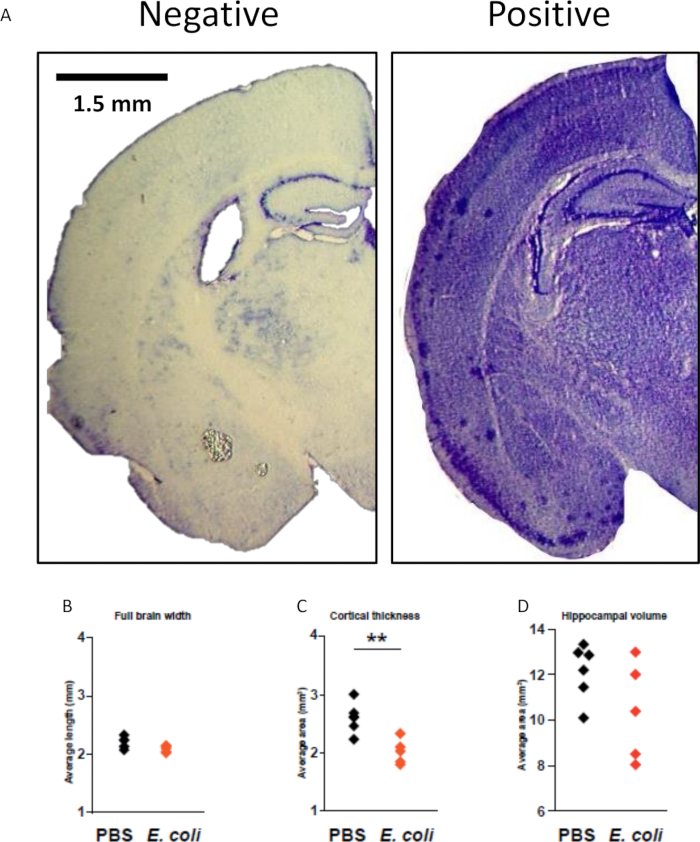
Figura 9: Ejemplo de tinción de Nissl positiva y negativa y evaluaciones de morfología. (A) Tinción de Nissl del cerebro de la cría posnatal para evaluar la estructura y morfología del tejido. (B) No hay impacto en el ancho del cerebro, pero (C) el grosor cortical se reduce en los cachorros expuestos a E. coli. (D) No hay diferencia en el volumen del hipocampo. Aumento: 1x. Barra de escala = 1,5 mm. n = 5-7 de 5 camadas por grupo. **P < 0,01. Esta figura fue adaptada de Boyle et al.31. Haga clic aquí para ver una versión más grande de esta figura.
| Anticuerpo primario | Dilución | Anticuerpo/dilución secundaria | Dilución |
| Conejo anti-GFAP | 1:6000 | Cabra anti-conejo | 1:100 |
| Conejo anti-IBA1 | 1:1000 | Cabra anti-rata | 1:100 |
| Ratón anti-Ly6G | 1:1000 | Cabra anti-conejo | 1:100 |
Tabla 1: Anticuerpos para inmunohistoquímica.
| Paso | Reactivo | Tiempo (min) |
| 1 | Tinción NISSL | 10 |
| 2 | Agua destilada fresca | 2 |
| 3 | Agua destilada fresca | 2 |
| 4 | 70% de EtOH | 2 |
| 5 | 90% de EtOH | 2 |
| 6 | 96% de EtOH | 2 |
| 7 | 96% de EtOH con 3-5 gotas de ácido acético glacial | 2-5 (REVISAR CONSTANTEMENTE) |
| 8 | 100% EtOH | 2 |
| 9 | Isopropanol | 2 |
| 10 | Xileno | 2 |
| 11 | Xileno | 2 |
| 12 | Xileno | 2 |
Tabla 2: Procedimiento de Nissl.
Discusión
Aquí, describimos la inducción de un nuevo modelo de ratón de parto prematuro y morbilidad neonatal a través de ascensión vaginal bacteriana. Elegimos E. coli K1 ya que es una causa común de sepsis y meningitis neonatal y se transmite verticalmente de la madre al feto 38,39,40. La clave del éxito de este modelo es el uso del gel termosensible Plurónico, que evita la fuga de la suspensión bacteriana de la vagina, lo que permite que la infección se establezca y ascienda al útero. Como este modelo utiliza bacterias vivas derivadas de un aislado de septicemia, es crucial monitorear de cerca las represas27. Si los animales se niegan a moverse o comer o no cuidan a sus cachorros (por ejemplo, descuidan la anidación y la alimentación), deben ser sacrificados humanamente de inmediato.
En su mayoría, los síntomas asociados con la infección se disipan dentro de las 24 horas posteriores al parto. También es esencial tener en cuenta que los diferentes serotipos de E. coli y otras cepas de bacterias tendrán efectos variables sobre la duración gestacional, la extensión de la infección / inflamación y el resultado neonatal. Sugerimos realizar experimentos de dosis preliminares con diferentes UFC cuando se utilizan nuevos serotipos/cepas bacterianas para determinar la concentración mínima necesaria para el fenotipo deseado y establecer criterios de valoración humanos estrictos para evitar el sufrimiento. Se debe tener extrema precaución al administrar un patógeno vivo; permitir que la literatura guíe el uso apropiado de estos organismos al modelar la infección ascendente.
La cepa de ratón también es importante, ya que sus sistemas inmunológicos difieren. Por ejemplo, el tiempo y las UFC utilizados en este modelo no tienen los mismos resultados cuando se realizan en ratones C57BL / 6. Elegimos usar los ratones C57BL / 6 Tyrc-2J ya que los experimentos de curso de tiempo mostraron una infección significativamente mayor en esta cepa en comparación con CD-1, BALB / c y C57BL / 6. Además, hay evidencia de señales bioluminiscentes que apagan el pelaje negro, lo cual es un resultado medible útil en este modelo29. El día gestacional óptimo para la administración bacteriana también puede diferir según el patógeno y la cepa de ratón. Existe una gran heterogeneidad en los modelos preclínicos de PTB; por lo tanto, es importante considerar estas variables para desarrollar resultados reproducibles17.
Otra consideración es el tiempo que los animales están expuestos a la anestesia. Dado que la exposición excesiva durante la gestación se asocia con neurotoxicidad en los cachorros, es esencial mantener el tiempo de anestesia al mínimo (por ejemplo, máximo 5 min) e incluir siempre controles expuestos al mismo entorno y tratados con una sustancia vehicular 41,42,43. Los grupos de control adicionales útiles para este modelo incluyen la administración intravaginal no tratada de gel plurónico solo y solo anestesia.
La inmunohistoquímica se usa ampliamente como una herramienta experimental para identificar diferentes proteínas y células, y se puede usar para caracterizar la estructura y la conectividad en el cerebro. Aquí, describimos cómo analizar células clave del sistema nervioso central que están asociadas con la neuroinflamación y la lesión neurológica. También presentamos métodos para evaluar la apoptosis celular y las tinciones histológicas que son útiles para medir la morfología cerebral y pulmonar. Las consideraciones importantes para garantizar el éxito de estos protocolos comienzan con el uso cuidadoso de la pluma PAP; si la pluma PAP toca el tejido, la tinción fallará, pero si el parámetro es demasiado ancho, las secciones podrían secarse durante la noche. Del mismo modo, la cámara de humedad debe mantenerse húmeda para evitar que las secciones se sequen.
Al realizar la tinción de Nissl, el paso de ácido acético glacial es el más crítico; las secciones deben revisarse constantemente. Cuando las estructuras principales del cerebro se vuelven visibles, las secciones deben trasladarse inmediatamente al EtOH para detener la reacción. Elegimos evaluar la corteza y el hipocampo, ya que se ha informado de un grosor cortical reducido y un volumen reducido del hipocampo en neonatos prematuros humanos y otros modelos animales, pero se podrían evaluar otras regiones para detectar cambios morfológicos 44,45,46,47. También se debe prestar mucha atención al desarrollo de la tinción DAB. Esto debe cronometrarse y mantenerse constante entre experimentos.
El análisis de datos es la limitación más común de la inmunohistoquímica debido a la dificultad para cuantificar los resultados, que a menudo se consideran subjetivos. Si bien el análisis GFAP se realiza mediante mediciones de luminosidad óptica asistidas por computadora, la tinción inconsistente puede afectar estas mediciones. Además, las evaluaciones de la morfología del cerebro y los pulmones implican mediciones manuales a mano alzada que dependen del juicio del observador. Para evitar inconsistencias, repetimos estas evaluaciones dos veces y en un corto período de tiempo. Para reducir aún más cualquier sesgo, es importante que el evaluador esté cegado a los grupos de tratamiento. La baja inmunorreactividad también puede ser un factor limitante. La falta de señal podría sugerir que el antígeno de interés está ausente o podría deberse a una falla del protocolo. Para abordar esto, incluimos una muestra de tejido que puede actuar como un control positivo cuando sea posible y repetimos el procedimiento de tinción cuando observamos una señal baja o ausente para asegurarnos de que esto no sea el resultado de un error experimental.
Además de los protocolos descritos, se pueden realizar análisis inmunológicos de los tejidos maternos, fetales y neonatales mediante qPCR y ELISA. Hemos observado un aumento de los niveles de ARNm inflamatorio y proteínas en animales expuestos a la infección 25,31,48. Nuestra hipótesis es que la neuropatología neonatal que demostramos histológicamente podría ser el resultado de una inflamación fetal del cerebro, los pulmones y el intestino25,31. Otras evaluaciones neuropatológicas que hemos realizado incluyen la proteína básica de mielina (MBP) para investigar la mielinización y NeuN para teñir los núcleos neuronales25,31. Además de esto, se pueden evaluar otros marcadores para neutrófilos y microglía para comprender mejor el fenotipo y el comportamiento de estas células después de la exposición a la infección en el útero49,50. Además, se podrían realizar pruebas de comportamiento para determinar el impacto a largo plazo en la descendencia.
Este modelo no está exento de limitaciones. Por ejemplo, vemos variación en la patología tanto entre camadas como dentro de ellas. Esto podría ser el resultado del uso de una bacteria viva, donde no se puede controlar la propagación de la infección. En consecuencia, el patrón y el alcance de la infección ascendente en los cuernos uterinos varían y, a menudo, son asimétricos. Otra limitación es la patogenicidad de la E. coli, que a veces puede hacer que las madres se enfermen demasiado para cuidar a sus cachorros. Los ratones tampoco son el mejor modelo de lesión pulmonar, debido a que la alveologénesis tiene lugar después del nacimiento, en lugar de prenatalmente, como en los humanos51. No pudimos inflar nuestros tejidos pulmonares cuando se recolectaron las muestras, lo que podría haber impactado en nuestros resultados. Sin embargo, nuestros resultados son consistentes con los cambios observados en modelos animales neonatales con TLP52,53.
Este modelo recapitula la condición humana postulada por la cual la infección bacteriana asciende desde la vagina hasta el útero, estimulando el parto prematuro. Después de nuestra publicación inicial de este modelo, otros han replicado o producido modelos similares, enfatizando aún más la reproducibilidad y relevancia de esta metodología19,54. Fundamentalmente, este modelo exhibe las morbilidades comunes experimentadas por los neonatos prematuros, donde otros modelos han fallado. Esto podría deberse al uso de una cepa bacteriana que está específicamente asociada con la sepsis neonatal. El LPS, que se usa más comúnmente para inducir el parto prematuro en modelos animales, es letal para los cachorros, por lo que no se pueden medir los resultados neonatales18. Otros modelos de infección ascendente también han tenido problemas para producir cachorros sobrevivientes o para demostrar morbilidad neonatal 19,20,21,22,23,24,55,56. Los modelos animales clínicamente relevantes, como el que describimos, son fundamentales para comprender la fisiopatología del parto prematuro y para desarrollar intervenciones innovadoras que mejoren los resultados neonatales.
Divulgaciones
Los autores no tienen divulgaciones relevantes.
Agradecimientos
Escherichia coli K1 A192PP-luxABCDE fue amablemente obsequiado por el profesor Peter Taylor, University College London. La Figura 1 y la Figura 3 se crearon en BioRender.com. Esta investigación fue apoyada por la beca Wellcome Clinical Research Career Development Fellowship 222970/Z/21/Z (N.S.), Action Medical Research y la subvención Borne GN2647 (N.S., S.N.W. y D.P.); y la subvención de Bienestar de la Mujer RG2365 (A.K.B., N.S., M.H., S.N.W. y D.P.).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Anti-GFAP, conejo | Agilent Technologies | Z033429-2 | |
| Anti-IBA1, rabbit | Wako | 019-19741 | |
| Anti-Ly6G, ratón | BioLegend | 127601 | |
| Cámara AVT-Horn 184 3CCD | Sony | ||
| Biotina-16-DUTP | Merck | 11093070910 | |
| Cubiertas rectangulares de vidrio borosilicato | FisherScientific | 12363128 | |
| Acetato de violeta cresil | ThermoFisher Scientific | 405760100 | |
| Criostato CM1900 | Leica | ||
| Cuveta de cristal | Merck | BR472700 | |
| Diaminobenzidina (DAB) | Generon | 40480004-3 | |
| Pinzas de disección, acero inoxidable, 10 cm, dentadas, curvas | World Precision Instruments Ltd | 15915 | |
| Pinzas de disección, acero inoxidable, 10 cm, dentadas, rectas | World Precision Instruments Ltd | 15914 | |
| Tijeras de disección, 10 cm de largo, rectas | World Precision Instruments Ltd | 14393 | |
| DPX | Merck | 100579 | |
| Eosina | Sigma-Aldrich | HT110116 | |
| Solución de formaldehído al 4% tamponado | Merck | 100496 | |
| Anticuerpo anti-IgG de Cabra (H+L), Biotinilado | Laboratorios Vector | BP-9100-50 | |
| Anticuerpo anti-IgG de cabra (H+L), biotinilado | Laboratorios Vector | BA-9400-1.5 | |
| GraphPad Prism v.8 | GraphPad Software | ||
| H2O2 | Sigma-Aldrich | 7722-84-1 | |
| Hematoxilina | Sigma-Aldrich | MHS16 | |
| ImageJ | Institutos Nacionales de Salud | ||
| Isoflurano (IsoFlo) | Zoetis | 50019100 | |
| Sistema de imagen in vivo IVIS Lumina II/Software de imagen viva | Perkin Elmer/Revvity | ||
| Microdiapositivas | VWR | ISO8037/I | |
| Óptimas 6.51 | Media Cybernetics Inc. | ||
| Paraformaldehído | Sigma-Aldrich | 158127 | |
| Solución fisiológica con suero tamponado con fosfato (PBS) y nbsp; | Thermo Fisher Scientific (Tecnologías de la Vida) | 14190094 | |
| Pluronic F-127 | Sigma-Aldrich | P2443 | |
| Quinina | Suministros de laboratorio científico | P0132 | |
| Ready Probes Pluma de barrera hidrofóbica | Thermo Fisher Scientific y nbsp; | R3777 | |
| Hidróxido de sodio | Honeywell | S8045 | |
| Fosfato de sodio monobásico anhidro | FisherScientific | BP329-1 | |
| Sacarosa | Merck | S9378 | |
| Transferasa terminal | Merck | 3333574001 | |
| VECTASTAIN KIT ABC-HRP, Peroxidasa | Laboratorios Vector | PK-4000 | |
| Xilenos (grado histológico) | Sigma-Aldrich | 534056 |
Referencias
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
Reimpresiones y permisos
