Este estudio presenta un ensayo FRET radiométrico simple y fácil de usar para la detección y evaluación cuantitativa de la actividad de la ADNasa, y demuestra su aplicación en el análisis de una nucleasa débil.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Evaluación de la actividad de la ADNasa mediante transferencia de energía de resonancia de fluorescencia radiométrica
En este artículo
Resumen
Resumen
El presente protocolo describe un ensayo de transferencia de energía de resonancia de Förster (FRET) simple y sensible para la detección y evaluación cuantitativa de la actividad de la ADNasa. Las mediciones radiométricas de FRET utilizan la relación de señales de emisión donante y aceptor. El ensayo detecta roturas de ADN monocatenario utilizando una oligosonda FRET de 38 meros con forma de grapa y doble marcado, empleada como sensor de escisión de ADN en tiempo real. La principal aplicación del enfoque descrito es la evaluación cuantitativa de los efectos de las condiciones de reacción, como el pH, la temperatura y la composición del tampón, sobre la actividad de la ADNasa. Debido a su capacidad para detectar incluso una escisión menor y lenta del ADN, el ensayo es particularmente adecuado para investigar la actividad nucleolítica débil que requiere períodos prolongados de observación y para estudiar los efectos del pH en la actividad de la ADNasa. Estas ventajas específicas de este protocolo FRET radiométrico se ilustran por su aplicación a la detección y análisis de la actividad de la ADNasa del inhibidor de la elastasa leucocitaria (LEI).
Introducción
El enfoque de fluorescencia radiométrica es un método analítico que utiliza proporciones de señales de fluorescencia en lugar de depender únicamente de la intensidad de una sola señal 1,2. La ventaja de usar las proporciones es que proporcionan calibración interna y compensan muchos factores aleatorios, como variaciones en las concentraciones de muestras y sondas, parámetros del instrumento, etc. Esto mejora la precisión y la sensibilidad de las sondas fluorescentes.
En el contexto específico de las sondas de transferencia de energía de resonancia (FRET) de Förster, el término "radiométrico" se refiere al hecho de que la medición se basa en la relación de dos señales de emisión del par de fluoróforos donantes y aceptores FRET. Para cuantificar la actividad del analito objetivo, las sondas FRET radiométricas utilizan la relación entre las intensidades de emisión aceptor/donante (o, en algunos casos, la relación donante/aceptor invertida). La relación está directamente relacionada con la eficiencia FRET. Proporciona un mecanismo de autonormalización que minimiza el ruido de fondo y tiene en cuenta las variaciones en las condiciones de iluminación y la concentración de la sonda3.
Las aplicaciones recientes interesantes del método radiométrico incluyen su uso en biosensores electroquímicos radiométricos para la detección de ADN tumoral circulante (ctDNA)4,5, en bionanomáquinas accionadas por movimiento browniano para la detección FRET de la fase fagocítica de la apoptosis6, y para el etiquetado rápido de FRET y el análisis de la depuración fagocítica7. El enfoque radiométrico FRET descrito en este trabajo es útil para la evaluación cuantitativa de la actividad de la ADNasa. Las mediciones del ensayo se basan en las proporciones de las emisiones del par FRET. Debido a su capacidad para detectar incluso una escisión menor y lenta del ADN, el ensayo es particularmente adecuado para la investigación de actividad nucleolítica débil que requiere períodos de observación más largos y para experimentos a diferentes niveles de pH.
Aquí, algunas ventajas específicas del ensayo radiométrico FRET se ilustran por su aplicación para estudiar la actividad de la ADNasa de un inhibidor débil de la elastasa de nucleasas-leucocitos (LEI). El informe incluye un protocolo detallado con instrucciones paso a paso y una descripción del análisis de datos radiométricos.
Descripción de la sonda FRET radiométrica
La sonda FRET radiométrica es un oligo de ADN de 38 meros autocomplementario que lleva el par donante-aceptor FRET de FAM-TAM (fluoresceína-tetrametilrodamina). Su secuencia es 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. El 38-mer autohibridable asume una conformación en forma de grapa, que comprende dos horquillas conectadas de 23 y 15 nucleótidos, que posicionan sus dos fluoróforos a 23,8 Å entre sí. Esto es significativamente más cercano que el radio de Förster para este par, R0 = 55 Å8. Tal posicionamiento corresponde a una eficiencia muy alta de transferencia de energía del donante al aceptor7: EFRET = 0.993477. Como resultado, cuando se ilumina en la longitud de onda de excitación FAM (488 nm), la sonda FRET emite fluorescencia en la longitud de onda de emisión del aceptor TAM (580 nm), mientras que la emisión FAM (525 nm) se suprime.
La Figura 1A muestra la estructura secundaria de la sonda predicha por UNAFold, con pequeños bucles en ambos vértices de horquilla debido al obstáculo estérico de la curvatura cerrada. El esquema de la detección de roturas de ADN por la sonda FRET se presenta en la Figura 1B. Muestra que la rotura de la oligosonda por una DNasa separa su par FRET. Esta separación produce cambios drásticos en los espectros de emisión de ambos fluoróforos en la sonda. La Figura 1C presenta los espectros de emisión de la sonda antes y después de su escisión y demuestra que la división del par FRET después de la escisión de la sonda DNasa II aumenta la emisión del donante a 525 nm (ID 525 nm) y simultáneamente disminuye la emisión del aceptor a 580 nm (IA 580 nm). La Figura 1D muestra las relaciones PAGE gel y FRET correspondientes a los espectros de emisión. La escisión de la sonda DNasa II produjo dos bandas anchas correspondientes a fragmentos de FAM de 12-16 meros (verde) y TAM de 20-24 meros (rojo), lo que indica cortes aleatorios del 38-mer a cada lado de T23 en las proximidades del área de conexión entre las horquillas.
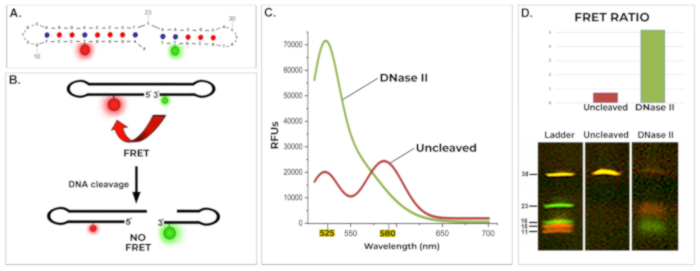
Figura 1: Estructura y funcionamiento de la sonda FRET radiométrica. (A) Estructura secundaria prevista de la sonda FRET generada por UNAFold. (B) Representación esquemática de la sonda FRET en funcionamiento. La sonda FRET radiométrica es un oligonucleótido de 38 meros en forma de grapa marcado con un donante FRET (FAM) y un aceptor (TAM) a una distancia FRET efectiva de 23,8 Å, lo que garantiza una eficiencia FRET del >99%. La escisión de la oligosonda por una DNasa separa el par FRET, aboliendo FRET. (C) Espectros de emisión de la sonda FRET antes y después de la escisión mediada por ADNasa II. Antes de la escisión, se suprime la emisión de FAM y la emisión de TAM es prominente. La escisión mediada por ADNasa separa FAM y TAM, restaurando la emisión de FAM (pico de 525 nm) y aboliendo la emisión de TAM (caída de 580 nm). Excitación λ = 488 nm. (D) Evaluación radiométrica y electroforética de la sonda FRET antes y después de la escisión de la ADNasa II. Panel superior: relaciones FRET (RD/A = ID 525 nm / IA 580 nm), que representan una medida cuantitativa del estado de la sonda. Rojo: sin afeitar; verde: DNasa II escindida. Panel inferior: Gel PAGE desnaturalizante correspondiente a datos fluorométricos. La escisión de la ADNasa II produce fragmentos marcados con FAM (12-16 nt, verde) y fragmentos marcados con TAM (20-24 nt, rojo), lo que indica una escisión cerca de la conexión entre horquillas, flanqueando T23. El control desactivado muestra fluorescencia amarilla. Escalera: oligonucleótidos marcados con FAM y TAM correspondientes a los segmentos 5 'y 3' de la sonda de 38 meros, con etiquetas fluorescentes en sus posiciones originales. Condiciones de reacción: tampón de acetato de sodio de 10 mM (pH 5,2), sonda FRET de 1 pmol/μL, 0,0033 U/μL de ADNasa II, 24 h a 37 °C. RD/A = ID 525 nm/IA 580 nm; Excitación λ = 488 nm. Condiciones UNAFold: Sonda FRET de 1 μM, 10 mM Na+, 0 mM Mg2+, 37 °C. Haga clic aquí para ver una versión más grande de esta figura.
Aunque los cambios en los espectros de emisión de prueba individuales son evidentes, las comparaciones cuantitativas entre un gran número de espectros de emisión requieren un parámetro cuantitativo más compacto y fácil de usar. Este papel lo desempeña el ratio FRET. El método de fluorescencia presentado pertenece a un grupo de enfoques radiométricos que se basan en las relaciones directas (de dos canales) de las emisiones de fluorescencia de los miembros del par FRET para sus evaluaciones cuantitativas 2,9.
El enfoque utiliza la relación de emisiones donantes/aceptoras (RD/A = ID 525 nm / IA 580 nm), que está relacionada con la eficiencia de FRET y caracteriza cuantitativamente la condición del 38-mer (roto o intacto). La relación ID / IA proporciona un mecanismo de autonormalización que explica inherentemente las variaciones en factores como la concentración de la sonda, la intensidad de la excitación y el fotoblanqueo3. El enfoque es adecuado solo para sondas FRET que tienen donante y aceptor vinculados dentro de la misma sonda, donde su proporción es conocida y constante. Por esta razón, el enfoque no necesita considerar ni la excitación directa del aceptor ni la diafonía del donante2. La estequiometría fija donante-aceptor de la sonda garantiza que las relaciones de emisión donante/aceptor no se vean afectadas por estas variaciones y reflejen directamente la condición de la sonda. Como resultado, la relación de emisiones donante-aceptor proporciona un parámetro cuantitativo de escisión del ADN con normalización de señal incorporada 2,3.
El ensayo emplea la relación ID / IA ( en lugar de la relación opuestaI A / ID ) porque esta relación describe el cese de FRET después de la escisión de la sonda y, por lo tanto, cambia en la misma dirección que la actividad de la ADNasa, aumentando con una mayor escisión. Esto se ilustra en la Figura 1D, que muestra la relación FRET de la sonda radiométrica y su electroforesis PAGE antes y después de su escisión por DNasa II, ambas correspondientes a los espectros de la Figura 1C. Para demostrar la conveniencia, el tiempo y la facilidad de uso del ensayo FRET radiométrico, se aplicó para descubrir y estudiar la actividad de la ADNasa de un inhibidor débil de la elastasa de nucleasas-leucocitos (LEI).
LEI nucleasa débil
El inhibidor de la proteasa LEI es naturalmente metaestable, es decir, topológicamente desequilibrado. Esta característica es esencial para su mecanismo inhibitorio. Cuando su proteasa diana escinde el bucle del sitio reactivo (RSL) del IPJ, la molécula inhibidora de la proteasa sufre un cambio conformacional drástico, estirando mecánicamente la proteasa en una forma inactiva10,11. Sorprendentemente, esto también rompe y distiende la propia molécula de LEI y desenmascara un sitio críptico de ADNasa que está cubierto en su pliegue nativo, convirtiendo así LEI en una endonucleasa L-DNasa II activa (ADNasa II derivada de LEI)11,12. El sitio críptico de la ADNasa también puede estar expuesto por la desnaturalización y rotura del LEI causada por su incubación nocturna a pH 2 en ácido sulfúrico10,13. La utilización de este ensayo FRET para estudiar el LEI demostró que los tratamientos de desnaturalización química agresivos y la escisión enzimática dirigida no son estrictamente necesarios para desenmascarar la actividad nucleolítica latente del LEI.
La aplicación y el protocolo presentados del enfoque FRET radiométrico describen el descubrimiento de una actividad débil de la ADNasa inherentemente presente en el LEI normal y no desnaturalizado. El descubrimiento de la capacidad nucleolítica intrínseca del IPJ no incorporado y su análisis fue posible gracias a la idoneidad del ensayo para períodos prolongados de observación a diferentes niveles de pH ácido.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Evaluación de la actividad de la ADNasa mediante transferencia de energía de resonancia de fluorescencia radiométrica
El método es adecuado para la detección y el análisis de las propiedades nucleolíticas de una proteína soluble. Para examinar la dependencia del pH de la DNasa investigada, el procedimiento evalúa simultáneamente la actividad de la ADNasa en un rango de valores de pH. La técnica se puede utilizar para estudiar actividades nucleasas débiles y lentas. Los detalles de los reactivos y el equipo utilizado en este estudio se enumeran en la Tabla de Materiales.
1. Preparación de los componentes de la mezcla de incubación para el sistema de evaluación fluorométrica
- Prepare las soluciones tampón en los rangos de pH deseados. Para un rango de pH de 6.8 a 8.0, use tampones de Tris-HCl o fosfato. Utilice el tampón Tris-HCl para condiciones fisiológicas de pH (pH 7,2 a 8,0) debido a su estabilidad y mínima interferencia con la actividad enzimática.
NOTA: Los tampones de fosfato son apropiados para este rango de pH, pero son menos adecuados para valores de pH más altos (>7,5) debido a sus limitaciones de capacidad de amortiguación.
Para un rango de pH de 4.2 a 7.2, use tampones de acetato o citrato. El tampón de acetato es eficaz para condiciones de pH más bajas, hasta pH 4,2.
NOTA: El tampón de citrato se puede utilizar con valores de pH ligeramente más altos (pH 5,6 a 7,2) y ofrece una buena capacidad de amortiguación. Estos tampones son adecuados para estudiar la actividad de la ADNasa en condiciones ácidas a neutras. El estudio presentado sobre la actividad nucleolítica del LEI utilizó tampones de acetato de sodio de 10 mM con pH que osciló entre 4,8 y 6,5. - Diluir la muestra de proteína a una concentración adecuada en cada solución tampón. Cuando la actividad en la muestra es completamente desconocida, prepare una variedad de diluciones de la proteína. La dilución óptima depende de la fuerza de la actividad de la ADNasa y debe determinarse experimentalmente probando varias concentraciones de proteínas.
NOTA: El estudio presentado de la actividad nucleolítica ultradébil del LEI lo utilizó a una concentración de 1 μM.- Compruebe siempre el pH de la solución final cuando utilice tampones altamente concentrados, ya que el pH de los tampones concentrados puede cambiar con la dilución.
- Prepare la solución de sonda FRET radiométrica en agua libre de nucleasas. Utilice concentraciones de sonda FRET cercanas a 1 μM (1 pmol/μL). Evite el uso de concentraciones de sonda muy altas.
Caliente y enfríe rápidamente la solución de la sonda antes de la aplicación para garantizar la disociación completa de los emparejamientos de bases indeseables.
NOTA: El estudio presentado de la actividad nucleolítica del LEI utilizó una concentración de 1 μM (1 pmol/μL) de sonda FRET en agua libre de nucleasas.
2. Inducción de la reacción de ADNasa utilizando la sonda FRET radiométrica como sustrato
- Prepare tres pocillos en una placa de 96 pocillos para cada condición de pH que se va a probar. Incluya tres pozos adicionales, cada uno para los controles positivos y negativos.
- En cada pocillo para la serie de pH, combine lo siguiente:
70 μL de agua libre de nucleasas
10 μL de tampón 10X (tampón de su elección)
10 μL de muestra con proteína
10 μL de solución de sonda radiométrica (concentración de stock de 10 pmol/μL)
NOTA: El estudio presentado de la actividad nucleolítica del LEI en pH ácido utilizó el siguiente tampón 10X: 100 mM Acetato de Na pH 5,2 - En cada pocillo de control positivo, combine lo siguiente:
79 μL de agua libre de nucleasas
10 μl de tampón de DNasa II 10X (100 mM de acetato de Na pH 5,2)
0,33 μl de DNasa II (stock de 1 U/μl)
10 μL de solución de sonda radiométrica (concentración de stock de 10 pmol/μL)
NOTA: Para estudios con pH ácido, use DNasa II como control positivo. Al evaluar la actividad de la ADNasa cerca del pH 7 (específicamente pH 6,5-8), cambie a la ADNasa I y su tampón asociado (p. ej., 10 mM de Tris-HCl, 2,5 mM de MgCl2, 0,5 mM de CaCl2, pH 7,6) en lugar de la ADNasa II y el tampón de acetato. - En cada pocillo de control negativo, agregue agua libre de nucleasas en lugar de la muestra de proteína.
- En cada pocillo para la serie de pH, combine lo siguiente:
- Induzca la reacción de ADNasa agregando las soluciones de sonda a las mezclas de reacción que contienen proteína ADNasa a diferentes valores de pH.
NOTA: Mezcle bien todas las muestras evitando la formación de burbujas. Para muestras de ADNasa activas, inicie todas las reacciones lo más cerca posible de la simultaneidad. Para actividades ultradébiles, como la del LEI, el tiempo estricto es menos crítico.
NOTA: Para garantizar tiempos de incubación constantes, especialmente cuando se trata de nucleasas activas, escalone la adición de muestras en función del tiempo requerido para cada medición. Por ejemplo, si cada medición tarda 10 s, agregue la segunda muestra 10 s después de la primera.
3. Incubación
- Incube la ADNasa estudiada con la sonda FRET radiométrica a 37 ° C en un baño de agua o incubadora con temperatura regulada durante varios períodos de tiempo. Utilice múltiples puntos de tiempo con intervalos de muestreo regulares para evaluar con precisión las tasas de renovación de enzimas y minimizar los artefactos. El estudio presentado de la actividad nucleolítica ultradébil del LEI utilizó incubaciones de 24 h para registrar la reacción nucleolítica lenta.
NOTA: Determine el tiempo de incubación óptimo en los experimentos preliminares, ya que depende de la fuerza de la ADNasa estudiada. Una nucleasa activa requeriría muy poco tiempo para completar la escisión de la sonda, así que comience con una incubación de 15-30 minutos. Si la muestra está demasiado concentrada y la reacción es demasiado rápida, se debe reducir la concentración de proteínas. Si la proteína de la muestra es demasiado débil, el tiempo de incubación puede aumentar según sea necesario.
4. Normalización de la señal a las mismas condiciones de pH
- Detenga todas las reacciones de incubación agregando 100 μL de Tris-HCL 250 mM (pH 8.0). Este paso también iguala el pH en todas las muestras.
NOTA: El paso de ecualización del pH es importante cuando se comparan reacciones iniciadas en diferentes condiciones de pH. El procedimiento garantiza la separación completa de los fragmentos de la sonda maximizando su señal basada en FRET. Además, la emisión de fluoróforos FAM de la sonda se reduce en pH ácido y es óptima a pH 8.0. Para muestras con mayor fuerza iónica que las utilizadas en este estudio, es posible que se requiera una solución de ecualización más concentrada (>250 mM) y pH más alto (>8.0) para lograr un ajuste de pH efectivo.
NOTA: El pH alcalino detiene eficazmente la actividad de las nucleasas ácidas como el LEI, como se demuestra en el estudio actual. En el caso de las nucleasas neutras o alcalinas, deben identificarse y aplicarse métodos de inactivación específicos apropiados antes de la evaluación de la señal.
5. Detección de señales fluorométricas y cálculo de relaciones FRET
- Inmediatamente después del paso de ecualización del pH, use un espectrofluorómetro para registrar los espectros de emisión de los fluoróforos donantes y aceptores. Realice mediciones directamente en la placa de 96 pocillos excitando el fluoróforo donante a 488 nm y detectando simultáneamente emisiones a 525 nm (donante) y 580 nm (señal aceptora derivada de FRET).
- Utilice las intensidades de fluorescencia registradas para evaluar la actividad de la ADNasa en cada muestra. Aplicar métodos estadísticos apropiados para analizar los datos y evaluar la importancia.
NOTA: Calcule la relación FRET usando la fórmula: RFRET = Emisión donante a 525 nm / Emisión del aceptor a 580 nm. En este ensayo, la escisión del ADN interrumpe la FRET al separar los fluoróforos, lo que resulta en un aumento de la emisión del donante y una disminución de la emisión del aceptor. Este cambio aumenta la relación FRET (RFRET), que sirve como indicador de la actividad de la ADNasa.
6. Verificación del escote basada en PAGE
- Verifique la escisión de la sonda FRET realizando electroforesis en gel de poliacrilamida desnaturalizante (PAGE)14. La sonda FRET y sus productos de escisión están etiquetados con fluorescencia y son visibles sin tinción adicional.
NOTA: En el estudio representativo, la escisión mediada por LEI de la sonda FRET de 38 meros se confirmó mediante la desnaturalización de PAGE (ver Figura 2). El análisis reveló que LEI produjo fragmentos marcados con FAM de 6-8 meros y fragmentos marcados con TAM de 15-16 merios, consistentes con la escisión cerca de ambos ápices de horquilla. Este patrón difería del perfil de fragmento generado por DNasa II.- Cargue 15 μL de cada muestra en un gel PAGE desnaturalizante al 20%.
- Deje correr el gel durante 1 h a 100 V.
- Adquiera imágenes en gel utilizando un sistema de documentación equipado con una cámara a color de alta resolución.
NOTA: Las imágenes del estudio representativo se capturaron con una cámara réflex digital.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Este estudio representativo destaca las ventajas específicas del enfoque FRET radiométrico para investigar reacciones enzimáticas lentas que requieren períodos prolongados de observación. En particular, la aplicación demuestra la detección y el análisis de la actividad inherente de la ADNasa del LEI utilizando un sistema FRET radiométrico. Los resultados de este estudio se muestran en la Figura 2.
U...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Este estudio demuestra la aplicación de FRET radiométrico para la detección y evaluación de la actividad de la ADNasa utilizando una nucleasa débil: inhibidor de elastasa leucocitaria (LEI). El enfoque proporciona un método conveniente y cuantitativo para evaluar las propiedades de la ADNasa de proteínas y biomoléculas. Su protocolo es sencillo y su procedimiento de análisis de datos es directo y sencillo. El ensayo utiliza una sonda FRET de 38 meros que tolera incubaciones largas a vari...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Esta investigación fue apoyada por la subvención R01 GM148812 del Instituto Nacional de Ciencias Médicas Generales, NIH; por subvenciones R21 CA255979 del Instituto Nacional del Cáncer, NIH; y concede AG073887 R21 y R21 AG071978 ambos del Instituto Nacional sobre el Envejecimiento, NIH (todos V.V.D.).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Placa de 96 pocillos | Halcón | 353219 | |
| Sonda de ADN FRET | ADN IDT | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3'; FAM – Fluoresceína-dT; TAM – Tetrametilrodamina-dT. | |
| ADNasa II | Sigma Aldrich | D8764 | |
| Cámara réflex digital EVOLT | Olimpo | E500 | |
| Aparato de electroforesis en gel con fuente de alimentación | Bio-Rad | ||
| LEI | Novoproteína | CJ01 | |
| Sistema de imágenes en gel LiCOR | LiCOR | ||
| Agua libre de nucleasas | Invitrogen | 10977015 | |
| Gel PAGE prefabricado | Invitrogen | EC68852 | |
| Solución tampón de acetato de sodio pH 5.2 | Sigma Aldrich | S2899-100ML | |
| Espectrofluorómetro | Tecan | Fuego de vida 2 |
Referencias
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
