Aquí presentamos un estudio establecido en el iDiv Ecotron, cámaras de mesocosmos terrestre con condiciones ambientales controladas por encima y por debajo del suelo, para estudiar los efectos independientes e interactivos de la historia de las plantas y la historia del suelo en el funcionamiento del ecosistema de las comunidades de pastizales a lo largo de un gradiente de diversidad de plantas.
Artículo de método
JenaTron - Un enfoque experimental para estudiar los efectos de la historia de las plantas y la historia del suelo en el funcionamiento del ecosistema de pastizales
En este artículo
Resumen
Resumen
La pérdida global de biodiversidad ha motivado muchos estudios que varían experimentalmente la riqueza de especies de plantas y examinan las consecuencias para el funcionamiento de los ecosistemas. En general, estos experimentos muestran una relación positiva entre la biodiversidad superficial y subterránea y el funcionamiento de los ecosistemas terrestres. Además, esta relación tiende a fortalecerse con el tiempo, lo que se ve como un mejor funcionamiento de diversas comunidades vegetales y una reducción del funcionamiento de las comunidades vegetales de baja diversidad. Se plantea la hipótesis de que las diferencias en el ensamblaje de comunidades multitróficas y las interacciones bióticas en comunidades de plantas de alta y baja diversidad afectan el rendimiento de las plantas al alterar la estructura y función de la comunidad consumidora e impulsar respuestas plásticas o microevolutivas de las especies de plantas en las comunidades de plantas. Para resolver esta compleja interacción de la historia de la comunidad, separamos estos efectos en historia de la planta y del suelo. La historia de las plantas se refiere a todas las respuestas a nivel de las plantas a las presiones de selección abiótica y biótica experimentadas en el pasado en sus comunidades, mientras que la historia del suelo se relaciona con todas las propiedades abióticas y bióticas del suelo desarrolladas como un legado de las interacciones planta-suelo bajo una diversidad variable de plantas. Establecimos un experimento de biodiversidad en un Ecotron, una instalación de mesocosmos terrestre que permite controlar las condiciones ambientales por encima y por debajo del suelo, para probar si el fortalecimiento de la relación entre la biodiversidad y el funcionamiento del ecosistema se debe a la historia del suelo, la historia de las plantas o una combinación de ambas. Establecimos un gradiente de diversidad vegetal que consta de 1, 2, 3 y 6 especies de plantas de pastizales y anidamos factorialmente con tratamientos de historia de suelo e historia de plantas para cada nivel de riqueza de especies de plantas. Los resultados representativos demuestran el establecimiento exitoso de tratamientos objetivo en el experimento Ecotron, observando los efectos de la historia de la planta y el suelo en el desarrollo inicial de la planta y el crecimiento final de la planta. Además, proporcionamos un estudio de caso para el análisis de datos de variables de respuesta individuales. Describimos los objetivos y métodos de investigación para evaluar de manera integral las respuestas multifuncionales a los tratamientos experimentales necesarios para abordar en última instancia la hipótesis general.
Introducción
En las últimas tres décadas, la creciente preocupación por la pérdida de biodiversidad ha impulsado una amplia investigación centrada en la manipulación experimental de la riqueza de especies vegetales para investigar su impacto en el funcionamiento de los ecosistemas 1,2. Estudios experimentales han demostrado una relación positiva entre la diversidad vegetal y el funcionamiento del ecosistema1, que tiende a aumentar con el tiempo 3,4,5,6,7,8,9. Este es un hallazgo significativo, ya que sugiere que los resultados experimentales obtenidos de comunidades jóvenes y recientemente establecidas probablemente subestiman las consecuencias de la pérdida de biodiversidad, al tiempo que enfatizan la importancia de conservar los ecosistemas más antiguos y ricos en especies10.
Los cambios en los procesos bióticos y abióticos a lo largo del tiempo, que solo se pueden observar en experimentos a largo plazo, son una posible explicación de los efectos amplificadores de la biodiversidad en el funcionamiento de los ecosistemas. La alta diversidad de plantas se ha asociado con aumentos en las concentraciones de carbono y nutrientes del suelo 3,9,11,12,13, complementariedad optimizada de recursos 3,8,14, mayor diferenciación de nicho entre plantas15, acumulación de mutualistas en todos los niveles tróficos10,16y la disminución de las amenazas de patógenos y herbívoros a través de mecanismos reguladores descendentes más estrictos 17,18,19. Por el contrario, la baja diversidad de plantas se ha asociado con una presión selectiva hacia una mayor inversión en defensas vegetales y un uso menos eficiente de los recursos 10,20,21,22. En conjunto, se plantea la hipótesis de que las diferencias en el ensamblaje de comunidades multitróficas y las interacciones bióticas en comunidades de plantas de alta y baja diversidad influyen en el rendimiento de las plantas al alterar la estructura y la función de la comunidad de consumidores, así como al impulsar cambios plásticos o microevolutivos de las especies de plantas a nivel de las comunidades de plantas 23,24,25,26. Para resolver la compleja interacción de la historia de la comunidad, estos efectos se separaron en dos componentes importantes: la historia de las plantas y la historia del suelo. La historia de las plantas se refiere a todas las respuestas de las plantas a las presiones de selección abiótica y biótica experimentadas en el pasado en sus respectivas comunidades, mientras que la historia del suelo se relaciona con todas las propiedades abióticas y bióticas del suelo desarrolladas como resultado de las interacciones planta-suelo 23,24,27,28. Ambos componentes son cada vez más reconocidos como impulsores clave de los efectos a largo plazo en la biodiversidad 29,30,31.
Los estudios experimentales de campo proporcionan información valiosa sobre los efectos a largo plazo de la historia del suelo y las plantas en condiciones ambientales realistas y a gran escala espacial32,33. Sin embargo, los experimentos de campo están sujetos a varios factores externos no controlados, como fluctuaciones climáticas, perturbaciones naturales e interacciones con otros organismos. Por el contrario, los experimentos de microcosmos a pequeña escala, aunque limitados para capturar la complejidad y la dinámica de los ecosistemas naturales, ofrecen un control preciso sobre factores abióticos como la temperatura, la luz yel agua. Para combinar las ventajas de ambos enfoques, en la década de 1990 surgieron nuevas instalaciones experimentales llamadas "Ecotrones" (por ejemplo, Ecotron en Silkwood, Reino Unido34; Ecotron en Montpellier, Francia35; Ecotron en Hasselt, Bélgica36). Roy et al. (2021)37 definen un Ecotron como una instalación experimental que consta de recintos replicados diseñados para acomodar muestras del ecosistema, lo que permite una simulación realista de las condiciones ambientales por encima y por debajo del suelo, al tiempo que facilita la medición simultánea y automatizada de los procesos del ecosistema. Por lo tanto, los Ecotrones permiten el estudio integrado de procesos ecosistémicos complejos, interacciones multitróficas y funciones del ecosistema. Pueden albergar una variedad de organismos superficiales y subterráneos de múltiples niveles tróficos en una gran serie de cámaras mesoscópicas independientes, lo que permite un control y monitoreo precisos de las condiciones ambientales en sistemas terrestres y aéreos37,38.
En este estudio, pusimos en marcha un experimento en el iDiv Ecotron38,39, denominado "Experimento JenaTron" (Figura 1 y Figura 2), para probar si las relaciones entre la biodiversidad y el funcionamiento del ecosistema (BEF) en comunidades con diferentes niveles de riqueza de especies vegetales están moduladas por la historia del suelo, la historia compartida de las plantas o un efecto combinado de ambas. El iDiv Ecotron está diseñado específicamente para experimentos de biodiversidad multitrófica, centrándose en la investigación conjunta de las interacciones por encima y por debajo del suelo en los ecosistemas terrestres 38,39,40. Comprende 24 unidades experimentales idénticas, denominadas "EcoUnidades" (Figura 2F, G), cada una capaz de acomodar hasta cuatro ecosistemas individuales en compartimentos aislados (Figura 2K), lo que permite la construcción de ecosistemas complejos y casi naturales al tiempo que minimiza el impacto de la variabilidad ambiental. Una ventaja clave es la capacidad de establecer múltiples réplicas de monolitos de suelo intactos (Figura 2A-C) en condiciones ambientales controladas, lo que permite la medición de procesos ecosistémicos intrincados, incluidos los efectos de retroalimentación planta-planta y planta-suelo, que a menudo son difíciles de capturar en experimentos de microcosmos a pequeña escala38,39.
En Europa, los pastizales seminaturales se encuentran entre los ecosistemas terrestres más biodiversos y complejos, ya que proporcionan servicios ecosistémicos vitales. Sin embargo, desde principios del sigloXX, estos pastizales ampliamente gestionados se han enfrentado a crecientes amenazas por el cambio de uso de la tierra, lo que los convierte en un foco clave para la conservación de la biodiversidad y la investigación. Uno de los experimentos de biodiversidad más antiguos del mundo en pastizales extensivamente gestionados es el Experimento de Jena32,33, ubicado en Jena, Alemania (50.951°N, 11.621°E, 139 m s.n.m.; sitio web: https://the-jena-experiment.de). Establecido en 2002, el experimento investiga las relaciones entre la diversidad de plantas de los pastizales y el funcionamiento de los ecosistemas, centrándose particularmente en el ciclo de nutrientes y las interacciones tróficas32,33. Para la instalación del Experimento JenaTron dentro del iDiv Ecotron, utilizamos el Experimento Basado en Rasgos41 (TBE), un componente del Experimento Jena iniciado en 2010 y completado en 2021. En 2022, se seleccionaron 23 parcelas del TBE para establecer un gradiente de diversidad vegetal que va de una a seis especies, abarcando más de 24 comunidades vegetales dentro del iDiv Ecotron. Estas comunidades comprendieron seis especies de plantas de pastizal, que se superpusieron con el Experimento Principal del Experimento de Jena y representaron tres especies de gramíneas (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) y tres especies de hierbas (Leucanthemum vulgare agg., Plantago lanceolata L. y Ranunculus acris L.; ver Tabla 1 para obtener detalles sobre la composición de las especies vegetales y las réplicas para cada nivel de diversidad vegetal). Estas especies, muy extendidas y frecuentemente coexistentes en los pastizales seminaturales europeos, difieren adicionalmente en sus rasgos de adquisición de recursos temporales, lo que las hace ideales para estudios exhaustivos del uso de recursos temporales, como la fenología de las plantas41. Las 24 composiciones de plantas se asignaron aleatoriamente a todas las EcoUnidades (Figura 1C), y cada EcoUnidad se subdividió a su vez en cuatro compartimentos para acomodar las combinaciones factoriales de los tratamientos de historia del suelo y de historia de la planta.
La historia del suelo (Figura 1A) se estableció mediante la excavación de un total de 96 monolitos de suelo del Experimento de Jena. El suelo del sitio es un suelo de llanura aluvial rico en nutrientes clasificado como Fluvisol Éutrico, desarrollado a partir de sedimentos arcillosos de río32,33. La información detallada sobre el pH del suelo, los cambios en la textura del suelo y la materia orgánica dentro del perfil del suelo del Experimento Jena se puede encontrar en Lange et al. (2023)9. De los 96 monolitos, 48 se obtuvieron mediante la excavación de dos monolitos de cada una de las 22 parcelas de TBE, que abarcan monocultivos, mezclas de dos y tres especies. Además, se tomaron cuatro monolitos de una parcela de ocho especies, que servirán como una mezcla de seis especies en el Experimento JenaTron. Cada uno de estos 48 monolitos de suelo (profundidad: 0,8 m; diámetro: 0,5 m) albergaba una comunidad de residencia específica de la parcela desde 2010, lo que representa una historia de suelo específica de la comunidad de plantas (+SH). Los 48 monolitos restantes se excavaron en cuatro parcelas de suelo desnudo que se mantuvieron libres de vegetación desde el inicio del Experimento de Jena en 2002, por lo que carecen de cualquier historia de suelo específica de la comunidad de plantas (-SH). De cada una de las cuatro parcelas de tierra desnuda se excavaron 12 monolitos. Los dos tratamientos de historia del suelo (+SH; -SH) se combinaron factorialmente con dos tratamientos de historia de plantas mediante la siembra de plantas precultivadas que reflejaban la composición específica de la comunidad vegetal del TBE a una densidad igual, con plantas individuales espaciadas a 6 cm de distancia.
La historia de la planta (Figura 1B) se estableció utilizando dos fuentes de semillas distintas para cada una de las especies de plantas seleccionadas del grupo de especies del Experimento de Jena: La primera fuente consistió en semillas recolectadas de plantas que habían experimentado una historia específica de la comunidad desde 2010, correspondientes a las parcelas exactas del Experimento Basado en Rasgos (TBE) de las que se excavaron los monolitos del suelo (+PH). Estas semillas se recolectaron de mayo a septiembre de 2019 dependiendo de la fenología de floración de la especie, asegurando que se muestrearon un mínimo de cinco individuos por especie y parcela. Después de la recolección, las semillas se limpiaron y almacenaron a -20 °C hasta el inicio del experimento JenaTron. La segunda fuente de semillas consistió en semillas obtenidas de un proveedor comercial de semillas que produce semillas de procedencias regionales. Estas semillas se utilizaron para establecer las parcelas TBE en 2010, representando así plantas sin un historial de selección específico de la comunidad dentro del Experimento Jena (-PH) y se almacenaron a -20°C desde 2010 hasta el inicio del Experimento JenaTron. Ambas historias de las seis especies de plantas perennes se cultivaron previamente de febrero a mayo de 2022 en cuatro cámaras del invernadero de investigación iDiv ubicado en Leipzig, Alemania (51.330°N, 12.393°E, 120 m s.n.m.).
La combinación factorial de la historia del suelo (SH) y la historia de la planta (PH) en cada nivel de riqueza de especies vegetales dio como resultado cuatro tratamientos dentro de cada una de las 24 EcoUnidades: (1) con historia del suelo, con historia de la planta (+SH/+PH), (2) con historia del suelo, sin historia de la planta (+SH/-PH), (3) sin historia del suelo, con historia de la planta (-SH/+PH), y (4) sin historia del suelo, sin historia de planta (-SH/-PH; Figura 1C). El objetivo principal del Experimento JenaTron es investigar si el fortalecimiento de la relación entre la biodiversidad y el funcionamiento del ecosistema se debe a la historia del suelo, a la historia de las plantas o a una combinación de ambas. Nuestra hipótesis es que las comunidades de plantas con una historia compartida de plantas y comunidades del suelo mostrarán la relación más fuerte con la BEF, mientras que una exclusión experimental de la historia del suelo, la historia de la planta o ambas puede tener efectos perjudiciales en las relaciones positivas de la diversidad de plantas y el funcionamiento del ecosistema. En última instancia, si la historia del suelo o de las plantas alterara la relación entre la riqueza de las especies de plantas y el funcionamiento del ecosistema, esto serviría como una consideración importante para la conservación y el seguimiento de las comunidades localmente preservadas y nuevas restauradas.
Protocolo
NOTA: Asegúrese de que se proporcione el equipo de protección personal adecuado (por ejemplo, cascos, guantes, chalecos, zapatos de seguridad, etc.) en todas las etapas del protocolo.
1. Suelos: Preparación, excavación, instalación
- Fuentes de suelo, selección de parcelas y preparación (febrero de 2022)
- Seleccione dos fuentes de suelo del sitio de campo del Experimento Jena:
- Seleccione 23 parcelas TBE que albergaron una comunidad específica de parcela durante 12 años para cubrir un gradiente de diversidad vegetal de 1, 2, 3 y 6 especies. Designe estas parcelas como tratamiento del Experimento JenaTron "con historia de suelo específica de la comunidad de plantas" (+SH).
- Seleccione 4 parcelas de suelo desnudo con las mismas propiedades del suelo que las parcelas TBE (pH, contenido de arena, etc.), pero mantenidas sin cobertura vegetal desde 2002. Designe estas parcelas como tratamientos del Experimento JenaTron "sin una historia específica de la comunidad de plantas" (-SH).
- Retire suavemente los 5 cm superiores de tierra de todas las parcelas seleccionadas con una miniexcavadora para igualar las condiciones en los tratamientos históricos del suelo.
- Seleccione dos fuentes de suelo del sitio de campo del Experimento Jena:
- Excavación de monolito de suelo (marzo de 2022)
- Instale el dispositivo de extracción monolítico en cada parcela, monte un sistema de corte en un cilindro de acero vacío e insértelo en el dispositivo de extracción (Figura 2A).
- Encienda el dispositivo y el sistema de corte girará alrededor de la pared exterior del cilindro. El sistema corta una muesca en el suelo en la que el dispositivo de extracción presiona simultáneamente el cilindro de acero. Paralelamente, use una miniexcavadora para excavar un pozo en el costado del cilindro de acero (Figura 2B).
- Una vez que el cilindro de acero esté completamente incrustado en el suelo, suba al pozo lateral y sujete el monolito en el borde inferior del cilindro de acero montando una placa inferior temporal y use el dispositivo de extracción del monolito para sacarlo del pozo de excavación (Figura 2C).
- Desmonte el sistema de corte del cilindro de acero, monte una placa superior temporal en el cilindro de acero, levante el monolito con una suspensión unida a la miniexcavadora y gírelo boca abajo.
- Instalación del sistema de succión de agua (marzo de 2022)
- Desmonte la placa inferior, retire aproximadamente 5 cm de capa de tierra con una paleta y guárdela para su uso posterior.
- Incruste un anillo de sondas de succión de agua (8 velas conectadas con mangueras de cloruro de polivinilo [PVC]) en polvo de cuarzo, humedézcalo con agua desmineralizada (VE) y vuelva a llenar el fondo del cilindro de acero con la tierra previamente eliminada.
- Conecte la pieza final de PVC del anillo de la sonda de succión de agua a la placa inferior y atorníllela posteriormente.
- Vuelva a colocar el cilindro de acero con la suspensión de la miniexcavadora en posición vertical, etiquételo individualmente, selle las aberturas de las paredes del cilindro con cinta adhesiva y envuelva el cilindro en papel de aluminio para protegerlo durante el transporte.
- Transporte de los monolitos del suelo con un camión al iDiv Ecotron, ubicado en la estación de campo experimental del Centro Helmholtz para la Investigación Ambiental (UFZ) en Bad Lauchstädt, Alemania (51.392°N, 11.876°E, 116 m s.n.m.).
- Instalación de sensores de suelo (abril 2022)
- Después de desembalar, corte con precisión los orificios para los sensores horizontalmente en el monolito del suelo con una cuchilla de acero personalizada utilizando las aberturas en la pared del cilindro a tres profundidades diferentes (9,5 cm, 21,5 cm y 43,5 cm).
- Coloque los sensores de suelo en los agujeros, use un tronco de madera para colocarlos en la posición correcta y atornille las aberturas con tapones de sellado hechos a medida.
- Instalación de los monolitos de suelo en las EcoUnits (abril de 2022)
- Levante con cuidado la parte técnica y superior de cada EcoUnit desde la parte inferior (Figura 2G). Transporta la parte inferior a los cilindros de acero que albergan los monolitos de suelo intactos equipados con sensores de suelo.
- Conecte cada cilindro de acero a una suspensión, levántelo con una carretilla elevadora y monte un conector en el anillo de la vela de succión conectado a la placa inferior.
- Levante cuatro monolitos de suelo en el contenedor inferior de cada una de las 24 EcoUnits (Figura 2F), con dos con el mismo historial de suelo específico de la comunidad de plantas (+SH) y dos sin historial de suelo específico de la comunidad de plantas (-SH). Conduzca los cables de los sensores de suelo a través de las aberturas del contenedor de tierra.
- Fije los cilindros de acero a la parte inferior con tornillos y posteriormente conecte los anillos de las velas de succión de agua de cada cilindro al sistema de succión de agua de la EcoUnit a través del conector previamente instalado.
- Utilice la carretilla elevadora para transportar el contenedor equipado con los monolitos de tierra a una nave (24 m x 24 m).
- Coloque con cuidado las partes técnicas y superiores (con paredes internas entre las subunidades [Figura 2K]) de cada EcoUnit encima de la parte inferior.
- Organice las 24 EcoUnidades en tres filas, cada una de las cuales consta de dos grupos de cuatro EcoUnidades, formando un total de seis bloques. Asegure una distancia de centro a centro de 6 m entre bloques dentro de cada fila y de 8,2 m entre filas. En cada bloque, asigne aleatoriamente los cuatro niveles de diversidad de plantas (1, 2, 3 y 6) a las cuatro EcoUnidades, asegurando una distribución uniforme de las especies en todas las EcoUnidades siempre que sea posible.
2. Plantas: Preparación e instalación de cultivo
- Selección de especies y material de semilla
- Seleccione las siguientes seis especies de plantas del grupo de especies del Experimento de Jena: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) y Ranunculus acris L. (Ranunculaceae).
- Para cada especie, seleccione material de semilla que provenga de dos fuentes de semillas diferentes:
- Utilice semillas de plantas que habían estado creciendo en las parcelas TBE del Experimento Jena desde 2010 (con historia de plantas, +PH).
- Utilice el material de semilla original que se utilizó para iniciar el TBE en 2010 procedente de un productor regional de semillas (sin historial de plantas, -PH).
- Preparación del sustrato (febrero de 2022)
- Recoja el suelo específico de cada parcela de cada una de las parcelas seleccionadas en el sitio de campo del Experimento Jena. Llene la tierra en cajas de plástico de 20 L y guárdela a 4 °C hasta que se utilice para el cultivo de plantas.
- Tamizar cada suelo específico de la parcela a través de una malla de 4 mm. Mezcle la tierra de las cuatro parcelas de suelo desnudo antes de tamizar.
- Para eliminar la biota no deseada, transfiera la arena de cuarzo a recipientes de acero inoxidable y caliéntela en un horno de secado durante 4 h a 200 °C.
- Mezcle la tierra específica de la parcela y la arena de cuarzo por volumen en una proporción de 3:1 y llene la mezcla de tierra y arena en placas multimaceta con una pala de plástico (n total = 152).
- Etiquete cada plato multimaceta individualmente y colóquelos en un invernadero con un ciclo día-noche de 16 h/18 °C y 8 h/12 °C, manteniendo una humedad moderada de 60%-70% de humedad relativa (HR).
- Riegue las placas a demanda y manténgalas desnudas durante dos semanas para permitir que los bancos de semillas del suelo germinen. Quite las malas hierbas de todos los platos dos veces para eliminar las plántulas no deseadas.
- Campaña de siembra (marzo-abril 2022)
- Determine el orden de siembra en función del tiempo de germinación específico de la especie de la siguiente manera:
- Siembre R. acris 2 semanas antes que otras hierbas
- Siembre P. lanceolata y L. vulgare 1 semana antes que las gramíneas A. odoratum, D. glomerata y H. lanatus.
- Siembre todas las especies, excepto R. acris, directamente en el sustrato de suelo-arena específico de la parcela (3:1) en placas multimaceta con dos o tres semillas por maceta. Después de una germinación exitosa, adelgace todas las especies a plántulas individuales con pinzas de acero para resortes.
- Tratamiento previo de las semillas de R. acris en placas de Petri sobre papel de filtro humedecido con una solución de ácido giberélico (1000 mg. L-1) para romper la latencia (Figura 2D). Incubar las semillas durante 24 h.
- Transfiera las semillas de R. acris a papel de filtro humedecido con agua desmineralizada (EV) hasta la germinación. Una vez que las semillas alcanzan la etapa de radícula, pinche las plántulas en el sustrato de suelo y arena específico de la parcela (3:1) en las placas multimaceta preparadas con pinzas de acero para resortes.
- Riegue todos los individuos de la planta con agua desionizada a demanda y manténgalos en el invernadero hasta que los transporte al iDiv Ecotron (Figura 2E-H)
- Determine el orden de siembra en función del tiempo de germinación específico de la especie de la siguiente manera:
- Campaña de plantación (mayo 2022)
- Diseñar esquemas de plantación individuales para todos los monolitos del suelo con las siguientes características:
- Asegurar un número equilibrado de individuos por especie dentro de las comunidades vegetales.
- Mantenga una distancia de 6 cm entre cada planta individual y su vecina.
- Aleatorice el patrón de plantación entre EcoUnits, pero manténgalo constante dentro de las subunidades.
- Utilice una plantilla de plantación hecha a medida para marcar la posición exacta de cada planta individual en los monolitos del suelo. Use palillos de plástico de diferentes colores para marcar, asignando un color específico a cada especie. Después de marcar, retire la plantilla (Figura 2I).
- Plante las plantas precultivadas en todos los monolitos del suelo dentro de una semana utilizando macetas de bulbo con un diámetro de 4 cm (5280 individuos de plantas en total; Figura 2J).
- Diseñar esquemas de plantación individuales para todos los monolitos del suelo con las siguientes características:
3. Curso del experimento
- Fase de establecimiento de tres semanas (mayo de 2022):
- Reemplace todos los individuos que no sobrevivieron a la campaña de siembra dentro de las 2 semanas posteriores a la siembra inicial (n = 124 [2.35%]).
- Encienda las luces y ajuste el régimen de iluminación a un ciclo día-noche de 16/8 h. Para replicar la duración del día regional a finales de la primavera y el verano al comienzo del experimento, simule el anochecer atenuando las luces de 100% a 75% de intensidad durante una hora, y luego a 0% durante la siguiente hora (100% de intensidad: ~370 μmol/(m²·s)). Simule el amanecer invirtiendo este patrón de atenuación.
- Ecualice la humedad superior del suelo al 20% (± 3%) por volumen utilizando un kit de medición de humedad del suelo.
- Ajuste el riego inicial a 450 mL cada 12 h para cada subunidad.
- Conecte sensores de aire y suelo para monitorear la temperatura y la humedad durante todo el experimento.
- Fase experimental (junio-octubre 2022)
- Siguiendo la estacionalidad natural, acorte la duración del día en una hora completa cada 2 semanas de agosto a octubre para tener en cuenta la duración regional de los días desde finales del verano hasta el otoño.
- Aumentar el riego inicial a 650 mL cada 12 h en julio y 750 mL cada 12 h en agosto, ajustándose a las demandas hídricas de la planta.
- Elimine constantemente las plántulas no deseadas en la etapa de cotiledón con pinzas para mantener la densidad de la planta y minimizar la perturbación de la estructura del suelo.
- De acuerdo con el manejo estándar para praderas extensivas manejadas, realice dos cosechas de biomasa aérea, cortando las plantas a 3 cm por encima de la superficie del suelo con tijeras.
Resultados
Para proporcionar información inicial sobre la efectividad de este enfoque para probar los efectos independientes e interactivos de la historia de las plantas y el suelo en las relaciones de funcionamiento entre la biodiversidad y el ecosistema, primero evaluamos fotografías de dos EcoUnits representativas después de la fase de establecimiento de 3 semanas del Experimento JenaTron, donde los efectos del tratamiento se hicieron visibles rápidamente (Figura 3). Además de las diferencias específicas del tratamiento en la altura y el color de la comunidad de plantas (Figura 3A), también reconocimos diferencias específicas del tratamiento en el tiempo de floración de R. acris. Específicamente, las plantas cultivadas a partir de semillas sin historia de plantas parecían tener un inicio de floración más temprano que las plantas cultivadas a partir de semillas con la historia de plantas específica de la comunidad del Experimento de Jena (Figura 3B).
Para evaluar si las comunidades recién establecidas en el iDiv Ecotron reflejan con precisión las comunidades de campo originales, se realizó un análisis comparativo de la altura de la planta vegetativa específica de la especie como indicador del desarrollo final de la planta entre el Experimento JenaTron y las parcelas TBE. En el Experimento JenaTron, la altura de la planta se determinó como el valor medio de la hoja vegetativa más alta de tres individuos por especie de planta en cada una de las 24 comunidades y combinaciones de tratamiento justo antes de la primera campaña de cosecha a finales de julio de 2022. En el TBE, se determinó la altura vegetativa de la planta como el valor medio de la hoja vegetativa más alta de tres individuos por especie vegetal y parcela en julio de 2012. Las mediciones de altura de la planta del iDiv Ecotron muestran una fuerte correlación con las de las parcelas de campo del Experimento Jena (Figura 1 suplementaria).
Para proporcionar un estudio de caso adicional para el análisis de datos, se investigó con más detalle la altura vegetativa de la planta en el iDiv Ecotron. Nos centramos en análisis a nivel de especie y comunidad y probamos si la historia de las plantas, la historia del suelo y la diversidad de plantas influyen en el crecimiento vegetativo de las plantas. Para ello, utilizamos modelos lineales de efectos mixtos (LMM) y resumimos los resultados mediante ANOVA (suma de cuadrados de tipo I; para obtener resultados detallados de ANOVA, consulte la Tabla complementaria 1). A nivel de parcela, las variables de respuesta fueron la altura vegetativa media de la planta y el coeficiente de variación de la altura de la planta (CV = de/media 100). Los efectos fijos incluyeron la diversidad de plantas (numéricos), los tratamientos de la historia de las plantas y del suelo, y sus interacciones. Los efectos aleatorios incluyeron EcoUnit anidada dentro del bloque de la sala Ecotron. A nivel de especies, adicionalmente incluimos las especies y su interacción con la diversidad vegetal y los tratamientos históricos en términos fijos. Las transformaciones de datos (logarítmico para la altura de la planta y raíz cuadrada para la altura (CV) garantizaron que se cumplieran las suposiciones del modelo. Los análisis se realizaron utilizando R (Versión 4.3.1)42 y el paquete nlme para LMMs43. Los resultados mostraron diferencias significativas entre las especies en la altura de las plantas, con gramíneas más altas que las hierbas (Figura 4, Figura complementaria 2). En todas las especies, la historia del suelo tuvo un efecto positivo en la altura de la planta (F(1,66) = 11.11, P = 0.001), mientras que la historia y la diversidad de la planta no tuvieron un impacto significativo (F(1,66) = 0.22, P = 0.64 y F(1,17) = 1.52, P = 0.23, respectivamente; Figura 4). A nivel de comunidad, la diversidad de plantas no tuvo efecto sobre la altura (F(1,17) = 0.01, P = 0.91; Figura 5A) pero aumentó significativamente la altura de planta CV dentro de las comunidades (F(1,17) = 14.29, P = 0.002; Figura 5B). No se encontraron efectos significativos de la historia de la planta o del suelo sobre la altura de la planta CV (F(1,68) = 0,55; P = 0,46; F(1,68) = 0,09, P = 0,76; Figura 5). Hemos subido los datos y el script R a la base de datos del Experimento Jena (https://doi.org/10.25829/QN9R-J839).

Figura 1: Configuración del experimento JenaTron. (A) La Historia del Suelo (SH) se estableció mediante la excavación de 96 monolitos de suelo intactos del Experimento Jena (JE), de los cuales la mitad (n = 48) se obtuvieron de 23 parcelas que albergaron una comunidad específica de parcelas durante 12 años (+SH), mientras que la otra mitad (n = 48) se obtuvo de cuatro parcelas de suelo desnudo que se mantuvieron sin vegetación desde el comienzo del Experimento Jena en 2002 (-SH). (B) La historia de las plantas (PH) se estableció utilizando dos fuentes de semillas para cada una de las seis especies de plantas: semillas recolectadas de plantas cultivadas desde 2010 en las mismas parcelas, donde se excavaron los monolitos en el Experimento de Jena (+ PH), y las semillas originales utilizadas para sembrar estas comunidades en el campo en 2010 (-PH). (C) La historia de la planta y la historia del suelo se cruzaron de forma independiente para cada composición a diferentes niveles de diversidad de plantas (1, 2, 3 y 6), lo que resultó en cuatro tratamientos en cada EcoUnidad del iDiv Ecotron: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH y (4) -SH/-PH. Haga clic aquí para ver una versión más grande de esta figura.

Figura 2: El iDiv Ecotron en la Estación de Investigación del Centro Helmholtz para la Investigación Ambiental (UFZ) en Bad Lauchstädt, Alemania. (A) Equipo de excavación de monolito de suelo en el campo, (B) Excavación de monolito de suelo en el campo, (C) Pozo de excavación en el campo, (D) Preparación del material de semilla de Ranunculus acris en placas de Petri sobre papel de filtro humedecido con una solución de ácido giberélico en el invernadero, (E) Precultivo de plantas con sustrato de suelo específico de la parcela en placas multimaceta en el invernadero, (F) EcoUnits en la sala iDiv Ecotron, (G) Representación esquemática de una unidad experimental ("EcoUnit") con equipo técnico (adaptado de Eisenhauer et al. (2019)23 y Schmidt et al. (2021)38), (H) Placas con todos los individuos que se plantarán en el Experimento JenaTron) después del transporte al iDiv Ecotron, (I) Marcado específico de la especie de las posiciones de plantación para todos los individuos de plantas en un monolito de suelo hecho con una plantilla de plantación, (J) Plantación de individuos de plantas en un monolito de suelo utilizando macetas de bulbos, (K) Cuatro lisímetros en una EcoUnidad con paredes internas. Haga clic aquí para ver una versión más grande de esta figura.

Figura 3: Dos representantes de las 24 EcoUnidades, cada una con una comunidad en todas las combinaciones de tratamiento de la historia de la planta y el suelo. (A) EcoUnidad con una mezcla de 3 especies (A. odoratum, H. lanatus y P. lanceolata) con diferencias específicas del tratamiento en la altura y el color de la vegetación de la comunidad. (B) EcoUnidad con un monocultivo de R. acris, lo que indica diferencias en el tiempo de floración dependientes de la historia de la planta. Haga clic aquí para ver una versión más grande de esta figura.
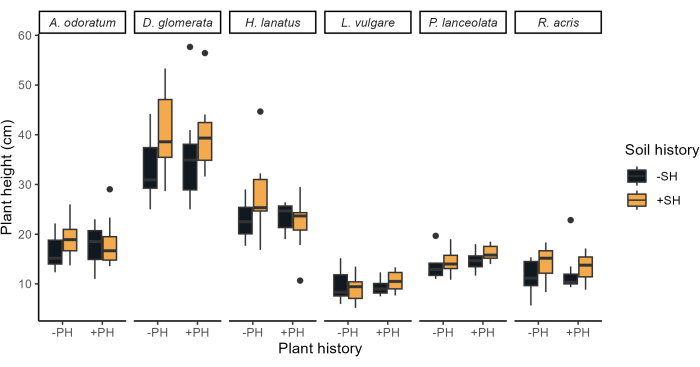
Figura 4: Efectos de la historia de las plantas y el suelo en la altura vegetativa de las plantas (cm) de las seis especies de plantas de pastizales antes de la primera cosecha en julio de 2022. Las especies se enumeran alfabéticamente dentro de grupos funcionales (gramíneas seguidas de hierbas). Los tratamientos de la historia de la planta (+PH/-PH) están en el eje x, y la historia del suelo (+SH/-SH) está codificada por colores (amarillo/negro) en los diagramas de caja. Haga clic aquí para ver una versión más grande de esta figura.
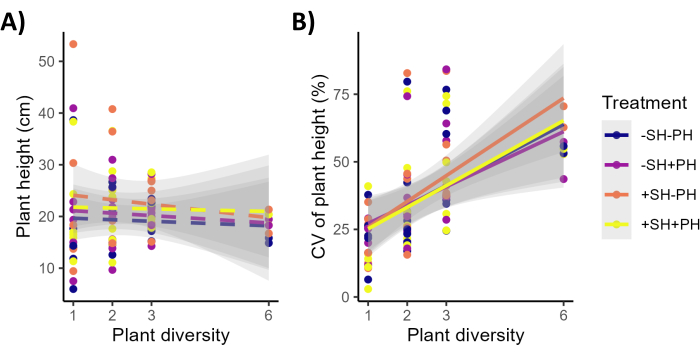
Figura 5: Efectos de la riqueza de especies sobre la media de la comunidad y la variación en la altura vegetativa de la planta. (A) Media de la comunidad. (B) Variación en la altura vegetativa de la planta. (+PH/-PH) para la historia de la planta, (+SH/-SH) para la historia del suelo. La variación de la altura de la planta (CV) se muestra por subunidad. Las líneas discontinuas representan efectos no significativos, las líneas continuas representan efectos significativos en la diversidad de plantas. Haga clic aquí para ver una versión más grande de esta figura.
Tabla 1 Comunidades de plantas en el Experimento JenaTron. Monocultivos de todas las especies vegetales seleccionadas (n = 6); mezclas de 2 especies (n = 9); Mezclas de 3 especies (n = 7) todas con diferentes composiciones; y dos réplicas idénticas de la mezcla de 6 especies (n = 2). Haga clic aquí para descargar esta tabla.
Figura complementaria 1: Altura media de las plantas de las especies. Altura media de las plantas de las especies en las parcelas (A) del Experimento JenaTron (julio de 2022) y en las parcelas de campo (B) TBE (julio de 2012). Solo se incluyeron en el panel A los datos del tratamiento con historia de plantas y antecedentes de suelos. Existe una correlación significativa entre la altura de la planta en el Experimento JenaTron y las parcelas de campo (correlación de Pearson r(49) = 0.45, p = 0.0008). Haga clic aquí para descargar este archivo.
Figura complementaria 2: Efectos de los tratamientos de historia de plantas y suelos sobre la altura vegetativa de la planta (cm) de las seis especies de plantas a diferentes niveles de diversidad vegetal (SR). Los símbolos de leyenda +PH y -PH representan tratamientos con y sin historia de plantas, mientras que +SH y -SH significan tratamientos con y sin historia de suelo, respectivamente. Haga clic aquí para descargar este archivo.
Tabla suplementaria 1: El ANOVA es el resultado de modelos lineales de efectos mixtos que evalúan los efectos de la diversidad de plantas (riqueza de especies, SR), la historia del suelo (SH) y la historia de las plantas (PH) sobre la altura de las plantas tanto a nivel de especie como a nivel de parcela. Los valores F y P se informan para cada término. Nota: numDF y denDF representan los grados de libertad del numerador y del denominador para cada término del modelo. Los valores de p < 0,05 sugieren un efecto estadísticamente significativo sobre la altura de la planta. Haga clic aquí para descargar este archivo.
Tabla complementaria 2: Mediciones por encima y por debajo del suelo, variables de respuesta y métodos. Un espectro de mediciones por encima y por debajo del suelo, variables de respuesta y métodos realizados en el Experimento JenaTron para estudiar los efectos independientes e interactivos de la historia de las plantas y la historia del suelo en las relaciones de BEF para los ecosistemas en su conjunto. Haga clic aquí para descargar este archivo.
Discusión
Con el Experimento JenaTron, proporcionamos un enfoque experimental complementario al sitio de campo32,33 del Experimento Jena para mejorar nuestra comprensión mecanicista de las relaciones BEF. El experimento de campo nos permite estudiar los efectos a largo plazo de la historia del suelo y la historia de las plantas en el funcionamiento del ecosistema en condiciones ambientales realistas, con parcelas grandes e inalteradas que permiten mediciones repetidas durante muchos años. Las combinaciones seleccionadas aleatoriamente de especies vegetales de un gran conjunto de especies a lo largo de un gradiente de diversidad vegetal bien establecido desde monocultivos hasta 60 especies ayudan a identificar los efectos de la diversidad al excluir los efectos específicos de las especies tanto como sea posible32,33. Sin embargo, el Experimento de Campo, refiriéndose aquí explícitamente al "Experimento ΔBEF" como parte del Experimento de Jena (para más detalles, véase Vogel et al. (2019)29), se limita a investigar la historia del suelo y la historia de las plantas de forma completamente independiente entre sí y de las posibles influencias de diversos factores externos, como las fluctuaciones meteorológicas, las perturbaciones naturales y las interacciones con otros organismos29. En este punto, el enfoque complementario del uso de experimentos Ecotron entra en el foco de la investigación de BEF. Los experimentos de Ecotron representan un vínculo importante entre los experimentos de microcosmos a pequeña escala y a corto plazo, que estudian solo unas pocas o incluso una sola especie y, por lo tanto, reducen la alta complejidad de los experimentos de campo o incluso del mundo real34,38. Por lo tanto, el objetivo principal de los experimentos de Ecotron no es imitar toda la complejidad de la naturaleza, sino crear ecosistemas simplificados pero biológicamente significativos. Esto permite comprender mejor muchos, pero por supuesto no todos, los procesos biológicos y las interacciones que ocurren en el mundo real34,37. Además, los sistemas cerrados de un Ecotron permiten estudiar flujos y procesos, que a menudo no se pueden estudiar fácilmente en el campo35.
Se han utilizado varias modificaciones de la técnica experimental en estudios anteriores, lo que subraya la importante adaptabilidad de la instalación iDiv Ecotron. Por ejemplo, el experimento "Insect Armageddon"44, realizado en 2018, implicó una reconfiguración de las EcoUnits mediante la eliminación de las paredes interiores sobre el suelo y la disección subterránea con cilindros de acero. En su lugar, los contenedores subterráneos se llenaron en su totalidad con una mezcla de suelo y arena, lo que facilitó el establecimiento de comunidades de pastizales que comprendían 12 especies de plantas europeas en una superficie de suelo de 1,5m2 por EcoUnit. Este diseño experimental permitió la introducción de dos niveles distintos de abundancia de invertebrados aéreos, lo que permitió a los investigadores investigar los impactos de la disminución de la biomasa de invertebrados en las funciones y servicios de los ecosistemas dentro de los ecosistemas de pastizales de Europa Central. Otro ejemplo ilustrativo es el experimento "EcoLux", realizado en 2020, que demostró una modificación en el régimen de luz para investigar los efectos de la contaminación lumínica nocturna en la diversidad y el rendimiento de las plantas45 , así como su influencia en las comunidades y funciones del suelo46. De cara al futuro, el potencial de nuevas modificaciones sigue siendo sustancial. El próximo experimento "ResCUE", previsto para 2026, tiene como objetivo examinar las relaciones entre la diversidad de plantas y la estabilidad de los ecosistemas en condiciones climáticasextremas 26. Este experimento implementará una sequía cálida estandarizada, una condición ambiental difícil de replicar en entornos naturales, mediante la simulación de una reducción de las precipitaciones junto con un aumento de las temperaturas a través de un gradiente de diversidad de plantas de pastizales establecido en el iDiv Ecotron. El estudio se centrará en evaluar la resistencia y recuperación de múltiples funciones ecosistémicas en respuesta al evento climático extremo controlado26.
Sin embargo, el uso de las instalaciones de Ecotron para tender puentes entre los experimentos de campo y los experimentos de microcosmos a pequeña escala también conlleva limitaciones, como una escala espacial relativamente pequeña, un bajo número de réplicas, una menor complejidad biológica y la falta de representación de la variabilidad climática natural37. Además, la instalación iDiv Ecotron no puede simular todo tipo de escenarios climáticos, como los inviernos, lo que limita su capacidad para estudiar plantas individuales en un ciclo anual realista a lo largo de varias generaciones. Por lo tanto, como se mencionó anteriormente, es muy importante considerar los estudios de Ecotron como enfoques de investigación complementarios que, en última instancia, deben considerarse en combinación con los resultados de otros enfoques experimentales37. Sin embargo, la instalación iDiv Ecotron nos ofrece la oportunidad única de estudiar monolitos de suelo intactos en condiciones ambientales controladas, de cruzar ortogonalmente plantas con diferentes historias específicas de comunidades vegetales con suelos con diferentes historias específicas de comunidades vegetales y de estudiar sus efectos en el funcionamiento del ecosistema a lo largo de un gradiente de diversidad vegetal, lo cual es difícil de lograr en condiciones de campo23, Artículo 35. Además, la técnica permite estudiar las plantas en su conjunto, tanto por encima como por debajo del suelo, en condiciones ambientales controladas, lo que no es fácil de lograr en el campo. Por último, en el Experimento JenaTron, las comunidades de plantas plantadas (en lugar de sembradas) se establecieron para garantizar densidades totales de plantas iguales, con cada especie representada en proporciones iguales. Por el contrario, en las comunidades sembradas, las especies a menudo se establecen a diferentes ritmos, y algunas especies objetivo pueden no establecerse por completo o pueden permanecer en una abundancia muy baja.
Para garantizar la reproducibilidad del protocolo presentado, se deben considerar meticulosamente varios pasos críticos durante la ejecución: (1) Excavación de monolitos de suelo: Una ventaja clave de la instalación iDiv Ecotron es su capacidad para establecer un número sustancial de réplicas de monolitos de suelo intactos en condiciones ambientales controladas. Para garantizar la integridad de los monolitos del suelo, es esencial mantener las condiciones óptimas del campo para la extracción de monolitos del suelo. Específicamente, la humedad excesiva del suelo puede provocar la compactación de la columna de suelo, mientras que los suelos demasiado secos o congelados pueden provocar la formación de grietas. En los casos en que el monolito se vea comprometido debido a estos factores, debe desecharse, lo que requiere una repetición del proceso de excavación. (2) Selección de especies: El protocolo descrito utiliza seis especies de plantas de pastizales de la TBE, las cuales fueron seleccionadas en base a la superposición con el experimento principal, una representación equilibrada de pastos y hierbas, y la posibilidad de estudiar diferentes estrategias de uso de recursos (e.g., fenología de plantas)41. Para un experimento de biodiversidad, seis especies son un número bajo, y la selección de otras especies que poseen otras combinaciones de rasgos podría conducir a diferentes resultados experimentales y debe considerarse cuidadosamente. (3) Densidad de plantas y proporciones iguales de todas las especies: Una ventaja notable de la configuración del Experimento JenaTron es que las comunidades de plantas se establecen con densidades totales de plantas iguales y que cada especie está representada con el mismo número de individuos. Asegurar una densidad de plantas constante y proporciones de plantación iguales es crucial para la reproducibilidad experimental, ya que evita efectos de confusión asociados con un establecimiento diferencial de especies individuales. Por lo tanto, el control preciso de la densidad de plantas es esencial para preservar el diseño experimental y garantizar resultados confiables.
Después de iniciar el Experimento JenaTron siguiendo el protocolo con especial énfasis en considerar los pasos más críticos mencionados, rápidamente surgieron efectos discernibles del tratamiento en la altura, el color y el tiempo de floración de la comunidad de plantas. Los análisis comparativos posteriores de las alturas de las plantas vegetativas específicas de cada especie entre JenaTron y TBE confirmaron claramente que las comunidades establecidas en el iDiv Ecotron se parecen efectivamente a las comunidades originales en el campo. Para proporcionar un estudio de caso adicional para el análisis de datos, analizamos la altura vegetativa de la planta en el experimento JenaTron con más detalle. Los análisis de las alturas de las plantas vegetativas específicas de cada especie en el JenaTron confirmaron el establecimiento exitoso de todas las especies objetivo y revelaron diferencias significativas entre especies y grupos funcionales. Este resultado es esperado, ya que se sabe que las gramíneas crecen más altas que otros grupos funcionales en el Experimento de Jena47. Se detectó un efecto positivo significativo de la historia del suelo en todas las especies, lo que indica que las condiciones previas del suelo dan forma al crecimiento de las plantas en el Ecotron, potencialmente impulsado por los efectos de retroalimentación positiva de los suelos que anteriormente albergaban una comunidad de plantas (independientemente del nivel de diversidad) y la retroalimentación negativa de los suelos sin vegetación. Las propiedades bióticas y abióticas de las historias del suelo parecen diferir, lo que da a las plantas en suelos con una historia específica de la comunidad vegetal una ventaja sobre las plantas en suelos sin esta historia respectiva, ya que la altura de la planta juega un papel importante en su capacidad para competir por la luz y, por lo tanto, es un rasgo vital para la ganancia de carbono48. En contraste, no se encontró un efecto significativo de la historia de la planta específica de la comunidad vegetal sobre la altura vegetativa media, lo que implica que las propiedades del suelo pueden tener una influencia más fuerte que las fuentes de semillas bajo las condiciones ambientales del Ecotron. Sin embargo, esta hipótesis necesita ser probada de una manera holística mediante la investigación de la multitud de funciones del ecosistema que se midieron en el Experimento JenaTron.
Ni los análisis específicos de la especie ni los específicos de la comunidad proporcionaron evidencia de que la riqueza de especies afecte la altura vegetativa media de la planta, en contraste con los hallazgos previos del Experimento de Campo, donde la altura de la planta aumentó con las especies más altas49 probablemente debido a una competencia de luz más fuerte47,50. Una mayor complementariedad entre especies en comunidades más diversas puede conducir a densidades de plantasmás altas 51, lo que podría mejorar adicionalmente el crecimiento de la altura de las plantas52. La falta de efectos de la diversidad vegetal en la altura de las plantas en el Experimento JenaTron podría deberse, por lo tanto, a la ausencia de variación dependiente de la biodiversidad en la densidad de plantas, lo que indica la importancia potencial de este mecanismo para el rendimiento de las plantas individuales dependientes de la diversidad en el mundo real52. Sin embargo, la riqueza de especies tuvo un efecto significativo en el CV de la altura de las plantas, lo que sugiere que la diversidad de plantas aumenta la complejidad estructural de la vegetación, lo que concuerda con estudios que vinculan la diversidad con doseles aéreos más complejos 49,50,52,53,54.
Tomados en conjunto, los resultados confirman el establecimiento exitoso de los tratamientos objetivo del Experimento JenaTron, proporcionando los primeros conocimientos sobre la efectividad de nuestro enfoque a través de la rápida manifestación de efectos significativos del tratamiento (Figura 3, Figura 4 y Figura 5). Además, el análisis comparativo de la altura de las plantas vegetativas específicas de cada especie indica que las comunidades recién establecidas en el iDiv Ecotron se parecen a las observaciones de campo originales. El análisis detallado de la altura de la planta vegetativa sirve como estudio de caso para el análisis de datos y la visualización de variables de respuesta únicas. Sin embargo, este estudio de caso pone de relieve las limitaciones de centrarse en una sola variable de respuesta para abordar de manera holística la hipótesis general, ya sea que el fortalecimiento de la relación entre la biodiversidad y el funcionamiento del ecosistema a lo largo del tiempo se deba a la historia del suelo, la historia de las plantas o una combinación de ambos. Esto subraya la importancia de nuestro enfoque altamente colaborativo para investigar los efectos independientes e interactivos de la historia de las plantas y la historia del suelo en las relaciones de BEF23. Once subproyectos de la Unidad de Investigación Experimental de Jena (FOR 5000) trabajaron en estrecha colaboración en el Experimento JenaTron, midiendo una amplia gama de variables de respuesta en diversas áreas de investigación, como microbiología, ecología química, fenología, detección proximal, genética, epigenética, ecología del suelo y modelado de redes alimentarias. Este esfuerzo integrador tiene como objetivo (1) separar los efectos de la historia de las plantas de los efectos de la historia del suelo en múltiples niveles tróficos y funciones del ecosistema, (2) investigar los efectos específicos de las especies de plantas y los efectos específicos de la interacción en todos los niveles de riqueza de especies de plantas, y (3) explorar los mecanismos subyacentes de las relaciones BEF23 (Tabla suplementaria 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Divulgaciones
Los autores no tienen nada que revelar.
Agradecimientos
Un agradecimiento excepcional a L. Boockmann, T. Meier, N. Naderi y L.-M. Walter por su apoyo como asistentes de investigación durante toda la duración del Experimento JenaTron. Muchas gracias a todos los empleados de Umwelt-Geräte-Technik GmbH (UGT) por su cooperación profesional y cálida durante la excavación del monolito del suelo en el Experimento de Jena. También nos gustaría agradecer a C. Lauterwasser, H.-C. Schulz, y R. Widuwils por apoyar a UGT en la excavación de monolitos de suelo. Muchas gracias al personal técnico del Experimento de Jena S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze y H. Scheffler por su apoyo en el campo y su diligente ayuda durante la campaña de plantación en el iDiv Ecotron. Agradecemos a I. Merbach y al personal técnico de la Estación de Investigación del Centro Helmholtz para la Investigación Ambiental (UFZ) en Bad Lauchstädt, especialmente a O. Bednorz y K. Kirsch, por su vital apoyo. Queremos agradecer a A.Q. Barth y R. Altmann por su excelente colaboración en el invernadero iDiv. Muchas gracias a S. Haenzel, A. Lochner y A. Zeuner por su indispensable ayuda con la administración, la organización y el trabajo de laboratorio. Agradecemos a los becarios Mercator J. Cavender-Bares, F. Isbell, L. Mommer y K. Mueller, así como al estrecho colaborador B. Schmid y a los investigadores principales U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth y J. Wolf por su importante contribución a la concepción, diseño y realización del Experimento JenaTron. Por último, agradecemos a la Fundación Alemana de Investigación (DFG) por su apoyo financiero (FOR 5000), así como al Centro Alemán para la Investigación Integrativa de la Biodiversidad (iDiv, financiado por la Fundación Alemana de Investigación [DFG-FZT 118, 202548816]), a la Universidad de Leipzig, a la Universidad Friedrich Schiller de Jena y al Instituto Max Planck de Biogeoquímica de Jena por su apoyo financiero y logístico.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Jardinera de bulbos ( 4 cm de diámetro) | Kent & | Ferretería | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ fuente=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| Vela de succión conector | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Bandeja de cultivo ( sin desagüe) | Bonsái | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Agua desmineralizada (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Cinta adhesiva | Ferretería | T-Rex | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Cajas de plástico (20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Papel de filtro (150 mm de diámetro) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| Carretilla elevadora | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Ácido giberélico ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Jarras medidoras ( 3000 mL) | Hü | Ferretería | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| Jarras medidoras ( 5000 mL) | Hü | Ferretería | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| Tamices metálicos (tamaño de malla de 4 mm) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Miniexcavadora | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Tinas de mortero ( 90 L) | Ferretería | Gripline | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| Platos multiolla (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| Placas de Petri (150 mm de diámetro) | Labsoluto | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| Plantilla de plantación (a medida) | UFZ | n.a. | Plantilla de plantación fabricada por el taller del Centro Helmholtz para la Investigación Ambiental (UFZ), Leipzig, Alemania, específicamente para la plantación de los cilindros metálicos iDiv Ecotron. |
| Ferretería | Cargo Point | lámina de plástico | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| Palas de plástico | Hü | Ferretería | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| Pulverizador a presión (1500 mL) | Bü Rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Polvo de cuarzo | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Arena de cuarzo HQS (tamaño de 0,3 - 0,8 mm) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| Tapones de sellado | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Material de siembra | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Kit de medición de la humedad del suelo (ML3 ThetaKit) | Dispositivos Delta-T | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Extracción de monolitos del suelo dispositivo | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Sensores de suelo ( SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| Pinzas de acero para muelles (105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| Cuchilla de acero inoxidable (hecha a medida) | UFZ | n.a.Cuchilla | de acero inoxidable fabricada por el taller del Centro Helmholtz para la Investigación Ambiental (UFZ), Bad Lauchstä dt, Alemania, específicamente para insertar sensores de suelo en los cilindros metálicos iDiv Ecotron. |
| Cilindro de acero inoxidable | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Etiquetas adhesivas (12 cm x 2 cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Suspensión | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Placa superior/inferior temporal | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Palillos de dientes | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8aa& storeType=B2C& lkz= 1131602& obt = 20 & kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Iwo-CRoCfWsQAvD_BwE |
| Trowel | Ferretería | Kaufmann | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| Truck | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term& gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& vehículo Tipo=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& pickupYe ar=2024& pickupMonth=12& pickup Día=11& dropoffYear=2024& dropoff Mes=12& dropoffDay=18& pickup Hora=10& pickupMinute=00& dropoff Hora=18& dropoffMinute=00& driver Edad=26& countryOfResidence=DE |
| Pinzas | Bochem Instrumente | 9171013 https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 | |
| Sondas de succión de agua | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Madera para el tronco de sensores | Ferretería | Konsta https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Referencias
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Reimpresiones y permisos
