Este estudio identificó genes compartidos, vías biológicas, asociaciones inmunitarias y posibles objetivos terapéuticos subyacentes a la diabetes mellitus tipo 2 y a la enfermedad cardiovascular aterosclerótica mediante bioinformática integrada y validación experimental.
Artículo de investigación
Mecanismos moleculares comunes y objetivos de fármacos candidatos en la diabetes mellitus tipo 2 y la enfermedad cardiovascular aterosclerótica
En este artículo
Resumen
Resumen
Este estudio examinó los mecanismos subyacentes a la comorbilidad entre la diabetes mellitus tipo 2 (DT2) y la enfermedad cardiovascular aterosclerótica (ECCV), identificando posibles objetivos terapéuticos. Se extrajeron genes comunes expresados diferencialmente (C-DEGs) entre DT2DM y ASCVD de los conjuntos de datos GSE78721 y GSE12288. Se realizaron análisis de enriquecimiento de vías de la Ontología Génica (GO) y la Enciclopedia de Genes y Genomas de Kyoto (KEGG), la construcción de redes de interacción proteína-proteína (PPI), la identificación de genes centrales y el análisis de la Base de Datos de Interacciones Fármaco-Génica (DGIdb). La asociación entre los C-DEG del núcleo y las células inmunitarias infiltrantes se analizó mediante el método CIBERSORT. Los niveles de expresión de los C-DEG hubs se cuantificaron mediante análisis qRT-PCR y Western blot. Se identificaron un total de 32 C-DEGs, comprendiendo 20 genes con regulación al alza y 12 genes a la baja. Los C-DEG se enriquecieron predominantemente en vías clave, incluyendo miocarditis viral, miocardiopatía arritmogénica del ventrículo derecho, miocardiopatía hipertrófica y miocardiopatía dilatada. El análisis de PPI reveló 29 nodos y 39 aristas, lo que llevó a la identificación de ocho C-DEGs hub (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C y CS) en ambos conjuntos de datos. Además, los C-DEG hub (TOP3A, SLPI, NCF4, PRF1 y PLAU) demostraron correlaciones significativas con los niveles de células inmune-infiltrantes. Los fármacos que se dirigen específicamente a estos C-DEG de centro presentan candidatos prometedores para el tratamiento de la DM2 y el ASCVD. Además, se validó la expresión de C-DEGs hub tanto a nivel de ARNm como de proteína en pacientes con DMO2 y DCA. Un análisis bioinformático integrado facilitó el cribado de objetivos terapéuticos candidatos, mecanismos y fármacos para la DM2 y el DCA, ofreciendo nuevas perspectivas sobre terapias moleculares para estas condiciones.
Introducción
La diabetes mellitus (DM) es una enfermedad crónica con una etiología compleja influida por diversos factores genéticos y ambientales, que actualmente afecta a un estimado de 463 millones de personas en todo el mundo, y se proyecta que aumente a 700 millones para 2045. La diabetes mellitus tipo 2 (DT2) es una condición multifactorial caracterizada por resistencia a la insulina y deficiencia relativa de insulina resultante de la insuficiencia de las células beta, lo que conduce a hiperglucemia y dislipidemia, representando el 90% de los casos de DM 3,4,5. La resistencia a la insulina actúa como un precursor clave de numerosas anomalías metabólicas cardiovasculares que, en conjunto, facilitan el desarrollo de la enfermedad cardiovascular aterosclerótica (ECCV) y pueden afectar supronóstico 6,7. La enfermedad de las arterias coronarias (ECO) surge principalmente de la acumulación progresiva de material aterosclerótico, lo que provoca estrechamiento luminal y obstrucción del flujosanguíneo 8. La aterosclerosis está impulsada por múltiples factores, incluyendo la hipercolesterolemia yla diabetes 9,10. Las importantes cargas humanas y financieras asociadas a la DMT y la CAD, junto con los desafíos en su gestión a largo plazo, ponen de manifiesto la urgente necesidad de estrategias preventivas efectivas.
Los pacientes con CAD y DM2 simultánea enfrentan un riesgo notablemente mayor de eventoscardíacos 11. La enfermedad cardiovascular (ECV) es una complicación común de la DM2 y representa la principal causa de mortalidad entre los pacientes con DM2, con aproximadamente un 32,2% afectado por laDCV 12. El subestudio de LoDoCo2 confirma que la diabetes tipo 2 concomitante se correlaciona con un mayor riesgo de eventos cardiovasculares adversos graves en poblaciones de CADcrónica 13. Las personas con DM tipo 2 tienen un riesgo elevado de DCA14,15, y quienes tienen CAD crónica que también tienen diabetes tienen un riesgo significativamente mayor de eventos cardiovascularesposteriores 16, lo que pone de manifiesto una necesidad crítica no satisfecha de opciones de tratamiento innovadoras.
Un número creciente de grupos de investigación está cribando nuevos genes diferencialmente expresados (DEGs) en la diabetes tipo 2 y el ASCVD mediante análisis exhaustivos de datos transcriptómicos de diversas bases de datos. Los esfuerzos se centran en esclarecer la conexión entre estas enfermedades e identificar funciones biológicas efectivas. Estudios recientes de bioinformática han explorado la DMT2 en relación con otras condiciones; por ejemplo, Song et al. identificaron DEGs compartidas entre la DM 2 y laosteoartritis 17, Castillo-Velázquez et al. predijeron la relación entre la enfermedad de Alzheimer y la DM18, y genes y vías importantes en la DM2 y el síndrome de ovario poliquístico fueron reconocidos mediante análisisbioinformático 19. Sin embargo, los mecanismos moleculares que vinculan la DM2 y la DCASCH siguen siendo poco comprendidos, lo que pone de manifiesto la importancia de identificar nuevos posibles objetivos terapéuticos para tratar la progresión de ambas afecciones.
Este estudio tiene como objetivo identificar sistemáticamente las vías moleculares compartidas y posibles objetivos terapéuticos entre la DMT2 y la DCASCVD mediante la realización de un análisis bioinformático integrado de los datos transcriptómicos de los conjuntos de datos GSE78721 (DMT2) y GSE12288 (DCA). Estos conjuntos de datos fueron elegidos por proporcionar muestras emparejadas de pacientes y controles para cada enfermedad, empleando plataformas de microarrays comparables para permitir un análisis comparativo robusto. El enfoque actual implicaba identificar DEGs comunes (C-DEGs), realizar análisis de enriquecimiento funcional e interacción proteica, evaluar asociaciones con infiltración inmune y predecir fármacos interactuantes. Además, se realizó una validación experimental preliminar. Este trabajo aporta nuevas perspectivas y objetivos candidatos para comprender la comorbilidad de la DM2 y el ECCV.
Protocolo
Este protocolo de estudio fue revisado y aprobado por la Junta de Revisión Institucional de la Universidad Médica de Ningxia en materia de ética (Número de Referencia del Comité de Revisión Interna: Ética [2023]-YCSKT-002) y se ajustó a los principios establecidos en la Declaración de Helsinki. Se obtuvo el consentimiento por escrito de todos los pacientes implicados en el estudio antes de su participación.
Fuentes de datos de expresión para la DMT 2 y la DCVC
Los datos de expresión génica para T2DM y ASCVD se obtuvieron de los conjuntos de datos GSE78721 y GSE12288, respectivamente, procedentes de la base de datos GEO. Ambos conjuntos de datos utilizaron datos de microarrays de las plataformas de Affymetrix Human Gene Expression Array [PrimeView] y de las plataformas Affymetrix Human Genome U133A Array [HG-U133A]. El conjunto de datos GSE78721 incluyó datos de expresión de 68 pacientes con DM2 y 62 muestras normales (detalles en la Tabla Suplementaria 1), mientras que el conjunto de datos GSE12288 comprendía datos de expresión de 110 muestras de ECCV y 112 controles normales (detalles en la Tabla Suplementaria 2). Las sondas génicas se convirtieron a sus símbolos génicos correspondientes basándose en la información de anotación de la plataforma.
Identificación de genes expresados diferencialmente en DM2 y DCASC
Tras descargar los datos de la base de datos GEO, las matrices de expresión en bruto para T2DM y ASCVD fueron corregidas y normalizadas utilizando el paquete de software "limma" para identificar los DEGs. Se aplicó un umbral de P < 0,05 para el cribado DEG. Los resultados de expresión diferencial se visualizaron utilizando los paquetes R 'heatmap' y 'ggplot2' para generar un mapa de calor y un gráfico volcán, respectivamente. Los C-DEG entre T2DM y ASCVD se identificaron mediante un diagrama de Venn.
Análisis funcionales de la Ontología Génica (GO) y la Enciclopedia de Genes y Genomas de Kioto (KEGG) para el enriquecimiento de vías de C-DEGs
Las funciones y vías biológicas se determinaron mediante análisis de enriquecimiento de vías GO y KEGG. La organización del paquete R. Hs.eg.db se utilizó para convertir nombres de C-DEG en identificadores génicos, y se realizó un análisis de enriquecimiento GO utilizando los paquetes R clusterProfiler, enrichplot, ggplot2 y GOplot para explorar funciones biológicas comunes de los C-DEGs. Posteriormente, se realizó un análisis KEGG para identificar vías significativas compartidas involucradas en los mecanismos moleculares subyacentes a la comorbilidad de la DM2 y la DCA. Los resultados del enriquecimiento de GO y KEGG se presentaron en gráficos de barras que ilustraban el recuento de genes, las descripciones funcionales y los valores de P , con significación estadística definida como P < 0,05.
Análisis de redes de interacción proteína-proteína (PPI) de C-DEGs
Los C-DEG y los genes hub se definieron como genes compartidos en este estudio. Para evaluar las asociaciones funcionales entre estos genes compartidos, se construyó una red de IBP utilizando la base de datos STRING (https://string-db.org). El análisis comenzó seleccionando "Multiple proteins" bajo la función "SEARCH" e introduciendo los nombres de C-DEG mientras especificaba la especie como "Homo sapiens". Los parámetros básicos para los C-DEG se configuraron para mostrar la red regulatoria de PPI. La visualización de la red PPI se realizó utilizando el software Cytoscape (versión 3.9.1) (https://apps.cytoscape.org/), proporcionando una representación gráfica de las interacciones entre los C-DEGs. Los C-DEG del hub se identificaron dentro de la red PPI utilizando el plugin CytoHubba en Cytoscape, basándose en el algoritmo de clasificación de grado.
Análisis de infiltración de células inmunitarias
Para examinar las diferencias en la infiltración de células inmunitarias entre el grupo T2DM y el grupo control normal, se empleó el método CIBERSORT para evaluar la abundancia de varios tipos celulares inmunitarios infiltrantes. Posteriormente se aplicó el algoritmo de la prueba de Wilcoxon para comparar las proporciones de estas células inmunitarias infiltrantes entre las muestras de DT2DM y las muestras de control, facilitando la evaluación de las diferencias observadas. La visualización de los datos se logró mediante gráficos de violín. Para validar la correlación entre los C-DEG y las células inmunitarias, se utilizaron paquetes R como limma, scales, tidyverse y ggplot2 para calcular los coeficientes de correlación de Spearman. Este paso cuantificó la relación entre la expresión de C-DEG y los niveles de infiltración de células inmunitarias, mostrando los resultados como mapas de calor. Se consideró estadísticamente significativo un valor P inferior a 0,05.
Análisis de interacción de C-DEGs de núcleo con fármacos potenciales dirigidos
La Base de Datos de Interacciones Fármaco-Gen (DGIdb) ofrece un catálogo completo de interacciones fármaco-gen y perfiles genéticos de agentes terapéuticos aprobados y potenciales. En este estudio, la lista de C-DEGs hub se introdujo en la base de datos para recuperar información de interacción entre los C-DEGs hub y sus fármacos potenciales objetivo, que luego se visualizó mediante el software Cytoscape.
Validación experimental de genes centrales mediante muestras clínicas
Para validar experimentalmente los genes centrales, se recogieron muestras de sangre periférica de sujetos clínicos. La cohorte del estudio incluyó un grupo experimental y un grupo de control. El grupo experimental estaba formado por 15 pacientes diagnosticados tanto con DMT tipo 2 como con DCA, representando una condición comórbida. El grupo control estaba compuesto por 10 voluntarios sanos, emparejados por edad y sexo, sin antecedentes de diabetes, ECV u otras enfermedades sistémicas graves. Todos los pacientes del grupo experimental fueron diagnosticados de forma definitiva siguiendo las directrices clínicas establecidas para la diabetes tipo 2 y el ECA.
Reacción en cadena cuantitativa de la polimerasa en tiempo real (qRT-PCR)
El ARN total se aisló usando reactivo TRIzol y el cDNA de primera cadena se sintetizó con un Kit de Sistema de Transcripción Inversa. El ADNc se diluyó para qRT-PCR usando la mezcla maestra SYBR-green PCR, con GAPDH actuando como control interno. Los cambios relativos en la expresión se calcularon mediante el método 2−ΔΔCt . Los cebadores utilizados para el análisis fueron los siguientes: TUBA1C-adelante: 5′-GACCTCGTGTTGGACCGAAT-3′ y reverso: 5′-CGAGGTGAACCCAACCAG-3′; NCF4 hacia adelante: 5′-CTAAGTTTCAAAGCTGGAGATGTG-3′ y hacia atrás: 5′-GAATTCCTGAAAGGGCTCCTG-3′; PRF1 hacia adelante: 5′-CCCAGTGGACACACAAAGGTT-3′ y hacia atrás: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-adelante: 5′-CCCTTCCTGTGCTGCTT-3′ y reversa: 5′-CCTCCTTGTTGGGTGGTTGG-3′; HSP90B1 hacia adelante: 5′-CCGAAGAAGAACCTGAAGAG-3′ y hacia atrás: 5′-CATCTGTTCCCACATCCATT-3′; PLAU-adelante: 5′-GGGGAGATGAAGTTTGAGGTG-3′ y reversa: 5′-GCAATGTCGTTGTGGTGGTGG-3′; GAPDH-adelante: 5′-CAGGGCTGCTTTTAACTCTGG-3′ y hacia atrás: 5′-GGGTGGAATCATATTGGAACA-3′.
Ensayo Western blot
Se aisló la proteína total, se diluyó en el tampón de carga y se separó con un 10% de SDS-PAGE, seguido de la transferencia a las membranas PVDF. Las membranas fueron bloqueadas y sondeadas con anticuerpos primarios específicos, incluyendo anti-TUBA1C (1:1000, ab222849), anti-HSP90B1 (1:1000, ab238126), anti-NCF4 (1:1000, 14648-1-AP), anti-PRF1 (1:1000, ab256453), anti-SLPI (1:1000, ab46763), anti-PLAU (1:1000, 17968-1-AP) y anti-GAPDH (1:5000, 10494-1-AP). Se aplicaron anticuerpos secundarios conjugados con peroxidasa de rábano picante (HRP) (1:2000, ab6721), y se visualizaron bandas utilizando sustrato quimioluminiscente (ECL) mejorado.
Análisis estadístico
El análisis estadístico se realizó utilizando el software GraphPad Prism, presentando los datos como media ± SD. Las diferencias entre grupos se evaluaron usando el test t de Student, y se consideró estadísticamente significativo un valor P inferior a 0,05.
Resultados
Identificación de DEGs
En este estudio se utilizaron dos conjuntos de datos, GSE78721 y GSE12288, para el análisis bioinformático. En GSE78721, se identificaron un total de 2.266 DEGs entre pacientes con diabetes tipo 2 y muestras normales, comprendiendo 1.209 genes regulados al alza y 1.057 genes con regulación a la baja (Figura 1A). En GSE12288, se verificaron 924 DEGs entre pacientes con ECCV y controles, incluyendo 403 genes sobreexpresados y 521 que estaban regulados a la baja (Figura 1C). Los 50 principales DEG identificados en ambos conjuntos de datos están representados en mapas de calor mostrados en la Figura 1B,D. Al intersectar estos dos conjuntos de datos, se identificaron 32 C-DEGs, compuestos por 20 genes regulados al alza y 12 genes regulados a la baja (Figuras 2A,B).
Enriquecimiento de los C-DEGs en GO y KEGG
Para esclarecer las funciones biológicas y las vías clave asociadas a los 32 C-DEGs, se realizaron análisis GO y KEGG. Los diez términos principales relacionados con el proceso biológico (BP), el componente celular (CC) y la función molecular (MF) entre los C-DEG se presentan en la Figura 3A. Las funciones BP incluyen predominantemente la regulación de la activación del plasminógeno, la regulación de la fibrinólisis, la regulación positiva de la diferenciación de cardiocitos, la regulación negativa de la unión de proteínas y la diferenciación de cardioblastos. Las funciones CC se refieren al complejo endopeptidasa tipo serina, complejos proteicos implicados en la adhesión a la matriz celular, cromosoma condensado, membrana granulosa específica y cuerpo PML. La MF abarca los constituyentes estructurales del citoesqueleto, la actividad activadora de la oxidasa de NADPH generadora de superóxidos, la actividad intramolecular de transferasa (fosfotransferasas), la actividad de exopeptidasas tipo serina y la unión a IgG (Figura 3A). En cuanto al análisis KEGG, los C-DEG estuvieron principalmente implicados en vías críticas, incluyendo miocarditis viral, miocardiopatía arritmogénica del ventrículo derecho, cascadas de complemento y coagulación, cáncer de próstata, miocardiopatía hipertrófica, miocardiopatía dilatada, apoptosis, fagosoma y procesamiento de proteínas en el retículo endoplasmático (Figura 3B).
Construcción de redes de IBP y cribado génico central
Entre los 32 C-DEGs, tres genes no mostraron interacciones conocidas con otros C-DEGs en la base de datos STRING y, por tanto, fueron excluidos de la construcción de la red PPI. La plataforma STRING se empleó para el análisis de PPI de los 29 C-DEG restantes, revelando una red compuesta por 29 nodos y 39 aristas, que se visualizó usando Cytoscape (Figura 4A). Posteriormente, se identificaron ocho C-DEGs del núcleo (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C y CS) en función de su grado de conectividad (Figura 4B).
Diferencias en la infiltración de células inmunitarias y su correlación con los C-DEG del núcleo
Este análisis se centró exclusivamente en el conjunto de datos de T2DM (GSE78721) para investigar preliminarmente los cambios en el microambiente inmunitario en el contexto de la T2DM y su relación con los genes centrales. Se utilizaron gráficos de violín para visualizar la relación entre el conjunto de datos de DM T2 y los niveles de infiltración de 22 tipos de células inmunitarias (Figura 5A; detalles en la Tabla Suplementaria 3). El análisis de infiltración de células inmunitarias indicó una mayor proporción de células dendríticas activadas en el grupo T2DM en comparación con el grupo control (P = 0,049), mientras que la proporción de células dendríticas en reposo fue significativamente menor en el grupo T2DM (P = 0,023). Además, la relación entre los niveles de expresión de los ocho C-DEG hub y los niveles de infiltración de los 22 diferentes tipos de células inmunitarias se visualizó mediante un mapa térmico (Figura 5B). Cabe destacar que la expresión de TOP3A mostró una fuerte correlación positiva con el nivel de infiltración de células T reguladoras (Tregs) (P < 0,001), mientras que la expresión de SLPI estuvo fuertemente correlacionada positivamente con la infiltración de células T gamma delta (P < 0,001). Por el contrario, la expresión de NCF4 mostró una fuerte correlación negativa con el nivel de infiltración de células NK activadas (P < 0,001), la expresión de PRF1 estuvo fuertemente correlacionada negativamente con el nivel de infiltración de los macrófagos M2 (P < 0,001), y la expresión de PLAU estuvo fuertemente relacionada negativamente con el nivel de infiltración de células B naïves (P < 0,001).
Red candidata de fármacos objetivo para centros C-DEG
Entre los ocho C-DEGs centrales identificados, CS y TOP3A no figuraban como objetivos de fármacos conocidos en la base de datos DGIdb y, por tanto, fueron excluidos del análisis posterior de red candidata-fármaco-objetivo. Para identificar fármacos con posibles roles terapéuticos en DMO2 y DCASC, los seis C-DEG hubo restantes fueron enviados a la base de datos DGIdb (detalles en la Tabla Suplementaria 4). Posteriormente, se empleó Cytoscape para construir una red candidato fármaco-objetivo que ilustra las asociaciones entre los C-DEG hub y los fármacos candidatos dirigidos (Figura 6). Esta red comprendía seis C-DEG centrales, 136 fármacos moleculares y 137 bordes. Específicamente, se identificaron 82, 5, 3, 4, 1 y 42 fármacos candidatos objetivo para TUBA1C, NCF4, PRF1, SLPI, HSP90B1 y PLAU, respectivamente, siendo la mayoría clasificados como agentes antineoplásicos, antiinflamatorios y antitrombóticos.
Validación de la expresión de C-DEGs hub
Debido a la ausencia de CS y TOP3A como objetivos candidatos a fármacos en la base de datos DGIdb y a que sus funciones biológicas están menos directamente relacionadas con las estrategias terapéuticas en el contexto de la investigación sobre DM2 y ECCV, el estudio se centró en los seis C-DEGs principales restantes (HSP90B1, PLAU, SLPI, NCF4, PRF1 y TUBA1C) para su validación experimental. Para explorar más a fondo los roles de estos C-DEG centrales, se realizaron ensayos qRT-PCR y western blot para evaluar los niveles de expresión de genes centrales en diferentes grupos (Figura 7 y Figura 8). Los niveles de expresión de TUBA1C, NCF4, SLPI, HSP90B1 y PLAU estuvieron significativamente regulados al alza en pacientes con DMT2 y ECCV en comparación con los grupos control sanos correspondientes, mientras que la expresión de PRF1 fue regulada a la baja. Estos hallazgos sugieren que estos genes centrales pueden desempeñar un papel significativo en la progresión de pacientes con DMO2 y DCA.
DISPONIBILIDAD DE DATOS:Los conjuntos de datos de expresión génica GSE78721 y GSE12288 utilizados para el análisis bioinformático en este estudio están disponibles en la base de datos pública GEO del NCBI. Los datos en bruto de la parte de validación experimental generados en este estudio se proporcionan en el Archivo Suplementario 1.
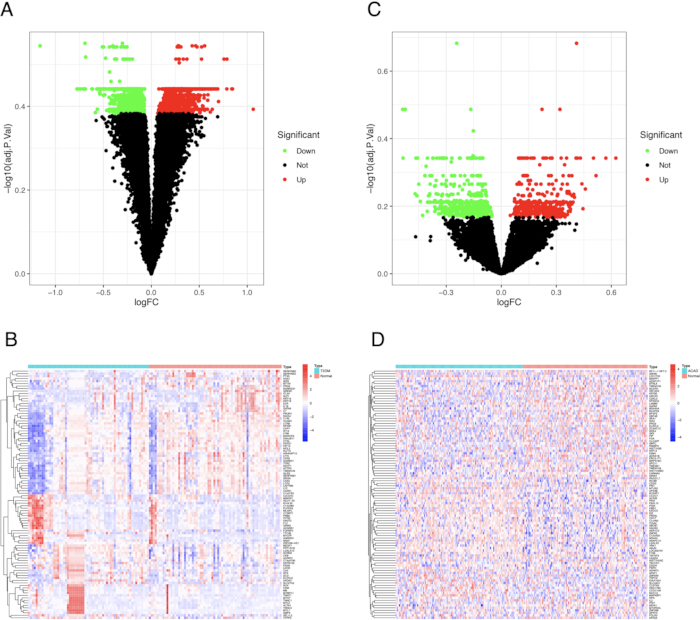
Figura 1: Identificación de DEGs en los conjuntos de datos GSE78721 y GSE12288. (A,C) Los trazados volcánicos de los DEGs en GSE78721 y GSE12288, respectivamente. |logFC|≥ 0,5 y P < 0,05 se establecieron como umbral de selección; los genes regulados al alza se marcaban como rojos y los genes regulados a la baja como verdes. (B,D) Mapas de calor de los 50 mejores DEGs de GSE78721 y GSE12288, respectivamente. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
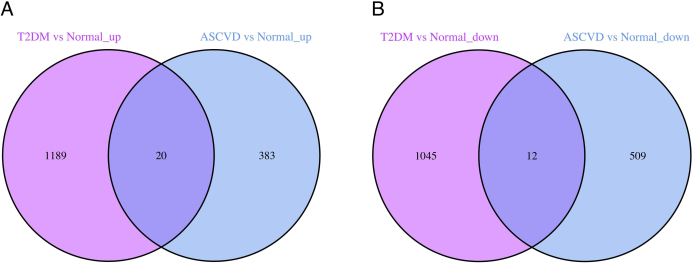
Figura 2: Diagrama de Venn de C-DEGs de dos conjuntos de datos. (A) Diagrama de Venn de C-DEGs alzados de T2DM y ASCVD en conjuntos de datos GSE78721 y GSE12288. (B) Diagrama de Venn de C-DEGs regulados a la baja de T2DM y ASCVD en conjuntos de datos GSE78721 y GSE12288. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
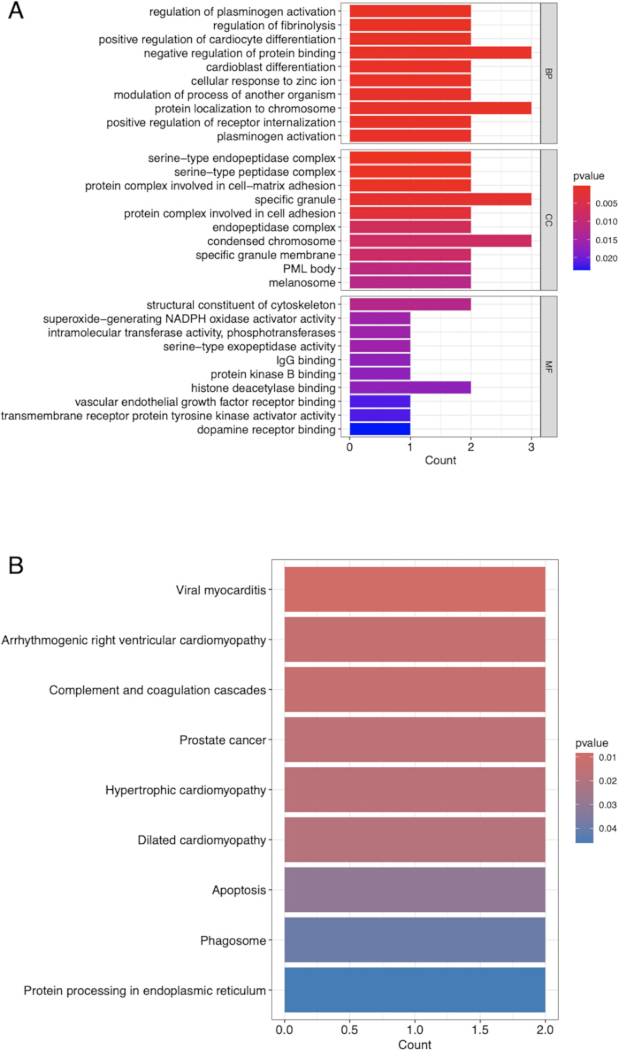
Figura 3: Análisis de enriquecimiento funcional y de vías de C-DEGs. Gráficos de barras de los análisis de enriquecimiento GO (A) y KEGG (B). Las coordenadas verticales indican la descripción de diferentes ítems GO o rutas KEGG, y las coordenadas horizontales indican el número de C-DEGs enriquecidos. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
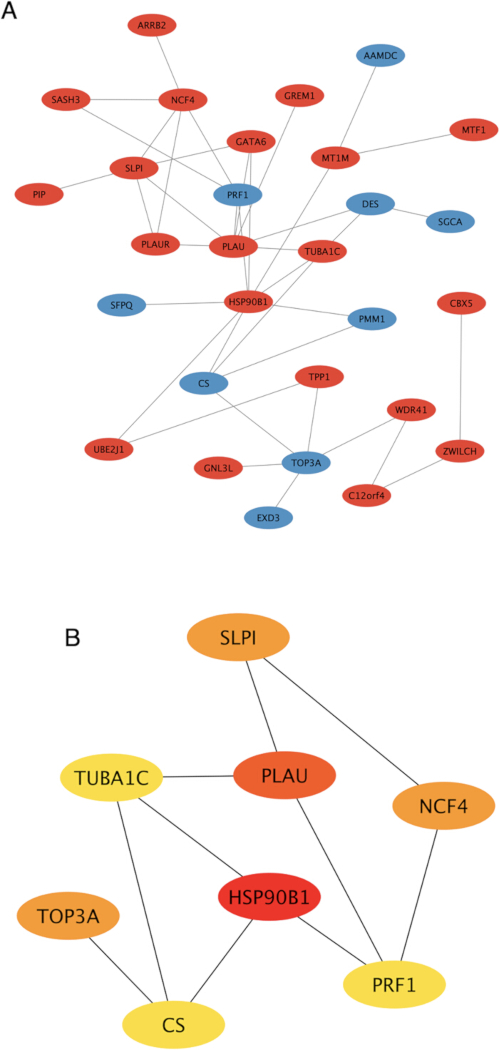
Figura 4: Cribado génico de redes de PPI y centro de C-DEGs. (A) La red de PPI de C-DEGs. El rojo y el azul representan respectivamente los C-DEG regulados al alza y a la baja. (B) Se identificaron ocho genes hub entre los C-DEGs. Los nodos representan un C-DEG y las aristas representan la interacción entre los C-DEGs. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
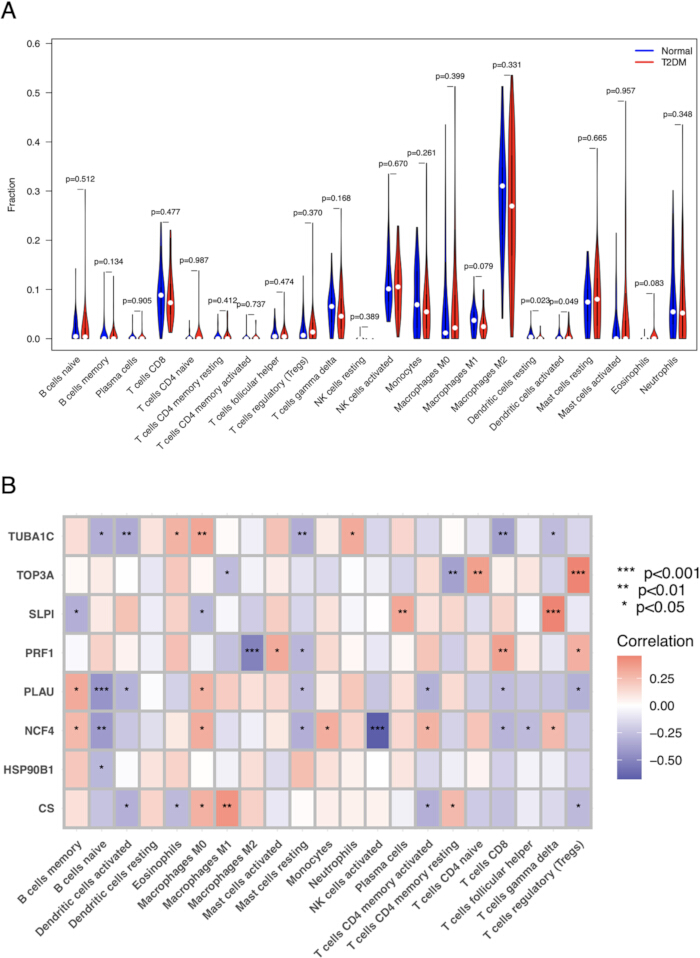
Figura 5: Análisis de infiltración de células inmunitarias. (A) Diferencias en la infiltración de 22 tipos de células inmunitarias entre el grupo de DM2 y el grupo de control. Eje horizontal: subtipos de células inmunitarias; Eje vertical: nivel relativo de infiltración de las células inmunitarias. (B) Mapa de calor de correlación entre la expresión de 8 C-DEG hub y los niveles de infiltración de 22 tipos de células inmunitarias. Cuadrados rojos: correlación positiva; Cuadrados azules: correlación negativa. Los colores más oscuros indican correlaciones más fuertes. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
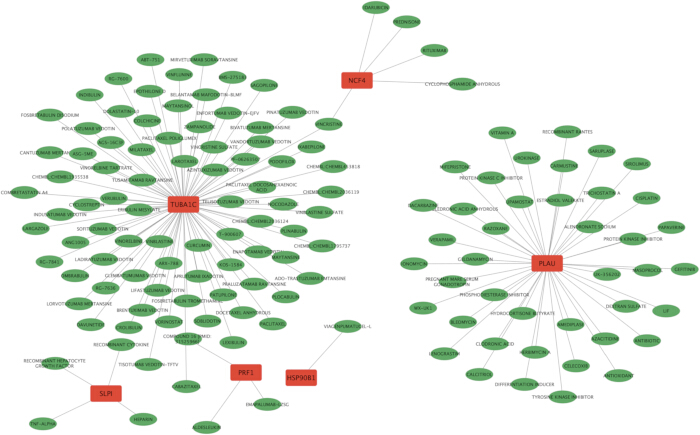
Figura 6: Red candidata de fármacos objetivo para seis centros C-DEGs. Los nodos rojos representan los C-DEGs del hub, los nodos verdes representan fármacos candidatos, y los bordes entre ellos representan pares de interacción. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
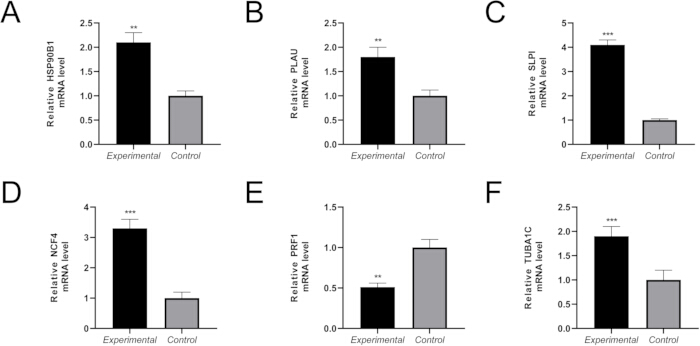
Figura 7: Validación de la expresión génica central en pacientes con DM2 y DCASCV mediante qRT-PCR. Los niveles de expresión de ARNm de HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) y TUBA1C (F) fueron detectados mediante qRT-PCR. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
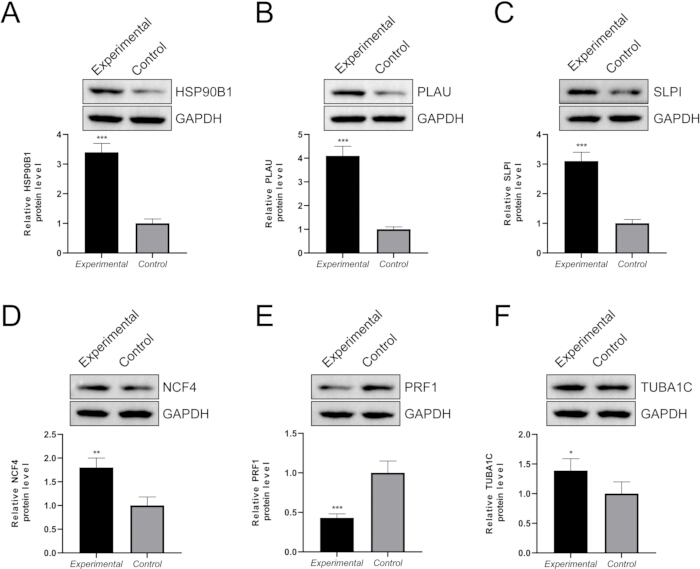
Figura 8: Validación de la expresión génica central en pacientes con DM2 y DCASCV mediante Western blot. Los niveles de expresión proteica de HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) y TUBA1C (F) fueron detectados mediante ensayos Western Blot. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Tabla suplementaria 1. Matriz de expresión génica para el conjunto de datos GSE78721, utilizada para el análisis transcriptómico de T2DM en este estudio. Por favor, haga clic aquí para descargar este archivo.
Tabla suplementaria 2. Matriz de expresión génica para el conjunto de datos GSE12288, utilizada para el análisis transcriptómico de ASCVD en este estudio. Por favor, haga clic aquí para descargar este archivo.
Tabla suplementaria 3: Análisis de infiltración de células inmunitarias en el conjunto de datos GSE78721. Por favor, haga clic aquí para descargar este archivo.
Tabla suplementaria 4: Interacciones candidato fármaco-objetivo para genes comunes expresados diferencialmente. Por favor, haga clic aquí para descargar este archivo.
Archivo suplementario 1: Los datos en bruto de la parte de validación experimental generados en este estudio. Por favor, haga clic aquí para descargar este archivo.
Discusión
La DMD 2 y la DCAASP son enfermedades complejas, con evidencia emergente que sugiere una asociación significativa entre ambas. La resistencia a la insulina actúa como precursor fundamental de diversas anomalías metabólicas cardiovasculares, incluida la diabetes tipo 2, que en conjunto contribuyen al desarrollo de la DCASCV y pueden afectar supronóstico 6,7. Además, la DM es un factor determinante en la progresión de la aterosclerosis20. Las personas con DM 2 enfrentan un mayor riesgo de CAD21, aunque persisten dudas sobre los mecanismos subyacentes de la comorbilidad. Este estudio pretende explorar la relación y los mecanismos que vinculan estas dos enfermedades, junto con la identificación de posibles biomarcadores mediante análisis bioinformático y validación experimental.
En este estudio, se identificaron un total de 32 C-DEG entre DMT2 y DCASCV, comprendiendo 20 genes regulados al alza y 12 genes regulados a la baja. Los análisis de enriquecimiento GO y KEGG revelaron que estos C-DEGs estaban predominantemente enriquecidos en vías metabólicas críticas estrechamente relacionadas tanto con CAD como con T2DM22,23. Ocho C-DEG del cubo (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C y CS) fueron examinados en ambas condiciones. Cabe destacar que los C-DEG del núcleo (TOP3A, SLPI, NCF4, PRF1 y PLAU) estuvieron significativamente asociados con los niveles de infiltración de las células inmunitarias. HSP90B1 ha sido implicado en la progresión del cáncer24 y también puede tener asociaciones con elDT2DM 25. Se ha demostrado que el PLAU desempeña un papel en la prevención del envejecimiento vascular prematuro asociado alDT2DM 26 y es fundamental en la progresión de la placa aterosclerótica, proporcionando información para biomarcadores de alerta temprana y elucidando los mecanismos subyacentes a la progresión de laCAD 27. La expresión de SLPI aumenta con una disfunción metabólicaprogresiva 28 y se ha identificado como una C-DEG asociada a tolerancia a la glucosa deteriorada y diabetes tipo29. NCF4 ha establecido vínculos con CAD30 y contribuye a la regulación de la actividad de la NADPH oxidasa y la activación delinflamasa 31. Debido al papel clave del PRF1 en el monitoreo inmunitario y la regulación32, tiene potencial diagnóstico, distinguiendo entre infarto de miocardio y CADestable 33. Además, PRF1 actúa como un actor regulador inmunitario crítico en la resistencia a la insulinarelacionada con la obesidad 34. TUBA1C también se ha asociado con cánceres y está vinculado a la infiltración inmunitaria en el microambientetumoral 35. Se ha identificado como un gen de susceptibilidad para la cardiopatíacoronaria 36. Sin embargo, la relación entre el ASCVD y la DM2 sigue siendo poco explorada.
El análisis KEGG reveló la implicación de estos genes candidatos en vías como "Complemento y Cascadas de Coagulación" y "Procesamiento de Proteínas en el Retículo Endoplásmico". La validación experimental de genes clave dentro de estas vías, específicamente PLAU (una serina proteasa involucrada en fibrinólisis y coagulación) y HSP90B1 (una chaperona del retículo endoplásmico), confirmó su desregulación en nuestro modelo de diabetes tipo 2. Estos hallazgos sitúan nuestra investigación dentro de un marco molecular específico, sugiriendo que los desequilibrios en la respuesta al estrés del retículo endoplásmico y en las vías trombolíticas pueden ser parte integral de la patología diabética, yendo más allá de los procesos inflamatorios ampliamente reconocidos.
Una amplia investigación ha documentado respuestas inmunitarias disfuncionales en pacientesdiabéticos 37. La activación anormal de las células inmunitarias juega un papel fundamental en la progresión de la DM238,39. El análisis de infiltración inmune reveló una alteración significativa en el compartimento celular dendrítico en la DM2, caracterizada por un aumento de la proporción de células dendríticas activadas y una menor cantidad de células dendríticas en reposo (Figura 5A). Esto indica un estado de mayor presentación de antígenos y activación inmunitaria en la diabetes tipo 2, lo que podría contribuir a daños inflamatorios crónicos en los tejidos objetivo. Además, las fuertes correlaciones observadas entre genes hub específicos (por ejemplo, NCF4 con células NK activadas, PRF1 con macrófagos M2) (Figura 5B) sugieren vínculos mecanicistas entre la expresión génica en los tejidos metabólicos y la composición del microambiente inmunitario local, identificando así nuevos objetivos para intervenciones inmunomoduladoras.
Además, se realizó un análisis de red fármaco-objetivo para predecir posibles objetivos terapéuticos, mecanismos subyacentes y fármacos para la DMO2 y el DCA. Esta red candidata-fármaco-objetivo abarcaba seis C-DEGs hub, 136 fármacos moleculares y 137 aristas. El análisis arrojó 82, 5, 3, 4, 1 y 42 fármacos candidatos objetivo para TUBA1C, NCF4, PRF1, SLPI, HSP90B1 y PLAU, respectivamente. La mayoría de estos fármacos se clasifican como agentes antineoplásicos, antiinflamatorios y antitrombóticos. Cabe destacar que algunos fármacos, incluyendo Rituximab, Prednisona, antioxidantes, verapamil, antibióticos, colchicina y heparina, han demostrado funciones terapéuticas tanto en elDT2DM 15,40,41,42,43,44,45,46 como en CAD 15,47,48,49,50. 51,52,53,54,55, indicando sus posibles efectos terapéuticos en pacientes con DMO2 y CAD. Además, varios fármacos como el Alendronato de sodio, calcitriol, celecoxib, masoprocol, mifepristona y curcumina han demostrado funciones terapéuticas específicamente en el T2DM 56,57,58,59,60,61,62,63, que también puede ser beneficioso para el ASCVD. También se validó la expresión de estos C-DEG centrales en T2DM y ASCVD.
Este estudio tiene varias limitaciones. Primero, los tamaños de muestra clínica dentro del experimento de validación eran insuficientes y deberían ampliarse. En segundo lugar, es necesario realizar más investigación experimental para proporcionar valiosas perspectivas sobre la relación entre la DM2 y el DCASC. El trabajo futuro implicará validar los resultados con cohortes clínicas más grandes y realizar estudios experimentales más completos para esclarecer los mecanismos moleculares y las vías patológicas que conectan estas dos enfermedades. En la sección de validación experimental, las muestras de pacientes con DMD T2 y ECCVD se agruparon en un único "grupo experimental" para su comparación con controles sanos. Aunque este diseño facilitó la validación de los cambios generales en la expresión global de los C-DEG identificados en la condición comórbida, no diferencia si estas alteraciones de expresión son específicas de la DMT2, ASCVD o compartidas por ambos. Los estudios posteriores deberían comparar grupos distintos de pacientes con DMT2, pacientes con ECCV y individuos con DM T2 comórbida con DCASCH para delimitar con mayor precisión los roles específicos de estos genes en enfermedades individuales frente al estado comórbido. Además, el análisis de infiltración de células inmunitarias se realizó exclusivamente sobre el conjunto de datos de T2DM (GSE78721) y no se realizó en paralelo para el conjunto de datos de ECCV (GSE12288). Así, las correlaciones reportadas entre los C-DEG hub y los niveles de infiltración de células inmunitarias (por ejemplo, TOP3A con Tregs, SLPI con células T gamma delta) reflejan únicamente sus posibles roles inmunomoduladores dentro del contexto patológico de la T2DM. Otra limitación es la ausencia de validación funcional para las interacciones fármaco-objetivo previstas. Las futuras investigaciones deberían incorporar simulaciones de acoplamiento molecular para evaluar la afinidad de unión, junto con experimentos in vivo utilizando modelos animales para evaluar la eficacia terapéutica de estos fármacos candidatos.
En conclusión, este análisis bioinformático integrado, complementado con validación experimental preliminar, identificó varios genes y vías centrales compartidas entre la DM2 y la DCASC, y propone posibles candidatos a fármacos dirigidos a estos genes. Estos hallazgos ofrecen nuevas hipótesis y objetivos candidatos para una exploración mecanicista y terapéutica adicional de la compleja interacción entre la DM2 y el DCA.
Divulgaciones
Los autores no declaran intereses en competencia.
Agradecimientos
Los autores agradecen sinceramente el apoyo financiero proporcionado por el Programa de la Fundación de Ciencias Naturales de Ningxia (Subvención nº 2023AAC03498) y el Proyecto de Innovación en Ciencia y Tecnología de Yinchuan (Subvención nº 2024SF005). Los autores también agradecen a todos los participantes e investigadores cuyas contribuciones hicieron posible este estudio.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
Referencias
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.