Esta revisión delimita el eje inmunometabólico intestino-hígado en la enfermedad hepática esteatótica asociada a la disfunción metabólica y su fenotipo inflamatorio-fibrótico (MASH), que abarca la falla de la barrera para la activación del inflammasoma, y evalúa productos naturales multi-objetivo y estrategias estratificadas por biomarcadores para una intervención precisa.
Artículo de revisión
Modulación del eje intestino-hígado en la medicina tradicional china: desde la ruptura de la barrera hasta la activación de inflamasmas en MASLD/MASH
En este artículo
Resumen
Resumen
La enfermedad hepática esteatótica asociada a disfunción metabólica (MASLD) y su fenotipo inflamatorio-fibrótico (MASH) presentan un marcado acoplamiento inmunometabólico. Esta revisión sintetiza la evidencia a lo largo del eje intestino-hígado, desde la unión estrecha epitelial y la barrera vascular intestinal (GVB) hasta la amplificación TLR4–MyD88/TRIF–NF-κB y la activación del inflammasoma NLRP3, y describe la lógica del espectro de exposición derivado del intestino—lipopolisacáridos (LPS), etanol endógeno, ácidos biliares (BB), ácidos grasos de cadena corta (SCFA) y trimetilamina N-óxido (TMAO). Posicionamos BA-FXR/TGR5, SCFAs-GPR41/43 y AMPK/Nrf2 como moduladores aguas arriba/descendente que restablecen umbrales inflamatorios y confieren la capacidad de medicación dependiente de la etapa. Basándonos en el mapeo nodo-vía, resumimos los mecanismos y señales traslacionales para la berberina (BBR), Qushihuayu (QSHY), la Decocción Da-Chai-Hu (DCHD) y los polisacáridos (por ejemplo, Astrágalo, Ganodermia), enfatizando restricciones farmacocinéticas y del lugar de exposición que apoyan acciones "primero en el intestino". Proponemos un conjunto mínimo de biomarcadores compañeros —LBP/sCD14, perfiles BA con dinámica FGF19–C4 e IL-1β/GSDMD-N— emparejados con compuertas de imagen jerárquicas (≥30% de disminución relativa de la resonancia magnética en PDFF; MRE/ELF) para fundamentar la tipificación de respuesta y las decisiones de ir o no ir. Finalmente, destacamos carencias críticas (lecturas directas de GVB humanas; multi-ómicas longitudinales unidas a resultados clínicos) y delineamos una vía multibrazo multi-etapa (MAMS) impulsada por biomarcadores para el desarrollo adaptativo y estratificado de intervenciones de medicina tradicional multi-objetivo en MASLD/MASH.
Introducción
La enfermedad hepática esteatótica asociada a la disfunción metabólica (MASLD) y su fenotipo inflamatorio-fibrótico, MASH, se presentan cada vez más no como trastornos metabólicos aislados, sino como condiciones sistémicas impulsadas por un acoplamiento inmunometabólico desregulado. La evidencia convergente sitúa el eje intestino-hígado en el centro de la evolución de la enfermedad: cuando la integridad de la barrera intestinal se afloja, los patrones moleculares y señales metabólicas asociadas a los patógenos luminales acceden más fácilmente a la circulación portal, iniciando y amplificando las respuestas inmunitarias intrahepáticasinnatas 1. Mecánicamente, la disfunción de la barrera abarca la remodelación epitelial de la unión estrecha y la alteración de la barrera vascular intestinal (BVB), aumentando junto con la entrega portal de señales derivadas de microbios y dietas que reducen el umbral de activación de la inmunidad innata hepática.
Debajo del epitelio, la barrera vascular intestinal (BVB) funciona como un segundo punto de control con principios de selectividad análogos a la barrera hematoencefálica. Los datos experimentales y traduccionales indican que la desestabilización de la GVB puede preceder a la esteatohepatitis abierta, y que la estabilización de barreras está mecanísticamente vinculada a una reducción de la carga inflamatoria portal.
La endotoxina circulante (lipopolisacárido, LPS) muestra la asociación positiva más consistente con la progresión de MASLD a MASH y fibrosis avanzada, anclando un vínculo a nivel poblacional entre la carga molecular derivada del intestino y la lesiónhepática 1. También es causa una vía de "autoelaboración": Klebsiella pneumoniae , con alta producción de alcohol, se asocia con MASLD, y la colonización experimental induce hígado graso en ausencia de etanolexógeno 2. Metabolitos derivados del intestino adicionales (por ejemplo, ácidos biliares, SCFAs y TMAO) moldean el tono inmunometabólico del huésped y pueden contribuir a la heterogeneidad interindividual en las trayectorias de la enfermedad y la respuesta al tratamiento.
A nivel de receptor y vía, las entradas portal son detectadas en la sinusoide por TLR4/MD-2, que señala a través de MyD88/TRIF→IKK para activar NF-κB, regulando al alza TNF-α, IL-1β y CCL2 y provocando infiltración leucocitaria y lesiónparénquimala 3. TLR4 regula aún más a la baja el pseudorreceptor TGF-β BAMBI en células estrelladas hepáticas, sensibilizando la señalización fibrogénica y reclutando monocitos a través del eje CCL2/CCR2, conectando así la inflamación con lafibrosis 4,5. Aguas abajo, el inflammasoma NLRP3 requiere cebado mediado por NF-κB (señal 1) junto con señales de activación de ROS mitocondriales, ATP–P2X7 o cristales de colesterol (señal 2) para activar la caspasa-1, liberar IL-1β/IL-18 y ejecutar la pirooptosis; La inhibición farmacológica (por ejemplo, MCC950) es eficaz en varios modelos, pero el beneficio histológico no es uniforme en contextos altos en grasas y colesterol alto, lo que indica que la "farmacéutica" está limitada por la composición y el momento delDAMP 6,7,8. En paralelo, las vías BA–FXR/TGR5, SCFA–GPR41/43 y AMPK/Nrf2 modulan la columna en múltiples niveles, restableciendo umbrales inflamatorios y confiriendo una respuesta dependientede la etapa 9,10,11.
Este marco delimita nodos accionables para la intervención multiobjetivo. La berberina (BBR) ejemplifica una estrategia de baja exposición sistémica que inhibe la BSH bacteriana, remodela el pool de BA y activa el eje ileal FXR–FGF15 para recalibrar "remotamente" las lecturas inmunometabólicas intrahepáticas12,13; su complejo iónico BUDCA/HTD1801 redujo la RM-PDFF en un ensayo clínico aleatorizado de fase 2 (ECA)14. Fórmulas, como Qushihuayu (QSHY), han mostrado respuestas coordinadas microbioma–metabolito con mejoras en enzimas hepáticas y sustitutos de fibrosis en aleatorizaciónmulticéntrica 15. La Decocción Da-Chai-Hu (DCHD) y los polisacáridos (por ejemplo, Astrágalo, Ganodermia) se asignan a la estabilización del BVB y a la inmunidad mucosa/plasticidad inflammasomera,respectivamente 16,17,18. Sin embargo, el panorama evidenciario de la medicina tradicional china (MTC) en MASLD/MASH sigue siendo desigual, abarcando un pequeño número de ensayos aleatorizados con criterios heterogéneos y calidad variable de reporte, junto con un mayor volumen de trabajo preclínico y generador de hipótesis.
Por tanto, un objetivo central de esta revisión es proporcionar una síntesis estructurada y crítica de la evidencia de la MTC, separando datos humanos sólidos de la inferencia preclínica y evaluando el diseño del ensayo, el riesgo de sesgo, el tamaño del efecto, las señales de seguridad y la durabilidad de la respuesta. Además, enfatizamos las limitaciones prácticas traslacionales que son especialmente relevantes para las intervenciones de MTC, incluyendo la estandarización de productos, la consistencia de lote a lote y los marcos de marcadores Q, así como consideraciones regulatorias que regulan los umbrales probatorios para el desarrollo y la adopción clínica.
En este contexto, la reseña sigue tres líneas. Primero, rastreamos el continuo desde el fallo epitelial/GVB hasta la activación de TLR4–NF-κB y NLRP3, integrando evidencia clave a nivel humano, animal y celular. En segundo lugar, sintetizamos la farmacología de sistemas y datos clínicos/traduccionales representativos sobre agentes derivados de la MTC y otros agentes naturales que apuntan a la columna vertebral barrera-receptor-inflammasa y su diafonía inmunometabólica, con una alineación explícita de la farmacocinética, la exposición y el mecanismo. En tercer lugar, describimos biomarcadores medibles y esquemas de tipificación de respuesta que se combinan con estas vías para mejorar la interpretabilidad y la reproducibilidad externa en cohortes heterogéneas de MASLD/MASH. Al vincular el mecanismo con la intervención y con lecturas cuantificables, el eje inmune intestino-hígado se convierte en un marco traslacional comprobable que puede informar futuras terapias estratificadas (Figura 1). Las síntesis recientes sitúan aún más las estrategias centradas en el microbioma como un eje traslacional principal en MASLD/MASH, abarcando la modulación basada en dietas, pre/pro/sinbióticos, trasplante de microbiota fecal y enfoques emergentes como bacterias y bacteriófagos modificados, reforzando la relevancia clínica de intervenciones dirigidas alintestino 19.
Revisión y perspectiva
El eje intestino-hígado: desde la falla de la barrera hasta la activación del inflammasoma
Desequilibrio de la barrera epitelial y aumento de la fuga paracelular
La barrera epitelial intestinal se mantiene mediante una capa de moco luminal basada en MUC2 junto con complejos de unión apical estrecha (TJ); ZO-1, ocludin y múltiples claudins definen la selectividad paracelular y, por tanto, limitan los encuentros directos entre patrones moleculares asociados a microbios luminales y receptores inmunitarios innatos epiteliales. En estados metabólicamente inflamados, el factor de necrosis tumoral α (TNF-α) activa un programa dependiente de NF-κB que regula al alza la quinasa de cadena ligera de miosina (MLCK), impulsando la endocitosis ocludina y la reorganización perijunal de la actomiosina para crear una vía de "fuga", un efecto demostrado tanto en modelos in vivo como in vitro 20,21.
Estas observaciones mecanicistas coinciden con fenotipos clínicos. Los estudios en humanos demuestran consistentemente un aumento de la permeabilidad intestinal en la MASLD, lo que se correlaciona con esteatosis y gravedad inflamatoria. En estudios fisiológicos vinculados a biopsias, los pacientes con enfermedad hepática grasa no alcohólica (ahora dentro del marco MASLD) muestran un aumento de la permeabilidad al 51Cr-EDTA junto con anomalías de la TJ y un sobrecrecimiento bacteriano del intestino delgado, con permeabilidad positivamente correlacionada con esteatosis y actividad inflamatoria. Una revisión sistemática posterior de pruebas de permeabilidad a doble azúcar confirmó una permeabilidad del intestino delgado significativamente mayor en MASLD frente a controles sanos, consolidando la lesión de la barrera epitelial como una característica reproducible a nivel poblacional. En este contexto, los PAMPs luminales y las señales metabólicas acceden más fácilmente a la circulación portal, proporcionando entradas aguas arriba que activan la señalización hepática TLR4–NF-κB y permiten la activación del inflammasa NLRP3.
Acoplamiento microbiota-barrera intestinal en homeostasis y MASLD/MASH
En condiciones fisiológicas, la microbiota intestinal contribuye al mantenimiento de la barrera mediante efectos coordinados sobre el moco, las uniones tensas y la inmunidad mucosa. La estructura de la comunidad comensal influye en las propiedades de barrera mucosa, mientras que las interacciones epitelio-microbianas moldean la remodelación de las uniones estrechas y la permeabilidad transepitelial, limitando así la translocación microbiana de productos bajohomeostasis 22,23,24. Los SCFAs producidos por la fermentación microbiana actúan como metabolitos señalizantes que pueden apoyar programas de barrera epitelial y amortiguar las respuestas inflamatorias transcripcionales, proporcionando resiliencia funcional frente a la interrupción de labarrera 23,25.
En MASLD/MASH, la disbiosis y la alteración de la salida funcional microbiana pueden erosionar estos programas estabilizadores y amplificar la disfunción de la barrera. La permeabilidad alterada y la translocación microbiana de productos aumentan la exposición portal y bajan el umbral para la activación inmunitaria innata hepática, creando un eje de avance desde la disbiosis hasta la falla de la barrera y la amplificacióninflamatoria 23. Una ilustración mecánicamente directa es la producción endógena de etanol por parte de Klebsiella pneumoniae, productora de alcohol alto, que puede impulsar fenotipos de hígado graso sin alcohol exógeno, vinculando una función microbiana específica con la lesión metabólica del huésped y la susceptibilidad inflamatoria posterior2.
Esta subsección consolida la vinculación "tono de barrera → micro → exposición a portales" para proporcionar un punto de entrada explícito para interpretar intervenciones de MTC intestino-proximal que reclaman restauración de barreras o remodelación de microbiota.
Alteración de la barrera vascular intestinal y exposición temprana a la puerta
Situada bajo el epitelio, la barrera vascular intestinal (BVG) se forma por células endoteliales capilares submucosas y sus complejos unionales; Funcionalmente análoga a la barrera hematoencefálica, restringe la translocación de bacterias y macromoléculas a través de la pared intestinal hacia la circulaciónportal 26. Los modelos experimentales de esteatohepatitis demuestran que la alteración de la GVB precede a la inflamación hepática, mientras que el refuerzo farmacológico de la señalización endotelial de FXR–β-catenina mitiga la carga inflamatoria portal27.
En conjunto, estos hallazgos operacionalizan un modelo de intercepción en capas—"barrera epitelial → GVB → exposición a portal"—y nominan el GVB como un nodo patológico temprano manejable en MASLD/MASH 28. Mecánicamente, la integridad GVB refleja la diafonía entre las vías Wnt/β-catenina y FXR; la regulación alza de la proteína asociada a la vesícula plasmalemémica (PLVAP/PV-1) marca la apertura fenestral y se correlaciona con lapermeabilidad 26,27. El compromiso combinado de la barrera epitelial y vascular aumenta la entrega efectiva de las señales inflamatorias por vía portal, reduciendo así el umbral para la detección y amplificación intrahepática27.
Flujo de moléculas derivadas del intestino y el paisaje de exposición hepática sinusoidal
A nivel poblacional, la endotoxina circulante (LPS) es la señal molecular más consistentemente asociada con la progresión de la MASLD. Un metaanálisis reciente muestra niveles más altos de LPS en MASLD que en los controles, correlacionándose con la fase de la enfermedad y los indicadores inflamatorios, apoyando así una cadena de evidencia de "fallo de la barrera → endotoxemia → inflamación hepática" 1. El etanol endógeno representa una segunda entrada clave: Klebsiella pneumoniae, con alta producción de alcohol, está enriquecida en una cohorte china de MASLD, y la colonización oral es suficiente para inducir hígado graso en ausencia de etanol exógeno, estableciendo un vínculo causal entre una cepa específica, su metabolito y la lesiónhepática 2. Otros metabolitos derivados del intestino (por ejemplo, ácidos biliares y SCFAs) modulan los umbrales inflamatorios, pero aquí se tratan como reguladores contextuales en lugar de como factores principales de exposición 29,30,31.
Activación y programas efectores de la cascada hepática TLR4–MyD88/TRIF–NF-κB
Una vez que las entradas portal alcanzan los senoides hepáticos, los complejos TLR4/MD-2 en células de Kupffer, hepatocitos y células endoteliales sinusoides hepáticas detectan los ligandos LPS y lipídicos, reclutan adaptadores MyD88 o TRIF para activar el complejo IKK y provocan la translocación nuclear de NF-κB, induciendo así TNF-α, IL-1β y CCL2, culminando en infiltración monocito-macrófago y lesiónparénquimata 3,32.
La señalización TLR4 también amplifica la lesión a través de ejes quimiotácticos y fibrogénicos. La vía CCL2/CCR2 recluta monocitos derivados de la médula ósea al hígado, y el bloqueo farmacológico o genético de CCR2 reduce la infiltración de monocitos de Ly6C⁺ y atenúa la inflamación y fibrosis en los modelosMASH dietéticos 4. En las células estrelladas hepáticas, TLR4 regula a la baja el pseudorreceptor TGF-β BAMBI, sensibilizando a las células al TGF-β y acoplando la activación inmunitaria innata a la programación fibrogénica a través de lasvías 5. Por tanto, al evaluar intervenciones de MTC, la evidencia de atenuación del eje TLR4–NF-κB–CCL2 (y sensibilización fibrogénica posterior) se considera mecánicamente de mayor valor que los cambios aislados en marcadores inflamatorios generales.
Activación de doble señal del inflammasoma NLRP3 y piroptosis
La señalización TLR–NF-κB proporciona el paso de cebado (señal 1) para NLRP3 y pro-IL-1β/IL-18, mientras que la ROS mitocondrial, la activación de ATP–P2X7 y el colesterol libre o cristalino actúan como señales de activación (señal 2) que ensamblan el complejo NLRP3–ASC–caspasa-1, produciendo la formación de poros maduros de IL-1β/IL-18 y gasdermina-D (GSDMD) para ejecutar la pirooptosis y la progresión inflamatoria-fibrótica33. En los modelos MASH y tejidos humanos, la hiperactivación de NLRP3 sigue con gravedad inflamatoria y fibrótica, y los cristales de colesterol constituyen un DAMP clave y fuente de señal 2 en la esteatohepatitis 6,34.
El estadio de la enfermedad y el contexto del modelo son calificativos críticos. En entornos altos en grasas y colesterol alto (HFHC), ni la deficiencia de Nlrp3 ni el tratamiento con MCC950 no mejoraron los criterios histológicos, lo que indica que la composición y la ventana de dosificación del DAMP determinan la farmacabilidad del inflamosoma; dentro de la historia natural de MASLD/MASH, NLRP3 se considera mejor como un amplificador clave que como un paso limitante universal de tasas, con implicaciones directas para intervenciones estratificadas ycombinadas 8,35. Esta dependencia de la etapa motiva la separación explícita de (i) afirmaciones preclínicas de dirigimiento al inflamasoma de (ii) la evidencia humana que vincula las lecturas de inflamasoma (por ejemplo, IL-1β/IL-18, GSDMD-N) con criterios clínicamente relevantes.
Vías de diafonía moduladoras
Las vías BA–FXR/TGR5, SCFA–GPR41/43 y AMPK/Nrf2 modulan los umbrales inflamatorios a lo largo de esta cascada. En lugar de ampliar estas vías en detalle, las mantenemos como niveles moduladores que influyen en la mediabilidad dependiente de la etapa de la columna vertebral de la barrera–TLR4–NLRP3 9,27.
Cuando las defensas epiteliales y vasculares fallan secuencialmente, moléculas derivadas del intestino amplifican la señalización innata inmune intrahepática, culminando en piroptosis impulsada por inflammasomas y progresión fibrótica 6,27,36. Este andamiaje mecanicista aerodinámico proporciona el ancla contra la cual se evalúan las intervenciones de la MTC en las siguientes secciones (véase la Tabla 1).
| Nodo del eje (nivel anatómico) | Evento mecanicista central | Contribución a la activación e inflamación del inflammasoma | Lecturas traslacionales | Estudios representativos |
| Ecología de la microbiota intestinal | La disbiosis altera productos microbianos (carga de endotoxinas, producción de etanol, transformación de ácidos biliares, salida de SCFA) | Aumenta la carga inflamatoria portal y reduce el umbral de activación inmunitaria innata hepática | Microbioma hecesal (16S/metagenómica); metaboloma de taburetes; LBP/sCD14 circulante | Yuan et al., 20192; Tilg et al, 201637 |
| Capa mucosa y uniones epiteliales estrechas | Remodelación de TJ dependiente de TNF–NF-κB–MLCK; endocitosis de ocludina; Formación de poros de Claudin-2 | La permeabilidad paracelular mejorada facilita la translocación PAMP (cebado de la señal 1) | expresión de ZO-1/ocludina; pruebas de permeabilidad a doble azúcar; 51Cr-EDTA; LBP/sCD14 | Ye et al., 200638; Marchiando et al., 201021 |
| Barrera vascular intestinal (BVB) | Permeabilidad endotelial mediante vías dependientes de Wnt/β-catenina y FXR; Regulación al alza de PLVAP/PV-1 | Amplifica la entrega por portal de señales inflamatorias microbianas y metabólicas | Tinción de PLVAP; marcadores portal/inflamatorios emparejados; Índices de imagen vinculados a la exposición | Mouries et al., 201927 |
| Exposición molecular portal | Elevación circulante de endotoxinas; etanol endógeno; entorno modificado de BA/SCFA | Refuerza la cebado TLR4; Modula la permisividad del inflammasoma | LPS (dependiente del método); LBP; sCD14; Perfil de licenciatura; Cuantificación SCFA | Farhadi et al., 200839; Yuan et al., 20192 |
| Señalización hepática TLR4 | TLR4–Activación MyD88/TRIF–NF-κB; BAMBI a la baja de regulación; Inducción CCL2 | Cebado de la señal 1 de NLRP3; quimiotaxia; sensibilización de células estrelladas a TGF-β | Objetivos hepáticos TLR4/NF-κB; CCL2; α-SMA; Transcripciones de colágeno | Seki et al., 20075; Sharifnia et al., 20153 |
| Activación del inflammasoma NLRP3 | Priming NF-κB (señal 1) + disparadores DAMP (ROS, ATP–P2X7, cristales de colesterol) (señal 2) | activación de Caspasa-1; liberación de IL-1β/IL-18; Amplificación piroptótica | IL-1β; IL-18; actividad de caspasa-1; Escisión GSDMD | Wree et al., 201440; Mridha et al., 20177 |
| Nodos de diafonía metabólico-inmune | BA–FXR/TGR5; SCFA–GPR41/43; Vías AMPK/Nrf2 | Restablecer umbrales inflamatorios y la farmacolización dependiente de la fase | FGF19–C4; Firmas de BA; niveles SCFA; Objetivos AMPK/Nrf2 | Neuschwander-Tetri et al., 20159; Kimura et al., 201325 |
Tabla 1: Puntos de control mecanicistas que vinculan la falla de la barrera con la activación del inflamosoma hepático en MASLD/MASH.
Farmacología de sistemas y mecanismos moleculares de las intervenciones de la MTC
Un marco de sistemas-farmacología con validación multi-ómica
Utilizar la farmacología de sistemas/redes como generador de hipótesis—proyectando relaciones "compuesto–objetivo–vía" sobre la patobiología de MASLD/MASH y luego cerrando el ciclo con multi-ómica y experimentación a escala cruzada—ofrece una vía manejable hacia afirmaciones mecanicistasreproducibles 41.
Sin embargo, en esta Revisión, la farmacología de sistemas se trata explícitamente como generadora de hipótesis en lugar de confirmatoria. Las inferencias derivadas de redes se consideran ancladas de forma traslacional solo cuando se alinean con (i) datos clínicos humanos, (ii) plausibilidad dosis-exposición, (iii) sitio de acción anatómicamente consistente y (iv) lecturas de vías reproducibles.
El cribado y el enriquecimiento basados en bases de datos por sí solos son propensos a tasas infladas de falsos positivos; Por tanto, las redes propuestas deben ser sometidas a pruebas de estrés frente a restricciones dosis–exposición, sitio y tiempo de acción, y vinculación clínica antes de avanzar como modelosexplicativos 42.
Este flujo de trabajo ya cuenta con soporte paradigmático para la berberina (BBR). La BBR administrada por vía oral inhibe la hidrolasa de sales biliares microbianas (BSH), aumenta los ácidos biliares conjugados luminales como el ácido taurocólico (TCA), activa el eje ileal FXR–FGF15 y regula a la baja los programas de captación de lípidos hepáticos (por ejemplo, Cd36), mejorando colectivamente la gestión de lípidos hepáticos y reduciendo la carga inflamatoria intestino-hígado aguasabajo 12,13. En estudios integrados animal–ómicos, la cascada inferida BSH→TCA→FXR/FGF15 se alinea con las respuestas transcripcionales hepáticas, apuntando a un locus de acción intestinal más que a una eficacia impulsada por una alta exposiciónsistémica 12,43,44.
Está surgiendo evidencia a nivel de fórmula. En un ensayo aleatorizado doble ciego, Qushihuayu (QSHY) mejoró las enzimas hepáticas y los índices de fibrosis sustituta, acompañados de cambios coordinados en el microbioma intestinal y los perfiles de metabolitos, apoyando la viabilidad de una tríada de validación de "red→multiómica→endpoints clínicos" 15,45. Sin embargo, en las intervenciones de MTC en MASLD/MASH, el número de ECA con potencia adecuada sigue siendo limitado, los criterios finales suelen ser basados en sustitutos y la notificación de ocultación/ceguero de asignación y la terapia concomitante varía, lo que requiere una clasificación estructurada de la solidez de la evidencia.
Dimensiones de la calificación de evidencia y riesgo de sesgo. Para abordar la heterogeneidad y permitir una síntesis estructurada, clasificamos la evidencia en cuatro niveles: Nivel 1, ensayos controlados aleatorizados con objetivos predefinidos; Nivel 2, estudios controlados en humanos no aleatorizados u observacionales; Nivel 3, modelos animales; y Nivel 4, inferencia in vitro, computacional o basada enredes 46,47. Las dimensiones de riesgo de sesgo consideradas incluyen aleatorización y ocultación de asignación, cegamiento, jerarquía y multiplicidad de puntos finales, duración del seguimiento, preregistro, desgaste, adherencia y control terapéutico de fondo. Más allá del tipo de estudio por sí solo, la fortaleza probatoria en esta Revisión se interpreta como un compuesto de (i) jerarquía del diseño del estudio, (ii) dominios de validez interna y riesgo de sesgo, (iii) consistencia entre estudios independientes, (iv) alineación entre el compromiso mecanicista de los nodos y los objetivos clínicos, y (v) plausibilidad farmacocinética de la exposición al objetivo. La coherencia mecanicista sin alineación humana con los puntos finales se considera generadora de hipótesis, mientras que las señales clínicas que carecen de concordancia de vías se interpretan con cautela como efectos potencialmente inespecíficos. Esta evaluación integradora se aplica a todas las intervenciones de MTC que se discuten a continuación.
Mapeo de intervención a lo largo de la columna inmunitaria intestino-hígado
En el nivel de barrera, el MASLD/MASH temprano presenta alteración del epitelio intestinal y de la barrera vascular intestinal (BVB), aumentando la carga portal de los PAMPs. El agonismo del FXR estabiliza la GVB mediante la señalización endotelial Wnt/β-catenina, reduciendo así la exposición hepática posterior y la activación inflamatoria—un eje validado en los modelos dietéticosMASH 27,48. Dentro de las intervenciones de la medicina tradicional china (MTC), los polisacáridos aumentan la expresión de ZO-1/ocludina, reducen la permeabilidad y disminuyen la entrada de endotoxinas portal, constituyendo una estrategia de "desexposición" aguasarriba 49. La mayoría de las afirmaciones de protección de barreras siguen siendo evidencia de Nivel 3 a menos que estén respaldadas por medidas de permeabilidad humana o proxies de portal/exposición combinados con criterios clínicos.
El módulo TLR4–MyD88–NF-κB actúa como amplificador inicial para programas proinflamatorios y quimiotácticos hepáticos. En las células estrelladas hepáticas, la señalización TLR4 regula a la baja el pseudorreceptor TGF-β BAMBI, sensibilizando a las células al TGF-β y facilitando la transición de inflamación afibrosis 5,50. Consistente con el objetivo de este nodo, los polisacáridos de astrágalo (APS) suprimen TLR4 y fosfo-NF-κB tanto en el intestino como en el hígado y bajan las salidas de TNF-α/IL-6 aguas abajo, indicando inhibición acoplada a lo largo del continuo49 de la "barrera→TLR4". Para la inferencia traslacional, las lecturas consistentes en la vía (por ejemplo, atenuación en el eje TLR4–NF-κB–CCL2 con sustitutos de fibrosis) tienen un peso más fuerte que los cambios aislados en marcadores inflamatoriosgenerales 51,52,53.
Como plataforma de segundo impacto, el inflamosoma NLRP3 requiere cebado dependiente de NF-κB (regulación alcista de NLRP3 y pro-IL-1β) junto con señales de activación de lipotoxicidad, ROS o cristales de colesterol. En muestras clínicas y múltiples modelos murinos de MASH, la inhibición o bloqueo de su activación por parte de NLRP3 reduce la inflamación hepática y la fibrosis, aunque los tamaños de efecto varían según la dieta y el contexto metabólico, lo que implica la composición y el momento de la DAMP como determinantes de lamedicamentosidad 7,40. En estudios orientados a la MTC, la APS disminuye la señalización de NLRP3 y la maduración/liberación de IL-1β/IL-18, lo que equivale a una doble contención en el cebado y activación; Los polisacáridos derivados de la ganodermia remodelan la microbiota y atenuan la endotoxemia de bajo grado, disminuyendo indirectamente la propensión a desencadenar laNLRP3 49,54. Estos hallazgos son predominantemente evidencia de Nivel 3; La vinculación con los puntos finales de fibrosis humana o con las medidas de imagen sigue siendo escasa y debe interpretarse con cautela. A nivel de diafonía de vías, BA–FXR/TGR5 y SCFA–GPR41/43 ajustan conjuntamente el acoplamiento inmunometabólico; Los SCFA activan sus receptores para estabilizar la energía y la homeostasis inmune, modulando así la vulnerabilidadhepática 25. Integración de estos nodos, lecturas de barrera (ZO-1/ocludina, permeabilidad, LBP/EAA), salidas proinflamatorias (TNF-α, IL-6 y ejes quimiotaxis asociados), salidas de inflamasoma (IL-1β/IL-18, caspasa-1/GSDMD) y lecturas de receptores nucleares/metabólicos (perfiles de BA con objetivos FXR/TGR5; SCFAs con GPR41/43) pueden ser co-registradas a través de capas multi-ómicas para reforzar la validez externa de la inferenciamecanicista 25,27,49. En esta Revisión, este tipo de co-registro se utiliza para evaluar la coherencia mecanicista, pero la alineación humana con los puntos finales sigue siendo el principal determinante de la fuerza evidencial.
Restricciones farmacocinéticas y del lugar de exposición en la inferencia mecanicista
En ratas, la biodisponibilidad oral absoluta de berberina (BBR) es de ~0,36%–0,68%, limitada por la eliminación intestinal en primer paso y el eflujo de P-gp; La distribución tisular muestra una alta partición hepática a pesar de los bajos nivelesplasmáticos 55,56,57. Estas características definen el BBR como un modulador local del eje intestino-hígado cuya exposición lumínica es suficiente para activar la cascada BSH→BA→FXR/FGF1555,57. Las estrategias de formulación que aumentan notablemente la exposición sistémica pueden desplazar el principal lugar de acción y la ventana de seguridad; Por tanto, las afirmaciones mecanicistas deben informar de concentraciones portal y sistémicas junto con las relaciones exposición–respuesta 57.
La baja exposición sistémica no impide que el BBR reduzca la entrada de PAMP portal a través de un eje local microbiota–ácido biliar–receptor nuclear y disminuya la propensión hepática a la activación de TLR4/NLRP3—hallazgos repetidamente respaldados por experimentos multiómicos y específicosde segmentos 12,13,58. En cambio, los polisacáridos/oligosacáridos permanecen en gran medida luminales tras el parto oral, con eficacia impulsada por la reparación de barreras y los productos de fermentación microbiana (SCFA). Su efectividad depende de la dosis luminal alcanzable, la cinética de fermentación y las ventanas temporales de los ácidos biliares secundarios y los SCFAs; en consecuencia, las metabolómicas de series temporales BA/SCFA acopladas a proteínas barrera y métricas de permeabilidad proporcionan lecturas adecuadas para la atribución 25,59,60. La falta de integración de plausibilidad farmacocinética (exposición luminal, cinética de fermentación, ventanas temporales de metabolitos) es una debilidad recurrente en la atribución mecanicista en los estudios de MTC y contribuye a una reproducibilidad limitada.
Jerarquía de evidencia, biomarcadores compañeros y control de calidad
Las señales traslacionales han surgido en múltiples niveles. En un ensayo controlado aleatorizado de fase 2 del complejo iónico berberina–ursodesoxicolato (HTD1801/BUDCA), la resonancia magnética-PDFF disminuyó significativamente junto con mejoras en los parámetros metabólicos, consistentes con la traducibilidad a nivel poblacional de la modulación inmunometabólica ligada a BA–FXR 14,61. A nivel de fórmula, un ECA multicéntrico doble ciego de Qushihuayu (QSHY) demostró cambios concordantes en el microbioma intestinal y en los perfiles de metabolitos, junto con mejoras en las enzimas hepáticas y la FIB-4, subrayando cómo los biomarcadores compañeros refuerzan la interpretabilidad causal de las lecturasclínicas 15. Cuando están disponibles, los criterios de Nivel 1 (sustitutos de grasa o fibrosis basados en imágenes) se priorizan sobre los resultados solo bioquímicos.
Se deben incorporar hallazgos neutrales y negativos para mitigar la notificación selectiva. En subconjuntos de MASLD, la berberina no ha superado el control de enzimas hepáticas o lípidos, siendo la heterogeneidad plausiblemente impulsada por el fenotipo metabólico basal, el estado de permeabilidad, los medicamentos concomitantes y las diferencias de dosis/exposición—lo que argumenta a favor de un tipo de respuesta preespecificado y una estratificación liderada por biomarcadores en futurosensayos 62. Un metaanálisis clínico actualizado en 2024 informa de mejoras generales en enzimas hepáticas, lípidos y sensibilidad a la insulina con la berberina, pero destaca la heterogeneidad del estudio y la necesidad de ECA de mayor calidad para definir los límitespoblacionales 63. En las intervenciones, la variabilidad en el diseño del estudio, la selección de puntos de enlace sustituto, la duración del seguimiento y la terapia de fondo complica la comparabilidad entre ensayos. Los tamaños de efecto suelen ser modestos, y la notificación de los dominios de riesgo de sesgo es inconsistente.
Para la reproducibilidad, se han propuesto como elementos fundamentales para estandarizar las investigaciones de MTC (marcadores Q) y el control de calidad de extremo a extremo —que vinculan la base del material y la exposición in vivo a las lecturas farmacodinámicas— como elementos fundamentales para estandarizar las investigaciones de MTC; Junto con los avances en farmacología de sistemas/redes y la validación multi-ómica, este marco puede mejorar la reproducibilidad externa y la traducibilidadclínica 41. La estandarización, la consistencia de lote a lote y la alineación regulatoria son determinantes críticos de la escalabilidad y la comparabilidad de estudios cruzados, y aquí se tratan como componentes integrales de la credibilidad traslacional más que como consideraciones auxiliares. En conjunto, el cuerpo actual de evidencia apoya la plausibilidad biológica para múltiples intervenciones de MTC a lo largo de la columna vertebral de la barrera–TLR4–NLRP3. Sin embargo, solo un subconjunto (por ejemplo, formulaciones basadas en berberina y ensayos seleccionados de fórmulas) cumple con criterios de Nivel 1 con criterios humanos apoyados en imágenes, e incluso estos están limitados por tamaños de efecto modestos y heterogeneidad. La mayoría de las afirmaciones a nivel de vía —especialmente aquellas que implican modulación de inflamosomas o estabilización de GVB— siguen estando respaldadas principalmente por datos preclínicos de Nivel 3 y deben considerarse mecanísticamente coherentes pero clínicamente provisionales.
Intervenciones representativas: Evidencia traslacional a lo largo del eje barrera–TLR4–NLRP3
La berberina restaura la función de la barrera intestinal y atenúa la señalización de la inflammasoma NLRP3
La berberina administrada por vía oral presenta una baja exposición sistémica con alta disponibilidad luminal: en roedores, la biodisponibilidad oral absoluta es de ~0,36%–0,68%, limitada por la eliminación intestinal en primer paso y el eflujo de P-glicoproteína55,57. La microbiota intestinal puede reducir la BBR a dihidroberberina, una forma más absorbible, consistente con una trayectoria de exposición "primero el intestino, hígado después" 64. Estas características farmacocinéticas y biotransformativas posicionan la BBR para modular los procesos intestino-hígado aguas arriba que moldean la transducción inflamatoria hepática aguas abajo.
En la interfaz de barrera, la BBR mitiga la mala localización inducida por endotoxinas/citocinas proinflamatorias de ZO-1/ocludina/claudins y reduce la fuga paracelular, en parte mediante la inhibición del eje NF-κB–MLCK; esto reduce indirectamente la carga portal de LPS y la exposición hepáticasinusoidal 65. La BBR también suprime la actividad de NF-κB en la mucosa del colon y los macrófagos de la lámina propia, disminuyendo TNF-α e IL-6 y amortiguando aún más la cascada TLR4–MyD88–NF-κB66,67. Estos efectos de barrera y de eje TLR4 están predominantemente respaldados por evidencia de Nivel 3 (animal), con cuantificación directa de permeabilidad limitada en cohortes humanas de MASLD.
En el nodo inflammasome, el BBR restringe la activación de NLRP3 y la pirooptosis en modelos de estrés nutricional/lipotóxico, en parte modulando a la baja el eje ROS–TXNIP que integra las señales de cebado y activación, reduciendo así la activación de la caspasa-1 y la liberación de IL-1β/IL-18 68. Aunque mecanísticamente coherentes, estos hallazgos inflamasomas siguen siendo en gran medida preclínicos y requieren validación frente a la fibrosis humana o los criterios de imagen.
La BBR actúa además a través del eje endocrino de los ácidos biliares (BA): la inhibición de la hidrolasa de sales biliares microbianas (BSH) aumenta los BA conjugados luminales, especialmente el ácido taurocólico, activa la vía ileal FXR–FGF15 y regula a la baja programas de captación de lípidos hepáticos como Cd36, vinculando la reprogramación metabólica con una menor susceptibilidad a losinflamasomas 12. Este mecanismo BA–FXR proporciona plausibilidad biológica para efectos a escala cruzada, pero no establece, por sí solo, la eficacia clínica.
En estudios clínicos, un ECA de fase 2 del complejo iónico berberina–ursodesoxicolato (BUDCA/HTD1801) demostró reducciones significativas en la resonancia magnética-PDFF con beneficios metabólicos concomitantes frente al placebo, consistentes con la trasladabilidad cruzada desde el eje intestino–BA–FXR hasta las lecturas lipotóxicas/inflamatoriashepáticas 14. Metaanálisis recientes reportan tamaños de efecto moderados en general para ALT/AST y esteatosis hepática, señalando heterogeneidad entre ECA en dosis, formulación y perfiles de reclutamiento, subrayando la necesidad de biomarcadores compañeros y la estratificación por tipode respuesta 63,69. Las consideraciones de riesgo de sesgo incluyen ceguera variable, duración limitada del seguimiento y dependencia del punto final sustituto. Los datos de seguridad son generalmente favorables, pero la vigilancia a largo plazo por hepatotoxicidad y el perfilado de interacciones fármaco-fármaco (por ejemplo, modulación CYP/P-gp) siguen siendo incompletamente.
Para el diseño traslacional, los índices de permeabilidad, LBP y MRI-PDFF proporcionan marcadores complementarios racionales. Los ensayos futuros se beneficiarían de un tipo de respuesta predefinido y de un reporte por tamaño de efecto, estratificados por permeabilidad basal o estado de activación del inflamosoma. En general, la berberina representa una de las pocas intervenciones derivadas de la MTC apoyadas por evidencia basada en imágenes de Nivel 1, aunque con tamaños de efecto moderados, heterogeneidad entre formulaciones y una confirmación histológica limitada. Las afirmaciones mecanicistas más allá de la modulación de ácidos biliares/FXR —particularmente la supresión de inflamasome— siguen siendo en gran medida preclínicas y deben considerarse plausibles traduccionalmente, aunque aún no clínicamente establecidas.
Qushihuayu (QSHY): Evidencia clínica y multiómica multicéntrica a lo largo del eje barrera–ácido biliar–TLR4
En estudios preclínicos, QSHY y su fórmula progenitora QHD restauran las uniones estretas del colon y limitan la translocación de LPS; el perfilado fosfoproteómico colónico apunta a la señalización MAPK como regulador aguas arriba, coherente con la secuencia "reparación de barreras → reducción de la carga PAMP portal → señalización TLR hepática amortiguada"70. A nivel hepatocelular, la QHD activa el AMPK, potencia la oxidación β dependiente de CPT-1A y, por tanto, reduce el impulso lipotóxico y las entradas inflamatoriassecundarias 71,72. Los análisis multiómicos muestran además una remodelación concomitante de la microbiota intestinal y de los perfiles de lípidos/metabolitos séricos, indicando que la intervención abarca múltiples nodos de la interfaz metabólica intestino-hígado73. En conjunto, estos hallazgos constituyen principalmente evidencia mecanicista de Nivel 3 que respalda la plausibilidad biológica, pero no definen el tamaño o la durabilidad del efecto clínico en humanos.
Clínicamente, un ECA multicéntrico, doble ciego y doble simulación (n=246) de 2024, utilizando VCTE-LFC y ALT como criterios co-primarios encontró QSHY superior al control de ALT, AST y FIB-4, con firmas de microbioma y metabolitos que monitorizan la respuesta clínica—relacionando los cambios de "microbiota–metabolitos" con las lecturas de transaminasa yelastográfica 15, pero la interpretación está limitada por la dependencia de los puntos finales sustitutos, la duración de 24 semanas, y posibles confusión residual derivadas de las cointervenciones en el estilo de vida. Los efectos en varios puntos finales secundarios de imagen fueron limitados, y la heterogeneidad entre sujetos (incluyendo permeabilidad basal y estado inflamatorio) probablemente diluyó la señal, apoyando la estratificación basada en permeabilidad/inflamación en ensayos posteriores. Cuando está disponible, es fundamental informar sobre la ocultación de asignaciones, la adhesión y las desviaciones del protocolo para contextualizar el riesgo de sesgo respecto a los tamaños de efecto observados.
Siguen dos prioridades traslacionales. Primero, biomarcadores compañeros y estratos preespecificados: los pacientes con LBP basal elevado, proporciones anómalas de ácidos biliares secundarios heces, o un IL-1β más alto tienen teóricamente más probabilidades de beneficiarse de una inhibición coordinada a lo largo del eje barrera BA–TLR4 15. Segundo, la calidad y la trazabilidad de la exposición: adoptar marcadores Q basados en huellas dactilares (flavonoides/ácidos fenólicos representativos) y mapearlos a la exposición in vivo y a los efectos farmacodinámicos. Dada la naturaleza basada en fórmulas de QSHY, la consistencia de lote a lote y la caracterización transparente de fracciones activas son requisitos previos para la comparabilidad de estudios cruzados y el desarrollo de gradoregulatorio 74,75. Las estrategias combinadas son anatómica y mecanicamente complementarias: el resmetirom se dirige predominantemente a los extremos de manejo de lípidos hepatocelulares/fibrosis, mientras que los agonistas del receptor GLP-1 actúan sobre la resistencia al peso y la insulina, lo que convierte el co-desarrollo con QSHY en un camino racional hacia una cobertura de respuesta másamplia 76,77. Estas combinaciones deben evaluarse con monitorización de seguridad predefinida y documentación de terapia de fondo consciente de la interacción, especialmente cuando los medicamentos metabólicos concomitantes son comunes en cohortes MASLD/MASH. En resumen, QSHY está respaldado por evidencia de Nivel 1 para resultados bioquímicos y basados en elastografía, pero su magnitud y durabilidad del efecto aún no se confirman en ensayos más largos, centrados en imágenes o basados en histología. La mayoría de las afirmaciones de mapeo mecanístico de nodos siguen siendo de Nivel 3, y el avance regulatorio dependerá de la estandarización y replicación entre cohortes independientes.
Decocción Da-Chai-Hu (DCHD): Mantenimiento de la barrera vascular intestinal y reajuste de la diafonía PPARα/AMPK–NF-κB
La DCHD mejora los lípidos, la resistencia a la insulina y la histología hepática en modelos de DFD-MASLD, acompañada de remodelación de la microbiota intestinal y del metaboloma sérico, coherente con una acción coordinada en la barrera ascendente y en los ganglios inmunometabólicosintrahepáticos 16,78. En la "segunda barrera", la barrera vascular intestinal (GVB), la DCHD preserva la integridad endotelial bajo sobrecarga de nutrientes en modelos de interacción intestino-hígado, reduce el flujo portal de moléculas patógenas y reduce los eventos de translocación hepática, destacando la plasticidad de PLVAP/PV-1 y las uniones endoteliales; aunque derivados en un contexto de metástasis intestino-hígado, estos hallazgos proporcionan apoyo mecanicista de Nivel 3 para la estabilización de GVB y motivan las pruebas en entornos relevantes para MASLD con puntos finales vinculados a permeabilidad/endotoxinas. En el núcleo de señalización hepática, los efectos de DCHD se alinean con la modulación en la intersección PPARα/AMPK–NF-κB, lo que indica una influencia a nivel de sistema sobre el acoplamientoinmunometabólico 79. En general, la evidencia actual de DCHD sigue siendo predominantemente preclínica y generadora de hipótesis, con datos humanos limitados de nivel 1–2 anclados directamente a resultados concordantes con las vías.
En cuanto a la evidencia sólida, una revisión sistemática de 2024 sugiere un beneficio global de la DCHD en transaminasas, lípidos y algunas medidas de imagen, al tiempo que enfatiza limitaciones en la calidad del estudio y la heterogeneidad de los puntos finales; los estudios clínicos disponibles son heterogéneos en su diseño, dependen frecuentemente de criterios sustitutos y proporcionan informes de resultados escalonados limitados (MRI-PDFF/ELF/MRE), limitando la inferencia sobre el tamaño y la durabilidad del efecto80. Las preocupaciones sobre riesgo de sesgo incluyen cegamiento variable/ocultación de asignación, control de la terapia de fondo y reporte incompleto de adherencia y deserción, lo que complica la comparabilidad entre ensayos. Un siguiente paso traslacional es un ECA enriquecido por mecanismos que apunte dualmente a los extremos de la GVB y la barrera epitelial —por ejemplo, permeabilidad fecal/sérico—marcadores de endotoxinas más PDFF/ELF—y que enriquece prospectivamente a los participantes con alta carga de PAMP portal, aumentando la probabilidad de detectar un beneficio clínico concordante conla vía 80. Dada la probabilidad de la aparición de medicamentos metabólicos concomitantes (por ejemplo, estatinas, metformina) en cohortes MASLD/MASH, la documentación consciente de la interacción y el seguimiento de seguridad predefinido deben incorporarse en el diseño del ensayo. En conjunto, la DCHD se basa actualmente principalmente en datos mecanicistas de Nivel 3 y señales clínicas heterogéneas. Su posicionamiento como intervención moduladora de GVB es biológicamente coherente, pero sigue siendo clínicamente provisional a la espera de la validación del punto final humano concordante con la vía.
Polisacáridos de la Medicina Tradicional China (Astrágalo, Ganoderma): Mejora de la inmunidad mucosa y supresión coordinada de TLR4–NF-κB–NLRP3
Los polisacáridos de la MTC están predominantemente expuestos a la luz y, por tanto, están bien posicionados para actuar sobre programas de barrera inmunitaria mucosa y la intercomunicación entre microbiota y metabolitos. Los polisacáridos de astrágalo (APS) remodelan la homeostasis de los ácidos biliares y el acoplamiento microbiota–BA en modelos HFD-MASLD, mejorando la esteatosis hepática y las lecturas inflamatorias e indicando actividad a lo largo del puente "barrera–BA–hígado" 18,81. Los polisacáridos de ganoderma aumentan la IgA secretora, restauran las células caliciformes y las uniones estrechas, y aumentan los transcritos TLR2/4/6 en entornos inmunosupresores, lo que es coherente con la "reducción de ruido" ascendentedel tono 82 de inmunidad mucosa–barrera–TLR. Dentro del hígado, los polisacáridos de ganodermia suprimen el inflammasoma NLRP3 y reducen la salida de IL-1β/IL-18, apoyando la interrupción del relé piroptosis-fibrosis17. Una síntesis reciente catalogó mecanismos multidimensionales mediante los cuales los polisacáridos mejoran la MASLD a través del eje intestino-hígado y propuso estándares para la definición de marcadores Q y el mapeoexposición-efecto 83. En conjunto, estos datos son predominantemente evidencia de Nivel 3 (preclínica); Los estudios humanos robustos de Nivel 1–2 con criterios centrados en imágenes o fibrosis siguen siendo limitados.
Varias restricciones merecen aclaración. La mayoría de los estudios sobre polisacáridos permanecen en fase preclínica o temprana; La heterogeneidad de fabricación y las distribuciones moleculares de peso varían ampliamente, y las concentraciones alcanzables in vivo con consistencia de lote a lote son cuellos de botella recurrentes. Esta heterogeneidad complica la reproducibilidad, porque "polisacárido" suele denotar una mezcla con espectros moleculares, pureza y bioactividad variables entre preparaciones. Se producen hallazgos neutrales en los resultados de imagen o inflamatorios, que están plausiblemente impulsados por diferencias en la formulación, una duración subóptima y la medicación concomitante. En consecuencia, se deben informar e incorporar resultados negativos o neutros para mitigar el sesgo de publicación y la sobreestimación de la eficacia. Para la traducción clínica, un esquema de respuesta dominante en la barrera—permeabilidad elevada, LBP alto y sIgA bajo en la línea inicial—combinado con extremos escalonados (sIgA/microbiota/SCFAs → LBP/16S rDNA → MRI-PDFF/ELF) proporciona una cadena auditable de atribución, mientras que las huellas dactilares polisacáridas y los espectros de peso molecular pueden servir como primitivas de marcadores Q alineadas con la exposición y los efectosfarmacodinámicos 84,85. Además, la caracterización química/estructural (por ejemplo, composición de monosacáridos, perfilado de enlace glicosídico y distribución de peso molecular) puede reforzar la trazabilidad y la estandarización de grado regulatorio más allá de las medidas gruesas de "contenido polisacárido" 86,87. Las estrategias combinadas con agonistas de resmetirom o receptores GLP-1 son mecánicamente complementarias, siendo las primeras el énfasis en el manejo de lípidos hepatocelulares y las lecturas de fibrosis, y las segundas en peso y resistencia ala insulina 74,88,89. Estas combinaciones deben evaluarse con un seguimiento de seguridad predefinido y una documentación cuidadosa de la terapia de fondo, especialmente en poblaciones que reciben múltiples agentes metabólicos.
En cuatro clases de intervención, los nodos anclaje a lo largo de la columna vertebral de la barrera TLR4–NLRP3 son distintos pero convergentes en flujo de evidencia—desde la farmacocinética y el sitio de acción pasando por las lecturas multi-ómicas hasta los puntos finales poblacionales. La berberina actúa mediante una alta exposición intestinal y señalización BA–FXR; QSHY proporciona control coordinado a lo largo del eje barrera–ácido biliar–TLR4; La DCHD establece una defensa dual en la GVB y la barrera epitelial con reajuste inmunometabólico; Los polisacáridos reducen el ruido aguas arriba a través de los circuitos de inmunidad, barrera y inflamasoma mucosas. Elevar marcadores mecanicistas (permeabilidad/LBP, sIgA, perfiles BA, IL-1β/IL-18) junto con los extremos de imagen escalonados (MRI-PDFF y ELF/MRE cuando sea posible) a stratificadores preespecificados puede mejorar la interpretabilidad y reducir la heterogeneidad; Integrar estos elementos dentro del control de calidad impulsado por marcadores Q y la vinculación exposición-efecto es esencial para la reproducibilidad y la traducibilidad de grado regulatorio. Los futuros ensayos deberían fijar puntos jerárquicos que combinen índices barrera/GVB con MRI-PDFF/ELF/MRE y que enriquezcan a priori subgrupos de "alta permeabilidad-inflamación" para afinar la vía señal-resultado. Así, aunque los polisacáridos demuestran una coherencia inmunomoduladora convincente a través de ganglios de barrera y inflammasoma, la base de evidencia actual sigue siendo en gran medida preclínica. Es necesaria la validación clínica con preparaciones estandarizadas, marcadores Q reproducibles y criterios de imagen escalonados antes de poder sacar conclusiones firmes sobre la eficacia.
Entre intervenciones, la solidez probatoria es desigual. Las formulaciones basadas en berberina actualmente cuentan con los datos más sólidos apoyados por imagen humana, mientras que QSHY demuestra un soporte emergente de ECA multicéntrico principalmente para endpoints sustitutos. La DCHD y los polisacáridos siguen siendo mecanísticamente coherentes pero predominantemente respaldados por evidencia clínica o clínica heterogénea. Esta asimetría subraya la importancia de la gradación estructurada, la replicación y las formulaciones estandarizadas antes de que se avancen afirmaciones translacionales amplias (véase Tabla 2).
| Clase de intervención | Nodo(s) primario(s) en la columna vertebral | Afirmaciones mecánicas clave | Lecturas traslacionales reportadas en estudios originales | Estado de evidencia humana | Nivel de evidencia | Estudios representativos |
| Formulación basada en berberina / berberina (HTD1801/BUDCA) | Barrier/BA–FXR; TLR4/NLRP3 aguas abajo (principalmente preclínico) | Inhibición microbiana de BSH → BA conjugada ↑tauro (por ejemplo, TCA) → activación ileal FXR–FGF15 → ↓hepática Cd36; Propuesta de atenuación y restricción de inflammasa en el eje barrera/TLR4 | Imagen: MRI-PDFF; Bioquímicos: ALT/AST, parámetros metabólicos; Mecanicista: objetivos ileales FXR/FGF15, perfiles BA | ECA de fase 2 controlada con placebo y reducción de la resonancia magnética (PDFF) (más resultados metabólicos) | Niveles 1–2 para imagen/resultados bioquímicos; Nivel 3 para reclamaciones sobre inflammasomas | Harrison, et.al, 202114; Dom, et.al,2017 12; Nejati, et.al, 202262; Nie, et.al, 202463 |
| Qushihuayu (QSHY) / progenitor QHD | Barrera; Ajuste metabólico relacionado con BA/AMPK; Eje TLR4 (mecanicista) | restauración de TJ y reducción de la translocación LPS; regulación upstream relacionada con MAPK (preclínica); FAO vinculada a AMPK/CPT-1A y reprogramación metabólica; Remodelación microbiota-lipidoma | Humano: ALT/AST, FIB-4; VCTE-LFC (co-principal con ALT); el seguimiento de la respuesta de microbioma/metabolitos; Preclínico: lecturas AMPK/CPT-1A/FAO; Cambios en microbioma + lipidómicos | ECA multicéntrica, doble ciega, doble dummy con extremos co-primarios (VCTE-LFC + ALT), sustitutos secundarios de fibrosis | Nivel 1 para endpoints clínicos sustitutos + asociación ómica; Nivel 3 para reclamaciones de nodos mecanicistas | Liu, et.al, 202415; Feng, et.al, 201371; Dom, et.al 202272 |
| Decocción Da-Chai-Hu (DCHD) | GVB; barrera aguas arriba; PPAR/AMPK–NF-κB crosstalk (preclínico) | Preserva la integridad de la GVB (ligado a PLVAP/PV-1) bajo hipernutrición; reduce los eventos de flujo de portal/translocación; mejora el fenotipo metabólico e inflamatorio en los modelos de NAFLD | Preclínico: histología, lípidos/medidas de RI; microbiota intestinal + metabolómica sérica; Marcadores de integridad GVB (PLVAP/PV-1) | Evidencia clínica principalmente de estudios heterogéneos resumidos en revisiones sistemáticas; Extremos limitados de nivel de imagen | Predominantemente de Nivel 3; Señales clínicas heterogéneas | Cui, et.al, 202016; Wang, et.al, 202378; Mou, et.al,2024 80 |
| Polisacáridos de la MTC (Astrágalo, Ganoderma) | inmunidad/barrera mucosa; TLR4–NF-κB; NLRP3 (principalmente preclínica) | Refuerzo de barrera (proteínas TJ), modulación inmune mucosa (sIgA); reducción de la endotosemia; se ha reportado sujeción de inflammasomas; Acoplamiento microbiota/BA en modelos de NAFLD | Preclínico: proteínas TJ (ZO-1/ocludina), sIgA, citocinas; composición de la microbiota intestinal; Homeostasis de BA (incluyendo lecturas centradas en la vía de BA); Hígado: marcadores inflamatorios (IL-1β/IL-18/NLRP3 en modelos de lesión) | Ensayos robustos centrados en imagen humana y fibrosis limitados; Evidencia principalmente mecánica/preclínica | Predominantemente de Nivel 3 | Zheng, et.al, 202418; Ying, et.al,2020 82; Zhong, et.al, 202249 |
Tabla 2: Intervenciones representativas asignadas al eje barrera–TLR4–NLRP3 y reportaron lecturas traslacionales.
Biomarcadores y tipificación de respuesta anclados a la columna inmune intestino-hígado
Definiciones de panel mínimo de biomarcadores y umbrales
Operacionalizar la columna vertebral "barrera–TLR4–NLRP3" requiere un panel mínimo in vivo repetible que haga seguimiento con los resultados de imagen y clínicos. Para la carga molecular derivada del intestino, la revisión sistemática y el metaanálisis indican que el lipopolisacárido circulante se eleva a lo largo del espectro desde MASLD hasta MASH y fibrosis avanzada, apoyando su uso para estratificación y como lectura de exposiciónproximal 1,90,91. Dado que la cuantificación de LPS es metodológicamente heterogénea, los estudios suelen utilizar proteínas que se unen a LPS y CD14 soluble (sCD14) como sustitutos; ambos se correlacionan con la actividad LPS pero carecen de especificidad y son sensibles a las fluctuaciones postprandiales, argumentando a favor de la línea base del ayuno emparejado y del muestreo postprandial estandarizado con informes explícitos de tiempos y advertenciasinterpretativas 1,92. Además, la diversidad estructural en los lípidos A altera los umbrales de disparo de TLR4, por lo que las comparaciones cruzadas deberían especificar el formato de fuente y ensayo LPS para evitar el sesgo de "mismo nombre, molécula diferente" 93.
Por tanto, en ensayos clínicos orientados a la MTC, la selección de biomarcadores debe priorizar la reproducibilidad del ensayo y la comparabilidad entre cohortes sobre la completitud teórica, y la transparencia metodológica debe acompañar todas las lecturas de exposición.
El perfilado de ácidos biliares ofrece una ventana a la desregulación de BA–FXR/TGR5. En MASH, los totales de BA fecal y plasmático y especies específicas (por ejemplo, ácido cólico, ácido quenodesoxicólico) están frecuentemente elevados y se asocian con la etapa de fibrosis y resistencia a la insulina, sosteniendo un subtipo94 "dominante en BA–FXR". En plasma, el 7α-hidroxi-4-colesteno-3-ona (C4) refleja la síntesis de BA y normalmente sigue inversamente la retroalimentación ileal FXR–FGF19; Las lecturas que integran FGF19 con C4 ayudan a resolver el estado dinámico de FXR y pueden usarse para medir la respuesta a intervenciones dirigidas a BA–FXR 95,96,97. Para los ácidos grasos de cadena corta (SCFA), las asociaciones con esteatosis y fibrosis dependen direccionalmente de la dieta y la ecología; el emparejamiento de SCFAs fecales o plasmáticas con capacidad funcional metagenómica (vías biosintéticas de SCFA) y lecturas de receptores (GPR41/43) mejora la validez externa98.
Dado que las mediciones de BA y SCFA son sensibles a la ingesta dietética, la ecología del microbioma y la variabilidad de la plataforma LC-MS, los protocolos de muestreo predefinidos y las líneas analíticas son esenciales si estos marcadores van a servir como biomarcadores complementarios en ensayos de MTC.
Las medidas directas de "permeabilidad" siguen sin determinarse. La zonulina humana corresponde a la pre-haptoglobina-2, aunque las ELISA comúnmente usadas carecen de especificidad y pueden reaccionar cruzadamente con properdina u otros miembros de la "familia de la zonulina", lo que produce resultados inestables entre cohortes; La zonulina se trata mejor como exploratoria y se valida cruzadamente con pruebas de permeabilidad funcional o firmas transcripcionales de barrera para minimizar la guía de falsospositivos 99.100. La evidencia molecular de translocación bacteriana (ADNr 16S circulante o hepático) es intrínsecamente baja en biomasa y propensa a la contaminación por reactivos y lotes; Son obligatorios controles negativos rigurosos y canaletas de descontaminación, y la interpretación causal debe ser cautelosa incluso cuando se reporten diferencias en tejido hepático metabólico/obeso 101.
Las imágenes con umbral y las lecturas de fibrosis proporcionan compuertas estandarizadas de "go/no-go". Una reducción relativa del ≥30% en la RM-PDFF se correlaciona con la respuesta histológica (mejora del NAS/resolución MASH) y es adecuada para la toma de decisiones intermedia de 4–12 semanas y la planificación por tamañode muestra 102.103. Los umbrales mejorados de fibrosis hepática (ELF) de 9,8 y 11,3 apoyan desencadenantes de estratificación de riesgos y vigilancia a largo plazo. La rigidez hepática por resonancia magnética (MRE) alrededor de 3,3 kPa, combinada con FIB-4 ≥ 1,6 como regla MEFIB, enriquece la fibrosis ≥F2 con alta confianza entre cohortes, permitiendo la identificación rápida de poblaciones de alto riesgo y guiando la inscripción104. Para el desarrollo de la MTC, acoplar marcadores inmunes proximales (por ejemplo, LBP, IL-1β) con umbrales de imagen escalonados proporciona un marco jerárquico que reduce la dependencia únicamente de sustitutos bioquímicos.
Tipificación de respuesta anclada a la columna vertebral inmunitaria
Utilizando la secuencia "epitelio/GVB → LPS–TLR4–NF-κB → NLRP3" como andamiaje organizador, MASLD/MASH puede particionarse operativamente en tres subtipos que pueden emparejarse con intervenciones. Un fenotipo dominante en la barrera se caracteriza por un aumento del ayuno o una lcumbre estandarizada postprandial/sCD14, un desplazamiento hacia mayores proporciones de ácidos biliares primarios/secundarios, y un desequilibrio inmunitario mucoso. Las imágenes suelen mostrar una alta resonancia magnética-PDFF con MRE/ELF aún en rangos de riesgo bajos a intermedios, favoreciendo estrategias de primera línea que refuerzan la integridad epitelial y GVB, remodelan la microbiota y normalizan la reserva de ácidos biliares; la respuesta temprana se calcula mejor mediante descensos acoplados en LBP/sCD14 junto con una reducciónPDFF 1,92.
Este subtipo es especialmente relevante para estrategias de MTC que enfatizan la estabilización de barreras y la remodelación de microbiotas (por ejemplo, polisacáridos o fórmulas similares a QSHY), y proporciona una base racional para el enriquecimiento en ensayos dirigidos a barreras. Un fenotipo dominante en inflammasa presenta un aumento de IL-1β en sangre o hígado, firmas positivas de NLRP3 y pirooptosis (GSDMD-N) a nivel de transcrito/proteína, y un empeoramiento concordante de las lecturas de fibrosis. Los tejidos humanos y modelos animales muestran que la GSDMD-N aumenta con la actividad de la enfermedad y la fibrosis, y que la inhibición selectiva de la NLRP3 reduce la inflamación hepática y la fibrosis, al tiempo que tiene efectos limitados sobre la esteatosis, lo que pone de manifiesto un riesgo de desajuste en el que la reducción de grasa no equivale a una mejora inflamatoria/fibrótica. En este subtipo, emparejar el bloqueo NLRP3–caspasa-1–IL-1β con la reprogramación metabólica guiada por AMPK/Nrf2 puede aumentar la probabilidad de respuesta 7,36.
En contextos de MTC, este fenotipo se alinea mecanicamente con agentes que se informa que modulan la señalización del inflammasa (por ejemplo, BBR, APS) y resalta el riesgo de que los extremos "solo de grasa" no logren captar el beneficio concordante con la vía. Un fenotipo desregulado en BA y FXR se indica por una composición anormal de BA fecal/plasma y una dinámica alterada de FGF19/C4, lo que implica un estado no fisiológico del circuito intestino-hígado BA–FXR/TGR5. Más allá de las medidas de barrera/microbiota, este subtipo requiere una evaluación explícita de la respuesta y márgenes de seguridad de FXR/TGR5; La eficacia debe evaluarse mediante realineamientos fisiológicos de los perfiles de BA junto con mejoras concordantes en PDFF yMRE 94,95. Para las intervenciones de MTC que influyen en las piscinas de ácidos biliares o la actividad de FXR, este subtipo ofrece una estrategia de enriquecimiento biológicamente coherente, siempre que se monitoreen los márgenes de seguridad y los efectos de los ácidos biliares fuera del objetivo.
Alineación estratificada y seguimiento longitudinal
Para traducir el mecanismo → biomarcadores → los resultados a nivel individual, se recomienda un marco de tres puntos temporales: basal → interino (4–12 semanas) → resultado (≥24–48 semanas). La evaluación de la línea base debe incluir el panel mínimo (LBP/sCD14, perfilado BA y—cuando sea informativo—SCFAs y ADNr 16S rigurosamente descontaminado), imágenes con MRI-PDFF/MRE y clasificación de riesgo (por ejemplo, MEFIB), con puntos secundarios comunes y específicos de subtipo preespecificados derivados del esquemade tres clases 105. En el interin, la RM-PDFF funciona como una señal de avance/no-va: una reducción relativa del ≥ 30% en 4–12 semanas, acompañada de descensos síncronos en LBP/sCD14, indica que el brazo barrera ha sido activado eficazmente. Si la PDFF disminuye pero IL-1β/GSDMD-N o ELF/MRE no mejoran, el patrón sugiere una desadaptación dominante en inflammasoma y debería desencadenar la adición o el cambio a estrategias dirigidas por NLRP3–caspasa-1102,103.
La ventana de resultados prioriza la MRE/ELF y los criterios clínicos durante ≥24–48 semanas para captar la dinámica de la fibrosis; Los umbrales ELF de 9,8/11,3 y una compuerta MRE de alrededor de 3,3 kPa—combinados con FIB-4 ≥1,6 en la norma MEFIB—apoyan la reestratificación del riesgo y la adjudicaciónde eventos 104. Apoyando la viabilidad de la estratificación de riesgo anclada en multiómica, un estudio reciente sobre microbioma-metaboloma fecal en cirrosis identificó firmas microbianas y metabólicas dependientes de complicaciones con buen rendimiento diagnóstico y correlaciones con marcadores clínicos, ilustrando cómo las ómicas derivadas del intestino pueden acoplarse a resultados clínicamentesignificativos 78. Para ensayos intrínsecamente bajos en biomasa, deben divulgarse los controles negativos y las tuberías de descontaminación; La zonulina debe mantenerse exploratoria y ser validada cruzadamente con pruebas de permeabilidad funcional o firmas de barrera epitelial para evitar la guía101 de falsos positivos.
Dentro de este marco, el panel mínimo de biomarcadores y los umbrales de imagen escalonados sustentan un sistema coherente para la tipificación y seguimiento de la respuesta. Las clases dominantes en barrera, dominantes en inflamasomas y desreguladas en BA–FXR se corresponden a estrategias accionables: protección epitelial/GVB con remodelación microbiota–BA; Inhibición de NLRP3–caspasa-1 con reajuste metabólico; y modulación FXR/TGR5, respectivamente—con validación mediante cambios coordinados en LBP/sCD14, perfiles BA, IL-1β/GSDMD-N y MRI-PDFF/MRE/ELF. De este modo, la columna vertebral inmunitaria se convierte en criterios comprobables de "quién se beneficia" que informan las reglas de parada provisional, el enriquecimiento y la vigilancia dentro de los ensayos 1.103. Al vincular explícitamente subtipo, clase de intervención y objetivos jerárquicos, la columna vertebral inmunitaria se convierte en criterios comprobables de "quién se beneficia" que pueden mejorar la eficiencia del ensayo, reducir la heterogeneidad y fortalecer la atribución causal en los estudios de MTC.
Ejemplos ilustrativos, a nivel de protocolo, para diseños guiados por biomarcadores
Para mejorar la implementabilidad de los conceptos propuestos de biomarcadores y diseño adaptativo, proporcionamos dos ejemplos trabajados a nivel de protocolo que están anclados a diseños de ensayos publicados y umbrales validados de imagen/biomarcadores, en lugar de elecciones hipotéticas de parámetros. El objetivo es demostrar cómo la subtipificación mecanicista puede operacionalizarse con endpoints preespecificados, reglas de decisión intermedias y ensayos reproducibles.
Ejemplo resuelto 1: Ensayo de fórmula enriquecida con barrera (QSHY) con compuerta de imagen y lectura de fibrosis.
Una implementación práctica del esquema dominante de barrera puede aprovechar el diseño existente de ensayos aleatorizados multicéntricos, doble ciego y doble simulación de Qushi Huayu (QSHY) en poblaciones con NAFLD, que utilizó co-criterios principales alineados con el contenido de grasa hepática mediante elastografía transitoria controlada por vibraciones y ALT a las 24 semanas. Un protocolo enriquecido podría predeterminar criterios de entrada para la esteatosis basal mediante resonancia magnética-PDFF (por ejemplo, ≥10%) y una exposición asociada a barreras elevada (LBP y/o sCD14 por encima del tertil/cuartil superior de la cohorte cribada), manteniendo al mismo tiempo la misma estructura de cegamiento y comparador para la viabilidad einterpretabilidad 15. Una decisión provisional en la semana 12 usaría la MRI-PDFF como puerta: un descenso relativo del ≥ 30% se definiría como una señal de respuesta temprana basada en evidencia metaanalítica que vincula este umbral con la respuesta histológica y la resoluciónNASH 102 y con las probabilidades de regresiónfibrosis 103. Los participantes continuarían hasta la semana 24–48 con resultados centrados en fibrosis priorizados (ELF y/o ERM), utilizando estratos pronósticos de ELF establecidos (por ejemplo, <9,8 frente a ≥11,3) para la reclasificación de riesgos e interpretaciónde los resultados 104. Cuando se desea el enriquecimiento de fibrosis, la regla MEFIB (MRE ≥3,3 kPa más FIB-4 ≥1,6) puede preespecificarse en la línea inicial, ya sea como estrato de elegibilidad o como un subgrupo clave para reforzar la potencia de la inferencia relevante parafibrosis 105. Se recogerían biomarcadores compañeros (LBP/sCD14, exploratorio IL-1β/GSDMD-N) en la línea inicial y en la semana 12 para probar el compromiso de las vías y apoyar la interpretación mecanicista de trayectorias de imagen discordante/bioquímicas.
Ejemplo 2 trabajado: Ensayo de intervención enriquecido con BA–FXR (formulación basada en berberina) con compuerta PDFF y co-endpoints metabólicos.
Una implementación desregulada en el BA y FXR puede anclarse al ensayo de fase 2, controlado con placebo, de berberina ursodesoxicolato (HTD1801/BUDCA), que demostró una reducción significativa por resonancia magnética y PDFF junto con mejoras metabólicas en la presunta NASH con diabetestipo 2 14. Un protocolo realizable preespecificaría el enriquecimiento en el eje BA usando perfiles base de BA y/o dinámicas FGF19–C4 (tal como se describe en el manuscrito), manteniendo MRI-PDFF como el principal punto final temprano de imagen. Una puerta intermedia de 12–18 semanas podría adoptar nuevamente el umbral de disminución relativa del PDFF del ≥30% para apoyar las decisiones de go/no go y la planificación del tamaño de la muestra, consistente con la evidenciade fase inicial 102. Dado que las señales clínicas con productos de berberina muestran heterogeneidad —incluyendo ECA que reportan efectos neutrales sobre enzimas hepáticas y medidas metabólicas en subconjuntos de la NAFLD— los protocolos deberían preespecificar la tipificación de respuesta y los análisis de heterogeneidad planificada en lugar de tratar las señales nulas como sorpresas posthoc 62. Un metaanálisis reciente también destaca la variabilidad entre ensayos de berberina en formulación, dosis y perfiles de pacientes, apoyando la necesidad de biomarcadores compañeros y la interpretaciónestratificada 63. El seguimiento de la seguridad debe definirse prospectivamente con especial atención a la tolerabilidad gastrointestinal y al potencial de interacción fármaco-fármaco en cohortes tratadas metabólicicamente, alineados con los patrones de eventos adversos reportados en el ensayoHTD1801 14.
Plantilla de implementación: MAMS simplificado impulsado por biomarcadores
Un enfoque pragmático multibrazo y múltiples etapas puede enmarcarse como tres puertas predefinidas y clínicamente familiares en lugar de una plataforma adaptativa altamente parametrizada: la Etapa 1 selecciona intervenciones por respuesta temprana a la grasa hepática (MRI-PDFF ≥30% de disminución relativa) utilizando compuertasbasadas en la evidencia 102; La etapa 2 evalúa la dinámica de la fibrosis usando ELF y/o ERM (con enriquecimiento opcional de MEFIB) durante las semanas 24–48104,105; La Etapa 3 confirma la durabilidad con un resultado compuesto predefinido y un perfil de seguridad. La presentación de informes debe seguir la Extensión CONSORT (ACE) de Adaptive Designs para garantizar la transparencia de adaptaciones preplanificadas, reglas de parada y control de errorestipo I 106. Esta "plantilla de ejecución" mantiene el marco implementable mientras preserva el enriquecimiento mecanicista mediante biomarcadores compañeros (LBP/sCD14, BA/FGF19–C4, IL-1β/GSDMD-N).
Conclusiones
A lo largo de la secuencia contigua de fallo de la barrera vascular epitelial e intestinal, afluencia molecular portal, amplificación TLR4–NF-κB y pirooptosis mediada por NLRP3, la evidencia actual delimita una arquitectura inmunometabólica de enfermedad para MASLD/MASH. La reorganización de las uniones epiteliales estrechas junto con la fuga de GVB reduce el umbral de activación de la inmunidad innata sinusoidal; las entradas derivadas del intestino —LPS, etanol endógeno y perfiles alterados de ácidos biliares— son detectadas por TLR4 hepático y propagadas a través de cascadas inflamatorias, convergiendo finalmente en la señalización de NLRP3–caspasa-1–IL-1β/IL-18 para provocar inflamación yfibrosis 26,27,33. Esta columna vertebral está acoplada jerárquicamente a circuitos BA–FXR/TGR5, SCFA–GPR41/43 y AMPK/Nrf2, permitiendo una sintonización bidireccional entre metabolismo e inmunidad 9,10. Dentro de este contexto biológico, los agentes naturales multi-objetivo permiten la intervención "coaxial" sobre barreras, nodos receptores-señales y umbrales metabólicos: la berberina, al inhibir la BSH bacteriana, remodelar la piscina de ácidos biliares y activar el eje ileal FXR–FGF15, ejerce un control de baja exposición sistémica sobre las lecturas inmunometabólicas intrahepáticas y reduce la RM-PDFF en un ensayo de fase 2 de su complejoiónico 12,13. Las terapias basadas en fórmula y los polisacáridos añaden señales traslacionales para la reparación de barreras y la restricción delinflamasoma 15,17. En conjunto, el eje intestino-hígado proporciona una base práctica para alinear mecanismos, biomarcadores y objetivos clínicos dentro de un único sistema de coordenadas.
Traducir este conocimiento en resultados requiere tres desarrollos clave. Primero, se necesita evidencia humana directa para el GVB y lecturas funcionales reproducibles. Las medidas compuestas que capturan la ruptura epitelial-endotelial coordinada—perfilado en serie temporal del ayuno y la LBP/sCD14 postprandial estandarizada vinculada a la dinámica FGF19/C4 de síntesis de ácidos biliares y retroalimentación ileal—incrustadas en la imagen longitudinal y el seguimiento clínico establecerían una cadena verificable de "barrera → exposición → órgano"26,27. En segundo lugar, deben hacerse explícitos los puentes desde la multi-ómica hasta los puntos finales escalonados: metagenómica/transcriptómica prospectiva con espectros de BA plasmático y fecal y SCFAs alineados con umbrales de imagen—≥30% de disminución relativa de MRI-PDFF a las 12–24 semanas como compuerta intermedia, y ERM (~3,3–3,5 kPa) con ELF (9,8/11,3) a las 24–48 semanas para fibrosis y estratificación pronóstica—de modo que las señales mecanicistas ocupen el mismo marco que las lecturas estructurales y de resultados102, 105. En tercer lugar, las hipótesis de estratificación deben estar preespecificadas y ser falsables: los individuos en el cuartil superior de ayuno o en LBP/sCD14 postprandial estandarizado deberían tener más probabilidades de lograr una reducción del ≥30% de PDFF con protección coordinada de barrera/GVB y normalización de microbiota–BA, acompañados de descensos concordantes de LBP/sCD14; aquellos con firmas elevadas de IL-1β o NLRP3/pirooptosis (GSDMD-N) deberían mostrar preferencialmente mejoras ELF/MRE cuando el bloqueo NLRP3–caspasa-1 se acople a la retunización AMPK/Nrf2; La dependencia de estrategias solo de barrera en la biología dominante en inflammasa implica la conocida desadaptación de la reducción de la esteatosis sin beneficiode fibrosis 1,7,102.
Metodológicamente, los diseños adaptativos multi-brazo, multietapa y basados en biomarcadores pueden aumentar la eficiencia y la reproducibilidad en programas multimecanismo. Una etapa inicial bloqueada por un descenso del ≥30% de MRI-PDFF puede clasificar brazos de baja probabilidad; una segunda etapa que incorpora ELF/MRE puede actualizar la aleatorización dentro de estratos dominantes en barrera, dominantes en inflammasomas y desregulados por BA–FXR; Una tercera etapa puede evaluar los resultados clínicos de imagen compuestos a 48 semanas. Los umbrales de puerta, las normas de parada y la asignación de α deben preregistrarse y reportarse de forma transparente; los ensayos de baja biomasa (por ejemplo, ADN 16S circulante o tisular) requieren controles negativos rigurosos y tuberías de descontaminación, y los marcadores Q deben garantizar la consistencia y trazabilidad en lotes entre bases de material, exposición in vivo y lecturas farmacodinámicas101,106. Integrar la columna vertebral barrera–inmunidad innata–metabólica con estratos preespecificados, puntos finales jerárquicos y ensayos adaptativos puede llevar las intervenciones multi-objetivo de la prueba de concepto a un beneficio duradero en poblaciones definidas, iluminando la heterogeneidad biológica en MASLD/MASH y proporcionando un marco operativo para una terapia combinada precisa y trasladable.
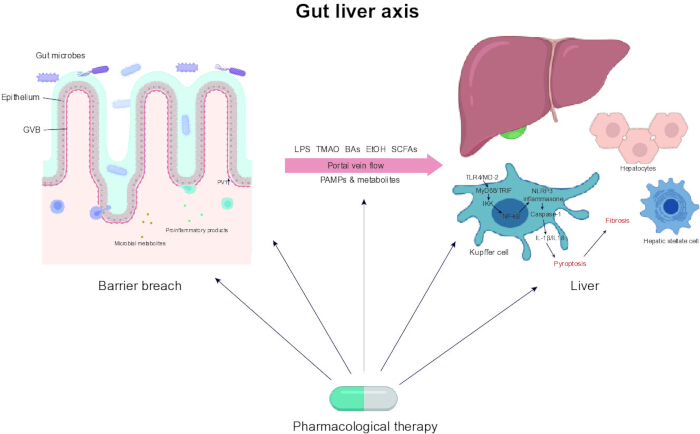
Figura 1: Resumen gráfico del eje intestino-hígado en MASLD/MASH. Este diagrama resume los principales mecanismos e implicaciones terapéuticas del eje intestino-hígado en la MASLD y su progresión hacia MASH. Ilustra cómo sustancias derivadas del intestino (por ejemplo, LPS, BS, SCFAs, TMAO) se translocan al hígado a través de la vena porta en caso de deterioro de la barrera intestinal, activando respuestas inmunitarias (por ejemplo, TLR4–NF-κB, inflamosoma NLRP3) que provocan inflamación, lesión hepatocitaria y fibrosis. El marco también destaca terapias multi-objetivo, sustentando una estrategia para la intervención estratificada guiada por biomarcadores en MASLD/MASH. Abreviaturas: MASLD = enfermedad hepática esteatótica asociada a disfunción metabólica; MASH = esteatohepatitis asociada a disfunción metabólica; LPS = lipopolisacárido; BA = ácidos biliares; SCFAs = ácidos grasos de cadena corta; TMAO = trimetilamina N-óxido; TLR4 = Receptor tipo Toll 4; NF-κB = nuclear factor kappa B; NLRP3 = proteína que contiene los dominios NOD, LRR y pirina 3. Por favor, haz clic aquí para ver una versión ampliada de esta figura.
Divulgaciones
Los autores no tienen conflictos de interés que revelar.
Agradecimientos
Este trabajo fue apoyado por el Programa Provincial de Ciencia y Tecnología de Medicina Tradicional China de Zhejiang (nº 2024ZL1181) y el Programa Municipal de Ciencia y Tecnología de Jinhua, Proyecto Clave para el Desarrollo Social (nº 2024-3-071).
Referencias
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).