Este protocolo proporciona una descripción completa de un método para el registro simultáneo de señales de calcio de neuronas y astrocitos en múltiples regiones cerebrales relacionadas con la memoria y demuestra su aplicación en un paradigma de aprendizaje y comportamiento de la memoria.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Un método de fotometría de fibra bicolor para registrar la actividad de las neuronas astrocitos en múltiples regiones cerebrales durante comportamientos de aprendizaje y memoria
En este artículo
Resumen
Resumen
El aprendizaje y la memoria dependen de forma crítica de la coordinación entre neuronas y astrocitos a lo largo de las regiones cerebrales distribuidas. Los astrocitos modulan la transmisión sináptica y la excitabilidad neuronal, contribuyendo así a la codificación y consolidación de la información dentro de circuitos relacionados con la memoria. Las correlaciones intra e interregionales entre astrocitos y neuronas son cruciales para comprender los trastornos de la memoria y cognitivos. Sin embargo, la monitorización simultánea de la actividad astrocítica y neuronal en múltiples regiones durante el comportamiento de la memoria sigue siendo técnicamente un reto. Aquí se presenta un método que facilita el registro simultáneo de estas señales de calcio de astrocitos y neuronas en varias regiones relacionadas con la memoria. Esta estrategia combina indicadores de calcio codificados genéticamente de doble color específicos para tipo celular (GECI), un sistema de fotometría de fibras multicanal y seguimiento conductual sincronizado para lograr un seguimiento en tiempo real de la actividad neuronal y astrocítica en la corteza prefrontal medial (mPFC), la región CA1 hipocampal y la corteza entorinal medial (MEC). Los resultados representativos demuestran dinámica coordinada del calcio entre regiones y tipos celulares durante la tarea de reconocimiento de objetos. Este método proporciona un marco experimental reproducible y eficiente para investigar las interacciones astrocito-neurona que subyacen a los procesos de aprendizaje y memoria.
Introducción
El aprendizaje y la memoria son procesos cognitivos fundamentales que implican adquirir, almacenar y recuperar información, cruciales para la formación de comportamientos adaptativos. Estos procesos sustentan una variedad de funciones complejas, como la navegación espacial, el reconocimiento de objetos, la asociación contextual y la toma de decisiones. Además, las enfermedades disfuncionales cognitivas, incluyendo la enfermedad de Alzheimer, las enfermedades cognitivas relacionadas con la edad y las lesiones cerebrales traumáticas, presentan anomalías en la formación de lamemoria 1,2,3. Por lo tanto, una comprensión integral de la base neuronal del aprendizaje y la memoria requiere esclarecer la interacción dinámica entre los diferentes tipos celulares. Esta interacción ocurre dentro y a través de estas regiones durante la codificación y recuperación de información.
Tradicionalmente, se pensaba que la formación de la memoria estaba determinada predominantemente por la actividad neuronal. Sin embargo, una amplia investigación ha demostrado que los astrocitos regulan significativamente la codificación, consolidación y recuperación de información. Lo logran modulando la transmisión sináptica, regulando la excitabilidad neuronal, liberando gliotransmisores y proporcionando soporte metabólico 4,5,6,7,8. Los astrocitos interactúan dinámicamente con las neuronas, y la comunicación bidireccional se denomina colectivamente la "red astrocito-neurona"9,10,11. Por lo tanto, comprender las interacciones coordinadas entre astrocitos y neuronas es crucial para comprender los mecanismos celulares y de red del aprendizaje y la memoria.
El aprendizaje y la memoria dependen de la integración dinámica de la información a través de múltiples regiones cerebrales. Las interacciones entre astrocitos y neuronas no se limitan a microcircuitos locales, sino que se extienden a lo largo de regiones cerebrales distribuidas implicadas en la memoria, incluyendo la corteza prefrontal medial (mPFC), la región CA1 del hipocampo y la corteza entorinal medial (MEC). El mPFC ha estado implicado en la consolidación de la memoria y la regulación de la memoria a largo plazo; CA1 es fundamental para la codificación y reactivación episódica de la memoria; y MEC sirve como centro para la integración de información espacial y multimodal, proporcionando entradas esenciales al circuitohipocampo-cortical 12,13,14,15,16. Las evidencias acumuladas sugieren que los astrocitos en estas regiones participan en dinámicas coordinadas entre regiones con las neuronas, desempeñando papeles clave en el flujo de información y las transiciones de estado durante el aprendizaje y lamemoria 17,18.
Aunque el reconocimiento de la función sinérgica de astrocitos y neuronas en el procesamiento de la memoria ha aumentado, sigue existiendo un desafío técnico significativo en monitorizar simultáneamente la actividad calcica tanto en astrocitos como en neuronas a través de múltiples regiones cerebrales asociadas a la memoria durante el comportamiento de animales en movimiento libre. La imagen de dos fotones ofrece una alta resolución espacial pero está limitada por la profundidad y la fijación de la cabeza19,20; La electrofisiología multicanal permite grabaciones de alta resolución temporal, pero carece de especificidad de tipo celular y no puede distinguir señales de calcio astrocíticas. Así, se desarrolló un método que permite registrar simultáneamente señales de calcio astrocíticas y neuronales a través de múltiples regiones cerebrales relacionadas con la memoria en ratones que se desplazan libremente. Los indicadores de calcio codificados genéticamente (GECI) informan de la dinámica intracelular de Ca2+ através de cambios conformacionales dependientes de Ca 2+ en CaM/M13 que modulan la fluorescencia de fluoróforos codificados genéticamente. Los enfoques GECI de doble color aprovechan indicadores espectralmente separables, como sensores de calcio verde y rojo, junto con promotores específicos de tipo celular para permitir el registro simultáneo de la actividad astrocítica y neuronal de Ca2+ dentro de la misma región cerebral. Combinando GECIs de doble color específicos para tipo celular (GCaMP6f y jRGECO1a) y un sistema de fotometría de fibra multicanal, se ha logrado la monitorización en tiempo real de la actividad calciosa en neuronas y astrocitos en mPFC, CA1 y MEC. Además, tomando como ejemplo la tarea de reconocimiento de objetos novedosos (NOR), se ha demostrado la dinámica coordinada del calcio entre regiones cerebrales y tipos celulares en tareas de aprendizaje. Este método es un protocolo reproducible, fiable y escalable para investigar la actividad del conjunto astrocito-neurona en las regiones cerebrales durante el aprendizaje y la memoria.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Protocolo
Todos los experimentos con animales fueron aprobados por el Comité de Cuidado y Uso Animal de la Tercera Universidad Médica Militar (Aprobación de Ética Animal nº: AMUWEC20230126) y se realizaron de acuerdo con la Guía de la Tercera Universidad Médica Militar para el Cuidado y Uso de Animales de Laboratorio para garantizar el trato ético de los animales. Los reactivos y el equipo utilizado se enumeran en la Tabla de Materiales.
Para garantizar la seguridad del experimentador, todos los procedimientos experimentales con animales vivos y vectores virales se realizaron con ropa protectora, guantes estériles y mascarilla. Todos los instrumentos se esterilizaron a fondo antes de su uso, y las superficies experimentales se limpiaron con etanol al 70% antes y después de cada experimento. Los materiales restantes se eliminaron conforme a las normativas institucionales de eliminación de residuos. Todos los reactivos y equipos se manipularon para evitar el contacto directo con la piel o los ojos.
1. Preparación animal y manejo viral
- Ratones C57BL/6 de 4 meses (ambos sexos) bajo un ciclo de 12 horas luz/oscuridad con acceso improvisado a comida y agua.
- Descongelar alicuotas de AAV5-GfaABC1D-GCaMP6f o AAV9-hSyn-jRGECO1a sobre hielo a 0–4 °C justo antes del uso.
- Conecta una micropipeta de vidrio estirado (diámetro de punta 15–25 μm) a una jeringuilla y móntala en una bomba de microinyección.
- Coloca al ratón sobre una plataforma quirúrgica estéril y desinfecta todos los instrumentos con etanol al 70%.
2. Inyección viral estereotáxica
NOTA: En este estudio se utilizó una estrategia de inyección viral en dos pasos. Bajo las condiciones experimentales actuales, esta estrategia puede implementarse de forma fiable y estable, y el patrón de expresión resultante es consistente con el perfil de promotor específico de cada tipo celular esperado.
- Primera cirugía: AAV5-GfaABC1D-GCaMP6f (Título: 7 ×10 12 vg/mL) para astrocitos
- Inducir anestesia con isoflurano al 3% en una cámara y luego mantener la anestesia con isoflurano entre 0,8% y 1,2 % a través de un cono nasal (siguiendo protocolos institucionalmente aprobados).
- Mantenga la temperatura corporal entre 37 y 38 °C usando una almohadilla térmica y aplique pomada oftálmica para evitar la desecación corneal.
- Elimina el vello del cuero cabelludo y desinfecta la piel a fondo. Haz una incisión en la línea media para revelar la superficie del cráneo.
- Coloca la cabeza en el instrumento estereotáxico, ajusta las suturas bregma y lambda al mismo plano horizontal, y ajusta aún más el marco para asegurar que los puntos laterales de 2 mm al bregma en ambos lados estén nivelados.
- Identifica coordenadas estereotaxicas usando un atlas cerebral de ratón, con bregma como punto de referencia.
mPFC: AP +1,8 mm, ML +0,3 mm, DV −3,0 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,2 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −2,0 mm - Perfora una craneotomía circular de 0,6 mm (diámetro) sobre cada sitio, mantén la duramadre húmeda e intacta tras abrir el cráneo.
- Introduce el virus GCaMP6f en la jeringuilla a 5 nL/s e instala la jeringuilla en el brazo estereotáxico.
- Baja la pipeta lentamente, inyecta 150 nL a 0,6 nL/s, mantén la pila durante 8 minutos y luego retira a 0,1 mm/s. Repite este procedimiento para todas las regiones.
- Sella la incisión con adhesivo de tejido y deja 2 semanas para la expresión viral.
- Cirugía secundaria: AAV9-hSyn-jRGECO1a (Título: 1 × 10¹³ vg/mL) para neuronas.
NOTA: La cirugía se realizó 14 días después de la primera inyección del virus.- Inducir y mantener la anestesia como se ha descrito anteriormente (Paso 2.1.1).
- Mantén la temperatura corporal y protege los ojos.
- Reabre el cuero cabelludo a lo largo de la línea media y nivela el cráneo.
NOTA: El cráneo se niveló alineando el bregma y el lambda en el mismo plano horizontal. - Residuos de tejido transparentes en los mismos lugares que las ventanas de la craneotomía de la primera cirugía, dejando la dura madre intacta.
- Ajustar las coordenadas usando bregma como punto de referencia, realizar inyecciones estrictamente en las mismas coordenadas y profundidades descritas anteriormente.
- Rellena el virus jRGECO1a a 5 nL/s e instala la jeringuilla.
- Inyecta 150 nL a 0,6 nL/s, mantén la dosis durante 8 minutos y retira despacio. Repite este procedimiento en todas las regiones y deja 3 semanas para la expresión viral.
3. Implantación de sonda de fotometría de fibra multisitio
NOTA: Actúa inmediatamente después de la inyección de jRGECO1a.
- Instala la virula de fibra óptica en un soporte estereotaxico.
- Coloca la fibra (1,25 mm de férula, núcleo de 200 μm, NA 0,39) 100–150 μm por encima de la profundidad de inyección viral:
mPFC: AP +1,8 mm, ML +0,3 mm, DV −2,9 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,1 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −1,9 mm - Sella la craneotomía con adhesivo de tejido y asegura la virula con cemento dental.
4. Grabación de fotometría de fibra multicanal
NOTA: Para asegurar una expresión estable y completa de los dos indicadores de calcio, se realizó fotometría de fibra óptica multicanal tres semanas después de la segunda inyección viral para su registro.
- Acostumbra a los ratones al sistema de fibras y arena una vez al día durante tres días.
- Tras 3 semanas de expresión viral, anestesiar brevemente al ratón con isoflurano al 3%.
- Conecta un extremo de la fibra óptica agrupada al sistema de adquisición de fotometría de fibra.
- Ajusta la luz de excitación a dos longitudes de onda: 470 nm y 560 nm.
- Ajusta la frecuencia de adquisición a 30 Hz.
- Conecta las tres ramas en el otro extremo de la fibra agrupada a tres regiones cerebrales: Canal 1 a mPFC, Canal 2 a CA1, Canal 3 a MEC.
- Coloca a los ratones en un espacio abierto con una longitud lateral de 50 cm y permite una exploración libre.
- Después de 10 minutos, desconecta la fibra y lleva los ratones de vuelta a sus jaulas de casa.
- Grabación de fotometría de fibra durante la tarea de Reconocimiento de Objetos Novedosos
NOTA: Limpia la plataforma y los objetos con etanol al 75% antes de cada prueba.- Coloca dos objetos idénticos en cuadrantes diagonalmente opuestos.
- Conecta el haz de fibras en estado de anestesia ligera.
- Deja que los ratones exploren objetos durante 10 minutos y luego devuélvelos a las jaulas de casa sin quitar la fibra.
- Realizar el registro de fotometría de fibra durante la novedosa prueba de reconocimiento de objetos en ratones.
NOTA: Excluir el ensayo si los artefactos de movimiento son excesivos para la estabilidad de los datos de registro.- Ajustar los láseres de estimulación:
470 nm para GCaMP6f (astrocitos)
560 nm para jRGECO1a (neuronas) - Grabar señales de calcio a 30 Hz, sincronizadas con seguimiento de vídeo a 30 Hz. Colocar un diodo láser dentro del fotograma de vídeo (fuera del campo visual del ratón) al iniciar la adquisición para servir como marcador temporal.
- Diez minutos después de la fase de aprendizaje, sustituye un objeto por otro nuevo y vuelve a colocar el ratón durante 10 minutos de exploración mientras grabas.
- Desconecta la fibra con una férula cerámica y lleva los ratones de vuelta a las jaulas de casa.
- Ajustar los láseres de estimulación:
5. Procesamiento y análisis de datos
NOTA: Clasificar un transitorio de Ca2⁺ en grabaciones de fotometría de fibra como una señal genuina solo si su amplitud supera tres veces la desviación estándar de la banda de ruido 21,22,23. Protocolo 24 de Prueba de Reconocimiento de Objetos (NORT)24:D efine las interacciones de objetos como eventos en los que los ratones hacen contacto físico con el objeto, ya sea pinchándolo o oliéndolo con la nariz. Para la cuantificación de señales, se define la línea base como la señal media durante la ventana de -2 a -1 s (relativa al inicio de la interacción en t=0). Configura la ventana de análisis peri-evento para que abarque desde 2 s antes hasta 4 s después del inicio de cada interacción con el objeto, siguiendo los protocolos establecidos.
- Importar trazas de fluorescencia en el software de análisis.
NOTA: El procesamiento de señales de fluorescencia se realizó utilizando software de análisis propietario siguiendo los flujos de trabajo estándar de fotometría de fibra. El software en sí no es de código abierto y no puede compartirse. Para consideraciones metodológicas generales relacionadas con el procesamiento de señales de fotometría de fibra, véanse los informes metodológicosrecientes 25. - Realiza la corrección de la línea base y alinea las señales de calcio con el inicio de la tarea NOR usando vídeo sincronizado.
- Convertir ΔF/F a puntuaciones Z para comparaciones interregionales y de doblecolor 9:
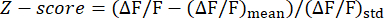
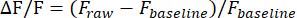
NOTA:
(ΔF/F)media: media de ΔF/F.
(ΔF/F)STD: desviación estándar de ΔF/F.
F raw: intensidad de fluorescencia bruta.
Línea base F: intensidad de fluorescencia al nivel base (media sobre el periodo base predefinido). - Cuantifique métricas como el área bajo la curva (AUC) para las respuestas de calcio de astrocitos y neuronas durante la exploración de objetos nuevos frente a objetos familiares.
6. Verificación histológica tras el registro
- Anestesiar al ratón con una sobredosis de pentobarbital hasta confirmar la pérdida total de reflejos.
- Realizar perfusión transcárdica con solución fisiológica normal, seguida de paraformaldehído (PFA) al 4%.
- Disecciona cuidadosamente el cerebro y ponlo post-fijación en PFA al 4% a 4 °C durante 12–24 horas.
- Transfiere el cerebro al 30% de sacarosa en PBS a 4 °C hasta que el tejido se hunda para la crioprotección.
- Inmersa el cerebro en un compuesto a temperatura óptima de corte, congélalo y corta secciones coronales (40 μm de grosor) usando un criostato.
- Realizar tinción por inmunofluorescencia para verificar la expresión viral y la colocación de las fibras.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Resultados
Según el protocolo descrito anteriormente, se realizó una grabación de fibra multisitio a doble color dirigida a los mPFC, CA1 y MEC de ratones C57 de 4 meses. En el presente estudio, implementamos una estrategia de inyección viral en dos pasos para introducir secuencialmente los dos indicadores. Bajo nuestras condiciones experimentales, esta estrategia puede implementarse de forma fiable y estable, y el patrón de expresión resultante es coherente con el perfil de promotor específico de ...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
En este estudio, se desarrolló un método para el registro simultáneo de la actividad calcio astrocítica y neuronal en múltiples áreas cerebrales relevantes para la memoria de ratones durante comportamientos de aprendizaje y relacionados con la memoria. A diferencia de la imagen de una sola región28 o las técnicas electrofisiológicas, la grabación síncrona multirregión captura dinámicas coordinadas a través de redes de memoria distribuida, demostrando así ser una h...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
No se declaran conflictos de interés, financieros ni de otro tipo, por parte de los autores.
Agradecimientos
La Sra. Jia Lou es reconocida por su asistencia técnica, y Sai Te Xin Si (herramienta de IA) es reconocida por su ayuda en la edición de idiomas. Este trabajo recibió apoyo de la Fundación Nacional de Ciencias Naturales de China (beca nº 82371485, 82588301, 32400932) y de la Fundación de Ciencias Naturales de Chongqing, China (subvención nº CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | Se conecta a micropipeta para inyección viral |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | Expresión de GCaMP6f específica de astrocitos |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | Indicador de calcio neuroespecífico desplazado al rojo |
| Ungüento para ojos y nariz Bepanthen | Bepanthen | MA0008 | Previene el secado corneal |
| Fibras ópticas agrupadas con fundas cerámicas | Inper | BFO-1x3-W1.25 | Conecta las fibras implantadas al sistema de fotometría |
| Cámara | Mind Vision | MV-SUA502C-T | Videos de comportamiento sincronizados con señales de calcio |
| Cimento dental | NISSIN | Super-Bond C&B | Usado para asegurar las ferrules al cráneo |
| Soporte de ferrule | Inper | SCH-1.25 | Sostenga la ferrule cerámica de forma segura durante la implantación |
| Vaporizador de isoflurano & sistema de anestesia | RWD Life Science | R510-29 | Para inducción y mantenimiento de la anestesia |
| Sistema de fotometría de fibra multicanal | RWD Life Science | R821 | Para grabación de doble color |
| Software OFRS | RWD Life Science | Analiza las señales de calcio grabadas | |
| Fibras ópticas | RWD Life Science | R-FOC-BL200C-39N | Implantadas en la región cerebral diana |
| Instrumento estereotáxico | RWD Life Science | 68801 | Usado para inyección viral precisa e implantación de fibras |
| Bomba de jeringa | KD Scientific | 788130 | Entrega el virus a tasas controladas |
| Pegamento para tejidos | 3M Animal Care Products | 1469SB Vetbond | Para el cierre de incisiones |
Referencias
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
