Este protocolo describe un modelo de ratón de lesión pulmonar asociada a la enfermedad por coronavirus 2019 inducida por la administración intranasal combinada del síndrome respiratorio agudo severo coronavirus 2 y lipopolisacárido. El modelo permite investigar las respuestas inflamatorias pulmonares, las respuestas alteradas de interferón de tipo I y posibles intervenciones terapéuticas.
Artículo de método
Un modelo murino de lesión pulmonar asociada a la enfermedad por coronavirus 2019 inducida por el coronavirus 2 del síndrome respiratorio agudo grave y lipopolisacárido
45 visualizaciones
⸱
11 de septiembre de 2026
* These authors contributed equally
En este artículo
Resumen
Resumen
A pesar de la implementación generalizada de vacunas y terapias antivirales, la infección por SARS-CoV-2 continúa causando una morbilidad y mortalidad significativas entre las poblaciones vulnerables, lo que subraya la necesidad urgente de modelos experimentales confiables para investigar la patogénesis de la COVID-19, esclarecer los mecanismos de acción de los fármacos y evaluar estrategias terapéuticas potenciales. La infección por SARS-CoV-2 puede provocar lesión pulmonar grave, caracterizada por respuestas inflamatorias excesivas e inmunidad antiviral mediada por interferón de tipo I (IFN-I) deteriorada; sin embargo, los modelos animales actuales siguen siendo limitados para reproducir las respuestas inmuno-inflamatorias desreguladas asociadas a la COVID-19. Se desarrolló un modelo murino inducido por SARS-CoV-2 y LPS de lesión pulmonar asociada a la COVID-19 para reproducir características inmunopatológicas clave de esta enfermedad. Este modelo induce características patológicas prominentes en el tejido pulmonar, incluyendo infiltración de células inflamatorias, destrucción estructural alveolar y expresión elevada de citocinas proinflamatorias, acompañadas por respuestas deficientes de IFN-I. Este estudio describe detalladamente los procedimientos utilizados para establecer el modelo murino de lesión pulmonar inducido por SARS-CoV-2 y LPS, y caracteriza sistemáticamente el modelo mediante análisis de alteraciones histopatológicas pulmonares, carga viral, citocinas inflamatorias y niveles de IFN-I. Este modelo ofrece una plataforma experimental para investigar los mecanismos inmuno-inflamatorios subyacentes a la lesión pulmonar asociada a la COVID-19 y los procesos implicados en la reparación del tejido pulmonar, además de proporcionar una base para evaluar estrategias terapéuticas destinadas a aliviar la desregulación inmuno-inflamatoria y promover la recuperación de la función pulmonar.
Introducción
Desde su aparición a finales de 2019, el SARS-CoV-2 ha provocado un desafío global de salud pública, y la continua evolución viral sigue planteando retos para las vacunas y estrategias terapéuticas existentes1,2,3. Por lo tanto, es fundamental seguir investigando la lesión pulmonar asociada a la COVID-19 para elucidar los mecanismos de la enfermedad y avanzar en las estrategias terapéuticas.
La infección por SARS-CoV-2 puede causar lesión pulmonar grave y puede incluso progresar hasta el síndrome de dificultad respiratoria aguda (SDRA) y el síndrome de disfunción de múltiples órganos4,5. Un número creciente de evidencias sugiere que la patogénesis de la lesión pulmonar asociada a la COVID-19 es altamente compleja, caracterizándose principalmente por la desregulación de las respuestas inmunitarias e inflamatorias6,7,8,9. Por un lado, la infección por SARS-CoV-2 puede inducir una respuesta inflamatoria excesiva, provocando la liberación masiva de citocinas proinflamatorias como la interleucina-6 (IL-6), la interleucina-1β (IL-1β) y el factor de necrosis tumoral-α (TNF-α), desencadenando así una llamada «tormenta de citocinas»10,11, que se considera un factor principal en la lesión pulmonar y la progresión de la enfermedad. Por otro lado, en las primeras etapas de la infección, el SARS-CoV-2 puede suprimir la respuesta del huésped al IFN-I mediante múltiples mecanismos, lo que resulta en una inmunidad antiviral mediada por IFN-I deteriorada12,13,14. Por consiguiente, una respuesta retardada de interferón acompañada de niveles elevados de citocinas proinflamatorias se considera una característica distintiva de la COVID-196,15.
Los modelos animales disponibles actualmente para la COVID-19 dependen en gran medida de ratones transgénicos para hACE2, cepas virales adaptadas a ratones u otras especies como hurones y primates no humanos16,17. Sin embargo, los modelos convencionales de infección por SARS-CoV-2 en ratones a menudo no logran reproducir completamente las características hiperinflamatorias de la COVID-1918,19,20. El LPS, un agonista del TLR4, induce respuestas inflamatorias intensas y se utiliza ampliamente en modelos de lesión pulmonar aguda21. Por lo tanto, el modelo inducido por SARS-CoV-2 y LPS descrito en este estudio está diseñado para investigaciones centradas en la lesión pulmonar asociada a la COVID-19, particularmente en los mecanismos subyacentes a la activación inflamatoria excesiva y a las respuestas inmunitarias antivirales alteradas. En comparación con los modelos que solo utilizan SARS-CoV-2, este enfoque resalta las características inmuno-inflamatorias manteniendo el contexto de la infección viral. Este modelo tiene un potencial considerable para investigar los mecanismos inmuno-inflamatorios, más que para modelar la transmisión viral o el curso natural completo de la infección por SARS-CoV-2.
Este protocolo describe el establecimiento procedimental de un modelo murino de lesión pulmonar asociada a COVID-19 inducida por SARS-CoV-2 y LPS. Dadas las limitaciones de los modelos existentes para reproducir la desregulación inmuno-inflamatoria asociada a la COVID-19, este enfoque proporciona una plataforma práctica para estudiar los mecanismos de la enfermedad y evaluar posibles estrategias terapéuticas. El modelo se evaluó sistemáticamente mediante histopatología pulmonar, carga viral, citocinas inflamatorias y respuestas de IFN-I.
Protocolo
Este estudio estableció un modelo de ratón de lesión pulmonar asociada a la COVID-19 mediante la instilación intranasal de SARS-CoV-2 y LPS, proporcionando una alternativa estable y de bajo costo frente a los modelos de ratón transgénicos. El protocolo experimental fue aprobado por el Centro para el Control y la Prevención de Enfermedades de Sichuan y obtuvo la aprobación ética para el uso de animales [CDC de Sichuan (Aprobación Ética para Animales) N.º 005 (2025)]. Todos los procedimientos se realizaron estrictamente de acuerdo con las pautas pertinentes y las regulaciones de bioseguridad.
Se proporciona información detallada sobre los reactivos y equipos principales en la Tabla de Materiales.
1. Diseño del protocolo de estudio
- Asignar aleatoriamente ratones BALB/c al grupo control o al grupo modelo.
- Administrar SARS-CoV-2 por vía intranasal a los ratones del grupo modelo el día 0.
- Administrar LPS por vía intranasal a los ratones del grupo modelo el día 2.
- Administrar un volumen igual de solución salina normal por vía intranasal a los ratones control en los puntos temporales correspondientes.
- Sacrificar a todos los ratones el día 3 después de la infección con SARS-CoV-2 y recolectar el tejido pulmonar para la validación del modelo.
NOTA: El flujo experimental se ilustra en Figure 1A.
2. Preparación
- Preparación de los animales
- Utilice ratones hembra BALB/c libres de patógenos específicos (SPF) de 6 a 8 meses de edad y con un peso aproximado de 25 a 30 g.
- Asigne aleatoriamente a los ratones a un grupo control o a un grupo modelo utilizando una tabla de números aleatorios, con cuatro animales por grupo.
- Mantenga a los ratones en condiciones estándar de laboratorio con acceso libre a alimento y agua.
NOTA: Estudios previos han demostrado que los ratones de edad avanzada son más susceptibles a la infección intranasal por SARS-CoV-2 que los ratones más jóvenes18,22. Por lo tanto, en este estudio se seleccionaron ratones BALB/c de edad avanzada para facilitar el establecimiento de un modelo de lesión pulmonar asociada al SARS-CoV-2. - Inocule a cada ratón por vía intranasal con 100 µL de suspensión viral, lo que corresponde a una dosis infecciosa final de 4,5 x 10⁵ TCID₅₀ por ratón.
NOTA: El SARS-CoV-2 fue proporcionado por el Centro de Control y Prevención de Enfermedades de Sichuan. La cepa utilizada en este estudio fue la variante Ómicron del SARS-CoV-2, con un título de stock viral de 4,5 x 10⁶ TCID₅₀/mL.
ADVERTENCIA: Dado que el SARS-CoV-2 es un microorganismo altamente patógeno, realice todos los procedimientos relacionados con el virus en una instalación de nivel de bioseguridad para animales 3 (ABSL-3). Optimice la dosis infecciosa según experimentos preliminares al utilizar diferentes variantes virales o modelos animales.
- Preparación del stock de trabajo
- Preparación de la solución stock de LPS: Pese 3 mg de polvo de LPS y disuélvalos en 1 mL de solución salina normal. Mezcle suavemente o vortexee continuamente hasta que se disuelva completamente, obteniendo así una solución stock con una concentración de 3 mg/mL. Antes de la administración, diluya adicionalmente la solución stock con solución salina normal hasta la concentración de trabajo deseada, según el peso corporal de los ratones.
- Preparación de la solución anestésica: Reconstituya el polvo con agua estéril para inyección proporcionada en el paquete de Zoletil, preparando una solución con la relación masa/volumen requerida para su uso posterior.
- Preparación de la solución viral de trabajo: Derrita lentamente 1 mL de suspensión viral de SARS-CoV-2 sobre hielo en una cabina de seguridad biológica antes de su uso.
NOTA: Siga las instrucciones de los respectivos fabricantes al preparar y utilizar todas las soluciones de trabajo.
3. Administración intranasal en ratones
- Pese cada ratón antes de la administración y registre el peso corporal.
- Calcule las dosis de Zoletil y LPS en función del peso corporal de cada ratón.
- Prepare las soluciones de trabajo correspondientes y aspire los volúmenes requeridos utilizando una jeringa adecuada para la administración posterior.
- Restricción del ratón: Sujete suavemente al ratón por la nuca con el pulgar y el índice de la mano izquierda, agarrando la piel detrás de las orejas y el cuello.
- Coloque al animal en la palma de la mano mientras utiliza el dedo anular y el meñique para sujetar la espalda y la cola. Coloque al ratón en posición supina con el abdomen completamente expuesto y el cuerpo estabilizado.
- Desinfección: Desinfecte el sitio de inyección abdominal con etanol al 75 % utilizando un hisopo estéril.
- Anestesia: Introduzca la aguja de la jeringa que contiene el Zoletil (25 mg/kg) aproximadamente 0,5 cm lateral a la línea media del abdomen inferior. Avance la aguja en un ángulo de 45° hacia la cavidad peritoneal hasta una profundidad de aproximadamente 2–3 mm después de atravesar la piel. Aspire para asegurarse de la ausencia de sangre y luego administre lentamente el anestésico.
NOTA: Optimice la dosis de anestésico según experimentos piloto para garantizar una anestesia adecuada y minimizar la mortalidad. Evite punciones repetidas para minimizar el daño tisular. - Confirmación de la anestesia: Confirme el estado anestesiado observando una respiración estable y regular, sin signos de disnea ni dificultad respiratoria.
- Instilación intranasal de SARS-CoV-2 (día 0): Administre lentamente 100 µL de suspensión viral de SARS-CoV-2 (50 µL por cada fosa nasal) gota a gota sobre las narinas externas utilizando una micropipeta o jeringa durante un ciclo respiratorio estable y al comienzo de la inspiración.
- Alterne las fosas nasales para facilitar una inhalación uniforme. Trate a los ratones control con un volumen igual de solución salina normal siguiendo el mismo procedimiento.
NOTA: Administre la solución gota a gota, asegurándose de que cada gota sea inhalada dentro de la cavidad nasal antes de aplicar la siguiente, hasta alcanzar el volumen objetivo. - Manejo posterior a la administración: Mantenga la cabeza del ratón ligeramente elevada durante aproximadamente 30–60 s después de la instilación intranasal para facilitar la llegada de la solución al tracto respiratorio inferior. Devuelva a los ratones a sus jaulas una vez observados signos de recuperación de la anestesia y monitórelos hasta que se restablezca la conciencia completa.
- Registro y monitoreo: Registre el volumen administrado y el número de identificación de cada ratón. Monitoree continuamente a los animales durante todo el período experimental en cuanto al estado de supervivencia y la condición fisiológica general.
- Instilación intranasal de LPS (día 2): Administre LPS a los ratones el día 2 posterior a la infección por SARS-CoV-2. Realice la administración intranasal de LPS (5 mg/kg) siguiendo el mismo protocolo utilizado para la administración de SARS-CoV-2. Administre un volumen igual de solución salina normal a los ratones control siguiendo el mismo procedimiento.
NOTA: En este paso, LPS y solución salina normal se administraron siguiendo el mismo procedimiento que la inoculación de SARS-CoV-2, incluyendo anestesia y administración intranasal.
4. Disección del ratón y recolección del tejido pulmonar
- Sacrificar a los ratones el día 3 posterior a la infección por SARS-CoV-2 para la recolección de tejidos. Anestesiar primero a los animales y luego sacrificarlos mediante dislocación cervical. Procesar los ratones de control utilizando el mismo procedimiento.
NOTA: Para procedimientos detallados sobre la dislocación cervical, consulte el Archivo Suplementario 1. - Fijar al ratón sacrificado en posición supina sobre una tabla de disección, con las regiones abdominal y torácica completamente expuestas. Humedecer el pelaje abdominal con etanol al 75 % para minimizar la contaminación.
- Utilizar tijeras estériles para cortar cuidadosamente el esternón siguiendo los márgenes costales bilaterales y abrir gradualmente la cavidad torácica. Usar pinzas para retraer suavemente los tejidos y diseccionar los pulmones paso a paso desde las estructuras torácicas circundantes, minimizando así la lesión mecánica al tejido pulmonar.
NOTA: Controlar cuidadosamente la orientación de las puntas de las tijeras durante el corte para evitar dañar el corazón, los pulmones y las estructuras vasculares principales. - Colocar inmediatamente los tejidos pulmonares extirpados en PBS preenfriado o solución salina normal y enjuagarlos suavemente 2–3 veces para eliminar restos de sangre y detritos. Secar cuidadosamente el exceso de líquido superficial utilizando papel filtro libre de pelusas y evitar la compresión para prevenir daños estructurales al tejido.
- Pesar inmediatamente los tejidos pulmonares procesados utilizando una balanza electrónica y registrar las mediciones.
- Extirpar el lóbulo caudal derecho e inmediatamente fijarlo en paraformaldehído al 4 %, utilizando un volumen diez veces mayor que el del tejido, para análisis histopatológico posterior.
ADVERTENCIA: El paraformaldehído es tóxico; manipúlelo de acuerdo con las normas institucionales de seguridad. - Recolectar los tejidos pulmonares restantes, distribuirlos en alícuotas en viales criogénicos, congelarlos rápidamente en nitrógeno líquido y almacenarlos a −80 °C para su conservación. Asignar el lóbulo craneal derecho, el lóbulo medio derecho y el lóbulo accesorio para la detección de la carga viral de SARS-CoV-2 y de citocinas proinflamatorias, y reservar el pulmón izquierdo para análisis mediante ELISA.
ADVERTENCIA: El nitrógeno líquido es extremadamente frío; usar guantes criogénicos y gafas de seguridad adecuadas al manipularlo para prevenir quemaduras por frío o congelación. - Limpie y esterilice todos los instrumentos minuciosamente según los procedimientos estándar tras completar la disección. Deseche los cadáveres animales y los desechos biológicos conforme a las directrices institucionales y regulatorias para experimentos con animales.
5. Tinción con hematoxilina-eosina (HE)23
- Fije tejidos pulmonares frescos en paraformaldehído al 4 % a temperatura ambiente durante 24 h.
NOTA: Controle cuidadosamente el tiempo de fijación. Evite una fijación insuficiente, que podría provocar una preservación incompleta del tejido, y una fijación prolongada, que podría causar un entrecruzamiento excesivo de proteínas y afectar la calidad de la tinción. - Procese los tejidos fijados utilizando un procesador de tejidos automático para deshidratación progresiva, aclaramiento e infiltración con parafina.
NOTA: El protocolo para el procesador de tejidos automático se proporciona en el Archivo Suplementario 2. - Coloque los tejidos infiltrados con parafina en moldes de inclusión. Añada parafina fundida y oriente cuidadosamente el tejido.
- Transfiera los moldes a una placa fría para su solidificación. Retire los bloques de parafina de los moldes tras su endurecimiento completo.
- Monte los bloques de parafina en un microtomo y ajuste la superficie de corte para que sea paralela a la cuchilla. Obtenga cortes seriados con un grosor aproximado de 3–5 µm.
- Transfiera inmediatamente los cortes a un baño de agua a aproximadamente 45 °C para flotación, permitiendo su expansión completa.
- Recupere los cortes utilizando portaobjetos, sumergiendo verticalmente un extremo del portaobjetos en el agua, y use pinzas para ayudar a una correcta adhesión de los cortes sobre la superficie del portaobjetos.
- Coloque los portaobjetos en un secador de portaobjetos a 65 °C durante aproximadamente 1 h para mejorar la adherencia del tejido.
NOTA: Ajuste el tiempo de secado según el tipo de tejido, el grosor de los cortes y las condiciones del equipo. Evite el sobrecalentamiento para prevenir daños en el tejido. - Realice la tinción con hematoxilina y eosina (HE) en los cortes secos utilizando un tinción automática.
NOTA: El protocolo para el tinción automática se proporciona en el Archivo Suplementario 3. - Retire los cortes teñidos y séquelos al aire. Aplique una gota de medio de montaje neutro y cubra con una laminilla. Examine los cortes al microscopio óptico tras la solidificación del medio de montaje.
6. Expresión de la carga viral del SARS-CoV-2 y de citocinas proinflamatorias en el tejido pulmonar
- Homogeneización del tejido pulmonar
- Prepare tubos de homogeneización libres de RNasa añadiendo 4–5 esferas de acero inoxidable (3 mm de diámetro) y 900 µL de tampón de lisis previamente enfriado como medio de homogeneización.
NOTA: Ajuste el volumen del tampón de lisis según el peso del tejido, generalmente en una proporción de aproximadamente 9 mL por 1 g de tejido. - Pese aproximadamente 50 mg de tejido pulmonar, píquelo finamente y transfiéralo al tubo de homogeneización.
- Homogenice el tejido utilizando un molinillo de tejidos (60 Hz, 60 s, durante 2–3 ciclos con intervalos de 10 s entre ciclos).
NOTA: Optimice los parámetros de homogeneización según el instrumento y el tipo de tejido. - Inspeccione la muestra tras la homogeneización para asegurar una ruptura completa. Repita el proceso de homogeneización si quedan fragmentos visibles de tejido hasta obtener un lisado uniforme.
- Prepare tubos de homogeneización libres de RNasa añadiendo 4–5 esferas de acero inoxidable (3 mm de diámetro) y 900 µL de tampón de lisis previamente enfriado como medio de homogeneización.
- Extracción de ARN total a partir de tejido pulmonar mediante columna
NOTA: Extraiga ARN total del tejido pulmonar utilizando un método de purificación basado en columnas según las instrucciones del fabricante. Realice métodos alternativos de extracción de ARN según los manuales correspondientes del producto cuando sea aplicable.- Transfiera el homogenizado a un nuevo tubo microcentrífugo de 2 mL libre de RNasa. Añada 100 µL de solución eliminadora de ADN genómico. Cierre bien la tapa del tubo y agite vigorosamente durante 15–20 s.
- Abra brevemente la tapa, añada 180 µL de cloroformo y mezcle completamente mediante vortex durante 15 s.
ADVERTENCIA: El cloroformo es volátil y tóxico; manipúlelo en un área bien ventilada o en una campana extractora química y use equipo de protección personal adecuado para evitar inhalación y contacto con la piel. - Incube la muestra a temperatura ambiente durante 2 min y luego centrifugue a 12.000 x g durante 15 min a 4 °C.
- Transfiera cuidadosamente la fase acuosa superior a un tubo nuevo. Añada un volumen igual de etanol al 70% y mezcle completamente mediante vortex.
NOTA: Evite perturbar la interfase y la capa orgánica al recoger la fase acuosa para garantizar la pureza del ARN. Continúe directamente con el siguiente paso tras añadir el etanol al 70%, sin centrifugación. - Transfiera la mezcla a una columna de centrifugación y centrifugue a 8.000 x g durante 15 s. Deseche el flujo pasante.
- Añada 700 µL de tampón de lavado a la columna de centrifugación y centrifugue a 8.000 x g durante 15 s. Deseche el flujo pasante.
- Añada 500 µL de tampón de lavado a la columna de centrifugación y centrifugue a 8.000 x g durante 15 s. Repita este paso de lavado una vez más.
- Transfiera la columna de centrifugación a un nuevo tubo colector y centrifugue a 12.000 x g durante 1 min para eliminar el tampón de lavado residual.
- Coloque la columna de centrifugación en un nuevo tubo microcentrífugo de 1,5 mL libre de RNasa. Añada 30 µL de agua libre de RNasa directamente al centro de la membrana y centrifugue a 8.000 x g durante 1 min para eluir el ARN.
NOTA: Ajuste el volumen de agua libre de RNasa entre 30–50 µL según las aplicaciones posteriores. Utilice un volumen de elución menor cuando se requiera una concentración más alta de ARN.
- Detección de la carga viral de SARS-CoV-2 mediante PCR digital de transcripción inversa (RT-dPCR)
NOTA: Se empleó un ensayo de RT-dPCR en un solo paso para la cuantificación absoluta del ARN de SARS-CoV-2. Se utilizaron conjuntos específicos de cebadores y sondas dirigidos al gen de la nucleocápside (N) para determinar el número de copias de ARN viral.- Descongele las muestras de ARN y los reactivos sobre hielo.
- Prepare la mezcla de reacción de RT-dPCR según las instrucciones del fabricante.
- Combine 20 µL de mezcla de reacción de RT-dPCR con 20 µL de molde de ARN. Mezcle brevemente mediante vortex, centrifugue brevemente y mantenga la mezcla sobre hielo.
- Cargue la mezcla de reacción de 40 µL en los pozos del chip de PCR digital y selle el chip según el protocolo del instrumento.
- Realice la amplificación utilizando las siguientes condiciones de ciclado térmico: 50 °C durante 40 min (1 ciclo), 95 °C durante 2 min (1 ciclo), seguido de 40 ciclos de 95 °C durante 15 s y 57 °C durante 60 s. Configure los canales de detección en VERDE (250 ms) y ROJO (150 ms).
- Detección de la expresión de citocinas inflamatorias mediante PCR cuantitativa de transcripción inversa (RT-qPCR)
- Determine la concentración y pureza del ARN utilizando un espectrofotómetro UV.
- Utilice 1.000 ng de ARN total por reacción para la transcripción inversa y sintetice ADN complementario (cADN) según las instrucciones del fabricante.
- Realice la RT-qPCR utilizando 100 ng de cADN por reacción como molde, junto con una mezcla maestra de PCR con SYBR Green y cebadores específicos para el gen. Utilice las siguientes condiciones de ciclado: 95 °C durante 2 min, seguido de 40 ciclos de 95 °C durante 5 s y 60 °C durante 10 s. Las secuencias de los cebadores se enumeran en Tabla 1.
NOTA: Optimice las condiciones de reacción según los reactivos e instrumentos específicos utilizados, y siga las instrucciones correspondientes del fabricante. - Utilice GAPDH como gen de referencia interno y calcule los niveles relativos de expresión génica mediante el método 2−ΔΔCt.
7. Detección de citocinas proinflamatorias en tejido pulmonar mediante ensayo por inmunoabsorción ligado a enzimas (ELISA)24
NOTA: Utilice los kits de ELISA de acuerdo con los protocolos específicos proporcionados por los diferentes fabricantes. Siga estrictamente las instrucciones del fabricante correspondiente al utilizar kits de proveedores alternativos.
- Homogenice el tejido pulmonar como se describió anteriormente. Utilice PBS o tampón de lisis tisular específico para ELISA como medio de homogenización.
- Centrifugue las muestras homogenizadas (por ejemplo, 12,000 x g, 4 °C, 10 min) y recoja el sobrenadante para el análisis subsiguiente.
- Equilibre el kit de ELISA a temperatura ambiente durante 30 min antes de su uso. Retire las tiras de microplaca necesarias del sobre de aluminio.
- Prepare los estándares, los pocillos de muestra y los pocillos en blanco según las instrucciones del fabricante. Añada 50 µL de estándares a los pocillos de estándar y 10 µL de muestra más 40 µL de tampón de dilución de muestra a los pocillos de muestra. Realice dos réplicas técnicas para cada estándar y muestra.
- Añada 100 µL de anticuerpo de detección conjugado con peroxidasa de rábano picante (HRP) a cada pocillo de estándar y muestra, excepto a los pocillos en blanco. Selle la placa con una película adhesiva e incube a 37 °C durante 60 min.
- Descarte el líquido de cada pocillo tras la incubación y golpee suavemente la placa sobre papel absorbente para eliminar el fluido residual.
- Añada tampón de lavado a cada pocillo, déjelo reposar durante 1 min y luego deseche el tampón. Seque la placa presionándola suavemente. Repita este paso de lavado un total de cinco veces.
- Añada secuencialmente 50 µL de la solución de sustrato A y 50 µL de la solución de sustrato B a cada pocillo. Mezcle suavemente la placa e incube a 37 °C en la oscuridad durante 15 min para permitir el desarrollo del color.
- Detenga la reacción añadiendo 50 µL de solución de parada a cada pocillo. Mida la densidad óptica (OD) dentro de los 10 min a 450 nm utilizando un lector de microplacas.
- Genere una curva estándar graficando las concentraciones de los estándares (eje x) frente a los valores de OD (eje y), y ajuste la curva. Calcule las concentraciones de las citocinas diana en las muestras sustituyendo los valores de OD en la ecuación de la curva estándar y multiplique por los factores de dilución correspondientes.
- Determine la concentración total de proteína en el tejido pulmonar utilizando un kit de ensayo de proteína BCA. Normalice los niveles finales de citocinas al contenido total de proteína y exprese los resultados como cantidad de citocina diana por miligramo de proteína total (por ejemplo, pg/mg de proteína).
Resultados
La validación del modelo se realizó evaluando los cambios histopatológicos pulmonares, la carga viral de SARS-CoV-2 y los niveles de citocinas proinflamatorias e interferones de tipo I en los grupos control y modelo.
Análisis estadístico
Los datos se presentan como media ± error estándar (SE). Se utilizó una prueba t de Student no pareada para comparar los grupos modelo y control. Esta prueba se seleccionó porque es adecuada para comparar las medias de variables continuas entre dos grupos independientes. En este estudio, los ratones se asignaron independiente y aleatoriamente a los dos grupos, cumpliendo así el supuesto de independencia de las muestras. Se consideró estadísticamente significativo un valor de p- < 0,05.
Cambios en el peso corporal y el índice pulmonar de los ratones
Como se muestra en la Figura 1B, en comparación con los valores basales previos a la modelación, el peso corporal de los ratones en el grupo modelo se redujo significativamente después de la infección, con una diferencia estadísticamente significativa (p < 0,05). Como se observa en la Figura 1C, el índice pulmonar de los ratones en el grupo modelo aumentó significativamente en comparación con el del grupo control (p < 0,01), lo cual es consistente con las características típicas de lesión pulmonar. No se observó mortalidad durante el período experimental, y todos los ratones sobrevivieron hasta el punto final del estudio.
Cambios histopatológicos en el tejido pulmonar y carga viral de SARS-CoV-2 en ratones
Figura 2 presenta las alteraciones histopatológicas y la carga viral en los tejidos pulmonares de ratones de ambos grupos. La tinción con HE mostró que el grupo control exhibía una arquitectura pulmonar intacta, mientras que el grupo modelo mostraba cambios patológicos pulmonares sustanciales, incluyendo engrosamiento del septo alveolar, infiltración de células inflamatorias y alteración de la estructura alveolar (Figura 2A). El análisis cuantitativo confirmó además que tanto el puntaje de lesión pulmonar como el puntaje de inflamación alveolar aumentaron significativamente en el grupo modelo en comparación con el grupo control (p < 0,001), lo que demuestra la inducción exitosa de lesión pulmonar y respuestas inflamatorias (Figura 2B,C).
Además, se detectó un nivel considerable de expresión de ARN de SARS-CoV-2 en los tejidos pulmonares del grupo modelo. Al tercer día posterior a la infección, la carga viral promedio en el tejido pulmonar alcanzó 5.5 x 10⁸ copias/g (Figura 2D), lo que indica replicación viral exitosa y una presencia sostenida a alto nivel en el pulmón.
Cambios en las citocinas proinflamatorias y en el IFN-I en el tejido pulmonar de ratón
Figura 3 ilustra los cambios en las citocinas inflamatorias y en el IFN-I en el tejido pulmonar de ratón. Los resultados mostraron que, en comparación con el grupo control, la expresión de ARNm y los niveles proteicos de IL-6, IL-1β y TNF-α en el tejido pulmonar del grupo modelo aumentaron significativamente (p < 0,05) (Figura 3A–F), lo que indica una activación marcada de la respuesta inflamatoria. En contraste, los resultados de ELISA demostraron que los niveles de IFN-α y IFN-β en el tejido pulmonar del grupo modelo disminuyeron significativamente en comparación con los del grupo control (p < 0,001) (Figura 3G,H), lo que sugiere una supresión de la respuesta inmunitaria antiviral.
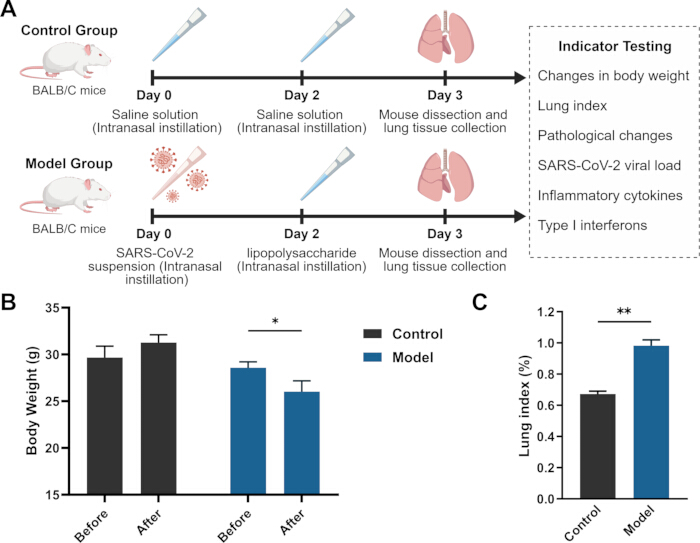
Figura 1: Diagrama del experimento y cambios en el peso corporal e índice pulmonar de los ratones. (A) Diagrama del experimento. (B) Cambios en el peso corporal de los ratones. (C) Cambios en el índice pulmonar de los ratones. Los datos se muestran como media ± EE para cada grupo. Se utilizó la prueba t de Student para evaluar las diferencias estadísticas entre los grupos. *p < 0,05; **p < 0,01; ***p < 0,001. Figura 1A fue creada con BioGDP.com25. Haga clic aquí para ver una versión ampliada de esta figura.
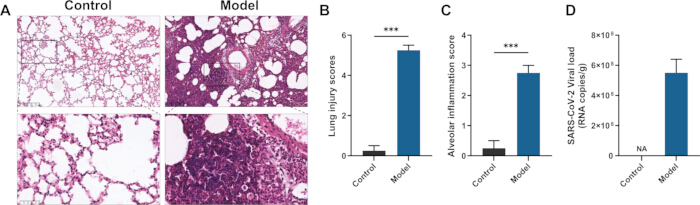
Figura 2: Cambios histopatológicos y carga viral de SARS-CoV-2 en tejido pulmonar de ratón. (A) Tinción con H&E del tejido pulmonar de ratón. (B) Puntuación de lesión pulmonar (puntuación de Smith). (C) Puntuación de inflamación alveolar (puntuación de Szapiel). (D) Carga viral de SARS-CoV-2 en el tejido pulmonar. Los datos se muestran como media ± EE para cada grupo. Se utilizó la prueba t de Student para evaluar las diferencias estadísticas entre los grupos. *p < 0,05; **p < 0,01; ***p < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
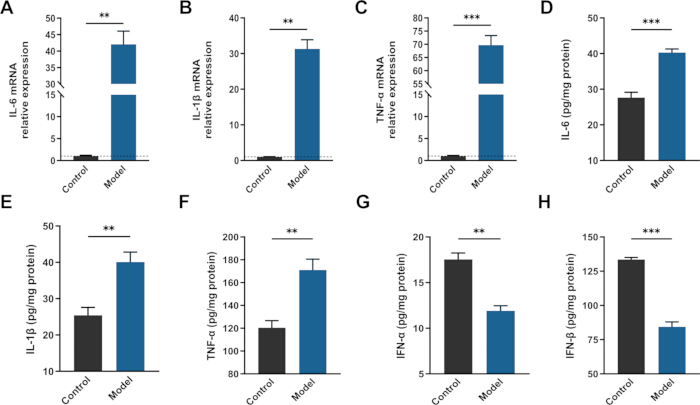
Figura 3: Cambios en las citocinas proinflamatorias y en el IFN-I en tejido pulmonar de ratón. (A–C) Expresión relativa de ARNm de las citocinas proinflamatorias IL-6, IL-1β y TNF-α en tejido pulmonar de ratón. (D–F) Niveles proteicos de IL-6, IL-1β y TNF-α en tejido pulmonar de ratón. (G–H) Niveles de IFN-α y IFN-β en tejido pulmonar de ratón. Los datos se muestran como media ± EE para cada grupo. Se utilizó la prueba t de Student para evaluar las diferencias estadísticas entre los grupos. *p < 0,05; **p < 0,01; ***p < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
| Primer | Secuencia directa (5’ a 3’) | Secuencia inversa (5’ a 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tabla 1: Secuencias de cebadores utilizadas en este estudio. Se enumeran las secuencias de cebadores directos e inversos (5′ a 3′) para los genes diana y de referencia interna.
Archivo suplementario 1 Haga clic aquí para descargar este archivo.
Archivo suplementario 2 Haga clic aquí para descargar este archivo.
Archivo suplementario 3 Haga clic aquí para descargar este archivo.
Discusión
Este estudio estableció un modelo murino de lesión pulmonar asociada a la COVID-19 mediante la instilación intranasal de SARS-CoV-2 y LPS. Los resultados demostraron que la administración intranasal conjunta de SARS-CoV-2 y LPS induce una respuesta inflamatoria robusta acompañada de supresión de la señalización de IFN-I. Los ratones del grupo modelo presentaron una pérdida significativa de peso corporal y un índice pulmonar aumentado, lo que indica desgaste sistémico y lesión pulmonar agravada. La tinción con HE confirmó además que el grupo modelo exhibió una lesión pulmonar difusa típica, caracterizada por la alteración de la arquitectura alveolar e infiltración extensa de células inflamatorias. Además, en comparación con el grupo control, los tejidos pulmonares del grupo modelo mostraron un aumento significativo en la expresión de citocinas proinflamatorias clave, incluyendo IL-6, IL-1β y TNF-α, mientras que los niveles de IFN-α y IFN-β disminuyeron marcadamente. Estos hallazgos sugieren un estado de desequilibrio inmunitario caracterizado por la activación excesiva de respuestas proinflamatorias acompañada de inmunidad antiviral suprimida, lo que refuerza aún más el valor potencial de este modelo para reproducir las características inmunopatológicas de la enfermedad.
Se considera que la infección por SARS-CoV-2 es un factor impulsor central en el desarrollo del daño orgánico asociado a la COVID-1926,27. En este estudio, se detectó una carga viral elevada en los tejidos pulmonares de ratones modelo, acompañada de una lesión pulmonar difusa marcada y una infiltración de células inflamatorias, lo que sugiere que la infección viral podría ser un desencadenante clave de la respuesta inflamatoria pulmonar. De acuerdo con informes previos, la infección por SARS-CoV-2 puede inducir cambios patológicos pulmonares y activación inmunitaria28; sin embargo, los modelos convencionales de infección por SARS-CoV-2 en ratones a menudo presentan respuestas inflamatorias limitadas y podrían no reproducir completamente el fenotipo hiperinflamatorio observado en pacientes con COVID-1918,19,20. Por lo tanto, puede ser necesario un estímulo inmunitario innato adicional para investigar mejor los mecanismos subyacentes a la desregulación inmuno-inflamatoria asociada a la enfermedad. El LPS, un activador prototípico de la inmunidad innata, se une al receptor tipo Toll 4 (TLR4) y desencadena vías de señalización dependientes de MyD88 y de TRIF, activando así programas transcripcionales inflamatorios clave como NF-κB e induciendo la expresión de múltiples citocinas proinflamatorias29. Estudios previos también han demostrado que la estimulación con LPS, ya sea sola o en combinación con componentes relacionados con SARS-CoV-2, puede potenciar las respuestas inflamatorias y contribuir a fenotipos similares a la lesión pulmonar aguda, lo que respalda la justificación para incorporar el LPS como un estímulo inflamatorio en investigaciones relacionadas con la COVID-1930,31,32. En el presente estudio, se observaron niveles significativamente elevados de IL-6, IL-1β y TNF-α en los tejidos pulmonares del grupo modelo, lo que sugiere que el LPS actúa como un amplificador inflamatorio en el contexto de la infección por SARS-CoV-2, más que representar simplemente una coinfección bacteriana. En comparación con modelos inflamatorios inducidos únicamente por LPS, que carecen del contexto de infección viral, el modelo combinado establecido en este estudio integra alteraciones inmunitarias inducidas por SARS-CoV-2 con la activación inflamatoria mediada por LPS, proporcionando así una plataforma más completa para estudiar la lesión pulmonar asociada a la COVID-19.
Los IFN-I son moléculas efectoras clave de la inmunidad antiviral del huésped y ejercen funciones antivirales amplias al inducir una gran variedad de genes estimulados por interferón (ISG)33. Sin embargo, se ha demostrado que el SARS-CoV-2 antagoniza la señalización de IFN-I mediante múltiples mecanismos, incluyendo la interferencia con la transducción de señales mediada por receptores de reconocimiento de patrones (PRR), la supresión de la activación del factor regulador de interferón (IRF) y el bloqueo de la señalización JAK-STAT descendente, alterando así las defensas antivirales del huésped14,34. En este estudio, se observaron niveles significativamente reducidos de IFN-α y IFN-β en los tejidos pulmonares del grupo modelo, lo que indica que bajo los efectos sinérgicos de la infección viral y la estimulación con LPS, el huésped no solo presentó una activación inflamatoria excesiva, sino también una supresión concomitante de la inmunidad antiviral. Esta disfunción inmunitaria se considera uno de los rasgos inmunológicos clave en el desarrollo y progresión de la COVID-198. Por lo tanto, el modelo actual reproduce parcialmente este complejo proceso patológico, proporcionando una herramienta experimental valiosa para investigar más a fondo la disregulación inmunitaria asociada a la COVID-19 y para el desarrollo de intervenciones terapéuticas relacionadas.
El modelo de ratón para la COVID-19 establecido en este estudio, basado en la administración combinada de SARS-CoV-2 y LPS, es capaz de reproducir características clave de la patología de la enfermedad, incluyendo citocinas proinflamatorias elevadas y supresión de la señalización de IFN-I, imitando así parcialmente el desequilibrio inmunitario observado en la lesión pulmonar asociada a la COVID-19. En comparación con los modelos de infección viral única, este enfoque combinado incorpora un estímulo inmunitario innato exógeno para potenciar las respuestas inflamatorias relevantes para la enfermedad, permitiendo así el estudio de procesos patológicos asociados con inflamación excesiva e inmunidad antiviral comprometida. Por consiguiente, este modelo podría ser útil para evaluar in vivo estrategias candidatas antiinflamatorias, inmunomoduladoras y de reparación pulmonar, particularmente aquellas dirigidas al desregulamiento inmunitario más que únicamente a la replicación viral.
Sin embargo, deben reconocerse varias limitaciones de este estudio. En primer lugar, el LPS induce inflamación principalmente mediante la activación de TLR4, lo cual no refleja completamente las complejas interacciones entre el virus y el huésped en la COVID-19 clínica y podría alterar la respuesta inflamatoria. En segundo lugar, aunque se realizaron experimentos comparativos con grupos solo de SARS-CoV-2 y solo de LPS durante la fase preliminar de optimización, estos datos no se incluyen en el manuscrito. Estudios futuros evaluarán más a fondo los efectos individuales y combinados del SARS-CoV-2 y el LPS para definir mejor la contribución de cada componente. En tercer lugar, este modelo está diseñado para reproducir características inmunopatológicas clave del daño pulmonar asociado a la COVID-19, particularmente la desregulación inmune-inflamatoria, más que el curso natural completo de la infección por SARS-CoV-2. Por último, aunque la dosis de SARS-CoV-2 y la concentración de LPS se determinaron según experimentos preliminares de optimización, las variaciones en cepas de ratones, variantes virales, métodos de prueba y condiciones experimentales podrían afectar la reproducibilidad del modelo y requerir una validación adicional en diferentes entornos de investigación. Bajo las condiciones optimizadas descritas en este protocolo, la tasa de éxito general en el establecimiento del modelo fue aproximadamente del 90 %; sin embargo, esta tasa puede variar entre diferentes entornos experimentales. Estudios futuros podrían optimizar aún más este modelo incorporando diferentes variantes de SARS-CoV-2, cepas de ratones modificadas genéticamente o enfoques avanzados de perfilado inmune, como el análisis transcriptómico a nivel de célula individual, para caracterizar mejor las interacciones entre el virus y el huésped e identificar dianas terapéuticas. Estos esfuerzos podrían mejorar aún más la relevancia traslacional de este modelo para la investigación de la COVID-19.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
Agradecimientos
Esta investigación fue financiada por la Fundación Nacional de Ciencias Naturales de China (82374291); el Programa de Ciencia y Tecnología de Sichuan (2024NSFJQ0059); el Proyecto Temático Especial de Investigación Científica de la Administración de Medicina Tradicional China de Sichuan (2024zd005); el Proyecto 2022 del Plan «Tianfu Qingcheng» para Líderes Científicos y Tecnológicos de Talentos (n.º Chuan Qingcheng 1090); y el Fondo Conjunto de Innovación de la Comisión de Salud de Chengdu y la Universidad de Medicina Tradicional China de Chengdu (WXLH202403091).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Procesador de tejidos automatizado | Dakewe Biotech Co., Ltd. | HP300 | Utilizado para la deshidratación de tejidos. |
| Autotinción | Leica Biosystems | LEICA ST5010 | Utilizado para tinción con HE. |
| Centrífuga | DLAB Scientific | D3024R | Utilizado para centrifugar muestras o reactivos. |
| Baño de agua a temperatura constante | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Utilizado para baños de agua a temperatura constante. |
| Sistema de PCR digital | QIAGEN | QIAcuity One | Utilizado para RT-dPCR. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix para qPCR (One-Step gDNA Removal) | TransGen Biotech Co.,Ltd. | AT341 | Utilizado para la transcripción inversa. |
| Solución de eosina | BASO | BA4024 | Utilizado para tinción histológica. |
| Sistema de PCR cuantitativa fluorescente | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Utilizado para RT-qPCR. |
| Solución de hematoxilina | BASO | BA4041 | Utilizado para tinción histológica. |
| Software IBM SPSS Statistics | IBM Corp., Armonk, NY, USA | versión 22.0 | Utilizado para análisis estadístico. |
| Lipopolisacáridos de Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Utilizado para modelado en ratones. |
| Lector de microplacas | Molecular Devices | SpectraMax Plus 384 | Utilizado para ELISA. |
| Kit ELISA de IFN-α en ratón | ZCIBIO Technology Co., Ltd. | ZC-37863W | Utilizado para detectar los niveles de IFN-α en tejido pulmonar de ratón. |
| Kit ELISA de IFN-β en ratón | ZCIBIO Technology Co., Ltd. | ZC-37887W | Utilizado para detectar los niveles de IFN-β en tejido pulmonar de ratón. |
| Kit ELISA de IL-1β en ratón | ZCIBIO Technology Co., Ltd. | ZC-37974W | Utilizado para detectar los niveles de IL-1β en tejido pulmonar de ratón. |
| Kit ELISA de IL-6 en ratón | ZCIBIO Technology Co., Ltd. | ZC-37988W | Utilizado para detectar los niveles de IL-6 en tejido pulmonar de ratón. |
| Kit ELISA de TNF-α en ratón | ZCIBIO Technology Co., Ltd. | ZC-39024W | Utilizado para detectar los niveles de TNF-α en tejido pulmonar de ratón. |
| Kit One-Step RT-PCR para PCR digital | QIAGEN | 4829104 | Utilizado para PCR digital. |
| Máquina de inclusión en parafina | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Utilizado para la inclusión en parafina del tejido pulmonar de ratón. |
| Kit QuantiNova SYBR PCR Mix | QIAGEN | 1129280 | Utilizado para RT-qPCR. |
| Kit RNeasy Plus Universal Mini | QIAGEN | 1062832 | Utilizado para la extracción de ARN total. |
| Cortador | Leica Biosystems | LEICA RM2235 | Utilizado para secciones en parafina. |
| Perlas de acero inoxidable para homogeneizador de tejidos | Beyotime Biotechnology | F6621 | Utilizado para homogeneizar tejido pulmonar. |
| Piscina de cebadores XG 1.0 para PCR digital | QIAGEN | 4828104 | Utilizado para PCR digital. |
| Zoletil 50 | VIRBAC | BN9VS7A | Utilizado para anestesiar ratones. |
Referencias
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.