Este estudio demuestra que el gránulo Qiming (QMG) mejora la retinopatía diabética (DR) mediante la modulación del eje intestino–retina. QMG reconfiguró la microbiota intestinal, suprimió la inflamación sistémica y restauró la red reguladora centrada en CMKLR1, invirtiendo así el daño histopatológico retiniano. Estos hallazgos posicionan a QMG como una estrategia terapéutica prometedora dirigida al eje intestino–retina para la DR.
Artículo de investigación
Análisis correlacional del Gránulo Qiming con la red centrada en CMKLR1 y la inflamación sistémica a través del eje intestino-retina en la retinopatía diabética
En este artículo
Resumen
Resumen
La retinopatía diabética (DR) es una complicación neurovascular provocada por hiperglucemia crónica e inflamación sistémica, con evidencias emergentes que destacan el eje intestino-retina como un blanco terapéutico crítico pero poco explotado. Este estudio investiga si el Granulado Qiming (QMG) ejerce su eficacia protectora contra la DR mediante la modulación del eje intestino-retina. Se asignaron aleatoriamente ratones C57BL/6 a diferentes grupos experimentales y se sometieron a intervenciones específicas. Los cambios histopatológicos retinianos se evaluaron mediante tinción con hematoxilina-eosina (HE). Los niveles séricos de citocinas inflamatorias (IL-1β, IL-6, TNF-α) se midieron mediante ensayo inmunoabsorbente ligado a enzimas (ELISA). La expresión de proteínas reguladoras clave (CMKLR1, Wnt5a, PPAR-γ, AP-1, TP53) en tejidos retinianos y colónicos se detectó mediante inmunotransferencia (WB). La composición y diversidad de la microbiota intestinal se caracterizaron mediante secuenciación completa del gen 16S de ARNr. Se realizaron análisis de correlación para evaluar las relaciones entre la microbiota intestinal y los factores inflamatorios o proteínas clave. El tratamiento con QMG mejoró las anomalías histopatológicas retinianas, evidenciado por la restauración de la arquitectura laminar retiniana, recuperación parcial del número de células ganglionares retinianas (P < 0,001) e inversión del adelgazamiento retiniano (P < 0,01). Asimismo, redujo marcadamente los niveles séricos de IL-1β, IL-6 y TNF-α (P < 0,0001). A lo largo del eje intestino-retina, QMG invirtió la expresión anormal de proteínas reguladoras clave, notablemente la red centrada en CMKLR1 (Wnt5a, PPAR-γ, AP-1, TP53). Además, QMG restauró la composición, diversidad y función de la microbiota intestinal, y los análisis de correlación revelaron que QMG acopla la inflamación sistémica con estas proteínas reguladoras para modular el eje intestino-retina. Este estudio proporciona evidencia farmacológica preliminar de que QMG mejora la DR acoplando la red reguladora centrada en CMKLR1 (incluyendo Wnt5a, PPAR-γ, AP-1 y TP53) y la inflamación sistémica a través del eje intestino-retina, posicionando a QMG como una estrategia terapéutica prometedora dirigida al eje intestino-retina para la DR.
Introducción
La retinopatía diabética (DR), una de las complicaciones microvasculares más comunes de la diabetes mellitus (DM), es una causa principal de ceguera entre los adultos en edad laboral en todo el mundo1. A nivel global, la DR afecta aproximadamente al 20–30 % de la población con DM2. La hiperglucemia crónica impulsa la patogénesis de la DR al desencadenar una cascada de eventos patológicos, incluyendo el acoplamiento neurovascular alterado, respuestas inflamatorias exacerbadas y estrés oxidativo3. Recientemente, se han observado alteraciones en la diversidad y composición de la microbiota intestinal en pacientes diabéticos con retinopatía en comparación con aquellos sin ella4,5. En consecuencia, el eje intestino-retina, una red de comunicación bidireccional que vincula la homeostasis intestinal con la salud retiniana, ha surgido como un nuevo factor contribuyente a la progresión de la DR. Sin embargo, los mediadores moleculares específicos que traducen las señales del eje intestino-retina en patología retiniana permanecen en gran parte no caracterizados, lo que limita la identificación de biomarcadores confiables y dianas terapéuticas.
El eje intestino-retina delinea una red compleja de comunicación bidireccional entre la microbiota intestinal y sus metabolitos con los tejidos retinianos a través de vías inmunológicas, metabólicas, neuroendocrinas y vasculares, modulando así su equilibrio homeostático6. Molecularmente, el eje intestino-retina se caracteriza por la desregulación de proteínas clave que responden al estrés y determinan el destino celular, específicamente AP-1 y TP537,8,9. Además, CMKLR1, un receptor de quimioquinas clave, surge como un mediador importante de la disfunción endotelial y la desregulación metabólica, estableciendo un vínculo crítico entre las alteraciones de la microbiota intestinal y la patogénesis de la retinopatía diabética10. Importante, la señalización Wnt coordina funciones reguladoras duales en el mantenimiento de la homeostasis vascular retiniana y la función de la barrera epitelial intestinal11, mientras que la señalización PPAR actúa como regulador maestro de las respuestas inflamatorias y los procesos metabólicos en ambos tejidos ocular e intestinal12,13. Estos actores moleculares constituyen colectivamente una red de señalización interconectada dentro del eje intestino-retina, ofreciendo nuevas perspectivas mecanicistas y oportunidades terapéuticas para las complicaciones relacionadas con la diabetes. Por lo tanto, dirigirse a las alteraciones estructurales y funcionales a lo largo de este eje representa una estrategia prometedora para el manejo de la RD.
La medicina tradicional china (MTC) ha desempeñado históricamente un papel importante en el tratamiento de la diabetes y la retinopatía asociada, con decisiones terapéuticas basadas en la diferenciación de síndromes14. El gránulo Qiming (QMG), compuesto por Astragalus membranaceus, Pueraria lobata, Rehmannia glutinosa, Lycium barbarum, Senna obtusifolia, Leonurus japonicus, Typha angustifolia y Whitmania pigra, se aplica ampliamente en el tratamiento de la retinopatía diabética (DR). Autorizado por la Administración Nacional de Productos Médicos de China (número de aprobación: Z20090036), QMG ha completado con éxito ensayos clínicos y ha recibido autorización para su comercialización. QMG exhibe efectos protectores al prevenir el engrosamiento de la membrana basal en los capilares retinianos, reducir el daño a las células perivasculares y a la microvasculatura retiniana, y mantener la morfología patológica local del ojo15, lo que lo convierte en una terapia prometedora para abordar la DR. Al actuar sobre proteínas clave y factores inflamatorios, los componentes activos de QMG ejercen efectos antiinflamatorios, antioxidantes y antiapoptóticos, proporcionando una base mecanicista para su modulación del eje intestino–retina16. Estas propiedades ofrecen una base mecanicista para el potencial de QMG de modular el eje intestino–retina, aunque pocos estudios han explorado esta relación. Por lo tanto, este estudio tiene como objetivo validar la eficacia de QMG en la modulación del eje intestino–retina, aportando evidencia experimental sobre su potencial terapéutico en la DR.
Este estudio combina predicciones teóricas con datos experimentales in vivo para validar la eficacia de QMG en la modulación del eje intestino-retina. Estos hallazgos demuestran que QMG mejora la retinopatía diabética al acoplar la red reguladora centrada en CMKLR1 (incluyendo Wnt5a, PPAR-γ, AP-1 y TP53) con la inflamación sistémica a través del eje intestino-retina, posicionando a QMG como una estrategia terapéutica prometedora dirigida al eje intestino-retina para la retinopatía diabética. El resumen gráfico se muestra en Figure 1.
Protocolo
Todos los experimentos con animales se realizaron cumpliendo con las directrices ARRIVE. El estudio fue aprobado por el Comité de Revisión Ética de Sichuan Scientist Biotechnology Co., Ltd. (IACUC ISSUE SYST-2024-011). Se proporciona una cronología experimental detallada que resume el diseño del estudio en la Figura Suplementaria 1.
Preparación y tratamiento del animal
Los ratones fueron anestesiados profundamente mediante inhalación de isoflurano al 2 %. Bajo anestesia profunda, se recolectó sangre mediante enucleación retroorbital. Inmediatamente después de la recolección de sangre, se enuclearon los ojos para obtener el tejido retiniano. Posteriormente, se realizó la dislocación cervical bajo anestesia profunda para asegurar la eutanasia. A continuación, se diseccionaron los tejidos del colon inmediatamente. Los animales que presentaron eventos adversos fueron retirados inmediatamente del estudio y recibieron la atención veterinaria adecuada.
Randomización y enmascaramiento
Se alojaron ratones macho C57BL/6, de 5 semanas de edad y con un peso entre 20 y 30 gramos, bajo condiciones estrictamente reguladas, incluyendo temperatura y humedad. Después de una semana de aclimatación, los ratones C57BL/6 se asignaron aleatoriamente a tres grupos (grupos control, modelo e intervención) mediante una secuencia de números aleatorios generada por computadora. La secuencia de aleatorización fue generada por un investigador que no participó en el manejo de los animales ni en la evaluación de los resultados.
Para garantizar el enmascaramiento, todos los cuidados animales, la administración de fármacos y la recopilación de datos fueron realizados por investigadores que desconocían la asignación de los grupos. Las asignaciones codificadas de los grupos se revelaron únicamente tras la finalización de todos los experimentos y los análisis estadísticos. El enmascaramiento incluyó: al técnico que realizó la gavaje oral; al patólogo que evaluó la histología retiniana; y al analista que cuantificó las bandas de inmunotransferencia (WB).
Cálculo del tamaño de la muestra
El tamaño de la muestra se determinó en función de un experimento preliminar que evaluaba los conteos de células ganglionares de la retina (RGC) bajo las mismas condiciones experimentales. Suponiendo un nivel de significancia bilateral (α) de 0,05 y una potencia estadística (1-β) de 0,80, se requirió un mínimo de 5 ratones por grupo para detectar una diferencia clínicamente relevante en los conteos de RGC entre los grupos modelo e intervención. Considerando una tasa de abandono potencial de aproximadamente el 20 %, cada grupo se estableció con 6 ratones.
Establecimiento de animales diabéticos
Al grupo control se le administró una dieta estándar, mientras que a los grupos de intervención y modelo se les suministró una dieta alta en grasas y azúcares (HFHSD) durante un período de cuatro semanas. Tras este período alimenticio, los grupos de intervención y modelo recibieron una inyección intraperitoneal con una solución al 1 % de estreptozotocina (STZ) en una dosis de 35 mg/kg17,18,19,20. Setenta y dos horas después de la inyección, los ratones que presentaron niveles de glucosa en sangre en ayunas superiores a 16,7 mmol/L se consideraron como animales con un modelo de DM exitosamente inducido y fueron seleccionados para experimentos posteriores. Los animales con DM continuaron con la dieta alta en grasas y azúcares durante cuatro meses adicionales, mientras que el grupo control mantuvo su dieta estándar.
Validación taxonómica y evaluación de la calidad
Los ocho ingredientes en QMG se validaron taxonómicamente utilizando la herramienta Modernized Plant Names Search (MPNS, http://mpns.kew.org/mpns-portal/). La calidad del informe de composición para el QMG se evaluó utilizando la herramienta ConPhYMP.
Métodos de administración
En el grupo de intervención, los animales recibieron QMG por vía oral. QMG fue adquirido de Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. (número de aprobación nacional de medicamentos chino Z20090036). La suspensión de QMG se preparó mezclando uniformemente QMG con agua destilada. A los ratones del grupo de intervención se les administró la suspensión mediante sonda oral en un volumen equivalente al de los grupos modelo y control. La dosis se calculó en función de la dosis terapéutica única clínica de 4,5 g por cada 60 kg de peso corporal (la dosis unitaria estándar de la formulación comercializada), utilizando el método de normalización del área de superficie corporal (BSA) recomendado por la FDA y Reagan-Shaw21. El factor de conversión entre adultos humanos (Km = 37) y ratones (Km = 3) fue de 12,33, lo que resultó en una dosis para ratones de 0,9 g/kg de peso corporal. Al grupo modelo y al grupo control se les administró un volumen equivalente de solución salina mediante sonda oral. La administración se realizó diariamente entre las 9:00 y las 11:00 durante un período consecutivo de 3 meses.
Indicadores de observación y pruebas
Monitoreo general de signos vitales
Se observaron y registraron sistemáticamente los signos vitales generales e indicadores fisiológicos, incluyendo el peso corporal, los niveles de glucosa en sangre, el consumo de agua y alimento, la producción de orina, los niveles de actividad y comportamiento, la temperatura corporal, así como el estado del pelaje y la piel, con el fin de evaluar de manera integral las intervenciones terapéuticas y detectar posibles complicaciones.
Observación de los cambios morfológicos en la retina mediante análisis con tinción HE
Todos los especímenes se procesaron mediante un deshidratador automático utilizando una serie de soluciones de etanol y xileno tras la fijación, seguido de inclusión en parafina. Posteriormente, se cortaron secciones de 4 µm en parafina y se tiñeron con HE, y luego se montaron con goma neutra. Las imágenes de la retina se escanearon utilizando un escáner 3DHISTECH Pannoramic SCAN. El análisis de imágenes y la medición de datos se realizaron con Image-Pro Plus.
Detección de IL-6, TNF-α e IL-1β séricas mediante análisis por ELISA
Las muestras de sangre se recolectaron mediante enucleación retroorbital. El suero se separó por centrifugación a 1.000 × g durante 15 min a 4 °C y se almacenó a -80 °C hasta el análisis. Los niveles séricos de IL‑1β, IL‑6 y TNF‑α se midieron según procedimientos estándar, incluyendo equilibrio de reactivos, adición de muestras, incubación, lavado, adición de conjugado y sustrato, terminación de la reacción, medición de la densidad óptica y cálculo de la concentración basado en una curva estándar. La densidad óptica se leyó a 450 nm utilizando un lector de microplacas, y las concentraciones de citocinas se calcularon frente a curvas estándar.
Detección de las proteínas reguladoras clave en la retina y el colon mediante análisis por WB
Se realizaron tres réplicas biológicas independientes en una sola membrana y se analizaron secuencialmente para las proteínas diana. Todas las réplicas se obtuvieron a partir de una única cohorte de animales sacrificados simultáneamente. Cuando el peso molecular de una proteína diana era demasiado cercano al de GAPDH (<5 kDa de diferencia), se analizaron en membranas independientes para evitar el solapamiento de señales. Cada membrana se incubó exclusivamente con la proteína diana o con GAPDH para garantizar una cuantificación precisa. Se utilizaron los siguientes anticuerpos primarios: anticuerpo policlonal contra GAPDH policlonal anticuerpo (1:5000), anticuerpo policlonal contra CMKLR1 (1:1000), anticuerpo policlonal contra Wnt5a (1:1000), anticuerpo policlonal contra TP53 (1:1000), anticuerpo monoclonal contra AP-1 (1:5000) y anticuerpo policlonal contra PPAR gamma (PPAR-γ) (1:1000). Las proteínas totales se obtuvieron mediante lisis celular seguida de centrifugación. Las concentraciones de proteína se determinaron mediante el ensayo BCA. Las proteínas extraídas se separaron mediante electroforesis en gel de SDS-PAGE con un gel separador al 12% y posteriormente se transfirieron a membranas. Las membranas se bloquearon en TBST que contenía leche descremada al 5% e incubaron con los anticuerpos primarios correspondientes durante la noche a 4 °C. Tras lavados, las membranas se incubaron con anticuerpos secundarios conjugados con HRP anti-conejo o anti-ratón en una dilución de 1:10,000. Finalmente, las bandas proteicas se visualizaron y analizaron mediante imágenes de quimioluminiscencia. Durante la visualización y el procesamiento de datos, se recortaron horizontalmente las membranas para eliminar regiones irrelevantes de peso molecular, y se conservaron todas las carreras de muestras sin eliminar áreas intermedias entre carreras. Puede ocurrir una ligera distorsión en los bordes durante el recorte para eliminar regiones irrelevantes del gel.
Detección de la microbiota intestinal mediante análisis de secuenciación del ADNr 16S
Se recolectaron muestras fecales frescas de cada ratón antes de los procedimientos terminales. Los ratones se colocaron individualmente en jaulas estériles durante 10–15 min para permitir la defecación espontánea. Los pellets fecales se recolectaron inmediatamente con pinzas estériles, se transfirieron a tubos estériles de 1,5 mL, se congelaron rápidamente en nitrógeno líquido y se almacenaron a -80 °C hasta la extracción de ADN. Todos los procedimientos se realizaron bajo condiciones estériles para minimizar la contaminación cruzada. El intervalo entre la defecación y el congelamiento se mantuvo dentro de los 10 min para asegurar la integridad microbiana. Las muestras de ADN genómico fecal (ADNg) se purificaron utilizando el kit de extracción de ADNg fecal, seguido de la amplificación completa del gen 16S de ARNr mediante reacción en cadena de la polimerasa (PCR) con los cebadores universales 8F (5’-AGAGTTTGATCATGGCTCAG-3’) y 1492R (5’-CGGTTACCTTGTTACGACTT-3’). Los productos de PCR se analizaron posteriormente mediante electroforesis en gel de agarosa, se purificaron y cuantificaron para aplicaciones posteriores. La secuenciación de alto rendimiento se realizó en el secuenciador Nanopore GridION. El proceso de análisis de datos incluyó llamada de bases, control de calidad de los datos, anotación de especies, construcción de árboles filogenéticos, análisis de la comunidad, análisis de diversidad alfa y beta, y análisis de especies diferencialmente abundantes y predicción de la función comunitaria. Durante el análisis se utilizaron diversas herramientas y bases de datos, como NanoFilt, Usearch, el lenguaje de programación R, Python y la base de datos SILVA.
Análisis de correlación del eje intestino-retina con inflamación sistémica y microbiota intestinal en múltiples niveles
Para explorar las posibles asociaciones entre la microbiota intestinal multiescalar y las citocinas inflamatorias séricas y las proteínas reguladoras clave, se realizó un análisis de correlación utilizando la plataforma Luoning Bio-Cloud. En primer lugar, se extrajeron del resultado del secuenciamiento los datos de abundancia de especies a nivel de Reino, Filo, Clase, Orden, Familia, Género y Especie. Los factores fisicoquímicos, incluidas las citocinas inflamatorias séricas y los niveles de expresión proteica, se compilaron en un archivo de factores ambientales. Para garantizar la fiabilidad y la visualización de las correlaciones, los datos se normalizaron con el fin de eliminar las diferencias de escala entre la abundancia microbiana y las unidades de medición clínica. Se calcularon los coeficientes de correlación (valores R) y los niveles de significancia correspondientes (valores P). Los resultados se visualizaron mediante un mapa de calor de correlación, en el que los gradientes de color indican la intensidad y dirección de la correlación (rojo representa correlación positiva, azul representa correlación negativa), y los asteriscos (**) indican significancia estadística (P < 0,01).
Métodos estadísticos
Todos los análisis estadísticos y visualizaciones se realizaron utilizando GraphPad Prism. Se empleó la prueba t para comparar medias en datos que seguían una distribución normal. En los casos en que los datos se desviaban de la normalidad, se utilizó la prueba de Kruskal-Wallis. Se realizaron correlaciones de Spearman o de Pearson para evaluar las relaciones entre variables. Todas las pruebas estadísticas se realizaron como pruebas bilaterales, con una significancia estadística establecida en 0,05.
Resultados
General situation of experimental animals
Blood glucose levels were significantly elevated in the model group (27.21 ± 6.03 mmol/L) compared with the blank group (P < 0.001), indicating the successful induction of the DM model. During the study period, the experimental animals showed stable body weight, continuous water and food intake, normal urine output, body temperature, healthy fur and skin condition, and normal behavior during the experiment.
Composition and validation of QMG
QMG, a proprietary Chinese medicine that passed Phase III clinical trials, encompasses Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix], Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix], Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix], Lycium barbarum L. [Solanaceae; Lycii fructus], Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen], Leonurus japonicus Houtt. [Lamiaceae, Leonuri herba], Typha angustifolia L. [Typhaceae; Typhae pollen], Whitmania pigra Whitman [Hirudinidae; Hirudo]15. The detailed information, including the Chinese name, scientific name by MPNS validation, species, family, part used, representative bioactive compounds, was summarized in Table 1, which defined the QMG and provided a transparent, scientifically grounded basis for the formulas under investigation.
| No. | Chinese name | Scientific name by MPNS validation | Species | Family | Part Used | Representative bioactive compounds | |||||||
| 1 | HuangQi | Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix] | Astragalus mongholicus (Fisch.) Bunge | Fabaceae | Radix | Astragaloside IV, Calycosin | |||||||
| 2 | GeGen | Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix] | Pueraria lobata (Willd.) | Fabaceae | Radix | Puerarin, Daidzin | |||||||
| 3 | DiHuang | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix] | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | Orobanchaceae | Radix | Catalpol, Rehmannioside D | |||||||
| 4 | GouQiZi | Lycium barbarum L. [Solanaceae; Lycii fructus] | Lycium barbarum L. | Solanaceae | Fructus | Lycium barbarum polysaccharides, Betaine | |||||||
| 5 | JueMingZi | Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen] | Senna obtusifolia (L.) H.S. Irwin & Barneby | Fabaceae | Semen | Aurantio-obtusin, Emodin | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [Lamiaceae, Leonuri fructus] | Leonurus japonicus Houtt. | Lamiaceae | Fructus | Stachydrine, Leonurine | |||||||
| 7 | PuHuang | Typha angustifolia L. [Typhaceae; Typhae pollen] | Typha angustifolia L. | Typhaceae | Pollen | Isorhamnetin, Kaempferol | |||||||
| 8 | ShuiZhi | Whitmania pigra Whitman [Hirudinidae; Hirudo] | Whitmania pigra Whitman | Hirudinidae | Body | Hirudin, Calin | |||||||
Table 1: The composition and quality information of QMG ingredients. Detailed information on the composition and quality information of QMG ingredients, including the Chinese name, scientific name by MPNS validation, species, family, part used, and representative bioactive compounds.
QMG ameliorates the retinal morphology
As depicted in Figure 2A, the retina of the blank group exhibited a well-organized structure. The cellular arrangement was dense and orderly across all layers, with no evidence of structural disruption, exudation, or inflammatory infiltration. Compared with the blank group, retinal sections from the model group (Figure 2B) exhibited marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in RGC counts (P < 0.0001, Table 2, Figure 3A), and pronounced thinning of the total retinal thickness (P < 0.0001, Figure 3B). Notably, neovascular tufts penetrating the inner limiting membrane were observed (indicated by a red arrow), confirming successful establishment of the DR model. In contrast, the intervention group (Figure 2C) demonstrated significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001, Table 2, Figure 3A), and reversal of retinal thinning (P < 0.01, Table 2, Figure 3B). These data provide strong evidence for QMG as an effective intervention for DR.
QMG attenuates systemic inflammatory response in DR
Compared with the blank group, the expression levels of IL-1β, IL-6, and TNF-α were significantly upregulated in the model group (P < 0.0001), confirming that the modeling procedure successfully induced a marked inflammatory response. Conversely, compared with the model group, the expression levels of IL-1β, IL-6, and TNF-α were significantly downregulated in the intervention group (p < 0.0001), indicating a potent inhibitory effect of QMG on systemic inflammation. The serum concentrations of IL-1β, IL-6, and TNF-α across the three groups are summarized in Table 3 and illustrated in Figure 4A–C.
QMG modulates the CMKLR1-centered regulatory network along the gut–retina axis
As shown in Figure 5, Figure 6, Figure 7, and Supplementary Figure 2, the results of this study showed that in DR model mice, the expression levels of five key regulatory proteins—AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ—exhibited a consistent downward trend in both colonic and retinal tissues. Following QMG intervention, the expression of these proteins showed varying degrees of recovery, with some proteins reaching statistical significance. Specifically, after QMG intervention, the expression of AP-1, Wnt5a, and CMKLR1 in colonic tissue was significantly higher than that in the model group (P < 0.05), while in retinal tissue, the expression of CMKLR1 and TP53 was significantly higher than that in the model group (P < 0.01). These findings may suggest that AP-1 and Wnt5a are more sensitive responders in the colon, whereas TP53, as an apoptosis regulator, plays a more critical role in retinal neuroprotection. Notably, CMKLR1 was the only protein that achieved significant recovery in both tissues, indicating that QMG may facilitate bidirectional communication along the gut–retina axis through systemic regulation of CMKLR1 expression.
The consistent directionality of expression changes for these five proteins in both colonic and retinal tissues holds important biological significance. As the primary habitat of the gut microbiota, changes in colonic protein expression reflect the state of the intestinal microenvironment, while the retina is the effector organ of DR. The consistency of expression patterns between these two tissues strongly supports the gut–retina axis as an important participant in the pathophysiological processes of DR.
QMG restores and improves the composition, diversity, and function of gut microbiota
The results of the community composition
Hierarchical clustering analysis revealed distinct shifts in gut microbial composition and clustering at multiple taxonomic levels following QMG intervention. At the phylum level (Figure 8A), the model group exhibited a marked reduction in Firmicutes abundance and a significant enrichment of Bacteroidetes compared with the blank group, indicating a diabetes-driven shift in the Firmicutes/Bacteroidetes ratio; notably, the intervention restored the proportions of both Firmicutes and Bacteroidetes to levels approaching those of the blank group, accompanied by an elevated relative abundance of Proteobacteria. At the class level (Figure 8B), the model group manifested an elevation in Bacteroidia and Clostridia and a lessening in Bacilli and Erysipelotrichia compared with the blank group; in contrast, the intervention group showed restoration in Bacteroidia and Erysipelotrichia to levels approaching those of the blank group, accompanied by elevated relative abundance of Clostridia and Alphaproteobacteria. At the order level (Figure 8C), the model group demonstrated an elevated proportion of Bacteroidales, and a decreased proportion of Erysipelotrichales and Lactobacillales compared with the blank group; conversely, the intervention group restored the proportions of Bacteroidales and Erysipelotrichales to levels approaching those of the blank group, accompanied by an elevated relative abundance of Clostridiales. At the family level (Figure 8D), the model group presented a growth in Odoribacteraceae, Peptostreptococcaceae, Rikenellaceae, and Tannerellaceae, and a decrease in Erysipelotrichaceae, Lactobacillaceae, Muribaculaceae, and Ruminococcaceae compared with the blank group; in contrast, the intervention group downregulated the proportions of Odoribacteraceae and Peptostreptococcaceae compared with the model group; restored the proportions of Erysipelotrichaceae and Ruminococcaceae to levels approaching those of the blank group, accompanied by an elevated relative abundance of Lachnospiraceae. At the genus level (Figure 8E), the model group exhibited an upward trend in Odoribacter, Paeniclostridium, Alistipes, Parabacteroides, and Clostridioides, and a decrease trend in Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroides, and Muribaculum compared with the blank group; notably, the intervention group downregulated the proportions of Odoribacter, Clostridioides, and Paeniclostridium compared with the model group; restored the proportions of Faecalibaculum and Ruminococcus to levels approaching those of the blank group; and increased the relative abundance of Lachnoclostridium, Sphingomonas, Flavonifractor, and Blautia. At the species level (Figure 8F), the model group showed an increase in Odoribacter splanchnicus, Clostridioides difficile, and Paeniclostridium sordellii, and a decrease in Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale compared with the blank group; in contrast, the intervention group downregulated the proportion of Odoribacter splanchnicus and Clostridioides difficile compared with the model group; restored the proportions of Faecalibaculum rodentium, and Muribaculum intestinale, accompanied by elevated relative abundance of Lachnoclostridium phocaeense, and Flavonifractor plautii. Collectively, these findings indicate that QMG restored gut microbial composition across multiple taxonomic levels, shifting the community structure toward a homeostatic state.
The results of the Alpha diversity and Beta diversity
As indicated by the Alpha diversity results (Figure 9A), the intervention group exhibited the highest Chao1, PD, Simpson, and Shannon indices, while the model group displayed the lowest, with the blank group showing intermediate levels. These findings underscore the detrimental impact of DR on gut microbiota diversity and demonstrate that QMG intervention effectively restores and enhances microbial richness and evenness in DR mice.
As indicated by the Beta diversity representative results (Figure 9B,C), the principal coordinates analysis (PCoA) plots revealed a distinct separation of microbial communities across the three groups, which was statistically supported by the Permutational Multivariate Analysis of Variance (PERMANOVA). Specifically, the Bray-Curtis-based analysis indicated a significant structural divergence (PERMANOVA: R2 = 0.67, P < 0.001), suggesting that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. Consistent with this, the analysis based on Weighted unique fraction (UniFrac) distance, which incorporates phylogenetic relationships between taxa, further confirmed the significant community shift (PERMANOVA: R2 = 0.58, P < 0.01).
As displayed by the Beta diversity results (Figure 9D), the non-metric multidimensional scaling (NMDS) ordination plot demonstrated a clear spatial clustering of samples according to the respective groups, with a stress value of 0.04. Given that a stress value below 0.05 is generally considered to represent an excellent representation of the community structure in a reduced-dimensional space, these results collectively suggest that the QMG intervention significantly altered the global composition of the gut microbiota.
The results of the differential abundance analysis
According to the linear discriminant analysis effect size (LEfSe) analysis (Figure 9E), the results revealed that Clostridia, Clostridiales, Lachnospiraceae, and Lachnoclostridium were remarkably enriched in the intervention group, whereas Odoribacteraceae, Odoribacter, Peptostreptococcaceae, and Paeniclostridium were notably enriched in the model group. Therefore, the above gut microbiota might be the primary differential microbiota responsible for the intergroup differences between the model and intervention groups.
The results of community function prediction
The predicted functional profiles at Level 2 and Level 3 showed distinct clustering patterns across the three groups (Figure 9F,G). Specifically, compared with the blank group, the model group exhibited a significant deviation in the relative abundance of metabolic pathways. Notably, this functional perturbation in the model group was largely ameliorated in the intervention group. The functional composition of the intervention group showed a substantial shift back towards the profile observed in the blank group, indicating that the QMG intervention effectively modulated the gut microbial functional structure. These results suggest that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state.
QMG modulates the gut–retina axis by coupling systemic inflammation and key regulatory proteins
Associations at global levels
At the kingdom level (Figure 10A–C), QMG improved the CMKLR1-centered network mainly by modulating Bacteria along the gut-retina axis. Specifically, Bacteria positively correlated with retinal PPAR-γ in the blank group (P < 0.01), but this association was not observed in the model group. Following QMG intervention, bacterial abundance positively correlated with retinal CMKLR1 and Wnt5a yet negatively correlated with colonic TP53 and PPAR-γ (P < 0.01).
At the phylum level (Figure 10D–F), QMG improved the CMKLR1-centered network mainly by modulating Candidatus and Bacteroidetes along the gut-retina axis. Specifically, the positive correlation between Candidatus and colonic CMKLR1 observed in the blank group was lost following DR induction, but was restored by QMG intervention, which was accompanied by a negative correlation with serum IL-1β and TNF-α, while positively correlated with retinal PPAR-γ, AP-1, TP53, colonic AP-1, and serum IL-6 (P < 0.01). Proteobacteria in the model group negatively correlated with colonic CMKLR1 (P < 0.01), a trend that persisted following QMG intervention. Meanwhile, Firmicutes were positively correlated with retinal CMKLR1 in the model group, whereas Bacteroidetes and Tenericutes were negatively correlated with retinal CMKLR1 (P < 0.01). Following QMG intervention, Bacteroidetes shifted to positive correlations with retinal PPAR-γ, AP-1, TP53, and colonic CMKLR1 (P < 0.01). Additionally, Actinobacteria positively correlated with retinal CMKLR1 and Wnt5a (P < 0.01).
At the class level (Figure 10G–I), QMG improved the CMKLR1-centered network mainly by regulating Cytophagia and Bacteroidia along the gut-retina axis. Specifically, Cytophagia and Chitinophagia negatively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Cytophagia, Bacteroidia, and Mollicutes negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriia and Epsilonproteobacteria, yet negatively with Tissierellia, Alphaproteobacteria, Clostridia, and Bacilli (P < 0.01). Following QMG intervention, Bacteroidia and Cytophagia positively correlated with colonic CMKLR1, retinal PPAR-γ, AP-1, TP53, colonic AP-1 and serum IL-6, whereas Mollicutes, Deltaproteobacteria, Alphaproteobacteria, and Gammaproteobacteria showed the opposite pattern (P < 0.01). Moreover, Chlamydiia, Actinobacteria, Tissierellia, Bacilli, and Negativicute negatively correlated with retinal CMKLR1 and Wnt5a, while Coriobacteriia exhibited the reverse correlation (P < 0.01).
At the order level (Figure 10J–L), QMG improved the CMKLR1-centered network mainly by modulating Bacteroidales, Bacillales, and Clostridiales along the gut–retina axis. Specifically, Cytophagales and Chitinophagales negatively correlated with retinal CMKLR1, whereas Marinilabiliales positively correlated with colonic CMKLR1 in the blank group (P < 0.01). In the model group, Mycoplasmatales, Cytophagales, Bacteroidales, and Marinilabiliales negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriales and Campylobacterales, yet negatively with Tissierellales, Bacillales, Sphingomonadales, Clostridiales, and Lactobacillales (P < 0.01). Following QMG intervention, Bacteroidales and Clostridiales positively correlated with colonic CMKLR1, AP-1, retinal PPAR-γ, AP-1, TP53, and serum IL-6, whereas Desulfovibrionales, Rhizobiales, Sphingomonadales, and Enterobacterales showed the opposite pattern (P < 0.01). Moreover, Eggerthellales and Coriobacteriales positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Chlamydiales, Thermoanaerobacterales, Corynebacteriales, Tissierellales, and Bacillales exhibited the reverse correlation (P < 0.01).
Associations at Fine levels
At the family level (Figure 11A–C), QMG improved the CMKLR1-centered network primarily by modulating Lachnospiraceae, Bacteroidaceae, and Lactobacillaceae along the gut–retina axis. Specifically, Ruminococcaceae negatively correlated with retinal CMKLR1, whereas Lachnospiraceae positively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Peptostreptococcaceae positively correlated with retinal CMKLR1, while Tannerellaceae, Bacteroidaceae, Odoribacteraceae, and Lachnospiraceae showed the opposite pattern (P < 0.01). Meanwhile, colonic CMKLR1 positively correlated with Marinilabiliaceae, Rikenellaceae, and Flavobacteriaceae, yet negatively with Lachnospiraceae and Lactobacillaceae (P < 0.01). Following QMG intervention, Enterobacteriaceae, Sphingomonadaceae, and Oscillospiraceae negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Peptococcaceae, Bacteroidaceae, Muribaculaceae, and Rikenellaceae showed the opposite pattern (P < 0.01). Moreover, Veillonellaceae, Peptostreptococcaceae, Lactobacillaceae, and Ruminococcaceae negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Eggerthellaceae, Lachnospiraceae, and Hungateiclostridiaceae exhibited the reverse correlation (P < 0.01).
At the genus level (Figure 11D–F), QMG improved the CMKLR1-centered network primarily by modulating Lachnoclostridium, Clostridioides, and Bacteroides along the gut–retina axis. Specifically, Ruminococcus negatively correlated with retinal CMKLR1, whereas Lachnoclostridium showed the opposite pattern in the blank group (P < 0.01). In the model group, Lactobacillus and Sphingomonas negatively correlated with colonic CMKLR1, while Alistipes and Croceibacter positively correlated with colonic CMKLR1 (P < 0.01). Meanwhile, retinal CMKLR1 positively correlated with Paeniclostridium and Clostridioides, yet negatively with Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter, and Lachnoclostridium (P < 0.01). Following QMG intervention, Sphingomonas and Oscillibacter negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Bacteroides, Muribaculum, and Alistipes showed the opposite pattern (P < 0.01). Moreover, Dialister, Flavonifractor, Clostridioides, Ruminococcus, and Paeniclostridium negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Pseudoclostridium, Lachnoclostridium, and Blautia exhibited the reverse correlation (P < 0.01).
At the species level (Figure 11G–I), QMG improved the CMKLR1-centered network primarily by modulating Clostridioides difficile, Alistipes shahii, and Paeniclostridium sordellii along the gut–retina axis. Specifically, Ruminococcus bicirculans and endosymbiont 'TC1' of Trimyema compressum negatively correlated with retinal CMKLR1, whereas Lactobacillus fermentum and Lactobacillus helveticus displayed the opposite pattern in the blank group (P < 0.01). In the model group, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii, and Alistipes shahii positively correlated with colonic CMKLR1, while Sphingomonas panacis, Paeniclostridium sordellii, Clostridioides difficile, and Lactobacillus murinus positively correlated with retinal CMKLR1, yet Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii, and Intestinimonas butyriciproducens showed the opposite pattern (P < 0.01). Following QMG intervention, Alistipes shahii and Muribaculum intestinale positively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while negatively correlating with serum IL-1β and TNF-α, whereas Sphingomonas panacis, Oscillibacter sp. PEA192, and Oscillibacter valericigenes exhibited the reverse pattern (P < 0.01). Moreover, Pseudoclostridium thermosuccinogenes, Lachnoclostridium phocaense, Bacteroides salanitronis, and Blautia sp. N6H1-15 positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Paeniclostridium sordellii, Flavonifractor plautii, endosymbiont 'TC1' of Trimyema compressum, Clostridioides difficile, and Dialister pneumosintes showed the reverse correlation (P < 0.01). The detailed correlation results at kingdom, phylum, class, order, family, genus, and species levels are presented in Supplementary File 1.
DATA AVAILABILITY:
The 16S rDNA sequencing datasets generated and analyzed during the current study are available in the National Center for Biotechnology Information (NCBI) Sequence Read Archive (SRA) repository under the BioProject accession number: PRJNA1281561. All other data generated or analyzed during this study are included in this article.
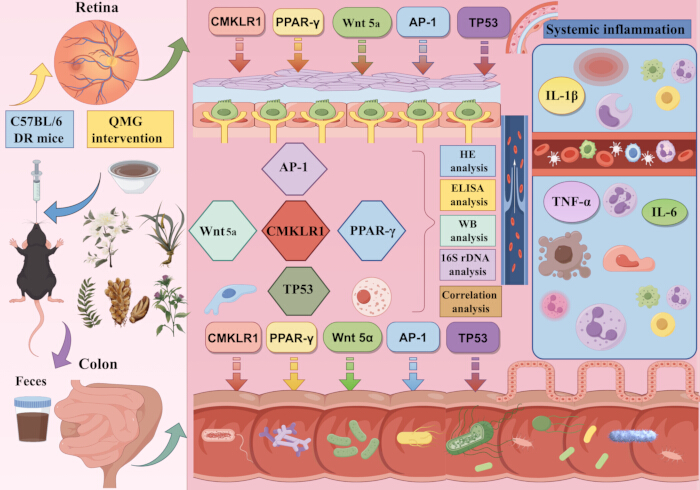
Figure 1: Graphical abstract. The graphical abstract shows the process of this study. Please click here to view a larger version of this figure.
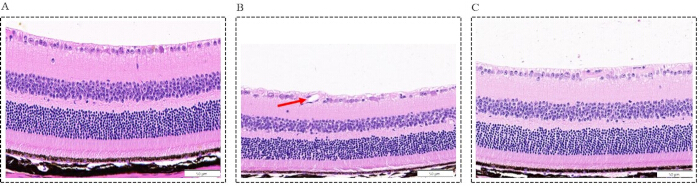
Figure 2: Morphological changes in the retina across the three groups (Scale bar = 50 µm, Magnification: ×400). (A) Blank group: representative photomicrographs of hematoxylin-eosin (HE)-stained retinal sections, showing an intact, well-organized retinal architecture with neatly arranged cellular layers; (B) Model group: representative photomicrographs of HE-stained retinal sections, showing marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in retinal ganglion cell (RGC) counts (P < 0.0001), pronounced thinning of the retinal thickness (P < 0.0001), and neovascular tufts penetrating the inner limiting membrane (indicated by a red arrow); (C) Intervention group: representative photomicrographs of HE-stained retinal sections, showing significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001), and restoration of retinal thinning (P < 0.01). Please click here to view a larger version of this figure.
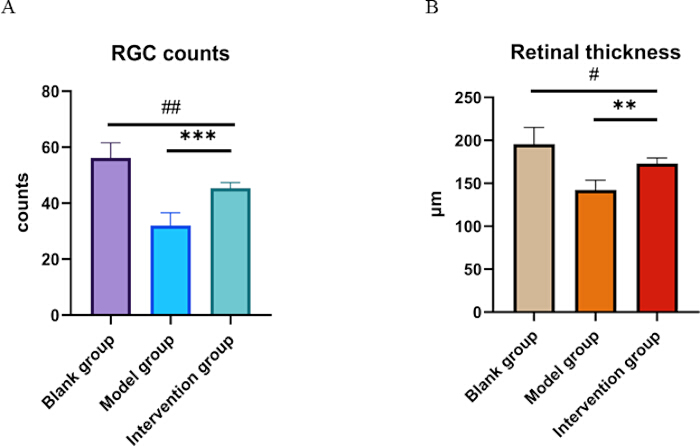
Figure 3: Histological quantification of RGC counts and retinal thickness. (A) Quantification of RGC counts in the ganglion cell layer. (B) Measurement of total retinal thickness (µm). Data are shown as mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01; compared with the model group: **P <0.01, ***P <0.001. Please click here to view a larger version of this figure.
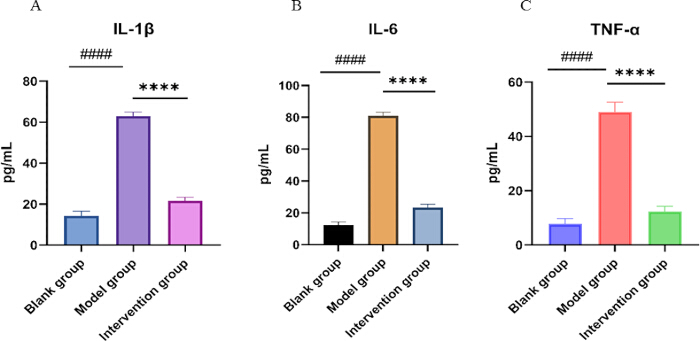
Figure 4: Serum concentrations of inflammatory cytokines in the three groups. Bar charts showing ELISA‑based quantification of serum IL‑1β (A), IL‑6 (B), and TNF‑α (C) levels in the blank control, model group, and intervention groups. Data are expressed as mean ± SD (n = 6 per group). Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001. Please click here to view a larger version of this figure.
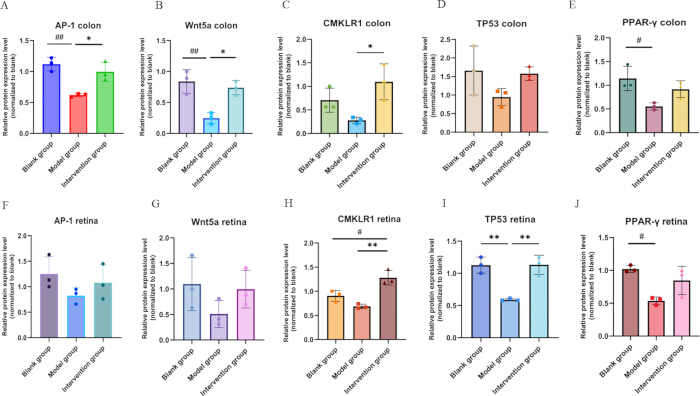
Figure 5: Bar chart of the expression levels of key regulatory proteins in the retina and colon. (A) Relative protein expression level (normalized to blank) of AP-1 in the colon (n = 3); (B) Relative protein expression level (normalized to blank) of Wnt5a in the colon (n = 3); (C) Relative protein expression level (normalized to blank) of CMKLR1 in the colon (n = 3); (D) Relative protein expression level (normalized to blank) of TP53 in the colon (n = 3); (E) Relative protein expression level (normalized to blank) of PPAR-γ in the colon (n = 3); (F) Relative protein expression level (normalized to blank) of AP-1 in the retina (n = 3); (G) Relative protein expression level (normalized to blank) of Wnt5a in the retina (n = 3); (H) Relative protein expression level (normalized to blank) of CMKLR1 in the retina (n = 3); (I) Relative protein expression level (normalized to blank) of TP53 in the retina (n = 3); (J) Relative protein expression level (normalized to blank) of PPAR-γ in the retina (n = 3). Compared with the blank group: #P < 0.05, ##P < 0.01; compared with the model group: *P < 0.05, **P < 0.01. Please click here to view a larger version of this figure.
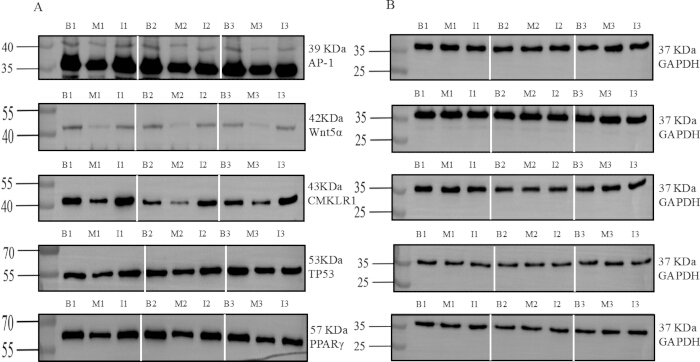
Figure 6: Representative WB grayscale blots of key regulatory proteins in the colon. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped Western blot (WB) images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
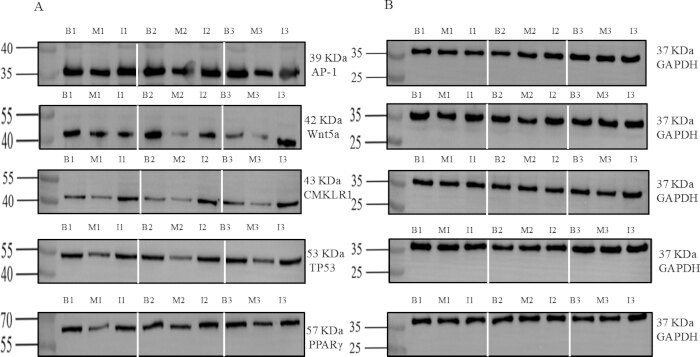
Figure 7: Representative WB grayscale blots of key regulatory proteins in the retina. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped WB images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
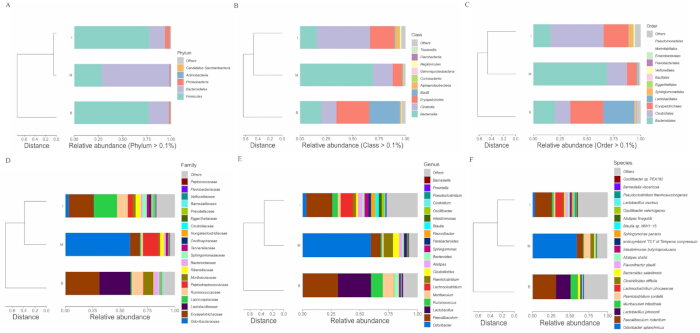
Figure 8: Hierarchical clustering of gut microbiota composition at different levels. Hierarchical clustering dendrogram based on Bray-Curtis dissimilarity among the blank control (B), model group(M), and intervention group (I). The branch length represents the degree of structural divergence. Stacked bar chart depicting the relative abundances of dominant phyla across the three groups. Phyla falling below the threshold are aggregated as “Others”. (A) Qiming granule (QMG) rebalances the gut microbiota composition at the phylum level; (B) QMG rebalances the gut microbiota composition at the class level; (C) QMG rebalances the gut microbiota composition at the order level; (D) QMG rebalances the gut microbiota composition at the family level; (E) QMG rebalances the gut microbiota composition at the genus level; (F) QMG rebalances the gut microbiota composition at the species level. Abbreviation: B, blank group; M, model group; I, intervention group. Please click here to view a larger version of this figure.
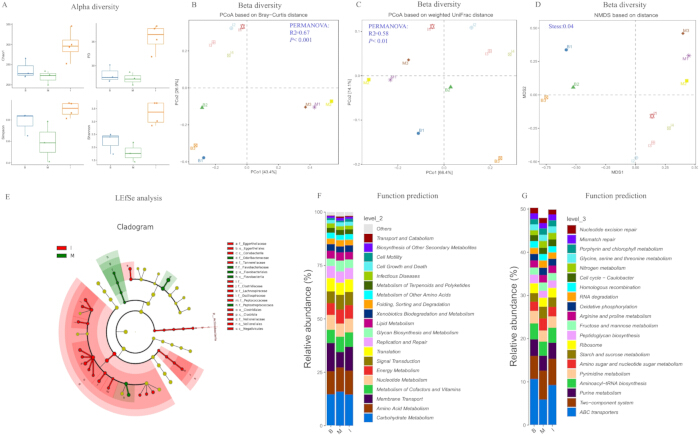
Figure 9: Analysis of gut microbiota diversity, differential abundance, and predicted functional pathways. (A) Alpha diversity analysis assessed by Chao1, PD, Simpson, and Shannon indices revealed that the intervention group exhibited higher microbial diversity than the model group, indicating that QMG treatment effectively restores gut microbial richness and evenness. (B) Beta diversity analysis assessed by principal coordinates analysis (PCoA) based on Bray-Curtis distance revealed significant differences among groups (PERMANOVA: R2=0.67, P < 0.001), indicating that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. (C) Beta diversity analysis assessed by PCoA based on weighted unique fraction (UniFrac) distance further confirmed the significant community shift (PERMANOVA: R2= 0.58, P < 0.01). (D) Beta diversity analysis assessed by non-metric multidimensional scaling (NMDS) ordination demonstrated a stress value of 0.04, suggesting that the QMG intervention significantly altered the global composition of the gut microbiota. (E) Cladogram of differential abundance analysis assessed by linear discriminant analysis effect size (LEfSe) revealed the primary differential microbiota between the model and intervention groups. Functional prediction of the gut microbiota at KEGG Level 2 (F) and KEGG Level 3 (G) suggested that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state. Please click here to view a larger version of this figure.
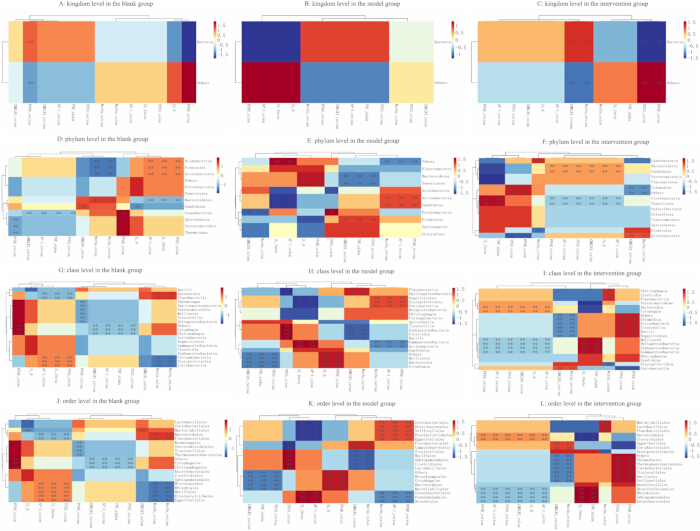
Figure 10: Global association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at kingdom level in the blank group; (B) Association of gut microbiota at kingdom level in the model group; (C) Association of gut microbiota at kingdom level in the intervention group; (D) Association of gut microbiota at phylum level in the blank group; (E) Association of gut microbiota at phylum level in the model group; (F) Association of gut microbiota at phylum level in the intervention group; (G) Association of gut microbiota at class level in the blank group; (H) Association of gut microbiota at class level in the model group; (I) Association of gut microbiota at class level in the intervention group; (J) Association of gut microbiota at order level in the blank group; (K) Association of gut microbiota at order level in the model group; (L) Association of gut microbiota at order level in the intervention group. Please click here to view a larger version of this figure.
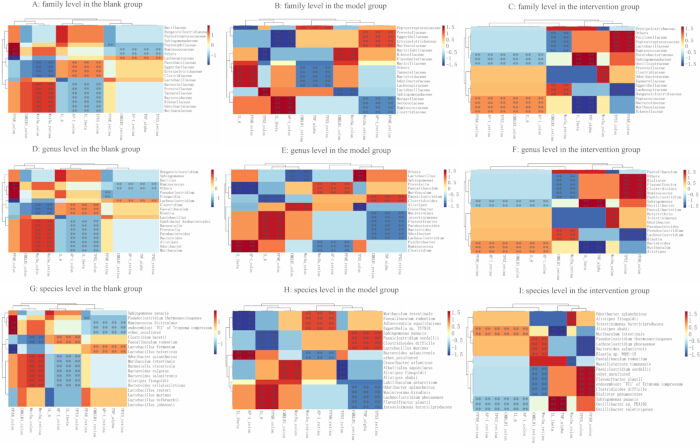
Figure 11: Fine association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at the family level in the blank group; (B) Association of gut microbiota at the family level in the model group. (C) Association of gut microbiota at family level in the intervention group; (D) Association of gut microbiota at genus level in the blank group; (E) Association of gut microbiota at genus level in the model group; (F) Association of gut microbiota at genus level in the intervention group; (G) Association of gut microbiota at species level in the blank group; (H) Association of gut microbiota at species level in the model group;(I) Association of gut microbiota at species level in the intervention group. Please click here to view a larger version of this figure.
| Groups (n = 6) | RGCs counts | Retinal thickness |
| Blank group | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| Model group | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| Intervention group | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
Table 2: Quantitative analysis of RGC counts and retinal thickness in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01, ####P <0.0001; compared with the model group: **P <0.01, ***P <0.001.
| Groups (n = 6) | IL-1β | IL-6 | TNF-α |
| Blank group | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| Model group | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| Intervention group | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
Table 3: Serum expression levels of IL-1β, IL-6, and TNF-α in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Cytokine concentrations were determined by enzyme‑linked immunosorbent assay (ELISA) and are reported in pg/mL. Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001.
Supplementary Figure 1: Experimental Design and Study Timeline. Schematic overview of the experimental design.Please click here to download this file.
Supplementary Figure 2: Original, full-length, uncropped WB images corresponding to Figure 6 and Figure 7. Raw images without modification contain all molecular weight markers in colon and retina blots for AP-1, Wnt5a, TP53, CMKLR1, PPAR-γ, and loading control GAPDH. Molecular weight markers (kDa) are indicated. Lanes are labeled: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2(Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). The original blots were not subjected to high-contrast adjustments.Please click here to download this file.
Supplementary File 1: Detailed correlation analyses of gut microbiota with inflammatory and regulatory factors.Please click here to download this file.
Discusión
La retinopatía diabética (DR) es una complicación neurovascular compleja provocada por hiperglucemia crónica, inflamación y desregulación metabólica22. La Academia Americana de Oftalmología clasifica la DR en retinopatía diabética no proliferativa y retinopatía diabética proliferativa, caracterizada por el inicio de la neovascularización23. Dadas las limitaciones de las estrategias terapéuticas actuales, explorar mecanismos novedosos se ha convertido en una dirección prometedora para abordar la DR. En particular, avances recientes han identificado el eje intestino-retina como un objetivo terapéutico crítico, aunque poco explotado, para la DR. El eje intestino-retina, que fue introducido y descrito por primera vez por Sheldon Rowan en 20176, ha ganado popularidad en los procesos fisiopatológicos de las enfermedades oculares. Sin embargo, los mecanismos moleculares específicos que subyacen al papel del eje intestino-retina en la patogénesis y progresión de la DR aún no están claros, lo que dificulta el desarrollo y la aplicación clínica de estrategias terapéuticas dirigidas a este eje.
En este estudio, evaluamos sistemáticamente la eficacia y los mecanismos subyacentes de QMG frente a la DR. Estos hallazgos proporcionan evidencia preliminar de que QMG alivia el daño histopatológico retiniano, suprime la inflamación sistémica, restablece la homeostasis de la microbiota intestinal y modula bidireccionalmente proteínas reguladoras clave (la red reguladora centrada en CMKLR1) tanto en el colon como en la retina, estableciendo así a QMG como un posible modulador del eje intestino-retina. La inflamación sistémica crónica de bajo grado es una característica distintiva de la DM y un factor principal que impulsa el daño microvascular retiniano y la progresión de la DR24. Los resultados del ELISA demostraron que los niveles séricos de IL-1β, IL-6 y TNF-α estaban significativamente elevados en ratones modelo de DR (P < 0,0001), confirmando la presencia de una respuesta inflamatoria sistémica intensa en el estado de DR. La liberación descontrolada de estas citocinas puede alterar la barrera hematorretiniana, promover la apoptosis de las células ganglionares de la retina (RGC) e inducir neovascularización patológica. Tras la intervención con QMG, los niveles de estas citocinas se redujeron significativamente (P < 0,0001), mientras que se restableció la integridad estructural de la retina, aumentó la supervivencia de las RGC y se preservó el grosor retiniano. Estos resultados indican que los efectos protectores de QMG sobre la retina están estrechamente asociados con su potente actividad antiinflamatoria sistémica. Cabe destacar que este efecto antiinflamatorio sistémico no ocurre de forma aislada, sino que va acompañado de la modulación de la microbiota intestinal y del restablecimiento de proteínas reguladoras clave en el colon mediados por QMG, lo que sugiere que QMG podría ejercer sus efectos terapéuticos a través de un eje «intestino-inflamación sistémica-retina».
Para elucidar más a fondo el mecanismo molecular mediante el cual QMG ejerce sus efectos anti-DR a lo largo del eje intestino-retina, se examinó la expresión proteica de la red reguladora centrada en CMKLR1 (incluyendo CMKLR1, Wnt5a, TP53, AP-1 y PPAR-γ) en tejidos tanto colónicos como retinianos. Los resultados mostraron que tras la inducción del modelo de DR, las cinco proteínas presentaron una tendencia decreciente consistente tanto en el colon como en la retina, lo que sugiere que la comunicación señalética entre el intestino y la retina podría estar bloqueada sistémicamente bajo condiciones de DR. Tras la intervención con QMG, CMKLR1 se reguló significativamente al alza en el colon y en la retina (P < 0,05 y P < 0,01), lo que indica que QMG podría restaurar la comunicación bidireccional a lo largo del eje intestino-retina mediante la activación sistémica de CMKLR1. Además, QMG restauró significativamente la expresión de AP-1 y Wnt5a en el colon, así como la expresión de TP53 en la retina, lo que sugiere que diferentes proteínas podrían desempeñar funciones específicas según el tejido a lo largo del eje: AP-1 y Wnt5a son respuestas más sensibles a QMG en el colon, mientras que TP53, como regulador de la apoptosis, desempeña un papel más crítico en la neuroprotección retiniana. Un análisis de correlación adicional reveló que la expresión colónica de AP-1, CMKLR1, PPAR-γ y Wnt5a se correlacionó negativamente de manera significativa con los niveles sistémicos de citocinas inflamatorias (IL-1β, IL-6, TNF-α) (P < 0,05 a P < 0,001), mientras que no se observó ninguna correlación directa entre las citocinas séricas y la expresión proteica retiniana. Esta discrepancia tiene implicaciones mecanicistas importantes: QMG podría actuar principalmente sobre el microentorno intestinal al restaurar la expresión de proteínas reguladoras clave en el colon, suprimiendo así la inflamación sistémica; en contraste, la recuperación de las proteínas retinianas podría lograrse mediante vías indirectas, como la translocación de metabolitos derivados de la microbiota intestinal hacia la circulación, que luego regulan a distancia las cascadas de señalización retinianas, en lugar de estar mediadas directamente por factores inflamatorios sistémicos. Este hallazgo respalda un modelo regulador axial «intestino-inflamación sistémica-retina» y proporciona evidencia mecanicista clave sobre el efecto terapéutico de QMG sobre la DR a través del eje intestino-retina. Entre los objetivos estudiados, CMKLR1 mostró alteraciones significativas tanto en tejidos retinianos como colónicos, emergiendo como un posible biomarcador primario que vincula el eje intestino-retina. En estudios previos se ha implicado a CMKLR1 en el metabolismo de glucolípidos, la gravedad de la DR y la modulación de la microbiota intestinal25,26,27,28,29,30, lo que sugiere que su expresión diferencial a lo largo del eje intestino-retina podría reflejar su participación en múltiples procesos patológicos. Estos hallazgos posicionan a CMKLR1 como un candidato prometedor como biomarcador para el diagnóstico y la intervención terapéutica de la DR, lo que justifica una validación mecanicista adicional.
Aunque CMKLR1 actúa como un nodo central en el eje intestino-retina, el efecto terapéutico de QMG se logra a través de una red reguladora multidimensional en la que Wnt5a, TP53, AP-1 y PPAR-γ proporcionan un apoyo sinérgico esencial. La señalización Wnt es fundamental para la homeostasis del epitelio intestinal y la salud del colon, incluyendo sus funciones en la integridad epitelial, la modulación de la inflamación y la protección de la mucosa mediada por la microbiota31,32,33,34. PPAR-γ regula las respuestas inflamatorias y se ha demostrado que inhibe los fagocitos activados por lípidos en la DR y promueve la supervivencia de los fotorreceptores mediante la modulación de la microglía35,36,37. AP-1 actúa como un factor de transcripción a través del cual los metabolitos microbianos intestinales, como el ácido desoxicólico, influyen en la homeostasis inflamatoria e inmunitaria38,39,40,41. TP53 participa en la autofagia, la apoptosis y la lesión neuronal retiniana bajo condiciones de hiperglucemia42,43,44,45. En conjunto, estos nodos de señalización forman una red interconectada que vincula la dinámica microbiana intestinal con la patología retiniana, lo que nos lleva a investigar si QMG modula esta red a lo largo del eje intestino-retina.
Un mecanismo fundamental mediante el cual se regula la inflamación sistémica se origina en el ecosistema intestinal. El análisis de secuenciación del ADNr 16S reveló una disbiosis estructural inducida por la diabetes en el grupo modelo, caracterizada por un desequilibrio significativo en la proporción de Firmicutes/Bacteroidetes, un enriquecimiento de taxones potencialmente patógenos (por ejemplo, Odoribacter y Clostridioides) y una disminución de taxones beneficiosos (por ejemplo, Lactobacillus y Faecalibaculum). Notablemente, el tratamiento con QMG actuó como un agente restaurador de la microbiota para revertir estas alteraciones patológicas mediante: (i) Restauración de la homeostasis microbiana: normalización de las proporciones de familias y géneros clave (Faecalibaculum, Ruminococcus, Erysipelotrichaceae) hacia la línea base del grupo control; (ii) Modulación dirigida de patobiontes: regulación negativa del sobrecrecimiento asociado a la diabetes de Odoribacter splanchnicus y Clostridioides difficile; (iii) Promoción del ensamblaje de comunidades beneficiosas: inducción de la proliferación de taxones productores de metabolitos o con propiedades antiinflamatorias, tales como Lachnoclostridium, Blautia y Flavonifractor plautii. Además, los análisis de diversidad y el análisis de correlación de Spearman a múltiples niveles indicaron que la intervención con QMG reequilibra eficazmente la composición central a múltiples niveles de forma que favorece interacciones protectoras entre el hospedador y los microorganismos a lo largo del eje intestino–retina. Este resultado no solo confirma el efecto regulador de QMG sobre la microbiota intestinal, sino que también revela una estrategia terapéutica potencial mediante la cual QMG coordina la remodelación de la microbiota con la actividad de proteínas reguladoras clave (por ejemplo, IL-6, TP53) para suprimir conjuntamente la inflamación sistémica y aliviar así la retinopatía diabética.
Estudios recientes han verificado que la medicina tradicional china ejerce una regulación multitarget sobre el eje microbiota-metabolismo-inmunidad, lo que la distingue de los fármacos de un solo blanco46. Evidencia acumulada ha demostrado el potencial terapéutico de QMG en la retinopatía diabética y en condiciones oculares relacionadas. Un ensayo controlado aleatorizado multicéntrico mostró que QMG redujo significativamente el tiempo de circulación arteriovenosa retiniana en pacientes con retinopatía diabética, lo que sugiere una mejora en el flujo sanguíneo retiniano y en la hipoxia47. Metaanálisis confirmaron además que QMG combinado con el tratamiento convencional mejoró significativamente el grosor macular central, la agudeza visual y la tasa efectiva general en el edema macular diabético48, y también prolongó el tiempo de ruptura de la película lagrimal y aumentó la secreción lagrimal en pacientes con ojo seco49. En pacientes con lesión nerviosa asociada a retinopatía diabética no proliferativa, QMG demostró no inferioridad frente al dobesilato de calcio en la preservación del grosor de la capa de fibras nerviosas retinianas y del área de la zona avascular foveal50. Estudios mecanicistas han revelado que QMG protege contra el daño retiniano mediante múltiples vías, incluyendo la inhibición de la piroptosis de las células de Müller y la inflamación inmune a través de la vía P2X7R/NLRP351, la activación de la vía de señalización PI3K/Akt para reducir la apoptosis y la modulación de las proteínas de unión estrecha para preservar la integridad de la barrera hematorretiniana52. Análisis de farmacología de redes han identificado múltiples compuestos bioactivos en QMG que actúan sinérgicamente sobre dianas relacionadas con la retinopatía diabética16, y estudios clínicos no han reportado eventos adversos graves, lo que indica un perfil de seguridad favorable50. La eficacia terapéutica de QMG se atribuye a las acciones sinérgicas de sus componentes activos, incluyendo quercetina, kaempferol, isorhamnetina, formononetina y β‑sitosterol, que conjuntamente ejercen efectos antiinflamatorios, antioxidantes y antiapoptóticos al actuar sobre IL‑6, TNF‑α, TP53 y AP‑153,54,55,56,57,58,59. El presente estudio amplía este conocimiento al demostrar que los efectos protectores de QMG también están mediados por la modulación del eje intestino-retina, específicamente mediante la restauración de la homeostasis de la microbiota intestinal y la regulación de la red molecular centrada en CMKLR1 para suprimir la inflamación sistémica y aliviar el daño retiniano.
Se deben señalar varias limitaciones de este estudio que requieren una mayor investigación en futuras investigaciones. En primer lugar, la relación causal entre las alteraciones microbianas intestinales y las mejoras funcionales en la retina necesita una validación adicional. Aunque se observaron fuertes correlaciones entre la reestructuración de la microbiota inducida por QMG y los fenotipos protectores retinianos, experimentos de inferencia causal directa, como el trasplante de microbiota fecal, modelos animales libres de gérmenes o la depleción de microbiota inducida por antibióticos, serían valiosos para confirmar esta relación en estudios futuros. En segundo lugar, se utilizó la secuenciación de 16S rDNA para caracterizar la composición microbiana, lo cual proporciona una resolución taxonómica adecuada a nivel de género y superiores, pero tiene una capacidad limitada para ofrecer información funcional a nivel de cepa o el potencial metabólico preciso. En estudios posteriores se realizarán análisis de secuenciación metagenómica o metabolómica para identificar las principales vías funcionales microbianas reguladas por QMG. En tercer lugar, los cambios microbianos solo se evaluaron al final del experimento, lo que impide un seguimiento dinámico de la evolución temporal de la reconstrucción de la microbiota durante la intervención con QMG. El muestreo longitudinal en futuros estudios ayudará a delinear la cinética de la remodelación microbiana inducida por QMG y su relación temporal con la protección retiniana. En cuarto lugar, aunque el análisis histopatológico reveló adelgazamiento retiniano, pérdida de células ganglionares retinianas (RGC) y brotes de neovasos, estudios futuros deberían explorar protocolos de inyección múltiple de STZ y modelos diabéticos genéticos, así como proporcionar una caracterización más completa del fenotipo de la retinopatía diabética (DR).
En resumen, este estudio demuestra que QMG mejora la DR al acoplar la red molecular centrada en CMKLR1 con la inflamación sistémica a través del eje intestino–retina. El mecanismo de acción de QMG se manifiesta en tres niveles: a nivel microbiano, QMG revierte la disbiosis intestinal inducida por la diabetes (por ejemplo, restaura la relación Firmicutes/Bacteroidetes, suprime Odoribacter y Clostridioides, y promueve bacterias beneficiosas como Faecalibaculum); a nivel molecular, QMG regula la vía CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 y alivia la inflamación sistémica; a nivel tisular, QMG protege la morfología retiniana. Estos hallazgos respaldan a QMG como una estrategia terapéutica prometedora a través del eje intestino–retina para la DR y proporcionan una base mecanicista para la aplicación de la MTC en el tratamiento de complicaciones diabéticas.
Divulgaciones
Los autores declaran que no tienen intereses financieros competitivos conocidos ni relaciones personales que pudieran haber parecido influir en el trabajo descrito en este artículo.
Agradecimientos
El autor desea reconocer a todos los miembros de su equipo que brindaron un gran apoyo y asistencia para llevar a cabo esta investigación.
Esta investigación fue financiada por la Fundación Nacional de Ciencias Naturales de China (número de beca: 82474580) y por el Proyecto de Exploración Libre de la Fundación del Hospital del Hospital de la Universidad de Medicina Tradicional China de Chengdu (n.º 23ZYTS1601).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Anticuerpo monoclonal AP-1 | Proteintech | 66313-1-IG | 1:5000 |
| Anticuerpo policlonal CMKLR1 | Affinity | AF5291 | 1:1000 |
| Anticuerpo policlonal GAPDH | Affinity | AF7021 | 1:5000 |
| GoatAnti-Mouse IgG(H+L) HRP | MULTI SCIENCES | GAM0072 | 1:10000 |
| GoatAnti-Rabbit IgG(H+L) HRP | MULTI SCIENCES | GAR0072 | 1:10000 |
| GraphPad Prism | / | versión 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., Rockville, MD, USA | versión 6.0 | |
| Plataforma Luoning Bio-Cloud | http://www.biomediv.cn/login.html | ||
| Kit ELISA de IL-1β (interleucina 1 beta) de ratón | Elabscience | E-EL-M0037 | Detección de citocinas en suero |
| Kit ELISA de IL-6 (interleucina-6) de ratón | Elabscience | E-EL-M0044 | Detección de citocinas en suero |
| Kit ELISA de TNF-α (factor de necrosis tumoral alfa) de ratón | Elabscience | E-EL-M3063 | Detección de citocinas en suero |
| NanoFilt | / | versión 2.7.1 | |
| Secuenciador Nanopore GridION | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | Escáner 3DHISTECH Pannoramic SCAN | https://www.3dhistech.com/scanners/pannoramic-scan-ii-digital-scanner/ | |
| Anticuerpo policlonal PPAR gamma (PPAR-γ) | ImmunoWay | bs-0530R | 1:1000 |
| Python | / | versión 3.7.4 | |
| Granulado Qiming | Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. | Número de aprobación nacional chino de medicamento Z20090036 | 0,9 g/kg, por gavaje oral |
| Lenguaje de programación R | / | versión 4.0.3 | |
| Base de datos SILVA | / | versión 138 | |
| Estreptozotocina (STZ) | Sigma-Aldrich | S0130 | 35 mg/kg, i.p. |
| Anticuerpo policlonal TP53 | Abcam | ab131442 | 1:1000 |
| Usearch | / | versión 10.0.240 | |
| Anticuerpo policlonal Wnt5a | Proteintech | 55184-1-AP | 1:1000 |
| Kit Zymo Research BIOMICS DNA Microprep | Zymo Research | D4301 | Extracción de ADN genómico fecal |
Referencias
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.