La expresión de LINC00707 en plasma está elevada en la lesión de la médula espinal y promueve la inflamación y el estrés oxidativo mediados por microglía a través del eje de señalización miR-145-5p/TRAF6. La silenciación de LINC00707 atenúa estas respuestas patológicas, destacando su potencial como diana terapéutica.
Artículo de investigación
La inhibición de LINC00707 alivia la inflamación y el estrés oxidativo en microglía BV2 estimulada con LPS mediante el eje miR-145-5p/TRAF6 en la lesión de la médula espinal
114 visualizaciones
⸱
11 de septiembre de 2026
* These authors contributed equally
En este artículo
Resumen
Resumen
La lesión de la médula espinal (LME) provoca discapacidad permanente, reduce profundamente el bienestar y genera una carga socioeconómica considerable. Este estudio investigó el papel de LINC00707 en la LME mediante la regulación del eje de señalización miR-145-5p/TRAF6. Se analizaron muestras de plasma de 30 sujetos sanos y 75 pacientes con LME para evaluar la expresión de LINC00707, miR-145-5p y TRAF6 mediante RT-qPCR. Se evaluaron las asociaciones entre los niveles plasmáticos de LINC00707 y los factores proinflamatorios en pacientes con LME. Las células microgliales BV2 fueron expuestas a 100 ng/mL de LPS, y se midieron factores relacionados con la inflamación y el estrés oxidativo. Las interacciones moleculares se evaluaron mediante un ensayo de luciferasa dual. Se utilizó un análisis de regresión logística para identificar factores asociados con la expresión de LINC00707. Los niveles plasmáticos de LINC00707 y TRAF6 estaban aumentados en pacientes con LME, mientras que los niveles de miR-145-5p estaban reducidos. Los niveles plasmáticos de LINC00707 mostraron una correlación positiva con los niveles plasmáticos de factores inflamatorios. LINC00707 actuó como esponja molecular para miR-145-5p, y TRAF6 fue un gen diana de miR-145-5p. La inhibición de LINC00707 redujo los factores inflamatorios, las sustancias pro-oxidativas y los niveles de ARNm de TRAF6 en células BV2. La inhibición de miR-145-5p produjo efectos opuestos. Estos hallazgos sugieren que el aumento en la expresión de LINC00707 está asociado con la gravedad de la LME y que la reducción de LINC00707 podría aliviar la inflamación y el estrés oxidativo mediados por microglía mediante la regulación del eje de señalización miR-145-5p/TRAF6.
Introducción
La lesión de la médula espinal (LME) es una afección traumática que daña la médula espinal, un componente crítico del sistema nervioso central. La LME interrumpe directamente las vías de conducción neural entre la médula espinal y el cerebro, provocando importantes deterioros en la función motora, sensorial y autónoma1,2. Estudios epidemiológicos han reportado una incidencia anual de aproximadamente 5 casos por cada 100 000 individuos, con una mortalidad relacionada con la enfermedad que alcanza hasta un 16,7 %3,4. Una encuesta canadiense estimó que el costo vitalicio de rehabilitación para cada paciente con LME puede alcanzar hasta 336 000 dólares estadounidenses5. La alta incidencia, mortalidad y los costos sustanciales asociados al diagnóstico, tratamiento y rehabilitación convierten a la LME en un importante desafío clínico que requiere estrategias terapéuticas mejoradas.
La progresión patológica de la lesión medular (SCI) consta de dos etapas: lesión primaria y lesión secundaria. La lesión primaria resulta de la compresión mecánica traumática o la alteración del tejido medular, mientras que la lesión secundaria está mediada por procesos patológicos, incluyendo inflamación y estrés oxidativo6,7. Bajo condiciones fisiológicas, la neuroinflamación mediada por microglía contribuye a la homeostasis del sistema nervioso central8,9,10. Sin embargo, tras una lesión medular, la microglía se activa excesivamente y libera grandes cantidades de mediadores proinflamatorios11,12. Estos mediadores inducen una producción excesiva de especies reactivas de oxígeno (ROS), lo que provoca daño y muerte neuronal y agrava la lesión medular secundaria13,14. Por lo tanto, suprimir la activación excesiva de la microglía e interrumpir la cascada inflamatoria representan estrategias terapéuticas prometedoras para favorecer la recuperación neurológica y mejorar los resultados tras una lesión medular.
Los ARN no codificantes largos (lncARN) son una clase de ARN no codificantes con una longitud superior a 200 nucleótidos que carecen de potencial codificante de proteínas15. Inicialmente considerados como «ruido» transcripcional, actualmente se reconoce que los lncARN son reguladores importantes de diversos procesos fisiológicos y patológicos16. Estudios recientes han demostrado que los lncARN desempeñan funciones cruciales en la lesión neural. El ARN no codificante largo intergénico 707 (LINC00707) ha surgido como un regulador importante de los trastornos del sistema nervioso. Estudios previos han informado que LINC00707 agrava la lesión cerebral traumática al potenciar la inflamación mediada por microglía17. Además, Zhu et al. demostraron que la inhibición de LINC00707 atenuó significativamente la inflamación y la apoptosis inducidas por lipopolisacárido (LPS) en células PC1218. Estos hallazgos proporcionan una base teórica preliminar para explorar la participación de LINC00707 en la lesión de la médula espinal (SCI). Sin embargo, aún no se ha esclarecido si LINC00707 regula la inflamación mediada por microglía durante la lesión de la médula espinal.
Los ARNl actúan como esponjas moleculares mediante el mecanismo de ARN endógeno competitivo (ceARN), secuestrando microARNs (miARNs) y regulando la expresión de genes diana downstream19. Este patrón regulador está ampliamente implicado en la patogénesis de diversas enfermedades. En particular, miR-145-5p se encuentra significativamente regulado a la baja en tejidos de LME20 y durante lesiones inducidas por LPS21, y su sobreexpresión atenúa eficazmente las respuestas inflamatorias y de estrés oxidativo en microglía22. El factor asociado al receptor de factor de necrosis tumoral 6 (TRAF6) también desempeña un papel fundamental en la patología de la LME23,24,25. Sin embargo, aún no se ha esclarecido si LINC00707, miR-145-5p y TRAF6 ejercen funciones reguladoras coordinadas en la LME.
En el presente estudio, la expresión de LINC00707 se reguló significativamente hacia arriba en células microgliales estimuladas con LPS. Por lo tanto, planteamos la hipótesis de que LINC00707 podría actuar como un regulador proinflamatorio en la microglía y que su silenciamiento podría atenuar la respuesta neuroinflamatoria, mejorando así la progresión patológica de la lesión medular (SCI). Este estudio investigó si LINC00707 regula las respuestas inflamatorias de la microglía y contribuye a la patogénesis de la lesión medular.
Protocolo
Este estudio fue aprobado por el Comité de Ética del Hospital Zhangjiakou Primero (número de aprobación 2024-KY-18). Se informó a todos los participantes sobre los objetivos del estudio y los posibles riesgos, y proporcionaron consentimiento informado por escrito antes de su inclusión. Se recogieron muestras de sangre venosa de controles sanos durante exámenes físicos de rutina y de pacientes con LME inmediatamente después de su ingreso hospitalario. Las mediciones de laboratorio fueron realizadas por el laboratorio clínico del hospital. Las herramientas de investigación utilizadas en este protocolo se enumeran en la Tabla de Materiales.
1. Sujetos
Un total de 75 pacientes con lesión medular (SCI) fueron reclutados en el Hospital Zhangjiakou Primero entre enero de 2023 y enero de 2025. Los criterios de inclusión fueron lesión medular confirmada mediante tomografía computarizada (CT) o resonancia magnética (MRI), y un tiempo desde la lesión hasta el ingreso hospitalario de ≤ 12 h. Los criterios de exclusión fueron antecedentes de trauma o cirugía de médula espinal o cerebro en los últimos 6 meses; enfermedad cardiovascular grave, incluyendo infarto de miocardio o arritmia; embarazo o lactancia; y tumores malignos, función hepática o renal alterada, enfermedad cerebrovascular grave o enfermedades infecciosas.
Según los estándares de clasificación neurológica de la Asociación Estadounidense de Lesiones de la Médula Espinal (ASIA)26, 75 pacientes con lesión medular fueron clasificados en los grupos de función neurológica normal (n = 21), lesión medular incompleta (n = 36) y lesión medular completa (n = 18). La distribución de los sitios de lesión fue la siguiente: cervical, 36,0 %; torácica, 30,7 %; y lumbar, 33,3 %. Se reclutaron aleatoriamente 30 individuos sanos emparejados con la población de estudio para servir como grupo control. Se recopiló información clínica basal de todos los participantes. Los criterios de inclusión para los individuos sanos fueron: ausencia de antecedentes de trauma o cirugía de médula espinal o cerebro, o trastornos neurológicos; ausencia de antecedentes de enfermedades inflamatorias crónicas, trastornos autoinmunes o malignidades; ausencia de enfermedad cardiovascular, hepática o renal grave; ausencia de infección aguda o crónica en las últimas 4 semanas; y no estar embarazada ni en período de lactancia; además de estar emparejados por edad y sexo con el grupo de lesión medular.
La Medida de Independencia Funcional (FIM) se utilizó para evaluar la independencia funcional en las actividades diarias. La puntuación máxima de la FIM es 126. Se utilizaron las puntuaciones de sensación táctil, acmestesia y motora para evaluar la función sensorial y motora. Las puntuaciones máximas de sensación táctil y acmestesia fueron 112, y la puntuación motora máxima fue 100. Puntuaciones más bajas indican un deterioro neurológico más grave.
2. Cultivo celular, construcción del modelo y transfección
Las células microgliales inmortalizadas de ratón BV2 se obtuvieron del Centro de Recursos Celulares del Instituto de Biotecnología de Shanghái. Las células se cultivaron en medio de Eagle modificado por Dulbecco (DMEM) con alta glucosa, suplementado con 10% de suero bovino fetal (FBS), penicilina (100 U/mL) y estreptomicina (100 U/mL). Las células se mantuvieron a 37 °C en un incubador humedecido que contenía 5% de CO₂.
Para la construcción del modelo, las células BV2 fueron estimuladas con 0, 10, 20, 50, 100, 150 o 200 ng/mL de lipopolisacárido (LPS) durante 24 h. La concentración óptima de LPS se seleccionó en función de los resultados experimentales.
Para la transfección, las células BV2 se sembraron en placas de 6 pocillos y se transfectaron una vez que alcanzaron la confluencia adecuada. Se utilizó un reactivo de transfección a 1,5 µL/pocillo según las instrucciones del fabricante. Después de 6 h, el medio de cultivo se reemplazó con medio fresco y las células se cultivaron durante 24 h adicionales. El constructo de silenciamiento de LINC00707, el control negativo correspondiente, el oligonucleótido de miR-145-5p y el oligonucleótido de control correspondiente se utilizaron cada uno a una concentración de 50 nM por pocillo. Todos los experimentos de transfección se repitieron independientemente al menos 5 veces, con 3 réplicas paralelas por experimento independiente. Los datos se analizaron estadísticamente utilizando los resultados de al menos 5 experimentos independientes.
3. ELISA
Los sobrenadantes de cultivo de células BV2 transfectadas y estimuladas con LPS se recolectaron mediante centrifugación a 12.000 × g durante 10 min, y los niveles de interleucina-1β (IL-1β), IL-6 y factor de necrosis tumoral-α (TNF-α) se midieron utilizando los kits de ELISA correspondientes. En resumen, el ensayo se realizó incubando secuencialmente con un anticuerpo biotinilado, un conjugado de estreptavidina-HRP y un sustrato TMB según las instrucciones del fabricante. La absorbancia se registró a 450 nm utilizando un lector de microplacas. Los niveles de citocinas se determinaron a partir de curvas estándar. Cada muestra se midió por triplicado y se realizaron 6 experimentos independientes.
4. Medición de ERO
Los niveles intracelulares de ERO en células BV2 estimuladas con LPS se midieron utilizando un kit de ensayo de especies reactivas de oxígeno. Brevemente, las células se incubaron con 10 µmol/L de DCFH-DA a 37 °C durante 20 min. Tras la incubación, se descartó el sobrenadante y las células se lavaron 3 veces con solución salina tamponada con fosfato (PBS) para eliminar el exceso de sonda extracelular. La intensidad de fluorescencia se midió utilizando un lector de microplacas con longitudes de onda de excitación y emisión de 488 nm y 525 nm, respectivamente. Los niveles relativos de ERO se calcularon en función de la intensidad de fluorescencia. Todas las muestras se analizaron por triplicado, y todo el experimento se repitió de forma independiente al menos 5 veces.
5. Detección del malondialdehído, la superóxido dismutasa y el glutatión
Se recolectaron las células BV2 tratadas y se prepararon homogeneizados celulares. Las muestras se centrifugaron a 12.000 × g durante 10 min a 4 °C para obtener el sobrenadante. Se utilizaron kits comerciales de detección para malondialdehído (MDA), superóxido dismutasa (SOD) y glutatión (GSH), siguiendo las instrucciones del fabricante, para determinar sus niveles en los sobrenadantes celulares. Todas las muestras se analizaron por triplicado, y todo el experimento se repitió de forma independiente al menos 5 veces.
6. Ensayo de luciferasa dual
Los fragmentos de la región no traducida 3' (3' UTR) de LINC00707 y TRAF6 que contienen los sitios de unión predichos para miR-145-5p, junto con las secuencias mutantes correspondientes, se clonaron en el vector reportero de luciferasa pmirGLO para generar los constructos reporteros de tipo silvestre (WT-LINC00707 y WT-TRAF6) y mutantes (MUT-LINC00707 y MUT-TRAF6). Las células BV2 se co-transfectaron con los constructos reporteros y oligonucleótidos de miR-145-5p, y se cultivaron durante 24 h. Posteriormente, las células se recolectaron y las actividades de luciferasa de luciérnaga y Renilla se midieron utilizando un lector de microplacas.
7. RT-qPCR
El ARN total se extrajo utilizando un reactivo de extracción de ARN. La calidad del ARN se evaluó mediante la relación OD₂₆₀/OD₂₈₀, considerándose aceptables valores entre 1,8 y 2,0. Aproximadamente 1 µg de ARN total se transcribió inversamente a ADNc utilizando un kit de transcripción inversa. La expresión génica se cuantificó mediante RT-qPCR utilizando una mezcla maestra de PCR con SYBR Green. La transcripción inversa se realizó a 42 °C durante 15 min, seguida de la inactivación de la transcriptasa inversa a 95 °C durante 3 min. El ADNc sintetizado se almacenó a −20 °C hasta su análisis. La PCR cuantitativa en tiempo real se realizó con una pre-desnaturalización a 95 °C durante 1 min, seguida de 40 ciclos de desnaturalización a 95 °C durante 5 s y hibridación y extensión a 60 °C durante 15 s. Las señales de fluorescencia se registraron al final de cada paso de hibridación y extensión. El análisis de la curva de fusión se realizó a 95 °C durante 15 s, seguido de 60 °C durante 1 min. Los niveles relativos de expresión se calcularon utilizando el método 2⁻ΔΔCt. GAPDH o 5S se utilizó como referencia interna para la normalización de la expresión génica. Las secuencias de los cebadores fueron las siguientes: LINC00707, sentido 5'-CCAACAGGGTATCAGAATTCTC-3' y antisentido 5'-TGCTGACAATAGCCATTAGG-3'; miR-145-5p, sentido 5'-GCCGAGGTCCAGTTTTCCCA-3' y antisentido 5'-CTCAACTGGTGTCGTGGA-3'; TRAF6, sentido 5'-ATTACAACTGAGGTGCTTCT-3' y antisentido 5'-GCATCTGGTTCTGTTATAGGA-3'; GAPDH, sentido 5'-ATCCCATCACCATCTTCCAGG-3' y antisentido 5'-CGCCCCACTTGATTTTGG-3'; y 5S, sentido 5'-TCGTCTGATCTCGGAAGCTAA-3' y antisentido 5'-AAGCCTACAGCACCCGGTAT-3'.
8. Análisis estadístico
Los análisis estadísticos se realizaron utilizando software estadístico. La normalidad de la distribución de los datos se evaluó mediante la prueba de Shapiro-Wilk, donde un valor de P > 0,05 indicaba una distribución normal. Los datos con distribución normal se presentaron como media ± DE, mientras que los datos con distribución no normal se presentaron como mediana (P25, P75). Para variables continuas con distribución normal, las comparaciones entre dos grupos se realizaron mediante la prueba t de Student, y las comparaciones entre múltiples grupos se realizaron mediante ANOVA de un factor seguido de la prueba post hoc de Tukey. Para datos con distribución no normal, se utilizó la prueba U de Mann-Whitney para comparaciones entre dos grupos y la prueba de Kruskal-Wallis para comparaciones entre múltiples grupos. La prueba de chi-cuadrado se utilizó para analizar las variables categóricas entre grupos. Se realizaron análisis de regresión logística univariante y multivariante para evaluar los factores clínicos asociados con la expresión de LINC00707. Las variables continuas se dicotomizaron en la mediana de la cohorte (grupo de valor alto = 1; grupo de valor bajo = 0). Las variables con P < 0,05 en el análisis de regresión logística univariante se incluyeron en el análisis de regresión logística multivariante. Los resultados se presentaron como odds ratios (OR) con intervalos de confianza del 95 % (IC), donde un OR > 1 indicaba una asociación positiva y un OR < 1 indicaba una asociación negativa. Todos los experimentos de fenotipo celular incluyeron al menos 4 réplicas biológicas independientes, con 3 réplicas técnicas por réplica biológica. Se consideró estadísticamente significativo un valor de P < 0,05.
Resultados
Los niveles plasmáticos de LINC00707 estaban elevados en pacientes con LME
Se analizaron las características clínicas basales de 30 sujetos sanos y 75 pacientes con LME. En comparación con los sujetos sanos, los pacientes con LME presentaron puntuaciones notablemente más bajas en sensación táctil, acmestesia, función motora y medida de independencia funcional (FIM), lo que indica una función sensorial y motora deteriorada. Además, los niveles séricos de citocinas proinflamatorias fueron significativamente más altos en los pacientes con LME que en los controles sanos (Tabla 1, P < 0,001), lo que sugiere una respuesta inflamatoria potenciada.
| Elementos | HS | SCI | P-valor |
| (n=30) | (n=75) | ||
| Edad (años) | 45,83±10,06 | 46,17±9,92 | 0,786 |
| IMC (kg/m2) | 22,82±1,57 | 23,94±1,29 | 0,69 |
| Género (hombres, n) | 18 | 41 | 0,619 |
| Fumadores (n) | 11 | 28 | 0,949 |
| Consumo de alcohol (n) | 14 | 33 | 0,804 |
| Clasificación ASIA de la lesión medular (n) | / | ||
| Lesión medular completa | / | 18 | |
| Lesión medular incompleta | / | 36 | |
| Función neural normal | / | 21 | |
| Nivel de lesión medular (n, %) | / | ||
| Vértebra cervical | / | 27 (36,0%) | |
| Vértebra torácica | / | 23 (30,7%) | |
| Vértebra lumbar | / | 25 (33,3%) | |
| Puntuación de sensación táctil | / | 53,42±22,12 | |
| Puntuación de acmestesia | / | 53,39±24,68 | |
| Puntuación de ejercicio | / | 49,07±18,74 | |
| Puntuación de la Medida de Independencia Funcional | / | 71,33±19,41 | |
| IL-1β (pg/mL) | 1,47±0,52 | 52,21±11,32 | <0,001 |
| IL-6 (pg/mL) | 2,14±0,97 | 88,47±23,52 | <0,001 |
| TNF-α (pg/mL) | 2,84±1,13 | 61,09±18,24 | <0,001 |
| PCR (mg/L) | 1,42±0,63 | 62,67±21,85 | <0,001 |
| Abreviaturas: HS, sujeto sano; SCI, lesión de la médula espinal; IMC, índice de masa corporal; ASIA, Asociación Estadounidense de Lesiones de la Médula Espinal; FIM, medida de independencia funcional; IL, interleucina; TNF, factor de necrosis tumoral; PCR, proteína C reactiva. | |||
Tabla 1: Comparación de las características clínicas basales entre sujetos sanos y pacientes con lesión de la médula espinal. Esta tabla compara las características demográficas, puntajes de función neurológica, variables relacionadas con la lesión y niveles de marcadores inflamatorios entre sujetos sanos y pacientes con lesión de la médula espinal. Abreviaturas: HS, sujetos sanos; SCI, lesión de la médula espinal; ASIA, Asociación Estadounidense de Lesiones de la Médula Espinal; FIM, Medida de Independencia Funcional; IL, interleucina; TNF, factor de necrosis tumoral; CRP, proteína C reactiva.
La expresión de LINC00707 en plasma se cuantificó mediante RT-qPCR. En comparación con sujetos sanos, los pacientes con LME presentaron una expresión significativamente mayor de LINC00707 en plasma (Figura 1A, P < 0,001). El análisis de la curva característica de operación del receptor (ROC) proporcionó evidencia preliminar de que la expresión de LINC00707 podría tener cierto valor discriminatorio para distinguir a los pacientes con LME de los sujetos sanos (Figura 1B). Además, la expresión plasmática de LINC00707 aumentó con la mayor gravedad clínica de la LME (Figura 1C, P < 0,001). El análisis de correlación mostró que la expresión de LINC00707 en plasma se asoció positivamente con los niveles de IL-1β (r = 0,635, P < 0,001), IL-6 (r = 0,612, P < 0,001), TNF-α (r = 0,675, P < 0,001) y proteína C reactiva (PCR; r = 0,611, P < 0,001) (Figura 1D–G). Estos hallazgos sugieren que el aumento de la expresión de LINC00707 se asocia con respuestas inflamatorias en pacientes con LME.
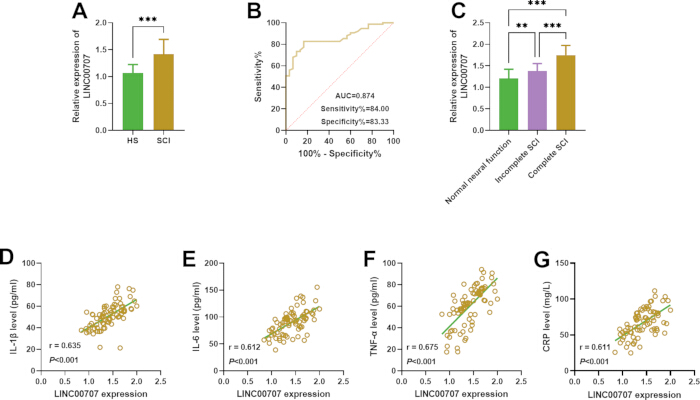
Figura 1: Expresión plasmática de LINC00707 y sus correlaciones con factores inflamatorios plasmáticos. (A) La expresión plasmática de LINC00707 fue mayor en pacientes con lesión de la médula espinal (SCI) que en sujetos sanos. El análisis estadístico se realizó mediante una prueba t para muestras independientes. (B) El análisis de la curva característica de operación del receptor (ROC) proporcionó una indicación inicial de que la expresión de LINC00707 podría ser útil para distinguir a los pacientes con SCI de los sujetos sanos. (C) La expresión plasmática de LINC00707 aumentó con la gravedad creciente de la SCI según la clasificación de la Asociación Estadounidense de Lesiones de la Médula Espinal (ASIA). El análisis estadístico se realizó mediante ANOVA de un factor seguido de la prueba post hoc de Tukey HSD. (D–G) La expresión plasmática de LINC00707 mostró una correlación positiva con los niveles de factores inflamatorios. El análisis estadístico se realizó mediante el análisis de correlación de Pearson. *P < 0,01 y **P < 0,001. Sujetos sanos, n = 30; pacientes con SCI, n = 75. Los datos se presentan como media ± DE. Haga clic aquí para ver una versión más grande de esta figura.
Los factores asociados con la expresión de LINC00707 se analizaron mediante regresión logística univariante y multivariante
Se realizaron análisis de regresión logística univariante y multivariante para identificar los factores asociados con la expresión de LINC00707. El análisis univariante mostró que la clasificación ASIA de la LES (OR = 3,912, IC 95%: 1,792–8,537, P < 0,001), la puntuación FIM (OR = 0,281, IC 95%: 0,108–0,729, P = 0,009) y el nivel de PCR (OR = 4,600, IC 95%: 1,724–12,271, P = 0,002) estaban asociados con la expresión de LINC00707. Tras el ajuste por variables de confusión potenciales, la regresión logística multivariante mostró que la clasificación ASIA de la LES (OR = 2,598, IC 95%: 1,088–6,203, P = 0,032), la puntuación FIM (OR = 0,303, IC 95%: 0,102–0,902, P = 0,032) y el nivel de PCR (OR = 3,202, IC 95%: 1,024–10,015, P = 0,045) eran factores independientes asociados con la expresión de LINC00707 (Tabla 2). Una clasificación ASIA más grave y niveles elevados de PCR se asociaron con una expresión mayor de LINC00707, mientras que una puntuación FIM más alta se asoció con una expresión menor de LINC00707. Estas asociaciones respaldan aún más la posibilidad de que LINC00707 participe en el proceso patológico de la LES.
| Elementos | Análisis de regresión univariado | Análisis de regresión multivariado | ||||
| OR | IC 95% | Valor p | OR | IC 95% | Valor p | |
| Edad | 1.176 | 0.475-2.914 | 0.725 | |||
| Género | 1.303 | 0.524-3.240 | 0.57 | |||
| Clasificación ASIA de la LES | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| Clasificación ASIA de la LES | 0.588 | 0.497-1.480 | 0.582 | |||
| Puntuación de sensación táctil | 0.85 | 0.343-2.105 | 0.725 | |||
| Puntuación de acmestesia | 0.854 | 0.345-2.119 | 0.734 | |||
| Puntuación de ejercicio | 0.392 | 0.153-1.006 | 0.051 | |||
| Puntuación FIM | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| CRP | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| Abreviaturas: OR, razón de momios; IC, intervalo de confianza; ASIA, Asociación Estadounidense de Lesiones de la Médula Espinal; FIM, medida de independencia funcional; IL, interleucina; TNF, factor de necrosis tumoral; CRP, proteína C reactiva. | ||||||
Tabla 2: Análisis de regresión logística de los factores asociados con la expresión de LINC00707. Esta tabla presenta los análisis de regresión logística univariante y multivariante utilizados para identificar los factores clínicos asociados con la expresión de LINC00707 en pacientes con lesión de la médula espinal. Los resultados se presentan como razones de momios con intervalos de confianza del 95 % y valores de P correspondientes. Abreviaturas: OR, razón de momios; CI, intervalo de confianza; ASIA, Asociación Estadounidense de Lesiones de la Médula Espinal; FIM, Medida de Independencia Funcional; IL, interleucina; TNF, factor de necrosis tumoral; CRP, proteína C reactiva.
La inhibición de LINC00707 alivió la inflamación y el estrés oxidativo en células BV2 estimuladas con LPS
Las células BV2 fueron tratadas con concentraciones crecientes de LPS (0, 10, 20, 50, 100, 150 o 200 ng/mL). El análisis mediante RT-qPCR mostró que la expresión de LINC00707 aumentó significativamente tras el tratamiento con LPS a 100, 150 y 200 ng/mL (Figura 2A, P < 0,001, n = 6). Con base en estos hallazgos y en informes previos27˒28, se seleccionó una concentración de 100 ng/mL de LPS para establecer el modelo in vitro de LME. En comparación con el grupo control, la expresión de LINC00707 se elevó significativamente en las células BV2 estimuladas con LPS. La transfección con si-LINC00707 suprimió eficazmente la expresión de LINC00707 (Figura 2B, P < 0,001, n = 6).
Posteriormente se evaluaron los efectos del silenciamiento de LINC00707 sobre la inflamación y el estrés oxidativo. La estimulación con LPS aumentó significativamente la secreción de IL-1β (Figura 2C, P < 0,001, n = 5), IL-6 (Figura 2D, P < 0,001, n = 5) y TNF-α (Figura 2E, P < 0,001, n = 5), así como los niveles intracelulares de ROS (Figura 2F, P < 0,001, n = 6) y el contenido de MDA (Figura 2G, P < 0,001, n = 5). En contraste, la estimulación con LPS redujo significativamente los niveles de los marcadores antioxidantes SOD (Figura 2H, P < 0,001, n = 6) y GSH (Figura 2I, P < 0,001, n = 5). La inhibición de LINC00707 redujo significativamente la secreción de citocinas proinflamatorias y los niveles de marcadores prooxidativos, mientras que restauró los niveles de antioxidantes en células BV2 estimuladas con LPS. Estos hallazgos indican que el silenciamiento de LINC00707 atenúa las respuestas inflamatorias y el estrés oxidativo inducidos por LPS en células BV2.
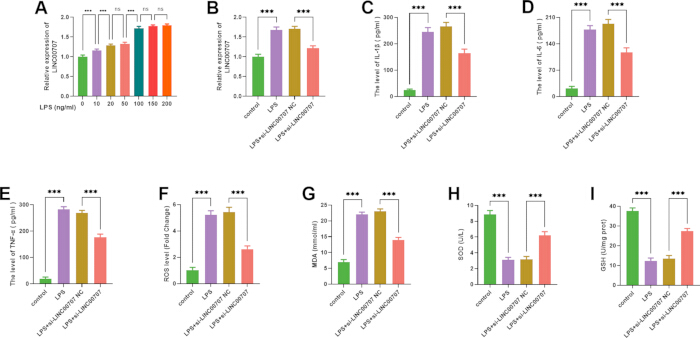
Figura 2: Efectos del silenciamiento de LINC00707 sobre la inflamación y el estrés oxidativo en células BV2 estimuladas con LPS. Las células BV2 fueron estimuladas con lipopolisacárido (LPS) a 100 ng/mL. (A) La expresión de LINC00707 se midió mediante RT-qPCR en células BV2 tratadas con diferentes concentraciones de LPS. (B) La expresión de LINC00707 aumentó en el grupo tratado con LPS y disminuyó tras la transfección con si-LINC00707. (C–E) ELISA mostró que la secreción de factores proinflamatorios aumentó en el grupo con LPS y disminuyó tras el silenciamiento de LINC00707. (F–G) Los niveles de especies reactivas de oxígeno (ROS) y el contenido de malondialdehído (MDA) aumentaron en el grupo con LPS y disminuyeron tras el silenciamiento de LINC00707. (H–I) La actividad de la superóxido dismutasa (SOD) y los niveles de glutatión reducido (GSH) disminuyeron en el grupo con LPS y aumentaron tras el silenciamiento de LINC00707. **P < 0.001; ns, no significativo. n ≥ 5. Los análisis estadísticos se realizaron mediante ANOVA de un solo factor seguido de la prueba post hoc de Tukey’s HSD. Los datos se presentan como media ± DE. Haga clic aquí para ver una versión más grande de esta figura.
LINC00707 actúa como una esponja molecular para miR-145-5p
Para investigar el mecanismo molecular subyacente a la función biológica de LINC00707, se utilizó la base de datos ENCORI para predecir miARNs diana potenciales. El análisis bioinformático identificó secuencias de unión complementarias entre LINC00707 y miR-145-5p (Figura 3A). Los ensayos de luciferasa dual mostraron que la actividad luciferasa en el constructo WT-LINC00707 disminuyó significativamente en presencia del mimético de miR-145-5p y aumentó con el inhibidor de miR-145-5p. En contraste, ninguno de los tratamientos afectó la actividad luciferasa en el constructo MUT-LINC00707 (Figura 3B, P < 0,001, n = 4), lo que confirma la interacción directa entre LINC00707 y miR-145-5p.
El análisis de RT-qPCR mostró que la expresión de miR-145-5p en plasma se redujo significativamente en pacientes con LME en comparación con sujetos sanos (Figura 3C, P < 0,001). Además, la expresión de LINC00707 se correlacionó negativamente con la expresión de miR-145-5p (Figura 3D, P < 0,001), y los niveles plasmáticos de miR-145-5p disminuyeron progresivamente con el aumento de la gravedad de la LME (Figura 3E, P < 0,001). In vitro, la expresión de miR-145-5p se redujo significativamente en células BV2 estimuladas con LPS en comparación con células control, mientras que la inhibición de LINC00707 restauró la expresión de miR-145-5p (Figura 3F, P < 0,001, n = 6). Estos hallazgos sugieren que LINC00707 actúa como un ARN endógeno competidor (ceRNA) al secuestrar miR-145-5p y, por lo tanto, regular su expresión durante la progresión patológica de la LME.
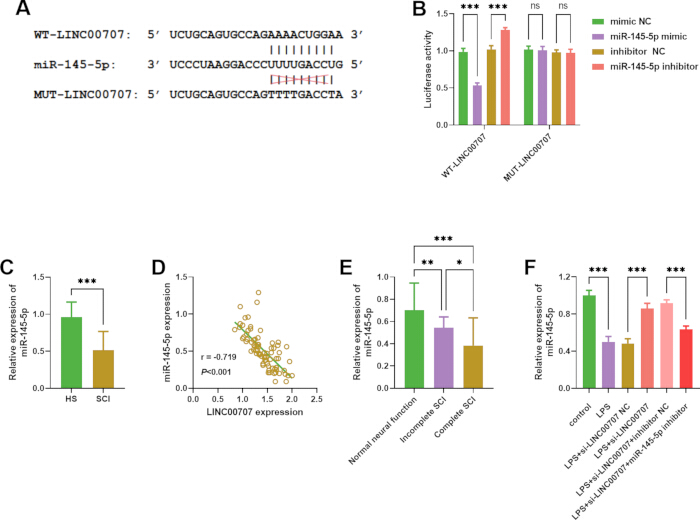
Figura 3. LINC00707 funciona como una esponja molecular para miR-145-5p. (A) La base de datos ENCORI predijo secuencias de unión complementarias entre LINC00707 y miR-145-5p. (B) Un ensayo de luciferasa dual confirmó la interacción entre LINC00707 y miR-145-5p. El análisis estadístico se realizó mediante ANOVA de dos vías seguido de la prueba post hoc de Tukey’s HSD. (C) La RT-qPCR mostró que la expresión plasmática de miR-145-5p se redujo en pacientes con LME. El análisis estadístico se realizó mediante una prueba t para muestras independientes. (D) La expresión de LINC00707 se correlacionó negativamente con la expresión de miR-145-5p en pacientes con LME. El análisis estadístico se realizó mediante análisis de correlación de Pearson. (E) La expresión plasmática de miR-145-5p disminuyó con el aumento de la gravedad de la LME según la clasificación ASIA. El análisis estadístico se realizó mediante ANOVA de una vía seguido de la prueba post hoc de Tukey’s HSD. (F) La expresión de miR-145-5p disminuyó en el grupo LPS, aumentó tras la transfección con si-LINC00707 y se redujo tras la transfección con el inhibidor de miR-145-5p. El análisis estadístico se realizó mediante ANOVA de una vía seguido de la prueba post hoc de Tukey’s HSD. P < 0,05, *P < 0,01 y **P < 0,001; ns, no significativo. Sujetos sanos, n = 30; pacientes con LME, n = 75; experimentos en células, n ≥ 4. Los datos se presentan como media ± DE. Haga clic aquí para ver una versión ampliada de esta figura.
La inhibición de miR-145-5p exacerbó la inflamación y el estrés oxidativo en células BV2 estimuladas con LPS
Para investigar el papel de miR-145-5p, las células BV2 fueron transfectadas con un inhibidor de miR-145-5p o con el control negativo correspondiente. Posteriormente, se evaluaron los niveles de citocinas inflamatorias y marcadores de estrés oxidativo. En comparación con el grupo control negativo del inhibidor, la inhibición de miR-145-5p aumentó significativamente la secreción de IL-1β (Figura 4A, P < 0,001, n = 5), IL-6 (Figura 4B, P < 0,001, n = 5) y TNF-α (Figura 4C, P < 0,001, n = 5). Además, los niveles intracelulares de ERO (Figura 4D, P < 0,001, n = 6) y el contenido de MDA (Figura 4E, P < 0,001, n = 5) aumentaron significativamente, mientras que los niveles de SOD (Figura 4F, P < 0,001, n = 6) y GSH (Figura 4G, P < 0,001, n = 5) disminuyeron significativamente. Estos hallazgos indican que la inhibición de miR-145-5p revierte los efectos protectores del silenciamiento de LINC00707 sobre la inflamación y el estrés oxidativo inducidos por LPS en células BV2.
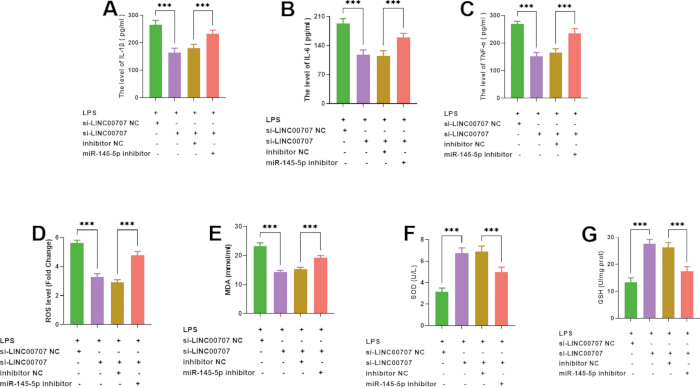
Figura 4: Efectos de la inhibición de miR-145-5p sobre la inflamación y el estrés oxidativo en células BV2. (A–C) ELISA mostró que la secreción de factores proinflamatorios aumentó significativamente tras la transfección con el inhibidor de miR-145-5p. (D–E) Los niveles de especies reactivas de oxígeno (ROS) y el contenido de malondialdehído (MDA) aumentaron significativamente tras la transfección con el inhibidor de miR-145-5p. (F–G) La actividad de la superóxido dismutasa (SOD) y los niveles de glutatión (GSH) se redujeron significativamente tras la transfección con el inhibidor de miR-145-5p. **P < 0.001. n ≥ 5. Los análisis estadísticos se realizaron mediante ANOVA de un factor seguido de la prueba post hoc de Tukey’s HSD. Los datos se presentan como media ± DE. Haga clic aquí para ver una versión más grande de esta figura.
TRAF6 fue identificado como un gen diana de miR-145-5p
La base de datos miRDB predijo a TRAF6 como un blanco potencial de miR-145-5p. Se identificaron secuencias de unión complementarias entre la región UTR 3′ de TRAF6 y miR-145-5p (Figura 5A). Los ensayos de luciferasa dual mostraron que la actividad luciferasa en el constructo WT-TRAF6 disminuyó significativamente en presencia del mimético de miR-145-5p y aumentó con el inhibidor de miR-145-5p. En contraste, ninguno de los tratamientos afectó la actividad luciferasa en el constructo MUT-TRAF6 (Figura 5B, P < 0,001, n = 4), lo que confirma que TRAF6 es un blanco directo de miR-145-5p.
El análisis de RT-qPCR mostró que la expresión de ARNm de TRAF6 en plasma aumentó significativamente en pacientes con lesión medular (Figura 5C, P < 0,001). La expresión de TRAF6 se correlacionó negativamente con la expresión de miR-145-5p (Figura 5D, P < 0,001), y los niveles plasmáticos de ARNm de TRAF6 aumentaron con la gravedad de la lesión medular (Figura 5E, P < 0,001). In vitro, la expresión de TRAF6 aumentó significativamente en células BV2 estimuladas con LPS en comparación con el grupo control, pero se redujo significativamente tras el silenciamiento de LINC00707 (Figura 5F, P < 0,001, n = 6). Por el contrario, la inhibición de miR-145-5p restauró la expresión de TRAF6 (Figura 5G, P < 0,001, n = 6). Estos hallazgos indican que LINC00707 regula la expresión de TRAF6 a través de la vía de señalización de miR-145-5p.
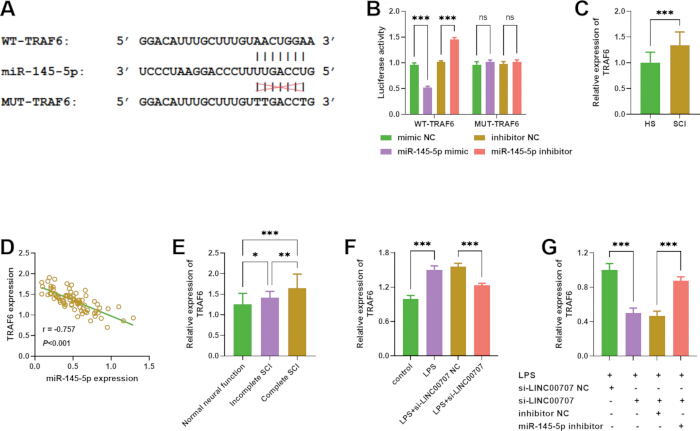
Figura 5: TRAF6 es un gen diana de miR-145-5p. (A) La base de datos miRDB predijo secuencias de unión complementarias entre TRAF6 y miR-145-5p. (B) Un ensayo de luciferasa dual confirmó la relación de dianización entre TRAF6 y miR-145-5p. El análisis estadístico se realizó mediante ANOVA de dos vías seguido de la prueba post hoc de Tukey’s HSD. (C) La RT-qPCR mostró que la expresión plasmática de TRAF6 estaba elevada en pacientes con LME. El análisis estadístico se realizó mediante una prueba t para muestras independientes. (D) La expresión de TRAF6 en plasma se correlacionó negativamente con la expresión plasmática de miR-145-5p en pacientes con LME. El análisis estadístico se realizó mediante análisis de correlación de Pearson. (E) La expresión plasmática de TRAF6 aumentó con la mayor gravedad de la LME según la clasificación ASIA. El análisis estadístico se realizó mediante ANOVA de una vía seguido de la prueba post hoc de Tukey’s HSD. (F) La expresión de TRAF6 aumentó en células BV2 estimuladas con LPS y disminuyó tras el agotamiento de LINC00707. El análisis estadístico se realizó mediante ANOVA de una vía seguido de la prueba post hoc de Tukey’s HSD. (G) La expresión de TRAF6 aumentó tras la inhibición de miR-145-5p. El análisis estadístico se realizó mediante ANOVA de una vía seguido de la prueba post hoc de Tukey’s HSD. P < 0,05, *P < 0,01 y **P < 0,001; ns, no significativo. Sujetos sanos, n = 30; pacientes con LME, n = 75; experimentos en células, n ≥ 4. Los datos se presentan como media ± DE. Haga clic aquí para ver una versión más grande de esta figura.
DISPONIBILIDAD DE LOS DATOS:
Los conjuntos de datos generados y/o analizados en el presente estudio están disponibles en el repositorio Zenodo: https://doi.org/10.5281/zenodo.21470454.
Discusión
La lesión de la médula espinal (LME) es un trastorno traumático grave del sistema nervioso central que provoca una alteración o pérdida completa de la conducción neural a través de la médula espinal, lo que lleva a disfunciones motoras, sensoriales y autonómicas permanentes, así como a consecuencias fisiológicas y psicológicas profundas29˒30. La gravedad de estas alteraciones generalmente aumenta con la extensión de la LME. En el presente estudio, la expresión plasmática de LINC00707 se elevó en pacientes con LME y mostró una correlación positiva con los niveles circulantes de citocinas proinflamatorias, lo que sugiere un posible papel de LINC00707 en la inflamación y el estrés oxidativo asociados a la LME. Con base en estos hallazgos clínicos, investigamos más a fondo el papel regulador de LINC00707 en la inflamación y el estrés oxidativo en células BV2 tratadas con LPS, en el contexto de la patogénesis de la LME.
Se ha implicado a LINC00707 en una variedad de procesos biológicos mediante la regulación de múltiples vías de señalización31. Además de regular la proliferación celular, la apoptosis, la migración y la invasión, se ha demostrado que LINC00707 participa en las respuestas inflamatorias y en el estrés oxidativo18˒32˒33. Estudios previos han informado de una expresión elevada de LINC00707 en cánceres de pulmón34, mama35, cérvix36 y hígado37, donde promueve la progresión de la enfermedad mediante la regulación de dianas moleculares descendentes. Además, la silenciación de LINC00707 promueve la diferenciación osteogénica de células madre mesenquimales de la médula ósea mediante la regulación de miR-103a-3p38. Zou et al. demostraron además que LINC00707 promueve las respuestas inflamatorias inducidas por LPS en células MRC-5, lo que respalda su papel proinflamatorio33. En consonancia con estos hallazgos, el presente estudio mostró que la expresión de LINC00707 aumentó significativamente en células BV2 estimuladas con LPS, mientras que la inhibición de LINC00707 redujo la producción de citocinas proinflamatorias y marcadores de estrés oxidativo. Estos hallazgos respaldan aún más la participación de LINC00707 en las respuestas inflamatorias y de estrés oxidativo.
También se ha informado que LINC00707 funciona como un ARN endógeno competidor (ceARN) al regular miR-145-5p en varias condiciones patológicas, incluyendo la enfermedad cardíaca reumática39, el cáncer de vejiga40 y la diferenciación osteogénica41. Estudios previos han demostrado que miR-145-5p ejerce efectos protectores en la lesión medular (SCI) al suprimir la inflamación y el estrés oxidativo42˒43 y al promover la angiogénesis y la reparación neural44˒45. En concordancia con estas observaciones, el presente estudio mostró que la expresión plasmática de miR-145-5p se redujo en pacientes con SCI y en células BV2 estimuladas con LPS. Se confirmó además que LINC00707 interactúa directamente con miR-145-5p, y que el silenciamiento de LINC00707 restauró la expresión de miR-145-5p. Además, la inhibición de miR-145-5p revirtió los efectos protectores del silenciamiento de LINC00707 sobre las respuestas inflamatorias y el estrés oxidativo. Estos hallazgos sugieren que LINC00707 podría contribuir a la progresión de la SCI al regular las respuestas inflamatorias y de estrés oxidativo mediadas por miR-145-5p.
Estudios previos han demostrado que TRAF6 desempeña un papel importante en enfermedades del sistema nervioso central46. También existen evidencias de que la inhibición de TRAF6 puede mejorar significativamente la lesión de la médula espinal (SCI)47˒48. El presente estudio identificó además a TRAF6 como un blanco directo de miR-145-5p. La expresión de TRAF6 aumentó significativamente en pacientes con lesión de la médula espinal y en células BV2 estimuladas con LPS. Además, la reducción de la expresión de LINC00707 disminuyó la expresión de TRAF6, mientras que la inhibición de miR-145-5p restauró la expresión de TRAF6. Estos hallazgos sugieren que LINC00707 podría regular la expresión de TRAF6 a través de miR-145-5p durante la lesión de la médula espinal.
Este estudio sugiere que LINC00707 podría afectar las respuestas inflamatorias mediadas por microglía y la lesión por estrés oxidativo durante la lesión medular (SCI) al regular el eje de señalización miR-145-5p/TRAF6. Este hallazgo es consistente con un informe previo de Zhu et al., quienes demostraron que la inhibición de LINC00707 alivió la inflamación y la apoptosis inducidas por LPS en células PC-12; sin embargo, el mecanismo subyacente en su estudio involucraba el eje miR-30a-5p/Neurod118. En conjunto, estos hallazgos sugieren que LINC00707 podría no actuar a través de un único blanco de miARN, sino más bien a través de redes distintas de miARNs de manera dependiente del tipo celular, contribuyendo así a los procesos patológicos de la lesión medular (SCI).
Este estudio tiene varias limitaciones. En primer lugar, solo se evaluó la expresión del ARNm de TRAF6, mientras que no se examinó la expresión proteica. Los estudios futuros deberían incluir la validación a nivel de proteína, como el análisis por inmunotransferencia (Western blot), para caracterizar mejor la relación reguladora entre LINC00707, miR-145-5p y TRAF6. En segundo lugar, este estudio se realizó exclusivamente a nivel celular utilizando un modelo de microglía BV2 estimulada con LPS, sin validación in vivo. Dada la complejidad del microambiente de la lesión medular (SCI), los hallazgos actuales podrían no reproducir completamente las condiciones fisiopatológicas in vivo. Aún queda por confirmar si LINC00707 ejerce efectos proinflamatorios similares en modelos animales de SCI. En estudios futuros se establecerán modelos animales de SCI para validar el papel regulador de LINC00707 y sus mecanismos moleculares subyacentes. En tercer lugar, aunque nuestros resultados indican que LINC00707 actúa a través de la vía de señalización miR-145-5p/TRAF6 para influir en la inflamación, aún se desconoce si LINC00707 funciona únicamente como esponja de miARNs específicos o también se une directamente a ciertas proteínas. Se requieren estudios adicionales para aclarar estos detalles mecanicistas. En cuarto lugar, el análisis de la curva ROC se basó en datos de un solo centro médico y un número relativamente pequeño de pacientes. Esto podría haber introducido un sesgo, haciendo que los hallazgos sean preliminares. Se necesitan estudios multicéntricos más amplios con un mayor número de pacientes para confirmar el potencial diagnóstico de los biomarcadores identificados.
Los hallazgos de este estudio sugieren que LINC00707 podría representar un biomarcador plasmático exploratorio potencial y un objetivo terapéutico para la lesión medular (SCI). Sin embargo, la traducción de estos hallazgos a aplicaciones clínicas requerirá varios pasos adicionales. En primer lugar, se debe evaluar el valor discriminatorio potencial de LINC00707 en plasma en cohortes más grandes multicéntricas, cohortes de validación independientes y grupos de control relevantes de traumatismos o inflamación. La evaluación clínica y el examen radiológico siguen siendo los enfoques principales para diagnosticar la lesión medular. En segundo lugar, se debe evaluar el potencial terapéutico de dirigirse a LINC00707 en modelos animales para evaluar su eficacia y seguridad. En última instancia, la modulación de la señalización LINC00707/miR-145-5p/TRAF6 podría ofrecer un enfoque novedoso para mitigar la neuroinflamación y el estrés oxidativo en pacientes con lesión medular, aunque aún queda un trabajo sustancial por realizar para cerrar la brecha entre el laboratorio y la clínica.
En general, la expresión de LINC00707 y TRAF6 en plasma aumentó, mientras que la expresión de miR-145-5p disminuyó, en pacientes con lesión medular y en células BV2 estimuladas con LPS. La inhibición de LINC00707 atenuó las respuestas inflamatorias y el estrés oxidativo a través del eje de señalización miR-145-5p/TRAF6, lo que sugiere que esta vía reguladora podría representar un objetivo terapéutico potencial para la lesión medular.
Divulgaciones
Los autores declaran que no tienen intereses en competencia.
Agradecimientos
Este trabajo fue apoyado por el Proyecto de Investigación de Ciencias Médicas de Hebei (Concesión No. 20251479).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| tubo microcentrífugo de 1,5 mL | KIRGEN | KG2211 | Tubo de polipropileno con tapa de rosca, libre de DNasa/RNasa, no pirógeno, fuerza centrífuga máxima 20.000 × g, para el almacenamiento y centrifugación de muestras de ARN/proteína. |
| Placa de cultivo celular de 6 pocillos | Corning | 3516 | Placa de poliestireno tratada para cultivo celular, con fondo plano, estéril y envuelta individualmente; volumen de la pocillo es de 16,8 mL con un área de crecimiento de 9,5 cm² |
| Aguja para la extracción de sangre | Becton, Dickinson and Company | 367283 | Aguja de colección de sangre BD Vacutainer de un solo uso. Diseño de aguja de doble extremo, con un extremo para punción venosa y el otro para conectar al portador y al tubo al vacío para la recolección en múltiples tubos. Recubierta con silicona para minimizar la molestia al paciente durante la inserción. |
| Tubos para la recolección de sangre | Becton, Dickinson and Company | 367605 | Tubos de recolección de sangre al vacío BD Vacutainer. Tapones codificados por colores indican diversos aditivos, correspondientes a pruebas de laboratorio específicas. |
| Línea celular inmortalizada de microglía murina BV2 | Centro de Recursos Celulares del Instituto de Biotecnología de Shanghái | RRID: CVCL_0182 | Línea celular inmortalizada de microglía murina que expresa establemente marcadores específicos de microglía (Iba1, CD11b, F4/80). Tras la estimulación con LPS, las células BV2 secretan citocinas proinflamatorias (IL-1β, IL-6, TNFα) y acumulan ROS intracelulares, MDA para imitar la activación inflamatoria de microglía in vivo tras una lesión de la médula espinal. Las células se cultivan en DMEM con alta glucosa suplementado con 10 % de suero bovino fetal (FBS) y 1× penicilina-estreptomicina, mantenida a 37 °C con 5% de CO2 incubadora humedecida; pasadas cuando alcancen el 70 %–80 % de confluencia para evitar la sobreactivación. |
| Kit de ensayo de malondialdehído (MDA) celular | Instituto de Bioingeniería Nanjing Jiancheng | A003-4-2 | Kit colorimétrico basado en microplaca para la detección cuantitativa del malondialdehído celular, un marcador de la peroxidación lipídica. El MDA reacciona con el ácido tiobarbitúrico (TBA) mediante calentamiento para formar aductos rojos; la absorbancia se mide a 532 nm mediante espectrofotómetro de microplaca. Optimizado para muestras de lisados celulares, operación de alto rendimiento en placas de 96 pocillos, rango lineal de cuantificación que abarca niveles bajos a moderados de oxidación lipídica en microglía. |
| CO2 incubadora | Thermo Scientific | 3111 | CO₂ con camisa de agua humedecida2 incubadora con volumen interno de 184 L, CO₂ por IR2 sensor, sistema de filtración de aire HEPA para minimizar la contaminación microbiana. Mantiene un entorno de cultivo estable a 37 °C, 5% CO₂2 y humedad saturada para el cultivo prolongado de células adherentes. |
| Kit de ensayo de gen reportero luciferasa dual | Beyotime Biotechnology | RG028 | Este kit de luciferasa dual permite la detección cuantitativa secuencial de luciferasa de luciérnaga y luciferasa de Renilla en lisados celulares. Primero se mide la señal de luciferasa de luciérnaga utilizando el sustrato luciferina; el reactivo subsiguiente para la detección de Renilla contiene un potente inhibidor que elimina >99,9 % de luminiscencia residual de luciérnaga, lo que garantiza una lectura de señal pura de Renilla con sustrato de coelenteracina. El kit incluye un tampón de lisis celular específico para la lisis de células adherentes, compatible con luminómetros de microplacas de 96 pocillos. El reactivo de luciérnaga es un líquido premezclado listo para usar; los valores de luminiscencia de luciérnaga y Renilla se registran secuencialmente para calcular la actividad luciferasa relativa normalizada (relación luciérnaga/Renilla) en la validación de dianas de ceARN. |
| Medio Eagle Modificado de Dulbecco | Gibco | 11995065 | DMEM es un medio basal ampliamente utilizado para favorecer el crecimiento de muchas células mamíferas diferentes. Esta formulación contiene glucosa alta, L-glutamina, rojo de fenol y piruvato de sodio. Requiere suplementación, comúnmente con 10% de suero bovino fetal (FBS), y un 5–10% CO2 ambiente para mantener el pH fisiológico. |
| Suero bovino fetal | CADA VERDE | 13011-8611 | Suero bovino fetal de grado premium, bajo en endotoxinas, libre de micoplasma & bacteriófago negativo, suplementado al DMEM al 10% v/v para favorecer el crecimiento celular. |
| GraphPad Prism versión 9 | GraphPad Software, San Diego, CA, EE. UU. | NA | Software especializado en graficación científica y análisis estadístico para datos experimentales de células in vitro. Todos los valores brutos de qPCR, ELISA, estrés oxidativo y absorbancia de luminiscencia dual-luciferasa se importaron a Prism 9 para realizar la verificación de normalidad, comparaciones paramétricas/no paramétricas entre grupos, generar todas las figuras cuantitativas y calcular la media ± DE, valores exactos de P e IC del 95 %, y exportar figuras de alta resolución (300 ppp) que cumplan con los estándares de publicación de revistas. Los archivos fuente originales del proyecto .prism de todos los gráficos se depositan en el repositorio público de datos según lo requerido. |
| IBM SPSS Statistics Versión 26.0 | Corporación IBM, Armonk, NY, EE. UU. | NA | Paquete estadístico integral utilizado para el ordenamiento de datos basales de muestras clínicas, pruebas de normalidad (prueba de Shapiro-Wilk), prueba t independiente/no apareada, ANOVA de un factor con corrección de Tukey’corrección para comparaciones múltiples, prueba no paramétrica U de Mann-Whitney y cálculo de valores P exactos e intervalos de confianza del 95 % para todos los conjuntos de datos cuantitativos humanos y celulares. Todos los datos demográficos y de laboratorio de pacientes clínicos se procesaron y analizaron dentro de esta plataforma. |
| IL-1β Kit SimpleStep ELISA | Abcam | ab255730 | Este kit ELISA colorimétrico sandwich con un solo lavado utiliza la tecnología SimpleStep de propiedad exclusiva, completando todo el procedimiento de detección en 90 minutos. Mide cuantitativamente la interleucina-1 de rataβ en el sobrenadante de cultivo celular, suero y muestras de plasma con EDTA/citrato/heparina. La sensibilidad de detección alcanza 26,58 pg/mL, con un rango de cuantificación lineal de 54,69–3500 pg/mL. Se incluye una microplaca de tira desmontable de 8 pocillos pre-revestida. Las señales de absorbancia se detectan a 450 nm mediante un lector de microplacas para calcular la IL-1β concentración |
| Kit SimpleStep ELISA para IL-6 | Abcam | ab234570 | Un kit colorimétrico SimpleStep ELISA tipo sándwich optimizado para la detección cuantitativa de interleucina-6 (IL-6) de rata en sobrenadantes de cultivo celular, suero y muestras de plasma con citrato/EDTA/heparina. Emplea una incubación en un solo paso y un protocolo con un solo lavado, lo que reduce el tiempo total del ensayo a 90 minutos, con una sensibilidad de detección de 43 pg/mL y un rango de cuantificación lineal de 125 pg/mL a 8000 pg/mL. Incluye una microplaca de tira desmontable pre-revestida de 8 pocillos; los valores de absorbancia se leen a 450 nm utilizando un espectrofotómetro de microplacas para el cálculo final de la concentración de IL-6. |
| Placa multipozo LightCycler de 96 pocillos, blanca | Roche LifeScience, Suiza | 4729692001 | Placas de reacción de polipropileno blanco con cubierta parcial de 96 pocillos, especialmente optimizadas para el instrumento de PCR en tiempo real LightCycler 96. Las paredes blancas de los pocillos reducen la interferencia de fluorescencia de fondo y mejoran la reflexión de la señal, lo que aumenta la sensibilidad de detección para transcritos de baja abundancia. El diseño uniforme de pared delgada garantiza una conductividad térmica constante en todos los pocillos, compatible con volúmenes de reacción que van desde 10 hasta 50 μL. Libre de DNasa/RNasa y pirogénos para ensayos de amplificación de ADNc derivado de ARN. |
| Reactivo de transfección LipofectamineTM 3000 | Thermo Fisher Scientific | L3000015 | El reactivo de transfección con nanopartículas lipídicas, combinado con el potenciador P3000, permite una transfección de ARNip y plásmidos con alta eficiencia y baja citotoxicidad en microglía BV2. |
| Kit de Síntesis de ADNc de Primera Cadena lnRcute lncRNA | TIANGEN | KR202-02 | Este kit está especialmente optimizado para la transcripción inversa de ARN no codificantes largos (lncARN) de baja abundancia, contenido de GC variable y estructuras secundarias complejas. Contiene un tampón independiente para la eliminación de ADN genómico (gADN) que elimina la contaminación por ADN genómico antes de la transcripción inversa, y una mezcla especializada de cebadores lnR-RT para enriquecer las plantillas de lncARN de longitud completa. La transcriptasa inversa modificada permite la síntesis eficiente de ADNc de cadena larga a partir de ARN total con una cantidad de entrada que varía entre 10 ng y 2 ng. |
| Kit de detección de lncARN mediante qPCR lnRcute (SYBR Green) | TIANGEN | FP402 | Una mezcla previa cuantitativa específica basada en SYBR Green para la cuantificación de ARNl. La polimerasa de ADN con inicio térmico mediado por anticuerpo garantiza una alta especificidad de amplificación; los componentes competidores H alivian la interferencia de la estructura secundaria en plantillas de ARNl con alto contenido de GC. Compatible con ADNc generado a partir del kit de transcripción inversa lnRcute para ARNl, y adecuada para la cuantificación de la expresión relativa de ARNl de baja abundancia. |
| oligonucleótidos de miR-145-5p | Generalbiol (Wuhan, China) | NA | Mimético sintético de miR-145-5p, inhibidor y oligonucleótidos correspondientes de control negativo utilizados para modular la actividad del miR-145-5p en células BV2. Utilizados en ensayos de expresión, inflamación, estrés oxidativo y de represa luciferasa dual. |
| Kit de ADNc de primera cadena miRcute Plus para miARN | TIANGEN | KR211-02 | Adopta una reacción combinada de poliadenilación y transcripción inversa en un solo tubo para simplificar el flujo de trabajo experimental. La mezcla de enzimas contiene poli(A) polimerasa de E. coli, transcriptasa inversa deficiente en RNasa H e inhibidor de RNasa, que se dirige específicamente al miARN maduro de cadena sencilla y evita la interferencia en la amplificación por pre-miARN con estructuras en horquilla. Adecuado para miARN extraído de lisados celulares, plasma y muestras de tejido. |
| Kit de detección qPCR de miARN miRcute Plus (SYBR Green) | TIANGEN | FP411 | Mezcla previa de SYBR Green optimizada para la cuantificación de miARN maduros, compatible perfectamente con los productos de transcripción inversa miRcute. El sistema de tampón mejora la eficiencia de hibridación de cebadores para amplicones cortos de miARN, proporciona señales de fluorescencia estables y alta sensibilidad para la detección de miARN de baja expresión. El ARNsn U6 se utiliza comúnmente como referencia interna para la normalización. |
| Solución de penicilina-estreptomicina (100×) | Beyotime Biotecnología | C0222 | Mezcla filtrada estéril que contiene 10 000 U/mL de penicilina y 10 mg/mL de estreptomicina; dilución de trabajo 1:100 en medio de cultivo para prevenir contaminación bacteriana. |
| Kit de ensayo de especies reactivas de oxígeno con diluyente | Beyotime Biotechnology | S0034M | Este kit utiliza la sonda fluorescente DCFH-DA para cuantificar especies reactivas de oxígeno (ROS) intracelulares. La DCFH-DA atraviesa la membrana celular y es hidrolizada por esterasas intracelulares a DCFH, la cual es oxidada por las ROS para generar DCF fluorescente. Es compatible con placas microtituladoras de 96 pocillos y lectores de fluorescencia para detección de alto rendimiento (Ex = 488 nm, Em = 525 nm). Incluye un diluyente específico para la sonda y el reactivo de control positivo Rosup para estabilizar las señales de tinción, adecuado para la detección de estrés oxidativo en microglía BV2 adherente sin lisis celular. |
| Kit de ensayo de glutatión reducido (GSH) | Instituto de Bioingeniería Nanjing Jiancheng | A006-1-2 | Kit colorimétrico en microplaca para la detección de glutatión reducido (GSH), el principal antioxidante intracelular. El GSH reacciona con ácido ditiobisnitrobenzoico (DTNB) para producir un producto cromogénico amarillo, cuya absorbancia se mide a 405 nm en un lector de microplacas. El kit adapta el protocolo estándar en tubo a una detección de alto rendimiento en microplacas de 96 pocillos para el análisis de antioxidantes en lisados celulares. |
| si-LINC00707 | GenePharma (Shanghái, China) | NA | ARNi pequeño diseñado para reducir la expresión de LINC00707 en células BV2. Utilizado en experimentos de pérdida de función para evaluar los efectos del silenciamiento de LINC00707 sobre las respuestas inflamatorias, el estrés oxidativo, la expresión de miR-145-5p y la expresión de TRAF6. |
| si-LINC00707 NC | GenePharma (Shanghái, China) | NA | ARNi de secuencia no dirigida utilizado como control negativo para la transfección de si-LINC00707. Se utiliza para controlar los efectos no específicos del procedimiento de transfección y de la exposición al ARNi. |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | Mezcla universal lista para usar de PCR cuantitativa con SYBR Green para la cuantificación relativa de ARNm, que contiene ADN polimerasa Taq con activación térmica (hot-start), dNTPs, SYBR Green I y colorante de referencia ROX para la normalización de fluorescencia. Baja amplificación no específica, eficiencia de amplificación estable, aplicada ampliamente para la cuantificación de genes diana de ARNm (TRAF6, GAPDH, etc.). |
| Centrífuga de sobremesa pequeña Thermo Scientific™ Sorvall™ ST 8 | Thermo Scientific | 75200709 | La opción clásica para laboratorios clínicos, capaz de manejar hasta 24 × Tubos de recolección de sangre de 5/7 mL a la vez. La serie R es una versión refrigerada, que puede proteger mejor las muestras que requieren centrifugación a baja temperatura. |
| Kit de Síntesis de ADNc de Primera Cadena TIANScript II | TIANGEN | GKR107-02 | Diseñado para la transcripción inversa de ARNm en general, con el fin de generar ADNc de longitud larga hasta 12 kb. Equipado con cebadores Oligo (dT) 15 y hexámeros aleatorios para estrategias de cebado flexibles. La transcriptasa inversa M-MLV modificada lee eficientemente estructuras secundarias complejas y regiones de alto contenido de GC en el ARNm, con amplia compatibilidad para la amplificación posterior de ARNm mediante qPCR. |
| TNF-α Kit SimpleStep ELISA | Abcam | ab236712 | Un kit ELISA sandwich SimpleStep de un solo lavado rápido optimizado para la detección cuantitativa del factor de necrosis tumoral de rataα (TNF-α) en sobrenadante de cultivo celular, suero y diversas muestras de plasma. La duración total del ensayo es de 90 min, con una sensibilidad ultrarrápida de 1,04 pg/mL y un rango de detección lineal desde 15,63 pg/mL hasta 1000 pg/mL. Equipado con 8 desmontable×placa pre-recubierta de 12 pocillos; se registran los valores de DO a 450 nm para el TNF finalα cálculo cuantitativo |
| Kit de ensayo de superóxido dismutasa total (T-SOD) | Instituto de Bioingeniería Nanjing Jiancheng | A001-3-2 | Kit cromogénico en microplaca WST-1 para detectar la actividad enzimática total de SOD. La SOD elimina los radicales anión superóxido e inhibe la reacción de reducción de WST-1. La absorbancia se registra a 450 nm mediante un lector de microplacas para el cálculo de la actividad. Adecuado para homogenados celulares, suero y muestras de tejido, con desarrollo de color estable y alta repetibilidad para la evaluación de la capacidad antioxidante. |
| Reactivo TRIzol | Thermo Fisher Scientific | 15596018 | Reactivo monofásico de fenol-guanidina isotiocianato para el aislamiento en un solo paso de ARN total a partir de células de microglía en cultivo; extrae simultáneamente ADN y proteína a partir de muestras idénticas. |
Referencias
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.