Este estudio integra la farmacología de redes, el acoplamiento molecular validado y experimentos in vitro para evaluar las relaciones candidatas entre compuestos y dianas entre los constituyentes de Cordyceps sinensis y los procesos relacionados con la glomerulonefritis crónica. Se seleccionó el β-sitosterol para la validación a nivel de compuesto y se encontró que atenúa la activación inflamatoria y profibrótica en modelos de células mesangiales.
Artículo de método
Evaluación guiada por redes del β-sitosterol en modelos de células mesangiales inflamatorias y profibróticas relevantes para la glomerulonefritis crónica
* These authors contributed equally
En este artículo
Resumen
Resumen
La nefritis glomerular crónica (NGC) se caracteriza por una lesión inflamatoria persistente y una remodelación fibrosa progresiva, aunque las relaciones compuesto-diana subyacentes a las intervenciones basadas en productos naturales aún no están completamente definidas. Este estudio integró farmacología de redes, acoplamiento molecular validado y experimentos in vitro para evaluar los constituyentes candidatos de Cordyceps sinensis (C. sinensis) en procesos patológicos relacionados con la NGC. Se seleccionaron los constituyentes candidatos de C. sinensis, y los blancos asociados a compuestos derivados de la Base de Datos y Plataforma de Análisis de Farmacología Sistémica de la Medicina Tradicional China se intersectaron con genes asociados a NGC. Se utilizaron análisis de enriquecimiento funcional e interacción proteína-proteína para priorizar procesos biológicos y blancos centrales. Se identificó PTGS2 como un blanco superpuesto clave. Se realizó el acoplamiento molecular utilizando una estructura de COX-2 ligada a celecoxib. La reubicación del ligando celecoxib co-cristalizado reprodujo la conformación cristalográfica con una RMSD de 0,876 Å, lo que respalda el protocolo de acoplamiento. El β-sitosterol y el acetato de linoleilo mostraron compatibilidad predicha con la región de acoplamiento de COX-2, con afinidades de unión de −7,2 y −7,5 kcal/mol, respectivamente. Se seleccionó el β-sitosterol para la validación a nivel de compuesto en células mesangiales glomerulares de rata HBZY-1. A concentraciones de 0,5–10 µM, el β-sitosterol no redujo notablemente la viabilidad celular. En células estimuladas con lipopolisacárido (LPS), el β-sitosterol redujo la expresión de Tnf, Il6 y Ptgs2, disminuyó la producción de prostaglandina E2 (PGE2) y redujo la abundancia proteica de ciclooxigenasa-2 (COX-2). En células tratadas con factor de crecimiento transformante β1 (TGF-β1), el β-sitosterol redujo la expresión de Col1a1 y Acta2 y disminuyó la abundancia proteica de actina alfa del músculo liso (α-SMA). Estos hallazgos proporcionan evidencia generadora de hipótesis de que el β-sitosterol modula la activación inflamatoria y profibrotica en modelos de células mesangiales, aunque no establecen la inhibición enzimática directa de COX-2 ni la eficacia terapéutica en la NGC.
Introducción
La glomerulonefritis crónica (GNC) comprende un grupo heterogéneo de trastornos glomerulares que pueden progresar hacia enfermedad renal crónica y enfermedad renal en etapa terminal1. Se caracteriza por lesión glomerular persistente, activación inflamatoria y remodelación fibrosa progresiva2,3. Aunque se utilizan corticosteroides y agentes inmunosupresores en pacientes seleccionados, el control a largo plazo de la enfermedad sigue siendo difícil en muchos casos, y los efectos adversos relacionados con el tratamiento son frecuentes1,4,5. La progresión de la GNC implica procesos patológicos interrelacionados, incluyendo activación inmunitaria, disfunción endotelial, estrés oxidativo y acumulación de matriz extracelular3,6,7. Por lo tanto, identificar nodos moleculares que conecten respuestas inflamatorias y profibróticas podría ayudar a generar hipótesis comprobables para estrategias de intervención relevantes para la enfermedad.
Cordyceps sinensis (C. sinensis) se ha utilizado en contextos clínicos y experimentales relacionados con el riñón y se ha informado que ejerce efectos antiinflamatorios, antiapoptóticos y citoprotectores en varios modelos de enfermedades8,9,10. Sin embargo, la base molecular mediante la cual sus constituyentes candidatos podrían interactuar con dianas relevantes para la glomerulonefritis aún no está suficientemente definida11. Dada la naturaleza multicomponente de C. sinensis y la heterogeneidad mecanicista de la CGN, la farmacología de redes proporciona un marco útil para priorizar las relaciones candidatas entre compuestos, dianas y vías12,13.
En este estudio, se integraron la selección de compuestos, la recuperación de dianas terapéuticas, el análisis de intersección gen-enfermedad, el enriquecimiento funcional, el análisis de redes de interacción proteína-proteína, el acoplamiento molecular y la validación in vitro para explorar posibles relaciones moleculares entre los constituyentes candidatos de C. sinensis y los procesos patológicos relacionados con la NCG. La prostaglandina-endoperoxido sintasa 2 (PTGS2) se priorizó como una diana central en la red compuesto-enfermedad y se evaluó mediante acoplamiento molecular utilizando una estructura de ciclooxigenasa-2 (COX-2) unida a celecoxib, con validación por reacoplamiento. Con base en los resultados de la red, el análisis de acoplamiento y evidencia previa sobre actividad antiinflamatoria y antifibrótica, el β-sitosterol se seleccionó como un compuesto candidato representativo para la validación posterior14,15,16. Se utilizaron células mesangiales estimuladas con lipopolisacárido (LPS) para evaluar la activación inflamatoria y la respuesta asociada con COX-2/prostaglandina E2 (PGE2), mientras que se incluyó un modelo inducido por factor de crecimiento transformante β1 (TGF-β1) para evaluar la expresión de marcadores profibróticos.
Protocolo
Los análisis de farmacología de redes y bioinformática se basaron en bases de datos de acceso público y no involucraron participantes humanos ni animales. Los experimentos in vitro se realizaron utilizando una línea celular establecida y no requirieron aprobación ética de acuerdo con los requisitos institucionales.
Selección de componentes candidatos y recuperación de objetivos
Los constituyentes candidatos y sus dianas correspondientes se recuperaron de la Base de Datos y Plataforma de Análisis de Farmacología de la Medicina Tradicional China (TCMSP, por sus siglas en inglés) utilizando el término de búsqueda «dongchongxiacao» el 13 de julio de 2025. Se conservaron los compuestos con una biodisponibilidad oral predicha de al menos 30 % y similitud con fármacos de al menos 0,18. Siete constituyentes candidatos cumplieron ambos criterios de selección. Se registraron desde TCMSP el peso molecular, la biodisponibilidad oral, la similitud con fármacos y otros descriptores farmacocinéticos disponibles para su comparación descriptiva.
La información compuesto-diana asociada con los constituyentes retenidos se descargó directamente de TCMSP. Las entradas duplicadas de dianas se eliminaron manualmente al construir el conjunto de dianas no redundante, mientras que las relaciones originales compuesto-diana se conservaron para la construcción posterior de la red. Dado que TCMSP proporcionaba los nombres de las dianas en su forma completa en lugar de símbolos genéticos estandarizados, cada diana se buscó en la base de datos UniProt (acceso el 14 de julio de 2025). Se seleccionó la entrada correspondiente humana, y el nombre de la diana se convirtió al símbolo génico oficial. El conjunto de datos estandarizado compuesto-diana se utilizó para el análisis de intersección diana-enfermedad y para el análisis de la red compuesto-diana.
Recopilación de genes asociados a la glomerulonefritis e intersección de dianas
Los genes asociados con la enfermedad se recuperaron de GeneCards, DisGeNET, PharmGKB y la Therapeutic Target Database utilizando el término de búsqueda «glomerulonefritis» el 14 de julio de 2025. Para GeneCards, se conservaron las entradas con puntuaciones de relevancia superiores a la puntuación mediana de 10. Se incluyeron las entradas elegibles de las otras bases de datos según sus anotaciones curadas de enfermedad-diana. Los nombres de los genes se estandarizaron a los símbolos oficiales de genes humanos, y se eliminaron las entradas duplicadas. Este procedimiento produjo 1.134 genes únicos asociados con la glomerulonefritis. Dado que la búsqueda utilizó el término más amplio «glomerulonefritis», se consideró que el conjunto de datos resultante era relevante para los procesos moleculares asociados con la glomerulonefritis crónica, y no específico de un solo subtipo histopatológico.
Los objetivos asociados con los compuestos derivados de TCMSP se intersectaron con el conjunto de genes asociados con la enfermedad utilizando R. Se identificaron 23 objetivos superpuestos. Los diagramas de Venn se generaron utilizando el paquete de R venn, y la red de objetivos superpuestos de compuestos se construyó y visualizó utilizando Cytoscape. Las relaciones entre los constituyentes candidatos y los objetivos superpuestos se resumen en Tabla 1.
Análisis de enriquecimiento funcional y de interacciones proteína-proteína
Se realizaron análisis de enriquecimiento de Gene Ontology (GO) y Kyoto Encyclopedia of Genes and Genomes (KEGG) en R utilizando los paquetes clusterProfiler y org.Hs.eg.db. Los términos de Gene Ontology se analizaron en las categorías de proceso biológico, componente celular y función molecular. Los valores de P se ajustaron para comparaciones múltiples mediante el método de Benjamini-Hochberg, y se conservaron los términos o vías con valores de P ajustados inferiores a 0,05. Los términos y vías enriquecidos se representaron mediante gráficos de barras y gráficos de puntos generados independientemente.
Los 23 objetivos superpuestos se enviaron a STRING, seleccionando Homo sapiens como el organismo y un puntaje mínimo de interacción mayor a 0,4. La red resultante de interacciones proteína-proteína se importó a Cytoscape. La topología de la red se evaluó utilizando CytoNCA según el grado, la centralidad de intermediación, la centralidad de cercanía, la centralidad de vector propio, la conectividad promedio local y la centralidad de la red. Los objetivos centrales se definieron como nodos cuyos valores de grado, centralidad de intermediación, centralidad de cercanía, centralidad de vector propio, conectividad promedio local y centralidad de la red fueron todos mayores que los valores medianos correspondientes de la red. Este análisis priorizó nueve objetivos centrales para la interpretación posterior.
Alineamiento molecular y validación de re-alineamiento
Se realizó un acoplamiento molecular utilizando la estructura de la ciclooxigenasa-2 unida al celecoxib con el identificador PDB 3LN1. Se conservó la cadena A y su grupo hemo asociado como receptor, mientras que durante la preparación del receptor se eliminaron las moléculas de agua cristalográficas y el ligando de celecoxib co-cristalizado. La conformación nativa del celecoxib se extrajo por separado de la cadena A para la validación mediante reacoplamiento. Se añadieron átomos de hidrógeno polares y cargas de Gasteiger utilizando AutoDockTools, y el receptor se guardó en formato PDBQT. El identificador PDB 3LN1 corresponde a una estructura de 2,40 Å de COX-2 murino unido al celecoxib. Las estructuras del β-sitosterol y del acetato de linoleilo se obtuvieron de PubChem y se prepararon utilizando Open Babel. Se añadieron átomos de hidrógeno y cargas parciales de Gasteiger, se asignaron enlaces rotables y cada ligando se convirtió al formato PDBQT. El celecoxib, el β-sitosterol y el acetato de linoleilo se acoplaron utilizando AutoDock Vina con los mismos parámetros del receptor y del espacio de búsqueda.
La caja de acoplamiento se centró en la región de unión nativa de celecoxib utilizando las siguientes coordenadas: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. El valor de exhaustividad se estableció en 16, el número de modos de salida en 10 y el rango de energía en 3 kcal/mol. Se conservó la conformación mejor clasificada según la energía de unión predicha más baja para su visualización. Para la validación del protocolo, se realizó nuevamente el acoplamiento de la celecoxib nativa bajo las mismas condiciones, y se calculó la desviación cuadrática media de los átomos pesados entre las conformaciones cristalográfica y reacoplada utilizando PyMOL. Una desviación cuadrática media inferior a 2 Å se consideró una reproducción aceptable de la conformación de referencia. Se identificaron en PyMOL los residuos ubicados dentro de 4 Å de cada ligando acoplado. Las puntuaciones y conformaciones de acoplamiento se interpretaron como estimaciones de compatibilidad estructural y no como evidencia directa de unión al blanco o inhibición enzimática.
Cultivo celular y preparación del compuesto
Las células mesangiales glomerulares de rata HBZY-1 se cultivaron en medio de Eagle modificado por Dulbecco con alta concentración de glucosa, suplementado con 10% de suero bovino fetal y 1% de penicilina-estreptomicina, a 37 °C en condiciones húmedas con 5% de CO₂. Se utilizaron células en los pasajes 2–7 para todos los experimentos, y se verificó la ausencia de micoplasma antes del uso. El β-sitosterol y la celecoxib se utilizaron como compuestos químicamente definidos. El β-sitosterol se disolvió en etanol absoluto para obtener una solución madre de 10 mM (aproximadamente 4,15 mg/mL). Cuando fue necesario, se realizó una breve sonicación y calentamiento a 50–60 °C para lograr una solución visualmente clara. La celecoxib se disolvió en dimetilsulfóxido para preparar una solución madre de 10 mM (aproximadamente 3,81 mg/mL). Las soluciones madre se fraccionaron y almacenaron a −20 °C. Antes del tratamiento, las soluciones madre se diluyeron directamente en medio de cultivo previamente calentado y se mezclaron inmediatamente.
Las concentraciones del vehículo se igualaron dentro de cada experimento. En el ensayo de viabilidad celular, la concentración final de etanol se ajustó al 0,2% v/v en todos los grupos, ya que la concentración más alta de β-sitosterol probada fue de 20 µM. En el experimento inflamatorio inducido por LPS, las concentraciones finales de etanol y dimetilsulfóxido se ajustaron al 0,1% y 0,01% v/v, respectivamente, en todos los grupos. En el experimento profibrótico inducido por TGF-β1, la concentración final de etanol se ajustó al 0,1% v/v en todos los grupos. Se añadieron volúmenes equivalentes de los vehículos correspondientes a los grupos Control, LPS y TGF-β1.
Ensayo de viabilidad celular
Las células se sembraron en placas de 96 pocillos a una densidad de 5 × 10³ células por pocillo en 100 µL de medio completo y se dejaron adherir durante 24 h. Para evaluar el rango de concentración de β-sitosterol, las células se incubaron con 0,5, 1, 5, 10 o 20 µM de β-sitosterol durante 24 h. Para el ensayo de viabilidad celular relacionado con LPS, las células se pretrataron con β-sitosterol a 1, 5 o 10 µM durante 2 h, seguido de exposición a 1 µg/mL de lipopolisacárido durante 24 h adicionales.
Los grupos de tratamiento fueron Control, β-sitosterol a 0,5 µM, β-sitosterol a 1 µM, β-sitosterol a 5 µM, β-sitosterol a 10 µM, β-sitosterol a 20 µM, LPS, LPS más β-sitosterol a 1 µM, LPS más β-sitosterol a 5 µM y LPS más β-sitosterol a 10 µM. Se agregó el reactivo del Kit de Conteo de Células-8 a 10 µL por pocillo y las placas se incubaron durante 2 h. Luego se registró la absorbancia a 450 nm. La viabilidad celular se determinó tras restar el blanco sin células y se expresó en relación con el grupo Control. Cada condición incluyó seis pocillos técnicos en cada uno de seis experimentos biológicos independientes. Los valores de los pocillos técnicos de cada experimento se promediaron para generar un valor por réplica biológica para el análisis estadístico.
Activación inflamatoria inducida por LPS
Para los experimentos de activación inflamatoria, las células HBZY-1 se sembraron en placas de 6 pocillos a una densidad de 2 × 10⁵ células por pocillo y se trataron tras alcanzar aproximadamente un 70 %–80 % de confluencia. Las células se mantuvieron en medio suplementado con 1 % de suero bovino fetal durante 12 h antes del tratamiento. Se administró β-sitosterol o celecoxib 2 h antes de la estimulación con LPS. Posteriormente, las células se expusieron a 1 µg/mL de LPS durante 24 h.
Los grupos experimentales fueron Control, β-sitosterol a 10 µM, LPS, LPS más β-sitosterol a 1 µM, LPS más β-sitosterol a 5 µM, LPS más β-sitosterol a 10 µM, y LPS más celecoxib a 1 µM. Se incluyó celecoxib como control positivo funcional para la inhibición de la producción de prostaglandinas dependiente de COX-2. Al final del tratamiento, se recogieron los sobrenadantes del cultivo para la medición de PGE2. Las células se recogieron por separado para el análisis cuantitativo por PCR en tiempo real de Tnf, Il6 y Ptgs2, y para el análisis por inmunotransferencia de COX-2.
Activación profibrótica inducida por TGF-β1
Se utilizó un modelo independiente inducido por TGF-β1 para evaluar la activación profibrótica. Las células HBZY-1 se sembraron en placas de 6 pocillos a una densidad de 2 × 10⁵ células por pocillo y se mantuvieron en medio suplementado con 1 % de suero bovino fetal durante 12 h antes del tratamiento. Las células fueron pretratadas con β-sitosterol durante 2 h, seguido de estimulación con 10 ng/mL de TGF-β1 recombinante durante 48 h.
Los grupos de tratamiento incluyeron Control, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM) y TGF-β1 + β-sitosterol (10 µM). Al final del período de tratamiento, las células se recolectaron para el análisis cuantitativo por PCR en tiempo real de Col1a1 y Acta2 y para el análisis por inmunotransferencia de la actina alfa de músculo liso (α-SMA).
PCR cuantitativo en tiempo real
Se aisló ARN total de las células tratadas utilizando un reactivo de extracción de ARN basado en fenol-guanidinio, según el protocolo del fabricante. Se determinó la concentración y pureza del ARN utilizando un espectrofotómetro. Solo se utilizaron muestras con una relación A260/A280 de 1,8 a 2,0 para la transcripción inversa. Para cada muestra, 1 µg de ARN total se transcribió inversamente en ADN complementario en un volumen final de reacción de 20 µL. El ADN complementario resultante se diluyó cinco veces con agua libre de nucleasas antes de la PCR cuantitativa. La PCR cuantitativa se realizó en un volumen total de 20 µL que contenía 10 µL de mezcla maestra 2× SYBR Green, 0,4 µL de cada cebador (directo e inverso) a 10 µM, 2 µL de ADN complementario diluido y 7,2 µL de agua libre de nucleasas. Las condiciones de amplificación consistieron en un paso inicial de desnaturalización a 95 °C durante 30 s, seguido de 40 ciclos de desnaturalización a 95 °C durante 5 s y hibridación-extensión a 60 °C durante 30 s. Posteriormente, se realizó un análisis de curva de fusión desde 65 °C hasta 95 °C para verificar la especificidad de la amplificación.
Los genes medidos fueron Tnf, Il6, Ptgs2, Col1a1, Acta2 y Gapdh. Gapdh sirvió como gen de referencia interno. La expresión génica relativa se determinó utilizando el método 2−ΔΔCt, utilizando al grupo Control como calibrador. Las secuencias de los cebadores se proporcionan en la Tabla Suplementaria 1. Cada muestra se analizó por triplicado técnico y se realizaron seis experimentos biológicos independientes. Los valores obtenidos de los réplicas técnicas se promediaron antes del análisis estadístico.
Medición de PGE2 mediante ensayo inmunoenzimático
Los sobrenadantes de cultivo se recogieron tras 24 h de estimulación con LPS y se centrifugaron a 1.000 ×g durante 10 min a 4 °C para eliminar los restos celulares. Las concentraciones de PGE2 se determinaron utilizando un kit comercial de ensayo inmunoenzimático según las instrucciones del fabricante.
Se cargaron estándares y muestras en la placa de ensayo por duplicado. Después de completar los pasos de unión del anticuerpo y desarrollo del color, se registró la absorbancia a 450 nm utilizando un lector de microplacas. Las concentraciones de PGE2 se determinaron a partir de una curva estándar logística de cuatro parámetros y se expresaron en pg/mL. Se analizaron sobrenadantes de seis experimentos celulares independientes. Las mediciones por duplicado de cada muestra biológica se promediaron antes del análisis estadístico.
Transferencia Western
Las células tratadas se lisaron en tampón de ensayo de radioinmunoensayo (RIPA) suplementado con una mezcla de inhibidores de proteasas. Los lisados se incubaron en hielo durante 30 min y se centrifugaron a 12.000 × g durante 15 min a 4 °C. Las concentraciones de proteína en los sobrenadantes se determinaron mediante un ensayo de proteína con ácido bicinconínico. Se mezclaron cantidades iguales de proteína (30 µg por pocillo) con tampón de carga y se desnaturalizaron a 95 °C durante 5 min. Las proteínas de los experimentos con LPS se separaron en geles de poliacrilamida al 10 % con dodecilsulfato de sodio, mientras que las de los experimentos con TGF-β1 se separaron en geles al 12 %. Las proteínas separadas se transfirieron posteriormente a membranas de fluoruro de polivinilideno.
Las membranas se bloquearon con leche descremada al 5 % en solución salina tamponada con Tris que contenía Tween 20 al 0,1 % durante 1 h a temperatura ambiente y luego se incubaron durante la noche a 4 °C con anticuerpos primarios contra COX-2 (1:1000), α-SMA (1:1000) y GAPDH (1:5000). COX-2 se analizó en muestras del experimento con LPS, mientras que α-SMA se analizó en muestras del experimento con TGF-β1. Después del lavado, las membranas se incubaron con anticuerpos secundarios conjugados con peroxidasa de rábano picante (1:5000) durante 1 h a temperatura ambiente. Las bandas proteicas se visualizaron utilizando un sustrato de quimioluminiscencia mejorado y se capturaron con un sistema de imagen de quimioluminiscencia. Los tiempos de exposición fueron aproximadamente 10 s para COX-2, 10 s para α-SMA y 2 s para GAPDH.
Las intensidades de las bandas se cuantificaron utilizando ImageJ. Las señales de COX-2 y α-SMA se normalizaron respecto a la señal correspondiente de GAPDH. Se realizó inmunotransferencia por Western utilizando muestras proteicas obtenidas de seis experimentos independientes de cultivo celular y tratamiento.
Análisis estadístico
Los análisis estadísticos se realizaron utilizando GraphPad Prism. Los datos se presentan como la media ± desviación estándar. Se llevaron a cabo seis experimentos independientes de cultivo celular y tratamiento para cada análisis cuantitativo, siendo cada experimento independiente un réplica biológica. Las mediciones de réplicas técnicas obtenidas del mismo experimento biológico se promediaron antes del análisis estadístico y no se consideraron observaciones independientes.
Para el ensayo de viabilidad celular, cada experimento biológico incluyó seis pocillos técnicos por condición. Las reacciones de PCR cuantitativa se realizaron por triplicado técnico para cada muestra biológica, y las mediciones de PGE2 se realizaron por duplicado. La cuantificación mediante inmunotransferencia se basó en seis muestras proteicas preparadas independientemente. Por lo tanto, cada barra cuantitativa contiene seis valores individuales de réplicas biológicas.
Las diferencias entre múltiples grupos se analizaron mediante un análisis de varianza unifactorial seguido de la prueba de comparación múltiple de Tukey. Se consideró estadísticamente significativo un valor de P bilateral < 0,05. Los valores individuales de los réplicas biológicos se mostraron junto con la media y la desviación estándar.
Resultados
Selección de Constituyentes Candidatos, Recuperación de Blancos y Superposición de Blancos
El flujo de trabajo para la identificación de dianas superpuestas candidatas entre compuestos y enfermedades se resume en la Figura 1A. Siete compuestos candidatos de C. sinensis cumplieron con los criterios predefinidos de cribado de OA ≥30% y BD ≥0,18, incluyendo ácido araquidónico, acetato de linoleilo, β-sitosterol, peroxiergosterol, cerevisterol, palmitato de colesterol y CLR (Tabla 2). Paralelamente, se recuperaron 1.134 genes asociados a glomerulonefritis de GeneCards, DisGeNET, PharmGKB y TTD, y su distribución entre las cuatro bases de datos se muestra en la Figura 1B. El análisis de intersección entre el conjunto de dianas asociadas a compuestos y el conjunto de genes asociados a la enfermedad identificó 23 dianas superpuestas (Tabla 1, Figura 1C). La red correspondiente de compuestos–dianas superpuestas se presenta en la Figura 1D, ilustrando las relaciones entre los compuestos candidatos representativos, las dianas superpuestas y la CGN. Estas dianas superpuestas incluyeron varios genes relacionados con la regulación inflamatoria, apoptosis y señales asociadas al sistema vascular, tales como PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A y NOS3.
Análisis de Enriquecimiento Funcional y de Interacciones Proteína-Proteína
Para investigar la significancia biológica de los 23 blancos superpuestos, se realizaron análisis de enriquecimiento de vías GO y KEGG. Los resultados revelaron que estos blancos están enriquecidos significativamente en múltiples vías relacionadas con la inflamación y el metabolismo.
El análisis GO clasificó los objetivos en las categorías de proceso biológico (BP), componente celular (CC) y función molecular (MF). Los términos BP más significativamente enriquecidos incluyeron respuesta al lipopolisacárido, respuesta a moléculas de origen bacteriano y regulación de los procesos del sistema muscular. A nivel celular, los objetivos se enriquecieron en compartimentos de balsas de membrana, caveolas y gránulos alfa de plaquetas, mientras que los términos MF como actividad de oxidorreductasa y unión a receptores nucleares implicaron además funciones en estrés oxidativo y regulación transcripcional (Figura 2A).
El análisis KEGG reveló que la vía de lípidos y aterosclerosis (hsa05417) fue la más significativamente enriquecida (valor q <1 × 10⁻⁶), junto con vías como la señalización AGE-RAGE en complicaciones diabéticas, la señalización de TNF, la señalización de IL-17 y la señalización de HIF-1 (Figura 2B). Notablemente, la vía de lípidos y aterosclerosis incluyó 10 de los 23 objetivos, entre ellos CASP3, MAPK1, PPARG, NOS3 y TNFRSF1A.
En conjunto, estos resultados de enriquecimiento indican que los objetivos superpuestos están funcionalmente asociados con procesos biológicos relacionados con la inflamación, la respuesta al estrés y el endotelio, relevantes para la NCG.
Análisis de la red de interacciones proteína-proteína
Se construyó una red de interacciones proteína-proteína (PPI) para los 23 objetivos superpuestos utilizando STRING, lo que dio como resultado una red que contiene 23 nodos y 102 aristas (Figura 3A). El análisis topológico mediante CytoNCA identificó nueve objetivos centrales altamente conectados: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 y PRKCA (Figura 3B). Entre estos objetivos, PTGS2 mostró una centralidad de red prominente y, por lo tanto, fue seleccionado para el posterior análisis de acoplamiento molecular. Estos resultados destacan un subconjunto de reguladores candidatos priorizados por la red, potencialmente relevantes para la intersección compuesto-enfermedad.
Validación de Acoplamiento Molecular y Reacoplamiento
Para evaluar más a fondo la plausibilidad estructural de las relaciones candidatas asociadas a PTGS2 identificadas mediante el análisis de redes, se realizó un acoplamiento molecular utilizando una estructura de COX-2 unida a celecoxib. Se seleccionó la estructura cristalina con el identificador PDB 3LN1 porque contiene celecoxib unido al sitio activo de COX-2, lo que proporciona un bolsillo de unión al ligando definido experimentalmente para la validación del acoplamiento. Primero, se extrajo el ligando celecoxib co-cristalizado y se volvió a acoplar en el mismo bolsillo de unión. La posición del celecoxib reacoplado reprodujo estrechamente la posición cristalográfica, con una desviación cuadrática media (RMSD) de reacoplamiento de 0,876 Å y una afinidad de unión predicha de -12,3 kcal/mol (Figura 4A). Este resultado indicó que el protocolo de acoplamiento fue capaz de reproducir la posición conocida de unión del ligando bajo las condiciones de acoplamiento seleccionadas.
Utilizando el mismo receptor, caja de rejilla y parámetros de acoplamiento, se realizó el acoplamiento molecular de β-sitosterol en la región de unión a COX-2 definida por la celecoxib. El β-sitosterol mostró una afinidad de unión predicha de -7,2 kcal/mol (Figura 4B). La conformación acoplada se ubicó dentro de la región de acoplamiento a COX-2 previamente definida, y los residuos que rodeaban dicha conformación de β-sitosterol incluyeron ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 y TYR341.
El acetato de linoleilo también se evaluó como candidato computacional secundario porque se mantuvo en la lista de constituyentes candidatos y se asoció con PTGS2 en el análisis de red. Bajo las mismas condiciones de acoplamiento molecular, el acetato de linoleilo mostró una afinidad de unión predicha de -7,5 kcal/mol, que fue ligeramente más favorable que la del β-sitosterol (Figura 4C). Su conformación predicha se ubicó cerca del ligando de referencia celecoxib dentro de la región de acoplamiento. Los residuos que rodean al acetato de linoleilo incluyeron ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 y VAL509.
Viabilidad celular, activación inflamatoria y activación profibrótica
Se seleccionó el β-sitosterol para la validación a nivel de compuesto porque se identificó como un candidato asociado a PTGS2 en el análisis de red y tenía respaldo experimental previo por su actividad antiinflamatoria y antifibrotica. Primero se evaluó la viabilidad celular para determinar el rango de concentraciones adecuado para los experimentos posteriores. El tratamiento con β-sitosterol a 0,5, 1, 5 y 10 µM no redujo notablemente la viabilidad celular en comparación con el grupo control, mientras que 20 µM de β-sitosterol provocó una disminución leve. La exposición a LPS redujo la viabilidad celular, y el tratamiento conjunto con β-sitosterol mejoró parcialmente la viabilidad celular bajo estimulación con LPS, con el efecto más evidente observado a 10 µM (Figura 5A). Basándose en estos resultados, se utilizaron concentraciones de 1, 5 y 10 µM de β-sitosterol en los siguientes experimentos de activación inflamatoria inducida por LPS.
La estimulación con LPS aumentó notablemente la expresión de ARNm de genes inflamatorios en células HBZY-1. En comparación con el grupo control, el grupo tratado con LPS mostró niveles más altos de expresión de Tnf, Il6 y Ptgs2 (Figura 5B-D). El tratamiento con β-sitosterol redujo la sobreexpresión inducida por LPS de estos genes de manera dependiente de la concentración. La tendencia inhibitoria fue más evidente en el grupo con LPS más 10 µM de β-sitosterol. La celecoxib, incluida como control funcional de inhibición de COX-2, también redujo en cierta medida la expresión de genes inflamatorios, aunque su efecto fue menos pronunciado que el observado con 10 µM de β-sitosterol en varios marcadores transcripcionales (Figura 5B-D).
Dado que Ptgs2 codifica COX-2 y PGE2 es un importante producto prostaglandínico derivado de la actividad de COX-2, se midió la secreción de PGE2 mediante ELISA. El tratamiento con LPS aumentó la concentración de PGE2 en el sobrenadante de cultivo en comparación con el grupo control. El β-sitosterol disminuyó la producción de PGE2 inducida por LPS de manera dependiente de la concentración. La celecoxib también redujo la producción de PGE2 y sirvió como control positivo para la inhibición funcional del eje COX-2/PGE2 (Figura 5E). El análisis por inmunotransferencia mostró además que la LPS aumentó la abundancia de la proteína COX-2. El tratamiento con β-sitosterol redujo los niveles de la proteína COX-2 bajo estimulación con LPS, observándose una reducción más marcada a la concentración más alta. En contraste, la celecoxib redujo la producción de PGE2 pero mostró un efecto más limitado sobre la abundancia de la proteína COX-2 (Figura 5F).
Para complementar el modelo inflamatorio inducido por LPS, se utilizó un modelo de activación profibrótica inducida por TGF-β1 para evaluar si el β-sitosterol afectaba la expresión de marcadores fibróticos en células mesangiales. La TGF-β1 aumentó notablemente la expresión de ARNm de Col1a1 y Acta2 en comparación con el grupo control (Figura 6A,B). El β-sitosterol redujo el aumento inducido por TGF-β1 en ambos marcadores, y la reducción fue más evidente a 10 µM que a 5 µM (Figura 6A,B). El análisis por inmunotransferencia mostró un aumento correspondiente en la expresión de la proteína α-SMA tras la estimulación con TGF-β1, mientras que el tratamiento con β-sitosterol disminuyó la abundancia de la proteína α-SMA en células tratadas con TGF-β1 (Figura 6C).
DISPONIBILIDAD DE LOS DATOS:
Los datos brutos y procesados que respaldan este estudio se han depositado en Zenodo bajo el DOI: https://zenodo.org/records/21649482. Las imágenes de escaneo completo del perno western se proporcionan en el Archivo Suplementario 1.
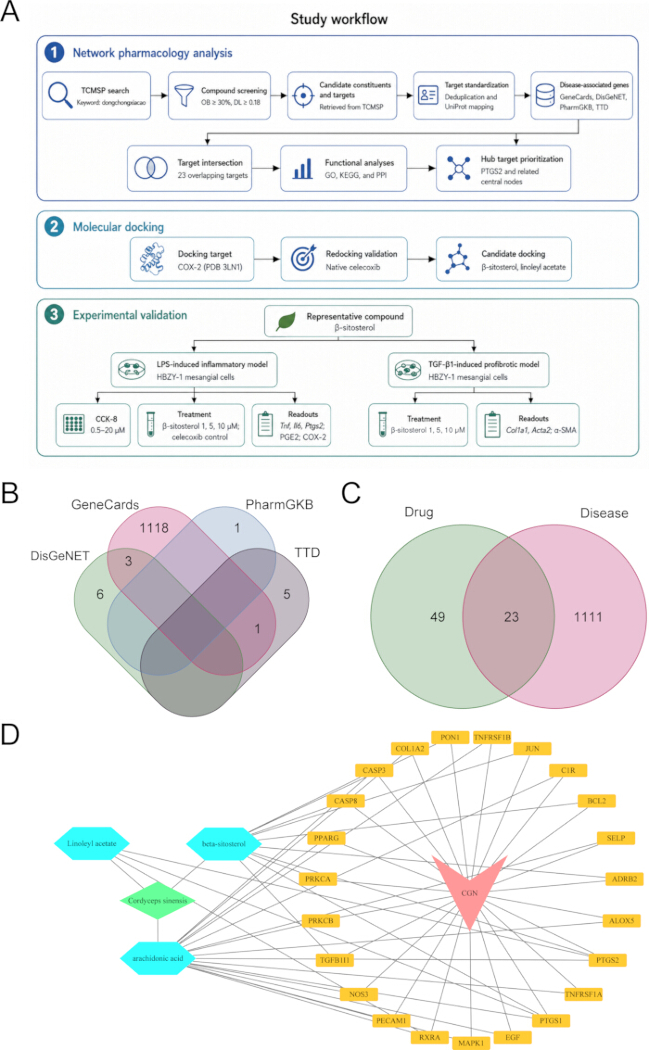
Figura 1. Flujo de trabajo y red basada en la identificación de dianas superpuestas candidatas de compuestos y enfermedades de C. sinensis en la glomerulonefritis. (A) Esquema del flujo de trabajo que muestra la identificación de compuestos candidatos, recuperación y normalización de dianas asociadas a compuestos, recuperación de genes asociados a glomerulonefritis, análisis de intersección y construcción de la red de compuestos–dianas superpuestas. (B) Diagrama de Venn que ilustra la distribución de genes asociados a glomerulonefritis obtenidos de GeneCards, DisGeNET, PharmGKB y TTD. (C) Diagrama de Venn que muestra la superposición entre dianas asociadas a compuestos derivadas de TCMSP y genes asociados a la enfermedad, obteniendo 23 dianas superpuestas. (D) Red de compuestos–dianas superpuestas. El diamante verde representa a C. sinensis, los hexágonos azules indican compuestos candidatos, los círculos amarillos indican dianas superpuestas y el triángulo rosa representa CGN. Las aristas indican las relaciones correspondientes entre compuesto–diana o enfermedad–diana. Haga clic aquí para ver una versión más grande de esta figura.
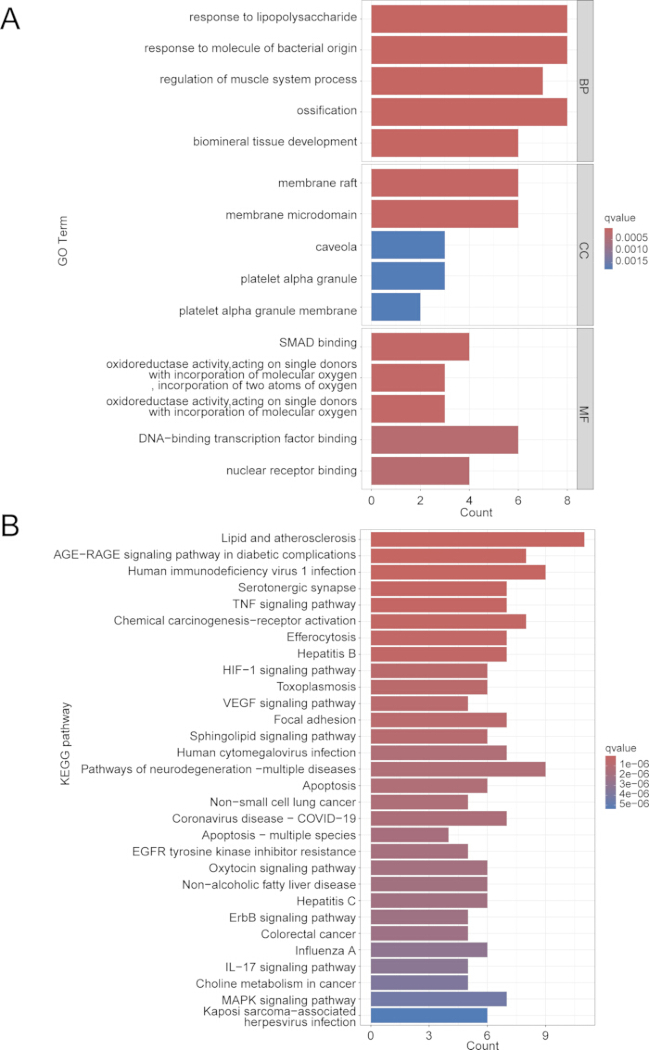
Figura 2. Análisis de enriquecimiento funcional de los blancos superpuestos. (A) Análisis de enriquecimiento GO de los 23 blancos superpuestos. Se identificaron los principales términos BP, CC y MF. La longitud de las barras indica el número de genes; el gradiente de color representa el valor q. (B) Análisis de enriquecimiento KEGG de los 23 blancos superpuestos. Las vías se ordenan según el número de genes y la significancia estadística. Haga clic aquí para ver una versión más grande de esta figura.
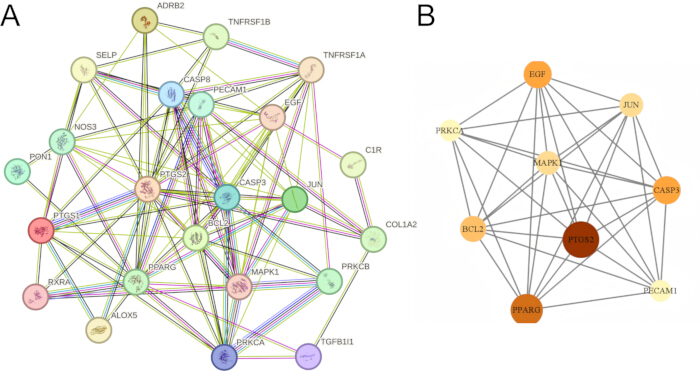
Figura 3. Red de interacciones proteína-proteína y priorización de dianas centrales de los blancos superpuestos. (A) Red de interacciones proteína-proteína construida a partir de los 23 blancos superpuestos utilizando STRING con un umbral de puntuación de interacción >0,4. (B) Las nueve principales dianas centrales se priorizaron mediante análisis de la topología de la red basado en CytoNCA. PTGS2 mostró una centralidad destacada en la red y fue seleccionado para el posterior análisis de acoplamiento molecular. Haga clic aquí para ver una versión más grande de esta figura.
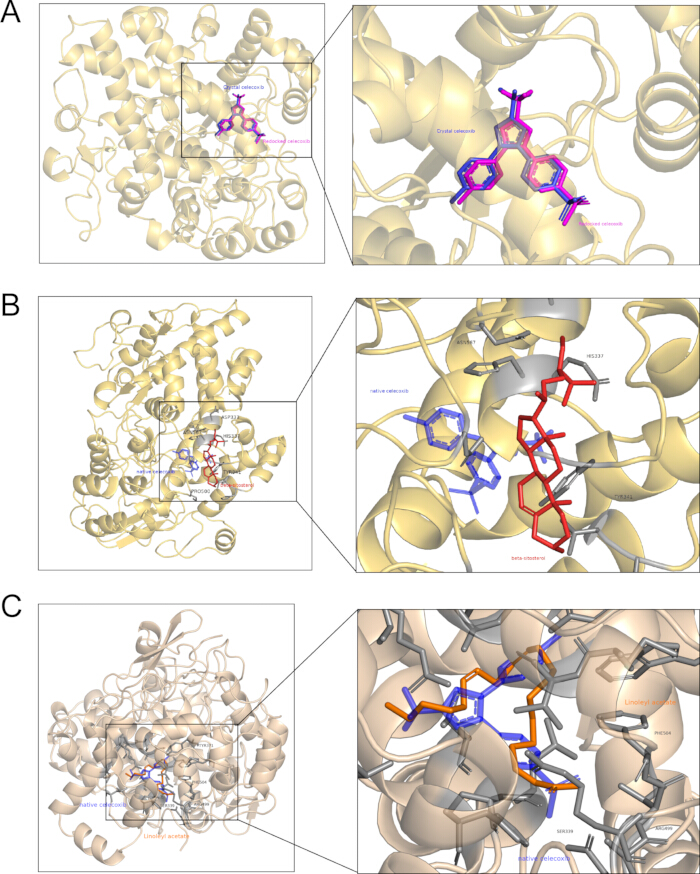
Figura 4. Acoplamiento molecular y validación por reacoplamiento de los compuestos candidatos seleccionados con COX-2. (A) Superposición de la conformación cristalográfica de la celecoxib y la conformación reacoplada mejor clasificada en la estructura de COX-2 murino unida a celecoxib (PDB ID 3LN1). El reacoplamiento reprodujo la orientación experimental de unión. (B) Conformación mejor clasificada del β-sitosterol dentro de la región de acoplamiento de COX-2 definida por la celecoxib. Se incluye la conformación cristalográfica de la celecoxib como referencia espacial. (C) Conformación mejor clasificada del acetato de linoleilo dentro de la misma región de acoplamiento. Haga clic aquí para ver una versión más grande de esta figura.
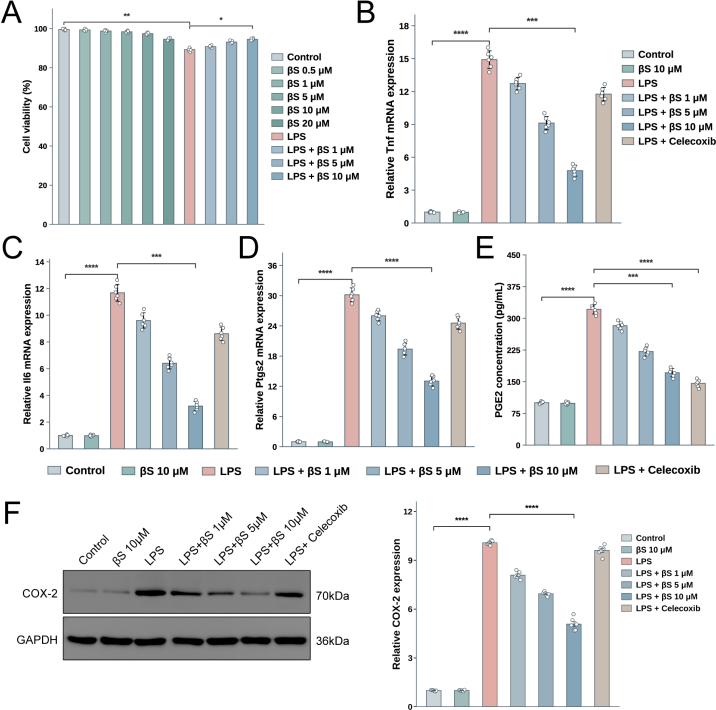
Figura 5. El β-sitosterol atenúa la activación inflamatoria inducida por LPS y la producción de PGE2 en células mesangiales HBZY-1. (A) La viabilidad celular se midió mediante el ensayo con el Kit de Conteo Celular-8. Las células fueron tratadas con β-sitosterol a 0,5, 1, 5, 10 o 20 µM durante 24 h. En los grupos estimulados con LPS, las células fueron pretratadas con β-sitosterol a 1, 5 o 10 µM durante 2 h antes de la exposición a 1 µg/mL de LPS durante 24 h. La viabilidad celular se expresó en relación con el grupo Control. (B–D) Análisis cuantitativo por PCR en tiempo real de la expresión de ARNm de Tnf (B), Il6 (C) y Ptgs2 (D). La expresión génica se normalizó respecto a Gapdh y se expresó en relación con el grupo Control. (E) Concentraciones de PGE2 en los sobrenadantes de cultivo medidas mediante ensayo inmunoenzimático (ELISA). Se incluyó celecoxib como control positivo funcional para la supresión de la producción de prostaglandinas dependiente de COX-2. (F) Imágenes representativas de inmunotransferencia tipo Western de COX-2 y GAPDH en los grupos de tratamiento indicados. Los datos se presentan como media ± DE de seis experimentos biológicos independientes, mostrándose los valores individuales de cada réplica biológica. Los valores de las réplicas técnicas se promediaron antes del análisis. Las comparaciones se realizaron mediante ANOVA de un factor seguido de la prueba de comparaciones múltiples de Tukey. La significancia se indica mediante corchetes en los paneles individuales: *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001. Haga clic aquí para ver una versión más grande de esta figura.
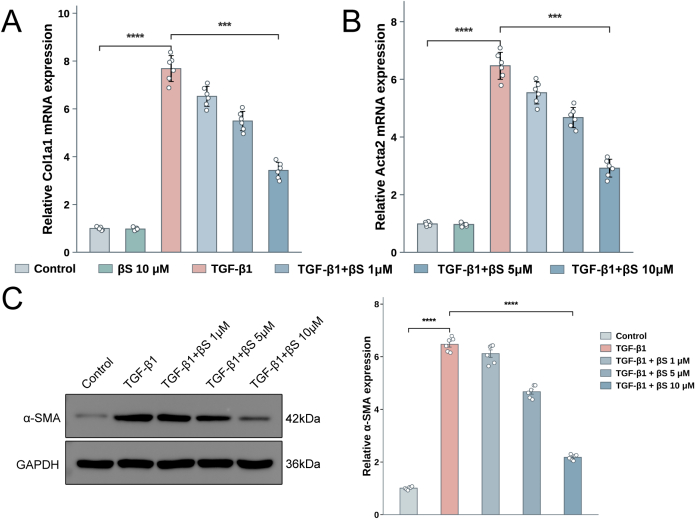
Figura 6. El β-sitosterol reduce la expresión de marcadores profibróticos inducida por TGF-β1 en células mesangiales HBZY-1. (A–B) Análisis por PCR cuantitativa en tiempo real de la expresión de ARNm de Col1a1 (A) y Acta2 (B). La expresión génica se normalizó respecto a Gapdh y se expresó en relación con el grupo Control. (C) Imágenes representativas de inmunoensayos tipo Western blot de α-SMA y GAPDH en los grupos de tratamiento indicados. Los datos se presentan como media ± DE de seis experimentos biológicos independientes, mostrándose los valores individuales de cada réplica biológica. Los valores de las réplicas técnicas se promediaron antes del análisis. Las comparaciones se realizaron mediante ANOVA de un factor seguido de la prueba de comparaciones múltiples de Tukey. La significancia se indica mediante corchetes en los paneles individuales: *P < 0,05, **P < 0,01, ***P < 0,001 y ****P < 0,0001. Haga clic aquí para ver una versión ampliada de esta figura.
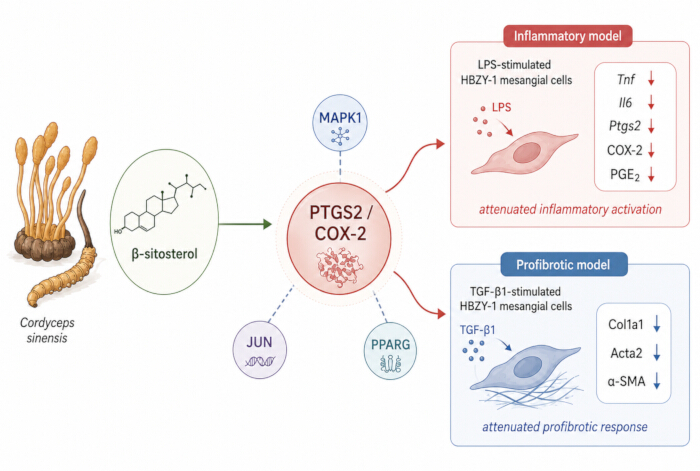
Figura 7. Interpretación integrada de las respuestas inflamatorias y profibróticas asociadas al β-sitosterol en células HBZY-1. Los análisis de red y de acoplamiento molecular priorizaron a PTGS2/COX-2 dentro de un contexto más amplio que incluyó a MAPK1, JUN y PPARG. El tratamiento con β-sitosterol se asoció con reducciones en la expresión inducida por LPS de Tnf, Il6 y Ptgs2, en la abundancia del proteína COX-2 y en la producción de PGE2, así como con reducciones en la expresión inducida por TGF-β1 de Col1a1, Acta2 y α-SMA. Haga clic aquí para ver una versión más grande de esta figura.
| N.º | Objetivo superpuesto | Compuesto(s) candidato(s) asociado(s) con el objetivo |
| 1 | PTGS1 | β-sitosterol; acetato de linoleilo; ácido araquidónico |
| 2 | PTGS2 | β-sitosterol; acetato de linoleilo; ácido araquidónico |
| 3 | CASP3 | β-sitosterol; ácido araquidónico |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | acetato de linoleilo; ácido araquidónico |
| 12 | TNFRSF1A | ácido araquidónico |
| 13 | TNFRSF1B | ácido araquidónico |
| 14 | ALOX5 | ácido araquidónico |
| 15 | SELP | ácido araquidónico |
| 16 | C1R | ácido araquidónico |
| 17 | COL1A2 | ácido araquidónico |
| 18 | PPARG | ácido araquidónico |
| 19 | PRKCB | ácido araquidónico |
| 20 | NOS3 | ácido araquidónico |
| 21 | PECAM1 | ácido araquidónico |
| 22 | MAPK1 | ácido araquidónico |
| 23 | EGF | ácido araquidónico |
Tabla 1: Objetivos superpuestos entre los objetivos asociados a compuestos derivados de TCMSP y los genes asociados a glomerulonefritis. Los registros de compuestos-objetivo se recuperaron de TCMSP, se desduplicaron manualmente y se normalizaron a símbolos genéticos humanos oficiales utilizando UniProt.
| Nombre de la molécula | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| Ácido araquidónico | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Acetato de linoleilo | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroxiergosterol | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Cerevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Palmitato de colesterol | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Colesterol (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tabla 2: Constituyentes candidatos de C. sinensis recuperados de TCMSP mediante criterios de cribado de biodisponibilidad oral y similitud con fármacos. Se conservaron los compuestos con una biodisponibilidad oral de al menos 30 % y similitud con fármacos de al menos 0,18. MW, peso molecular; ALogP, coeficiente de partición octanol-agua predicho; OB, biodisponibilidad oral; Caco-2, permeabilidad predicha en Caco-2; BBB, penetración en la barrera hematoencefálica; DL, similitud con fármacos; FASA, área superficial accesible negativa fraccional; HL, semivida.
Tabla suplementaria 1. Secuencias de cebadores utilizadas para la PCR cuantitativa en tiempo real en células mesangiales glomerulares de rata HBZY-1. Todas las secuencias se presentan en dirección 5′ a 3′.Haga clic aquí para descargar este archivo.
Archivo suplementario 1. Imágenes completas de las transferencias Western blot.Haga clic aquí para descargar este archivo.
Discusión
Este estudio integró la farmacología de redes, el acoplamiento molecular validado con ligandos de referencia y experimentos a nivel de compuestos para examinar una hipótesis asociada a PTGS2 derivada de los constituyentes candidatos de C. sinensis. Siete constituyentes cumplieron con los criterios predefinidos de cribado en TCMSP, y 23 dianas se superpusieron con el conjunto de genes asociados a glomerulonefritis. El análisis de interacción proteica priorizó nueve dianas centrales, entre las cuales se seleccionó PTGS2 para evaluación mediante acoplamiento y experimentación. La reacoplación de celecoxib reprodujo su conformación cristalográfica, mientras que el β-sitosterol y el acetato de linoleilo mostraron una compatibilidad predicha moderada con la región de acoplamiento de COX-2. En células mesangiales HBZY-1, el β-sitosterol redujo la expresión génica inflamatoria inducida por LPS, la abundancia de COX-2 y la producción de PGE2, además de disminuir la expresión de marcadores profibróticos inducida por TGF-β1. Estos hallazgos conectan la priorización computacional con fenotipos celulares, pero respaldan una relación reguladora candidata más que un mecanismo terapéutico definido.
Los resultados de enriquecimiento ubicaron los objetivos superpuestos dentro de procesos biológicos relacionados con la estimulación inflamatoria, el estrés celular, la regulación de lípidos, la función vascular y la remodelación de tejidos. El enriquecimiento de las respuestas a lipopolisacárido y productos bacterianos fue coherente con el modelo inflamatorio utilizado para la validación experimental. Las vías relacionadas con TNF, IL-17, AGE-RAGE y HIF-1 también proporcionaron un contexto funcional plausible para la inflamación glomerular y la remodelación maladaptativa6,17,18,19. No obstante, el enriquecimiento de vías refleja la concentración estadística de genes anotados y no establece la activación o inhibición de una vía por el β-sitosterol12. Por lo tanto, la anotación destacada en lípidos y aterosclerosis debe interpretarse como una biología inflamatoria, apoptótica y vascular compartida, más que como evidencia de que la aterosclerosis represente el mecanismo principal de la enfermedad en la NCG. De manera similar, se utilizaron los datos de biodisponibilidad oral, similitud con fármacos y dianas terapéuticas basados en TCMSP para priorizar los candidatos.
PTGS2 surgió como un nodo relevante porque estaba presente en la intersección de enfermedades compuestas, mostraba una alta centralidad en la red y se encontraba vinculado experimentalmente a cambios en la transcripción de Ptgs2, en la abundancia de la proteína COX-2 y en la producción de PGE2. La concordancia entre los niveles computacional y celular refuerza la justificación para examinar la respuesta asociada a PTGS2. Sin embargo, esto no implica que PTGS2 sea uniformemente patogénico en el riñón. Los prostanoides derivados de la COX participan en el flujo sanguíneo renal, el manejo de sales y la homeostasis adaptativa, y pueden ejercer efectos protectores o dañinos según el tipo celular, la distribución de receptores, la fase de la enfermedad y la concentración local20,21. En la nefritis experimental, el celecoxib redujo la producción relacionada con PGE2, mientras que el propio PGE2 influyó en la expresión de receptores de prostaglandinas en células mesangiales22. Estas observaciones ilustran que las consecuencias biológicas de la COX-2 y el PGE2 van más allá de una simple vía proinflamatoria lineal20,23. La comparación con el celecoxib ayuda a distinguir la expresión del blanco de la función enzimática. El celecoxib produjo la reducción más clara en PGE2, lo que concuerda con su papel como inhibidor funcional de la COX-2, pero tuvo un efecto más limitado sobre la expresión de Ptgs2 y la abundancia de la proteína COX-222. El β-sitosterol mostró un patrón más amplio que incluyó niveles más bajos de Tnf, Il6, Ptgs2, COX-2 y PGE2. Esta diferencia no indica una potencia inhibidora superior sobre la COX-2. Más bien, sugiere que el β-sitosterol podría alterar el estado inflamatorio en el que se induce PTGS2, mientras que el celecoxib limita principalmente la síntesis de prostaglandinas mediante la inhibición de la actividad catalítica. Serían necesarios ensayos enzimáticos directos, estudios de interacción con el blanco y perturbaciones de PTGS2 para determinar si el β-sitosterol también interactúa funcionalmente con la COX-2.
Los hallazgos de la red también sugieren que PTGS2 no debe interpretarse como un nodo molecular aislado. MAPK1, JUN y PPARG fueron priorizados conjuntamente en la red de interacción proteica, situando la síntesis de prostanoides dentro de un contexto más amplio de señalización y transcripción. En células mesangiales renales, la esfingosina 1-fosfato aumentó la expresión de COX-2 y la formación de PGE2 mediante la señalización p42/p44 MAPK dependiente del receptor S1P2, lo que proporciona evidencia directa de que la actividad de MAPK puede situarse aguas arriba de la respuesta COX-2/PGE2 en este tipo celular24. Dado que JUN es un componente principal del complejo del factor de transcripción AP-1, AP-1 podría constituir una interfaz entre la activación de MAPK y la transcripción de PTGS2. En consonancia con esta posibilidad, la 15-desoxi-Δ12,14-prostaglandina J2 suprimió la expresión de COX-2 inducida por IL-1β junto con la actividad de AP-1 en células mesangiales en cultivo25. En modelos celulares no renales, el β-sitosterol redujo la activación de ERK y p38, la señalización de NF-κB, la expresión de COX-2 y la producción de citoquinas inflamatorias tras la exposición a LPS14,15. Estas observaciones proporcionan un contexto plausible para las reducciones coordinadas en Tnf, Il6, Ptgs2, COX-2 y PGE2 observadas en el presente estudio. Sin embargo, los estudios citados sobre β-sitosterol se realizaron en células microgliales o endoteliales, no en células mesangiales renales, y aquí no se midieron la fosforilación de MAPK1 ni la actividad de JUN. Por lo tanto, los resultados actuales no establecen un mecanismo de regulación de PTGS2 dependiente de MAPK1 o de JUN por acción del β-sitosterol. PPARG podría interrelacionarse con la red centrada en PTGS2 mediante regulación transcripcional sensible a lípidos y modulación del fenotipo profibrótico de la célula mesangial, más que como un efector lineal simple aguas abajo de PTGS2. En células mesangiales glomerulares, ligandos naturales y sintéticos de PPARγ inhibieron la expresión de fibronectina inducida por TGF-β1, mientras que otros estudios mostraron que los agonistas de PPARγ redujeron la activación de células mesangiales inducida por TGF-β, la expresión de α-SMA y la acumulación de colágeno IV mediante la atenuación de la señalización PKA y CREB26,27. Trabajos más recientes en ratones diabéticos y en células mesangiales glomerulares estimuladas con alta concentración de glucosa situaron a NF-κB/COX-2 y PPARγ/UCP2 en ejes reguladores paralelos asociados con la inflamación y la fibrosis renal, lo que apoya una posible convergencia funcional sin demostrar un acoplamiento directo entre PTGS2 y PPARG28. Estos hallazgos proporcionan un contexto biológicamente plausible para las reducciones en Col1a1, Acta2 y α-SMA observadas en el presente modelo con TGF-β1. Sin embargo, no se evaluó la expresión de PPARG, su actividad transcripcional ni la unión de ligandos. Por lo tanto, los datos actuales no permiten atribuir la respuesta profibrótica observada a la activación de PPARG ni definir una vía de señalización secuencial MAPK1-PTGS2-PPARG. Es importante destacar que MAPK1 y PPARG fueron priorizados a nivel de la red integrada compuesto-enfermedad y no deben interpretarse como dianas directas del β-sitosterol según el análisis actual.
El análisis de acoplamiento debe interpretarse dentro del mismo límite de evidencia. Un RMSD de reacoplamiento de 0,876 Å indicó que el protocolo de acoplamiento seleccionado podía reproducir la orientación conocida del celecoxib en la estructura 3LN1. Las afinidades predichas considerablemente menos favorables del β-sitosterol y el acetato de linoleilo en comparación con el celecoxib apoyan la acomodación espacial dentro de la región predefinida, pero no una fuerza de unión equivalente ni una acción farmacológica29,30. La diferencia de 0,3 kcal/mol entre el acetato de linoleilo y el β-sitosterol es demasiado pequeña para justificar una clasificación biológica por sí sola. Se seleccionó el β-sitosterol para pruebas posteriores porque su asociación en la red iba acompañada de una literatura experimental más amplia relacionada con la inflamación y la fibrosis14,15,16. Estudios previos informaron reducciones en TNF-α, IL-6 y COX-2 en células microgliales y endoteliales expuestas a LPS, junto con cambios en la señalización de MAPK y NF-κB14,15. El ácido araquidónico requiere una interpretación diferente porque es un sustrato endógeno de COX21. Su presencia en la red derivada de TCMSP no indica una acción inhibitoria antiinflamatoria y ejemplifica que las relaciones entre compuestos y dianas basadas en bases de datos no definen la direccionalidad. Las reducciones relacionadas con la concentración en marcadores inflamatorios observadas en células HBZY-1 son coherentes con estos hallazgos celulares previos, extendiendo además la evidencia a un contexto mesangial glomerular14,15. El modelo de TGF-β1 abordó un aspecto distinto del proceso de la enfermedad31. El β-sitosterol redujo la transcripción de Col1a1 y Acta2 y disminuyó la abundancia de α-SMA tras la estimulación con TGF-β1. Trabajos anteriores en células epiteliales alveolares humanas encontraron de forma similar que el β-sitosterol redujo la expresión de colágeno, fibronectina y α-SMA inducida por TGF-β1, aunque dicho estudio involucraba un tejido y un proceso celular diferentes16. Por lo tanto, los hallazgos actuales apoyan una actividad contra un fenotipo profibrótico en células mesangiales, pero no establecen la inhibición de un receptor específico de TGF-β ni de un mecanismo dependiente de SMAD31.
Varias limitaciones definen el alcance de la interpretación. El conjunto de genes asociados a la enfermedad se generó utilizando el término amplio glomerulonefritis y no es específico de un subtipo clínico o histológico de NGC. El análisis computacional utilizó anotaciones humanas, el acoplamiento molecular empleó una estructura de COX-2 murina y los experimentos se realizaron en células HBZY-1 de rata. Las relaciones ortólogas permiten la comparación, pero es posible que existan diferencias dependientes de la especie en la regulación y el reconocimiento de ligandos. Una sola línea celular mesangial inmortalizada no puede representar las interacciones entre células mesangiales, podocitos, células endoteliales, células inmunitarias infiltrantes y el compartimento tubulointersticial. El estudio tampoco evaluó el enlace directo, la actividad enzimática de COX-2, la dependencia de PTGS2, células renales humanas primarias, la eficacia in vivo, la farmacocinética ni la exposición renal. Finalmente, probar una preparación definida de β-sitosterol resuelve la inconsistencia previa entre los constituyentes predichos y un extracto no caracterizado, pero no establece que el β-sitosterol sea el responsable de los efectos del C. sinensis completo ni que otros constituyentes sean inactivos.
En conjunto, los hallazgos de red, de acoplamiento molecular y los basados en células apoyan al β-sitosterol como un candidato representativo asociado con la reducción de la activación inflamatoria y profibrótica en células HBZY-1. Los resultados son consistentes con una modulación de la respuesta relacionada con PTGS2/COX-2/PGE2, pero no establecen un acoplamiento directo a COX-2, una causalidad dependiente de PTGS2 ni una eficacia terapéutica en la NCG. Se requieren estudios adicionales sobre interacción con el blanco, perturbación genética, células primarias y estudios in vivo (Figura 7).
Divulgaciones
Los autores declaran que no tienen intereses en conflicto. Se utilizaron herramientas basadas en inteligencia artificial (ChatGPT, OpenAI) para ayudar en la edición del lenguaje y en el diseño preliminar de figuras esquemáticas. La inteligencia artificial generativa se empleó para ayudar en la elaboración de borradores gráficos preliminares de las Figuras 1A y 7, que posteriormente fueron revisadas y modificadas por los autores para garantizar su coherencia con los métodos y resultados descritos. Todos los productos generados con asistencia de IA fueron evaluados críticamente y aprobados por los autores. Los autores verificaron el contenido final de las figuras y asumieron toda responsabilidad por la integridad y exactitud del manuscrito.
Agradecimientos
Este estudio fue apoyado por la Especialidad Característica de Nefropatía con Medicina Tradicional China y Medicina Occidental Integrada (ZYTSZK2-3) y por el Estudio sobre la Estrategia de Intervención de la Medicina Tradicional China en la Enfermedad Renal Crónica desde la Perspectiva de la Gestión de Enfermedades Crónicas (202240169).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Etanol absoluto | Sigma-Aldrich/Merck | E7023 | Etanol grado biología molecular no desnaturalizado, 200 pruebas; disolvente para el stock de β-sitosterol. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | Simulación de acoplamiento molecular |
| Cabina de seguridad biológica | Thermo Fisher Scientific | 1300 Series A2 | Operaciones estériles de cultivo celular |
| Celecoxib | MedChemExpress | HY-14398 | Inhibidor selectivo de COX-2 utilizado como control positivo; stock de 10 mM en DMSO. |
| Kit de conteo celular-8 | Dojindo Molecular Technologies, Inc. | CK04 | Ensayo colorimétrico WST-8 para viabilidad celular; absorbancia medida a 450 nm. |
| Sistema de imagen quimioluminiscente | Bio-Rad Laboratories | ChemiDoc MP | Adquisición de imágenes de inmunotransferencia (Western blot) |
| Paquete R clusterProfiler | Bioconductor | Version 4.10.0 | Análisis de enriquecimiento GO y KEGG |
| Incubadora de cultivo celular con CO2 | Thermo Fisher Scientific | Forma Series II 3111 | Incubación de cultivos celulares a 37 °C y 5 % de CO2 |
| Anticuerpo monoclonal de conejo COX-2 (D5H5) | Cell Signaling Technology | 12282 | Validado para inmunotransferencia (Western blot) en COX-2 humano, de ratón y de rata; utilizado a 1:1.000. |
| Complemento CytoNCA | Tienda de aplicaciones de Cytoscape | Version 2.1.6 | Análisis topológico de objetivos centrales |
| Software Cytoscape | Consortium Cytoscape | Version 3.8.0 | Visualización y análisis de redes |
| DMSO (dimetilsulfóxido) | Sigma-Aldrich/Merck | D2650 | Reagente BioReagent filtrado estéril, ≥99,7 %; disolvente para el stock de celecoxib. |
| Base de datos DisGeNET | Grupo de Informática Biomédica Integradora | No aplicable | Recuperación de genes asociados a glomerulonefritis |
| Medio de Eagle modificado de Dulbecco (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Medio basal para el cultivo celular HBZY-1 |
| Sustrato quimioluminiscente mejorado | Beyotime Biotechnology | P0018S | Visualización de bandas en inmunotransferencia (Western blot) |
| Suero bovino fetal | Gibco/Thermo Fisher Scientific | 10099-141C | Suplemento sérico para cultivo celular |
| Anticuerpo monoclonal de conejo GAPDH (D16H11) | Cell Signaling Technology | 5174 | Control de carga en inmunotransferencia (Western blot); reacciona con GAPDH humano, de ratón y de rata; utilizado a 1:5.000 tras optimización interna. |
| Base de datos GeneCards | Instituto Weizmann de Ciencia | NA | Recuperación de genes asociados a glomerulonefritis |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | Análisis estadístico de datos experimentales in vitro |
| Anticuerpo secundario de cabra anti-IgG de conejo conjugado con HRP | Proteintech Group | SA00001-2 | Anticuerpo secundario para anticuerpos primarios de conejo |
| Software ImageJ | National Institutes of Health | Version 1.54 | Análisis densitométrico de inmunotransferencia (Western blot) |
| Microscopio invertido de contraste de fase | Olympus | CKX53 | Observación de la morfología celular |
| Paquete R org.Hs.eg.db | Bioconductor | Version 3.18.0 | Anotación genética humana para análisis de enriquecimiento |
| Solución de penicilina-estreptomicina | Gibco/Thermo Fisher Scientific | 15140122 | Suplemento antibiótico para cultivo celular |
| Kit de ensayo de parámetros de PGE2 | R&D Systems, una marca de Bio-Techne | KGE004B | ELISA competitivo multiespecie para sobrenadantes de cultivo celular; rango del ensayo 39–2.500 pg/mL; detección colorimétrica a 450 nm. |
| Base de datos PharmGKB | Pharmacogenomics Knowledgebase | NA | Recuperación de objetivos relacionados con enfermedades |
| Base de datos PubChem | Centro Nacional de Información Biotecnológica | NA | Recuperación de estructuras de ligandos |
| Membrana de PVDF | Millipore/Merck | IPVH00010 | Membrana para transferencia proteica en inmunotransferencia (Western blot) |
| Sistema gráfico molecular PyMOL | Schrödinger, LLC | Version 2.6.2 | Visualización de poses de acoplamiento |
| Software R | R Foundation for Statistical Computing | Version 4.3.2 | Análisis de intersección y enriquecimiento de objetivos |
| Línea celular de mesangio glomerular de rata (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | Modelo in vitro para validación en células mesangiales |
| Banco de datos RCSB de proteínas | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | Recuperación de la estructura cristalina de PTGS2/COX2 |
| Proteína recombinante humana TGF-β1 | PeproTech, una marca de Thermo Fisher Scientific | 100-21-10UG | TGF-β1 recombinante humano derivado de HEK293; estimulación profibrótica a 10 ng/mL. |
| Sistema de electroforesis SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Separación de proteínas mediante SDS-PAGE |
| Base de datos STRING | ELIXIR/STRING Consortium | Version 12.0 | Construcción de red de interacción proteína-proteína |
| Base de datos TCMSP | Traditional Chinese Medicine Systems Pharmacology Database | NA | Selección de compuestos candidatos de Cordyceps sinensis |
| Base de datos de objetivos terapéuticos | Grupo de Investigación de Fármacos Innovadores e Informática Biomédica | NA | Recuperación de objetivos terapéuticos |
| Anticuerpo primario α-SMA | Proteintech Group | 14395-1-AP | Detección de expresión proteica de α-SMA |
| β-Sitosterol (pureza >98 %) | MedChemExpress | HY-N0171A | CAS 83-46-5; compuesto definido utilizado para tratamiento celular; stock de 10 mM en etanol absoluto. |
Referencias
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).