Este estudio examinó los niveles de expresión sérica de miR-3619-5p en pacientes con diabetes tipo 2 e investigó el papel regulador de esta molécula en la función de las células β pancreáticas. El miR-3619-5p está regulado a la baja en la DM2 y podría estar involucrado en la regulación de la función de las células β pancreáticas mediante el blanco MTA3.
Artículo de investigación
Significado clínico de la expresión de miR-3619-5p en pacientes con diabetes tipo 2 y su regulación de la proliferación de las células β pancreáticas
En este artículo
Resumen
Resumen
La característica patológica principal de la diabetes mellitus tipo 2 (DM2) es la falla de las células β pancreáticas; por lo tanto, la identificación de biomarcadores circulantes efectivos y dianas moleculares que regulen la homeostasis de las células β pancreáticas tiene una importancia práctica significativa. Como moléculas reguladoras clave de la expresión génica, los miARN desempeñan un papel importante en la proliferación, apoptosis y secreción de insulina de las células β pancreáticas. El objetivo de este estudio es investigar los patrones de expresión y el valor clínico de miR-3619-5p en el suero de pacientes con DM2 y aclarar su función reguladora en la proliferación de células β pancreáticas. Se utilizó RT-qPCR para detectar la expresión de miR-3619-5p y MTA3. Las curvas ROC se emplearon para evaluar el desempeño diagnóstico. Se utilizaron análisis bioinformáticos y ensayos de doble luciferasa para validar la relación entre diana y ligando. La proliferación celular se midió mediante el ensayo CCK-8, mientras que la apoptosis se analizó mediante citometría de flujo. Los niveles de secreción de insulina se midieron mediante ELISA. Los resultados mostraron que miR-3619-5p y MTA3 estaban regulados a la baja en pacientes con DM2 y en células β pancreáticas. miR-3619-5p podría ser un biomarcador para el diagnóstico de la DM2; su sobreexpresión promueve la proliferación celular, inhibe la apoptosis y aumenta la secreción de insulina. miR-3619-5p se dirige y regula a MTA3, y ambos presentan una correlación positiva significativa. El análogo de miR-3619-5p puede revertir el daño causado por si-MTA3 a la función de las células β pancreáticas. En resumen, miR-3619-5p está regulado a la baja en la DM2 y posee valor diagnóstico. miR-3619-5p podría participar en la regulación de la función de las células β pancreáticas al dirigirse a MTA3.
Introducción
El trastorno metabólico crónico diabetes mellitus tipo 2 (DM2) se manifiesta principalmente como resistencia a la insulina acompañada de una pérdida progresiva de la función secretora de insulina, y representa más del 80 % de todos los casos de diabetes1. Su patogénesis es compleja, e involucra una combinación de factores genéticos y ambientales, así como anomalías en la regulación celular y molecular2,3. Dado que las células β pancreáticas son las principales responsables de la secreción de insulina, una disminución anormal en su capacidad proliferativa es una causa clave de la secreción insuficiente de insulina en la DM24. Actualmente, el diagnóstico clínico de la DM2 depende principalmente de indicadores tradicionales como la glucosa en sangre y la hemoglobina glucosilada (HbA1c); sin embargo, su sensibilidad para la detección temprana y la predicción de la progresión de la enfermedad es limitada5. Existe una necesidad urgente de identificar biomarcadores sensibles y específicos, así como dianas reguladoras clave, para proporcionar nuevas estrategias para el diagnóstico y tratamiento preciso de la DM2.
Bajo la influencia de la glucotoxicidad inducida por la hiperglucemia prolongada, la proliferación de las células β pancreáticas se ve restringida y la apoptosis aumenta, lo que conduce a una pérdida gradual de la secreción de insulina dependiente de glucosa; este proceso es un factor clave que impulsa la progresión continua de la enfermedad6,7. Los microARN (miARN) están implicados en diversos procesos fisiológicos en las células8, y ejercen un efecto regulador crucial sobre procesos fisiológicos, incluyendo la proliferación de células de los islotes pancreáticos, la apoptosis y la secreción de insulina9,10. Varios estudios han demostrado que diversos miARN se expresan anormalmente en la DM2 y están estrechamente implicados en la patogénesis de la enfermedad11,12,13. El miR-3619-5p participa en procesos biológicos, incluyendo la proliferación celular y la apoptosis, y la investigación actual sobre este miARN se ha centrado principalmente en el campo de la oncología14,15. Se ha observado expresión anormal del miR-3619-5p en tumores malignos, incluyendo carcinoma de células escamosas de la piel, cáncer de pulmón, cáncer colorrectal y cáncer gástrico, donde regula genes diana para influir en la proliferación, metástasis y apoptosis de las células tumorales16,17,18,19. Sin embargo, aún existe una clara brecha en la investigación sobre las características de expresión clínica, la relevancia clínica y los mecanismos de regulación de la función pancreática del miR-3619-5p en la DM2.
Como un componente principal de la familia MTA, MTA3 media las interacciones proteína-proteína y la regulación transcripcional de genes, y participa ampliamente en procesos fisiológicos clave, incluyendo la proliferación celular, la apoptosis y el metabolismo20. La investigación actual sobre MTA3 se ha centrado principalmente en oncología21,22,23, con escasos estudios que investigan su papel en enfermedades metabólicas, particularmente en la diabetes tipo 2 (T2DM). Algunos estudios han encontrado que MTA3, como un gen asociado a la diabetes, participa en la regulación de la fibrosis hepática inducida por hiperglucemia24. Esto sugiere que MTA3 podría estar involucrado en la progresión de la T2DM; sin embargo, si está regulado por miR-3619-5p en el contexto de la T2DM aún debe confirmarse.
En resumen, la investigación existente sobre el miR-3619-5p se ha limitado en gran medida a modelos tumorales e inflamatorios; su perfil de expresión clínica en la DM2 y su papel en la homeostasis de las células β pancreáticas y en los trastornos del metabolismo de la glucosa permanecen por explorar. Por lo tanto, este estudio tiene como objetivo verificar la relación diana entre el miR-3619-5p y MTA3 mediante la evaluación de la expresión y el significado clínico del miR-3619-5p en el suero de pacientes con DM2, así como investigar su papel regulador en la proliferación de las células β pancreáticas, proporcionando así una nueva base teórica para la investigación sobre la patogénesis de la DM2 y para el diagnóstico y tratamiento clínicos.
Protocolo
Este estudio fue aprobado por el Comité de Ética Médica del Hospital Popular de TongzhouBay (número de aprobación: 2024122001). Los procedimientos utilizados en este estudio se adhieren a los principios de la Declaración de Helsinki. Se obtuvo consentimiento informado de todos los participantes incluidos en el estudio. Se obtuvo consentimiento para publicación de los datos de cada persona incluida en el estudio.
Sujetos de investigación
En este estudio se seleccionaron retrospectivamente 102 pacientes con DM2 diagnosticados en nuestro hospital entre enero de 2022 y junio de 2023. Los participantes elegibles cumplían con los criterios diagnósticos de DM2, incluyendo glucemia en ayunas ≥7,0 mmol/L y glucemia posprandial a las 2 h ≥11,1 mmol/L, no habían recibido tratamiento con insulina ni con fármacos antidiabéticos de nueva generación en los últimos 3 meses, no presentaban complicaciones graves en órganos como el corazón, hígado, riñones u otros, ni antecedentes de tumores malignos, enfermedades autoinmunes o enfermedades infecciosas, y contaban con historiales clínicos completos. Se excluyeron a pacientes con diabetes tipo 1 u otros tipos específicos de diabetes, aquellos en estado de estrés debido a infección grave, trauma, cirugía u otras causas, quienes hubieran utilizado glucocorticoides, inmunosupresores u otros medicamentos similares en los últimos 3 meses, así como mujeres embarazadas o en período de lactancia. También se incluyó un grupo control compuesto por 80 individuos que se sometieron a exámenes de salud rutinarios en nuestro hospital durante el mismo período.
Recolección de muestras
Todos los participantes del estudio permanecieron en ayunas durante al menos 8–12 h; se recolectaron 5 mL de sangre venosa a primera hora de la mañana y se dispensaron en tubos EP libres de RNasas, se centrifugaron (3000 × g, 10 min) para separar el suero y se almacenaron a -80 °C para su uso futuro.
Cultivo celular y tratamiento
La línea celular de células β de islotes pancreáticos de rata INS-1 se cultivó en medio RPMI 1640 que contenía 10% de suero bovino fetal y 1% de penicilina-estreptomicina. Las células INS-1 se cultivaron en medio que contenía 25 mM de glucosa para establecer un modelo de daño celular inducido por glucosa alta (HG)25. En el grupo no tratado, las células INS-1 se cultivaron en medio RPMI 1640 (que contenía 11,1 mM de glucosa).
La transfección se realizó utilizando el kit de transfección con análogos de miR-3619-5p, control en blanco de miARN (miR-NC), si-MTA3 y un control en blanco (si-NC). Los análogos de miR-3619-5p, el inhibidor de miR-3619-5p, el ARNip y los controles negativos correspondientes se adquirieron todos de RiboBio. Concentración del análogo de miARN: 50 nM; concentración del inhibidor de miARN: 100 nM; concentración de ARNip: 50 nM. Los experimentos subsiguientes se llevaron a cabo 48 h después de la transfección. Las secuencias relevantes se muestran en la Tabla Suplementaria 1.
Reacción en cadena de la polimerasa cuantitativa por retrotranscripción (RT-qPCR)
Se utilizó el reactivo TRIzol para extraer ARN total del suero, mientras que el kit miRNeasy Mini se empleó para extraer ARN total de las células. Para la detección de miR-3619-5p, se realizó la retrotranscripción utilizando un kit de retrotranscripción; tras la síntesis de ADNc, se utilizó un kit de cuantificación de microARN, con U6 como control interno. Para la detección de MTA3, la retrotranscripción a ADNc se llevó a cabo utilizando un kit de retrotranscripción de ARNm, y la RT-qPCR se realizó con un kit de cuantificación de ARNm, utilizando GAPDH como control interno. Los cambios en la expresión de miR-3619-5p y MTA3 se analizaron mediante el método 2-ΔΔCt. Las secuencias de los cebadores se muestran en la Tabla Suplementaria 1.
Ensayo de luciferasa dual (DLR)
Las regiones 3'-UTR de tipo silvestre (WT) y mutantes (MUT) de MTA3 que contienen el sitio de unión de miR-3619-5p se clonaron en el vector pmirGLO. El vector se transfectó simultáneamente con el mimético de miR-3619-5p y con el inhibidor de miR-3619-5p en células 293T utilizando reactivos de transfección. Los grupos de control de transfección incluyeron: el grupo con plásmido reportero vacío (Control) y el grupo con transfección de control negativo de ARNmi (miR-NC). A las 48 h, se midió la actividad luciferasa relativa utilizando un sistema de reportero de luciferasa dual, empleando la actividad de luciferasa Renilla como control interno. Cada grupo consta de tres réplicas biológicas independientes, siendo cada réplica biológica compuesta por tres réplicas técnicas.
Ensayo de proliferación celular
Siembre las células transfectadas en una placa de 96 pocillos. Después de cultivar durante 0 h, 24 h, 48 h y 72 h, respectivamente, agregue 10 μL del reactivo CCK-8 a cada pocillo, incube a 37 °C durante 2 h y mida la absorbancia a 450 nm utilizando un lector de microplacas.
Ensayo de apoptosis
Lave las células tres veces con PBS, luego resuspenda en 200 μL de tampón de unión que contiene 10 μL de anexina V-FITC y 5 μL de yoduro de propidio. Incube durante 15 min a temperatura ambiente en la oscuridad. Añada 300 μL de tampón de unión y analice inmediatamente las células mediante citometría de flujo para calcular la tasa de apoptosis.
Ensayo por inmunoabsorción ligado a enzimas (ELISA)
Las células transfectadas se sembraron en una placa de 96 pocillos y se mantuvieron en ayunas durante la noche a 37 °C. El medio de cultivo se reemplazó con una solución que contenía 25 mM de glucosa y las células se cultivaron durante 1 h; luego se recogió el medio de cultivo de las células INS-1 tratadas para medir la secreción de insulina. Las células INS-1 se resuspendieron en metanol ácido, se sometieron a sonicación y se recogió el sobrenadante para determinar el contenido total de insulina. Se utilizó el Kit de ELISA para insulina de rata y el ensayo se realizó según las instrucciones del fabricante. El ensayo utiliza los estándares de referencia suministrados con el kit para construir una curva de calibración; la concentración absoluta de insulina se calcula en función de los valores de absorbancia de las muestras, siendo la unidad de concentración absoluta μUI/mL. Finalmente, la capacidad de secreción de insulina se evaluó normalizando los niveles de insulina medidos en el medio de cultivo respecto al contenido total de insulina intracelular. Los datos en los gráficos estadísticos se presentan como cambios en las veces (fold changes), calculados en relación con el grupo control.
Western blot
Se recolectaron las células transfectadas de cada grupo y se agregó tampón de lisis RIPA. La concentración total de proteína se determinó mediante el método BCA. Se mezclaron 50 μg de proteína total con tampón de carga 5× y se hirvieron durante 10 min. Tras la electroforesis en gel de poliacrilamida al 10 % con SDS, se transfirieron las proteínas a una membrana de fluoruro de polivinilideno. Se bloqueó con leche descremada al 5 % durante 1 h; se añadieron los anticuerpos primarios MTA3 (1:1000) y GAPDH (1:1000) y se incubó toda la noche a 4 °C; se lavó la membrana con TBST, luego se agregó el anticuerpo secundario de cabra anti-IgG de conejo marcado con HRP (1:1000) y se incubó a temperatura ambiente durante 1 h; se visualizó mediante el método de quimioluminiscencia ECL.
Análisis estadístico
Los datos cuantitativos se expresan como media ± desviación estándar. Antes de realizar el análisis estadístico, se utilizó la prueba de Shapiro-Wilk para verificar la normalidad de los datos, y la prueba de Levene para evaluar la homogeneidad de las varianzas, con el fin de determinar la idoneidad de las pruebas paramétricas. Los resultados de estas pruebas indicaron que todos los datos cuantitativos de este estudio siguieron una distribución normal y satisficieron el supuesto de homogeneidad de varianzas; por lo tanto, se emplearon pruebas paramétricas para el análisis estadístico. Se utilizó una prueba t para muestras independientes para analizar los datos de dos grupos, mientras que para comparaciones entre múltiples grupos se empleó un análisis de varianza de un factor (ANOVA) con la prueba post-hoc de Tukey. Se utilizaron diagramas de dispersión para evaluar las relaciones lineales entre variables. Se aplicó el análisis de correlación de Pearson, cuando se cumplieron los supuestos de normalidad y linealidad. El análisis de correlación de Pearson incluyó a los 102 participantes; no se excluyeron valores atípicos. La agrupación de puntos observada en el diagrama de dispersión se debe a la superposición de las observaciones de las muestras. Todos los experimentos incluyeron tres muestras replicadas, y cada experimento se repitió tres veces. Se consideró estadísticamente significativo un valor de p <0.05.
Resultados
Comparación de las características demográficas y parámetros metabólicos clínicos entre los participantes del estudio
Los resultados de la comparación mostraron que los niveles de glucosa en ayunas y de HbA1c estaban marcadamente elevados en pacientes con DM2 (P < 0.001), mientras que no hubo diferencias significativas en otros parámetros (P > 0.05) (Tabla 1).
Expresión y significado clínico de miR-3619-5p
El análisis de RT-qPCR reveló que la expresión de miR-3619-5p en el suero de pacientes con DM2 se redujo significativamente (P < 0,001; Figura 1A). El análisis de la curva ROC mostró que el AUC para miR-3619-5p en el diagnóstico de la DM2 fue de 0,871 (IC del 95 %: 0,820–0,922) (Figura 1B). Además, los resultados de un análisis de correlación de Pearson realizado en 102 pacientes con DM2 mostraron que la expresión de miR-3619-5p se relacionó de forma marcada e inversa con la glucemia en ayunas (Figura 1C) y con el HbA1c (Figura 1D).
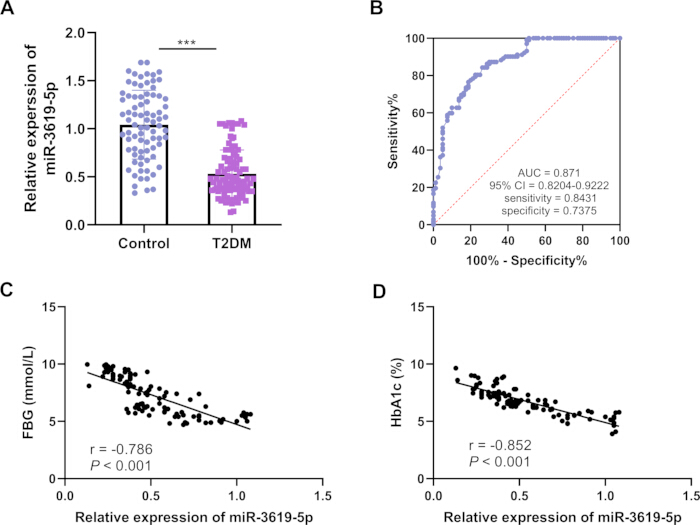
Figura 1: Expresión y significado clínico de miR-3619-5p. (A) Análisis mediante RT-qPCR de la expresión de miR-3619-5p en el suero de pacientes con DM2. (B) Curva ROC para el diagnóstico de DM2 utilizando miR-3619-5p. (C) Análisis de correlación de Pearson entre la expresión relativa de miR-3619-5p y la glucosa en sangre en ayunas (FBG). (D) Análisis de correlación de Pearson entre la expresión relativa de miR-3619-5p y HbA1c. Las barras de error representan la desviación estándar (DE); Control, n = 80; DM2, n = 102. ***P < 0.001 Haga clic aquí para ver una versión ampliada de esta figura.
El efecto de miR-3619-5p en la función de las células β pancreáticas
Realizamos ensayos funcionales celulares en células β pancreáticas INS-1 tratadas con glucosa alta (HG) para imitar la progresión de la DM2. Los resultados revelaron que la expresión de miR-3619-5p se redujo significativamente tras el tratamiento con HG (P < 0,001), mientras que la transfección con un mimético de miR-3619-5p aumentó notablemente su expresión (P < 0,01; Figura 2A). En cuanto a la proliferación y apoptosis celular, el tratamiento con HG inhibió marcadamente la proliferación celular y promovió la apoptosis (P < 0,001), mientras que el mimético de miR-3619-5p promovió la proliferación e inhibió la apoptosis tras el tratamiento con HG (P < 0,01; Figura 2B,C). Los resultados del ELISA mostraron que la secreción de insulina se redujo significativamente tras el tratamiento con HG (P < 0,001), mientras que el mimético de miR-3619-5p aumentó la secreción de insulina tras el tratamiento con HG (P < 0,01; Figura 2D).
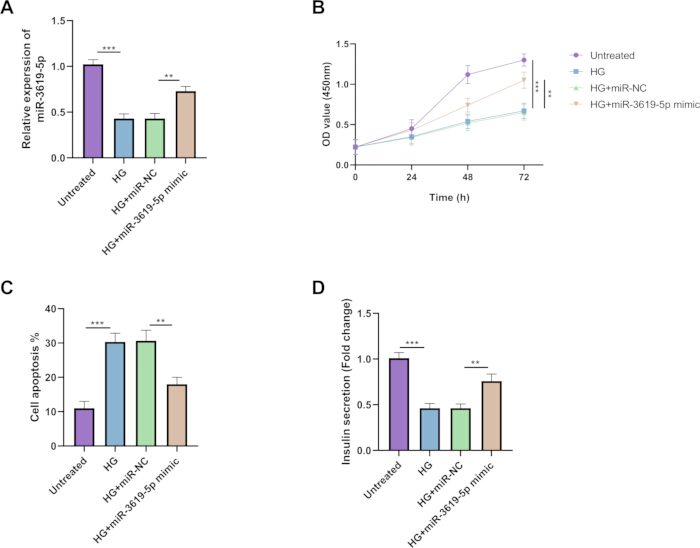
Figura 2: Efecto de miR-3619-5p en la función de las células β pancreáticas. Las células β pancreáticas INS-1 fueron tratadas con glucosa alta (HG) para simular la progresión de la DM2. (A) Se utilizó RT-qPCR para detectar la expresión de miR-3619-5p en las células. (B) La proliferación celular se evaluó mediante el ensayo CCK-8. (C) Se utilizó citometría de flujo para evaluar la apoptosis celular. (D) Se empleó ELISA para medir los niveles de secreción de insulina (normalizados por el contenido total de insulina intracelular). Las barras de error representan la desviación estándar (SD), n = 3. ***P < 0,001; **P < 0,01 Haga clic aquí para ver una versión ampliada de esta figura.
Validación de los blancos del miR-3619-5p
Las predicciones de bioinformática revelaron un total de 174 genes diana en cuatro bases de datos (Figura 3A), y el sitio de unión de MTA3 presenta un alto grado de conservación (puntuación Context++: -0,31; percentil de la puntuación Context++: 98). Se identificó un sitio de unión complementario entre miR-3619-5p y la región del UTR 3' de MTA3 (Figura 3B). Los resultados del ensayo DLR mostraron que la actividad luciferasa relativa de MTA3 WT aumentó significativamente en el grupo con el mimético de miR-3619-5p, lo que indica que miR-3619-5p puede unirse a MTA3 (Figura 3C).
La expresión de MTA3 se redujo notablemente en el suero de pacientes con DM2 (Figura 3D); su expresión también se redujo significativamente en células INS-1 tratadas con glucosa alta, mientras que el mimético de miR-3619-5p aumentó la expresión de MTA3 (Figura 3E). Los resultados de inmunotransferencia mostraron que el mimético de miR-3619-5p aumentó los niveles proteicos de MTA3, mientras que el inhibidor de miR-3619-5p redujo significativamente su expresión (Figura suplementaria 1). El análisis de correlación de Pearson reveló una correlación positiva significativa entre los niveles de miR-3619-5p y MTA3 en el suero de 102 pacientes con DM2 (Figura 3F). Estos resultados validan aún más el papel regulador positivo de miR-3619-5p sobre MTA3.
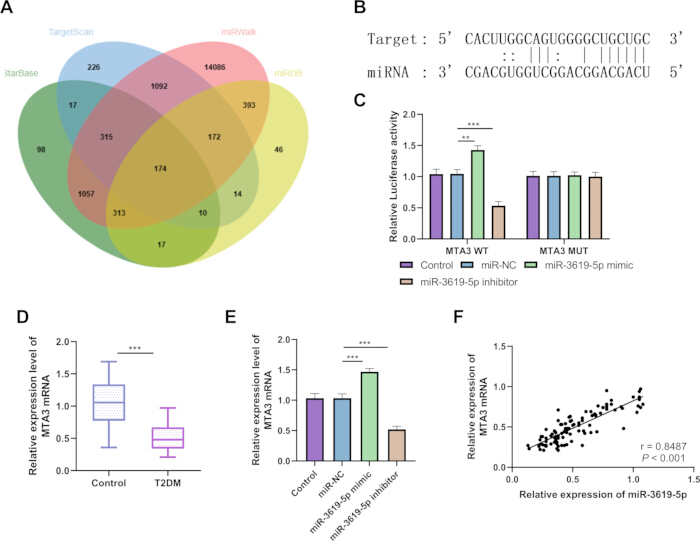
Figura 3: Validación de los genes diana de miR-3619-5p. (A) Genes diana comunes de miR-3619-5p identificados en las cuatro bases de datos: TargetScan, miRWalk, StarBase y miRDB. (B) Sitio de unión de miR-3619-5p al UTR-3’ de MTA3. (C) Ensayo DLR (n = 3). (D) Análisis por RT-qPCR de la expresión de MTA3 en suero de pacientes con DM2 (Control, n = 80; DM2, n = 102). (E) Análisis por RT-qPCR de la expresión de MTA3 en células (n = 3). (F) Análisis de correlación de Pearson entre la expresión de miR-3619-5p y MTA3 en suero de pacientes con DM2 (Control, n = 80; DM2, n = 102). Las barras de error representan la desviación estándar (DE). ***P < 0,001; **P < 0,01 Haga clic aquí para ver una versión ampliada de esta figura.
Los efectos de MTA3 en la función de las células β pancreáticas
Los resultados mostraron que el si-MTA3 redujo aún más la expresión de MTA3 tras el tratamiento con HG, mientras que la co-transfección con el análogo de miR-3619-5p revirtió este efecto (Figura 4A). El si-MTA3 inhibió adicionalmente la proliferación de células tratadas con HG, promovió la apoptosis y agravó el deterioro de la secreción de insulina; mientras que la co-transfección con el análogo de miR-3619-5p revirtió los fenotipos celulares mencionados anteriormente mediados por el si-MTA3, restaurando la proliferación celular, reduciendo la apoptosis y aliviando la inhibición de la secreción de insulina (Figura 4B–D).
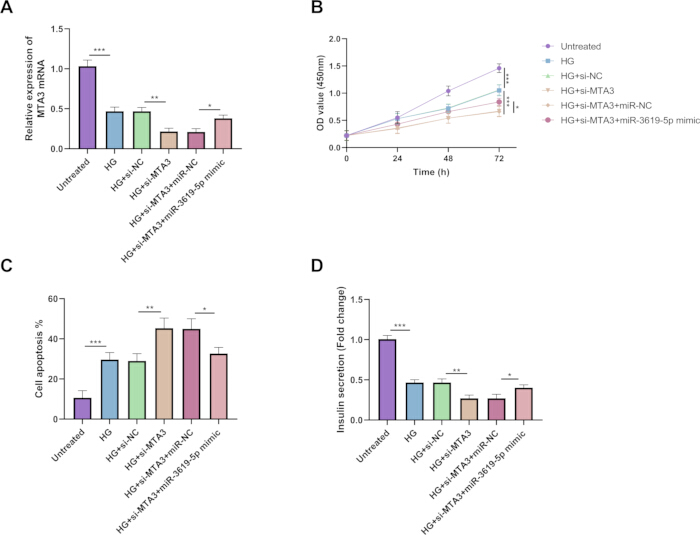
Figura 4: Efecto de MTA3 sobre la función de las células β pancreáticas. Se transfirieron si-MTA3 y el mimético de miR-3619-5p en células para investigar más a fondo el efecto de MTA3 sobre la función de las células β pancreáticas. (A) Análisis por RT-qPCR de la expresión de MTA3 en células. (B) La proliferación celular se evaluó mediante el ensayo CCK-8. (C) La tasa de apoptosis se determinó por citometría de flujo. (D) La secreción de insulina se midió mediante ELISA (normalizada por el contenido total de insulina intracelular). Las barras de error representan la desviación estándar (SD), n = 3. ***P < 0,001; **P < 0,01; *P < 0,05 Haga clic aquí para ver una versión ampliada de esta figura.
En resumen, los resultados obtenidos de muestras clínicas muestran que la expresión sérica de miR-3619-5p está significativamente disminuida en pacientes con DM2, y que miR-3619-5p presenta una correlación significativa con la glucemia en ayunas (FBG) y el HbA1c; experimentos en células cultivadas confirmaron que miR-3619-5p puede regular específicamente a MTA3, influyendo así en la viabilidad y la función secretora de insulina de las células β pancreáticas de rata INS-1. En conjunto, estos resultados sugieren que miR-3619-5p participa en la regulación de la función de las células β pancreáticas, cumpliendo así preliminarmente el objetivo de investigación de este estudio, que consiste en analizar el papel de miR-3619-5p en la diabetes tipo 2 y sus posibles mecanismos reguladores.
DISPONIBILIDAD DE LOS DATOS:
Todos los conjuntos de datos brutos y procesados que respaldan las conclusiones de este estudio se han subido como Archivo Suplementario 1.
| Indicadores | Grupo control (n = 80) | Grupo con DT2 (n = 102) | Valor p |
| Edad (años) | 51,41 ± 9,70 | 52,29 ± 7,03 | 0,478 |
| Sexo (hombre/mujer) | 43/37 | 54/48 | 0,914 |
| IMC (kg/m2) | 24,04 ± 3,10 | 24,81 ± 3,04 | 0,093 |
| CT (mmol/L) | 4,60 ± 0,64 | 4,78 ± 0,65 | 0,068 |
| TG (mmol/L) | 1,61 ± 0,18 | 1,67 ± 0,26 | 0,093 |
| HDL-C (mmol/L) | 1,43 ± 0,13 | 1,38 ± 0,18 | 0,085 |
| LDL-C (mmol/L) | 2,55 ± 0,29 | 2,63 ± 0,31 | 0,067 |
| GBA (mmol/L) | 4,96 ± 0,97 | 7,16 ± 1,64 | <0,001 |
| HbA1c (%) | 4,42 ± 0,49 | 6,77 ± 1,16 | <0,001 |
Tabla 1: Comparación de parámetros clínicos entre sujetos. T2DM, diabetes mellitus tipo 2; BMI, índice de masa corporal; TC, colesterol total; TG, triglicérido; HDL, lipoproteínas de alta densidad; LDL, lipoproteínas de baja densidad; FBG, glucosa sanguínea en ayunas; HbA1c, hemoglobina glicosilada.
Tabla suplementaria 1: Secuencias de cebadores y reactivos utilizadas en este estudio.Haga clic aquí para descargar este archivo.
Figura suplementaria 1: Expresión proteica de MTA3. Análisis por inmunotransferencia de los niveles de proteína MTA3. (A) Niveles de la proteína MTA3. (B) Imágenes originales de la inmunotransferencia de MTA3. (C) Imágenes originales de la inmunotransferencia de GAPDH. Las barras de error representan la desviación estándar (DE), n = 3. ***P < 0,001; **P < 0,01Haga clic aquí para descargar este archivo.
Archivo suplementario 1: Datos brutos.Haga clic aquí para descargar este archivo.
Discusión
Las características patológicas fundamentales de la DM2 son la resistencia a la insulina y la disfunción de las células β pancreáticas, con una capacidad proliferativa reducida y una disminución en el número de células β pancreáticas como factores clave que impulsan la secreción anormal de insulina y los principales responsables de la progresión de la enfermedad26. La identificación de moléculas clave que puedan regular la proliferación de las células β pancreáticas y mejorar su función tiene una gran importancia para el diagnóstico y tratamiento preciso de la DM2.
Como moléculas reguladoras clave de la expresión génica, los miARN desempeñan una función crítica en la proliferación, apoptosis y secreción de insulina de las células β pancreáticas. Numerosos miARN están estrechamente asociados con la patogénesis de la DM227,28,29. Song et al. descubrieron que la inhibición de miR-3619-5p suprime la migración celular en el cáncer colorrectal30. Otros estudios han encontrado que miR-3619-5p está regulado a la baja en pacientes diabéticos sometidos a diálisis peritoneal31. Sin embargo, el papel y los mecanismos de miR-3619-5p en la DM2 aún no han sido descritos. Este estudio encontró que la expresión sérica de miR-3619-5p en pacientes con DM2 era significativamente menor que en el grupo control sano, lo cual concuerda con los hallazgos de Costa et al.31, lo que indica que una expresión reducida de miR‑3619‑5p podría estar estrechamente relacionada con la iniciación y el desarrollo de la DM2. El análisis de correlación indicó que la expresión de miR-3619-5p presentaba una correlación negativa con la glucemia en ayunas (FBG) y la hemoglobina glucosilada (HbA1c), lo que sugiere que una expresión más baja de miR-3619-5p se asocia con un control glucémico más deficiente en los pacientes. Esto confirma además que miR-3619-5p podría estar implicado en el proceso de desregulación metabólica de la DM2, y que su nivel de expresión podría reflejar la gravedad de la enfermedad; esto concuerda con los hallazgos de Chen et al., quienes informaron que los ARN diferencialmente expresados podrían participar en el metabolismo de lípidos, la secreción de insulina y la regulación de la glucosa32. Los resultados del análisis de la curva ROC sugieren que podría ser un biomarcador para el diagnóstico de la DM2, compensando la falta de sensibilidad en el diagnóstico temprano asociada con los indicadores tradicionales de glucosa en sangre.
La disminución anormal de la capacidad proliferativa de las células β pancreáticas es un componente central del fallo de los islotes pancreáticos en la DM2; promover la proliferación de las células β pancreáticas y aumentar su número es fundamental para mejorar la función de secreción de insulina33,34. Este estudio demostró mediante experimentos celulares que miR-3619-5p promueve notablemente la proliferación de células INS-1 e inhibe la apoptosis, aumentando así la secreción de insulina. Esto sugiere que miR-3619-5p podría mejorar la función de secreción de insulina al promover la proliferación de las células β pancreáticas e inhibir la apoptosis, participando de este modo en la patogénesis de la DM2. Esto es consistente con los mecanismos reguladores de los miARN en la proliferación de células β pancreáticas descritos en estudios previos, como miR-26a-5p y miR-765, que promueven la proliferación y diferenciación de células β pancreáticas mediante la regulación de la expresión de genes diana35,36.
Este estudio utilizó predicciones de bioinformática y ensayos DLR para confirmar que MTA3 es un gen diana de miR-3619-5p. Como una proteína asociada a la metástasis, MTA3 participa ampliamente en procesos fisiológicos clave como la proliferación celular, la apoptosis y el metabolismo20. Investigaciones han encontrado que MTA3 interviene en la regulación de la fibrosis hepática inducida por glucosa alta24. La supresión de MTA3 mediada por la DM2 se relaciona con un aumento del estrés oxidativo en los testículos37. En este estudio, MTA3 se encontró regulado a la baja en células tratadas con glucosa alta. Juntos con los resultados de los ensayos de proliferación celular, se plantea la hipótesis de que si-MTA3 podría contribuir a la patogénesis de la DM2 al inhibir la proliferación de células β pancreáticas, mientras que miR-3619-5p podría aliviar esta inhibición mediante la regulación de la expresión de MTA3, mejorando así la función de las células β pancreáticas. La elucidación de este mecanismo refina aún más la red molecular de la regulación por ARNmi de la proliferación de células β pancreáticas y aporta una nueva perspectiva para la investigación sobre la patogénesis de la DM2.
Los hallazgos de este estudio tienen un potencial valor clínico y traslacional. El miR-3619-5p sérico se puede detectar en sangre venosa periférica; si se valida en estudios posteriores con cohortes de mayor tamaño, tiene la posibilidad de convertirse en un marcador biológico auxiliar que ayude a los médicos a identificar individuos con riesgo de disfunción de las células β pancreáticas, permitiendo así una estratificación temprana del riesgo. El miR-3619-5p puede mitigar el daño inducido por hiperglucemia en las células β pancreáticas al dirigirse y regular la vía MTA3 para mantener la supervivencia de las células β y la secreción de insulina. Esto sugiere que el eje miR-3619-5p/MTA3 tiene el potencial de servir como un nuevo objetivo para la protección de los islotes en la diabetes, aportando conocimientos experimentales fundamentales para el desarrollo posterior de fármacos basados en ácidos nucleicos o inhibidores de moléculas pequeñas destinados a proteger la función de los islotes.
Se deben señalar varias limitaciones en el presente estudio: en primer lugar, nuestra investigación se realizó en un solo centro; puede existir un sesgo de selección, y la variabilidad interindividual entre los participantes es relativamente limitada. Futuras investigaciones deberían ampliar el tamaño de la muestra y realizar estudios multicéntricos para verificar el perfil de expresión y el valor clínico de miR‑3619‑5p. En segundo lugar, este estudio validó la función reguladora de miR-3619-5p en la proliferación de células β pancreáticas únicamente a nivel celular, sin realizar una validación adicional mediante experimentos en animales. Estudios futuros deberían establecer un modelo animal de DM2 para explorar más a fondo sus mecanismos de acción in vivo. En tercer lugar, las miARN generalmente presentan características multifuncionales, y es probable que miR-3619-5p también regule una variedad de genes relacionados. Al mismo tiempo, los sistemas de transfección in vitro que utilizan análogos o inhibidores de miARN están sujetos a posibles efectos fuera de diana; la intervención artificial a altas dosis podría activar o inhibir de forma no específica múltiples vías de señalización, lo que dificulta replicar completamente el modo de acción observado bajo condiciones fisiológicas. Las investigaciones futuras requerirán una selección más exhaustiva del transcriptoma completo para distinguir entre la regulación específica dirigida y los efectos biológicos no específicos derivados de efectos fuera de diana. En cuarto lugar, aunque este estudio utilizó una intervención con glucosa 25 mM en su modelo in vitro de alta glucosa, no se estableció un grupo control osmótico con manitol; por consiguiente, no fue posible distinguir completamente entre los efectos metabólicos específicos de la glucosa y aquellos derivados del estrés osmótico. Experimentos futuros deberían incluir un control osmótico para elucidar más a fondo el mecanismo mediante el cual los niveles elevados de glucosa afectan a las células INS-1. Finalmente, existe una discrepancia entre especies en las muestras clínicas y los modelos celulares in vitro; aunque las células INS-1 son un modelo in vitro clásico para estudiar la maduración funcional de las células β pancreáticas, los mecanismos reguladores observados en células de rata no pueden equipararse directamente con los procesos biológicos reales en humanos. Por lo tanto, se debe tener precaución al interpretar la relación reguladora miR-3619-5p/MTA3 identificada a nivel celular in vitro en este estudio para aplicaciones clínicas. Estudios futuros necesitarán utilizar modelos de células β pancreáticas humanas o islotes primarios humanos para validar más a fondo la conservación de esta vía entre especies.
El miR-3619-5p está regulado a la baja en el suero y en las células β pancreáticas de pacientes con DM2; al dirigirse a MTA3, el miR-3619-5p puede aliviar la disfunción de las células β pancreáticas inducida por hiperglucemia, promover la proliferación de las células β pancreáticas, inhibir la apoptosis y mejorar la secreción de insulina. Este estudio sugiere que el miR-3619-5p podría ser útil para ayudar en la estratificación del riesgo de diabetes, y que el eje miR-3619-5p/MTA3 es un objetivo potencial para la protección de los islotes. En el futuro, realizaremos un estudio de cohorte a mayor escala para validar su valor clínico y llevar a cabo una validación funcional in vivo utilizando modelos animales de diabetes; al mismo tiempo, realizaremos un análisis profundo de las vías de señalización descendentes de MTA3 que median los cambios en la función de los islotes y evaluaremos más a fondo el potencial traslacional de este objetivo para la terapia de protección de los islotes.
Divulgaciones
Los autores no tienen intereses financieros o no financieros relevantes que declarar.
Agradecimientos
Este estudio fue respaldado por Estrategias de Prevención para Pacientes con Diabetes e Infecciones del Tracto Urinario (No. MSZ2025119).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Kit de detección de apoptosis por V-FITC/PI de anexina | Roche, Suiza | 11684795910 | Tinción con anexina V-FITC (10 µL) y PI (5 µL); incubación de 15 min a oscuras |
| Kit de conteo celular-8 (CCK-8) | Dojindo, Japón | CK04 | Ensayo colorimétrico para viabilidad celular; 10 µL por pocillo, incubación de 2 h, medición de OD450 |
| D-Glucosa | Sigma-Aldrich | G7021 | Se añade al medio de cultivo a 25 mM para establecer un modelo de daño celular inducido por glucosa alta (HG) |
| Sistema de ensayo de luciferasa dual | Promega, EE. UU. | E1910 | Medición secuencial de las actividades de luciferasa de luciérnaga y Renilla |
| Suero bovino fetal (FBS) | Gibco, EE. UU. | 10437028 | Suplemento al 10% de concentración final |
| Citómetro de flujo | Beckman Coulter, EE. UU. | CytoFLEX | Análisis por citometría de flujo para el cálculo de la tasa de apoptosis |
| Anticuerpo contra GAPDH | Abcam, Reino Unido | ab181602 | Western blot |
| Primeros para GAPDH | Sangon Biotech, China | Síntesis personalizada | Gen de referencia constitutiva para normalización de ARNm |
| Anticuerpo secundario de cabra anti-IgG de conejo H&L (HRP) | Abcam, Reino Unido | ab6721 | Western blot |
| Línea celular HEK293T | ATCC, EE. UU. | CRL-3216 | Células de riñón embrionario humano; alta eficiencia de transfección para ensayos de luciferasa |
| Línea celular INS-1 | Sunncell, China | SNL-332 | Línea celular de insulinoma de rata; cultivada en RPMI 1640 con 10% FBS y 1% penicilina-estreptomicina |
| Sistema de PCR en tiempo real LightCycler 480 II | Roche, Suiza | 5015278001 | Amplificación por PCR en tiempo real; formato de placa de 96 o 384 pocillos |
| Lipofectamina 3000 | Invitrogen, EE. UU. | L3000001 | Reactivo de transfección basado en lípidos |
| Lector de microplacas | BioTek, Agilent | Synergy H1 | Medición de absorbancia; las concentraciones de las muestras se interpolan a partir de curvas estándar |
| Inhibidores de miR-3619-5p | RiboBio, China | miR20017999-1-5 | ARN monocatenario sintetizado químicamente para inhibir la función de miR-3619-5p |
| Miméticos de miR-3619-5p | RiboBio, China | miR10017999-1-5 | ARN bicatenario sintetizado químicamente para sobreexpresión de miR-3619-5p |
| Primeros para miR-3619-5p | Sangon Biotech, China | Síntesis personalizada | Primeros específicos para detección de miR-3619-5p |
| miR-NC (control en blanco de ARNmi) | RiboBio, China | miR2N0000001-1-5 | Control negativo no dirigido para experimentos con miméticos/inhibidores de ARNmi |
| Kit miRNeasy Mini | Qiagen, Alemania | 217004 | Extracción de ARN total de muestras celulares |
| Kit miScript II RT | Qiagen, Alemania | 218160 | Transcripción inversa para ARNmi; utiliza cola de poli(A) y cebado con oligo-dT |
| Kit miScript SYBR Green PCR | Qiagen, Alemania | 218073 | qPCR basado en SYBR Green para detección de ARNmi |
| Anticuerpo contra MTA3 | Invitrogen, EE. UU. | PA5-100022 | Western blot |
| Primeros para MTA3 | Sangon Biotech, China | Síntesis personalizada | Primeros específicos para detección de ARNm de MTA3 |
| Espectrofotómetro NanoDrop 2000 | Thermo Fisher Scientific, EE. UU. | ND-2000 | Evaluación de concentración y pureza del ARN |
| Penicilina-Estreptomicina | Gibco, EE. UU. | 15140122 | Solución antibiótica al 1% para prevenir contaminación bacteriana |
| Vector de expresión de luciferasa dual pmirGLO para validación de dianas de ARNmi | Promega, EE. UU. | E1330 | Vector de reportero de luciferasa dual para validación de dianas de ARNmi; contiene los genes de luciferasa de luciérnaga y Renilla |
| Kit de reactivos PrimeScript RT con eliminador de ADN genómico | TaKaRa, Japón | RR047A | Transcripción inversa con etapa de eliminación de ADN genómico |
| Kit ELISA de insulina de rata | Invitrogen, EE. UU. | ERINS | Detección cuantitativa de insulina secretada por células INS-1 al medio de cultivo |
| Medio RPMI 1640 | Gibco, EE. UU. | 11875093 | Medio de cultivo basal; suplementado con 10% FBS y 1% penicilina-estreptomicina |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | ARN de interferencia pequeño dirigido contra MTA3 para silenciamiento génico |
| si-NC (control en blanco para ARNip) | RiboBio, China | siB06525141922-1-5 | Control de ARNip no dirigido |
| Mezcla maestra SYBR Green para PCR | TaKaRa, Japón | RR820A | Amplificación por qPCR basada en SYBR Green |
| Reactivo TRIzol | Invitrogen, EE. UU. | 15596026 | Extracción de ARN total de muestras de suero |
| Primeros para U6 | Sangon Biotech, China | Síntesis personalizada | Referencia endógena para normalización de ARNmi |
Referencias
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.