Este estudio tiene como objetivo explorar los posibles mecanismos moleculares subyacentes a los efectos antioxidantes y antiinflamatorios de la amigdalina en un modelo de alopecia areata en ratones C3H/HeJ y en un modelo de lesión de melanocitos epidérmicos primarios humanos inducido por H2O2.
Artículo de investigación
La amigdalina regula la señalización de FOXO3a para inhibir el estrés oxidativo y mejorar la alopecia areata en ratones
* These authors contributed equally
En este artículo
Resumen
Resumen
Este artículo tiene como objetivo explorar el mecanismo del efecto terapéutico de la amigdalina (AMG) sobre la alopecia areata (AA). La tinción con hematoxilina-eosina se utilizó para evaluar la toxicidad hepatorenal de AMG. Después de establecer el modelo de AA en ratones C3H/HeJ y H2O2-melanocitos epidérmicos primarios humanos (HPEM) dañados, y tras la intervención con AMG, se monitoreó el contenido de especies reactivas de oxígeno (ERO) y los niveles de la proteína y del gen de la caja de horquilla O3A (FOXO3a). Kits bioquímicos o ensayo inmunoenzimático por adsorción se utilizaron para detectar los contenidos de superóxido dismutasa (SOD), catalasa (CAT), glutatión peroxidasa 4 (GPX-4), malondialdehído (MDA), interleucina-15 (IL-15), interferón-gamma (IFN-γy interleucina-6 (IL-6). Se realizó un ensayo de inmunotransferencia (Western blot) para evaluar los niveles de MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, IL-6 e IL-15. Se realizó ChIP-PCR para evaluar el enriquecimiento de AMG en los promotores de SOD, CAT y GPX-4 en FOXO3a. Mientras tanto, se investigaron los niveles de ROS, apoptosis y las expresiones proteica y génica de FOXO3a, SOD, CAT y GPX-4 en HPEMs con baja expresión de FOXO3a. AMG no tiene toxicidad potencial hepática ni renal y puede reducir la expresión de las proteínas MHC I e IL-15 en la piel, así como la IL-15 sérica. AMG puede aumentar la expresión de la proteína y del gen FOXO3a en la piel, así como los niveles de SOD, CAT y GPX-4, mientras reduce los niveles de ROS y MDA. AMG puede inhibir MHC I, IFN-γ, IL-6 e IL-15, MDA, apoptosis y producción de ERO en HPEM, y aumentar los contenidos de SOD, CAT y GPX-4. Importante, AMG puede upregular la expresión de los genes y proteínas FOXO3a, SOD, CAT y GPX-4, y enriquecer FOXO3a en los promotores de SOD, CAT y GPX-4. Estos datos sugieren que el AMG puede promover la expresión de FOXO3a e inhibir el estrés oxidativo y las respuestas inflamatorias, mejorando así la AA en ratones C3H/HeJ.
Introducción
Como un trastorno autoinmune caracterizado por la caída repentina del cabello sin cicatrización, la alopecia areata (AA) tiene una prevalencia mundial de aproximadamente 2–3 %, y existen más de 30 millones de pacientes en China1. Los datos epidemiológicos muestran que la enfermedad puede afectar a individuos de todas las edades, pero presenta una mayor prevalencia entre adultos jóvenes, con alrededor del 60 % de los pacientes experimentando su primer episodio antes de los 20 años, con una proporción casi igual entre hombres y mujeres1,2. A nivel mundial, la incidencia anual de AA es aproximadamente de 0,2–0,3 %, siendo el 40 % casos de AA de un solo sitio, el 35 % de múltiples sitios, el 5 % de calvicie total y el 2 % de alopecia universal3,4,5. En cuanto a complicaciones, alrededor del 30 % de los pacientes presentan depresiones ungueales, estrías longitudinales y otros daños, y la tasa de comorbilidad con enfermedades autoinmunes como trastornos tiroideos y vitíligo supera los niveles observados en la población general6,7. Desde una perspectiva perjudicial, la AA no solo afecta la apariencia, sino que también tiende a provocar problemas psicológicos como depresión y ansiedad, con aproximadamente el 70 % de los pacientes con aparición reciente que experimentan eventos estresantes importantes dentro de los 3 meses previos al inicio8,9. Si no se trata durante mucho tiempo, los pacientes pueden progresar hacia calvicie total o alopecia universal, afectando gravemente su función social y calidad de vida10.
Actualmente, la medicina occidental utiliza principalmente una combinación de fármacos tópicos, medicamentos orales, terapia física y trasplante capilar para el tratamiento del AA11,12. El tratamiento local incluye principalmente solución de minoxidil y corticosteroides (como la crema de propionato de fluticasona), que estimulan los folículos pilosos e inhiben las respuestas inmunitarias locales para promover el crecimiento del cabello, aunque el uso prolongado puede provocar reacciones adversas como atrofia cutánea13,14. En pacientes con enfermedad progresiva, los inmunosupresores orales (como la prednisona y la ciclosporina) pueden regular eficazmente la respuesta inmunitaria sistémica, aunque se requiere monitoreo regular de la función hepática y renal12,15. En la terapia física, la radiación ultravioleta de onda media de banda estrecha y la terapia con láser de baja energía mejoran la microcirculación para ayudar al crecimiento capilar, aunque se necesitan múltiples sesiones y el efecto varía según la persona16,17. En casos resistentes, la cirugía de trasplante capilar puede trasplantar folículos pilosos sanos a la zona afectada por la calvicie, aunque existe riesgo de fracaso del trasplante y se requiere mantenimiento con medicación18. Las ventajas del tratamiento con medicina occidental radican en su rápida aparición de efectos y alta estandarización, especialmente en casos de AA localizado en etapas iniciales19. Sin embargo, sus desventajas incluyen la tendencia al rebote con fármacos hormonales, efectos secundarios significativos con inmunosupresores y su eficacia limitada en pacientes con alopecia total o universal20,21. Además, el ciclo de tratamiento es largo (generalmente de 3 a 6 meses) y el costo es elevado (por ejemplo, el costo anual de inhibidores de JAK y agentes biológicos supera los 100.000 yuanes), lo que también limita su aplicación generalizada19,22. Debido a las numerosas razones mencionadas anteriormente, los autores necesitan urgentemente explorar nuevos fármacos dirigidos.
El estrés oxidativo contribuye de manera significativa al mecanismo patogénico de la alopecia areata (AA). Durante el proceso de síntesis del pigmento en los melanocitos, se produce una gran cantidad de peróxido de hidrógeno (H2O2)23,24. En condiciones normales, este compuesto puede eliminarse mediante enzimas antioxidantes (como la superóxido dismutasa (SOD) y la catalasa (CAT))25. Sin embargo, en individuos con AA, la actividad de las enzimas antioxidantes suele ser menor, lo que provoca la acumulación de productos oxidativos y daño en el ADN, así como apoptosis celular26,27. Este estado de estrés oxidativo activará además la respuesta inflamatoria, liberando mediadores proinflamatorios (como el TNF-α y el IFN-γ), creando un círculo vicioso de estrés oxidativo e inflamación28. La respuesta inflamatoria ataca los folículos pilosos mediante linfocitos T, provocando que los folículos entren en una fase de reposo y se caigan29. Los ensayos clínicos han encontrado que los pacientes con AA suelen presentar otras enfermedades autoinmunes (como enfermedades tiroideas)30, lo que sugiere que la desregulación inmunitaria sistémica actúa como un factor desencadenante crítico. Además, el estrés oxidativo y la inflamación promueven conjuntamente la apoptosis de las células del folículo piloso, y el desorden en las señales apoptóticas dañará aún más la capacidad regenerativa del folículo, impidiendo el crecimiento del cabello31. Por lo tanto, el tratamiento de la AA debe considerar estrategias antioxidantes, antiinflamatorias y la regulación de las vías apoptóticas para romper este círculo vicioso.
La amigdalina (AMG) es un compuesto glucósido cianogénico que ocurre naturalmente, contenido principalmente en semillas de plantas pertenecientes a la familia Rosaceae (como albaricoque, almendra, huesos de durazno y níspero)32,33,34. Estudios previos han demostrado que la AMG puede mejorar la psoriasis al potenciar la función de barrera de la piel35. Asimismo, los efectos antiapoptóticos y contra el estrés oxidativo de la AMG hacen posible su uso en el tratamiento de la alopecia areata (AA)36,37. Evidencias anteriores también confirmaron que la AMG puede inhibir la respuesta inflamatoria para aliviar los síntomas de la AA en ratones C3H/HeJ38. Sin embargo, el mecanismo molecular mediante el cual la AMG inhibe la inflamación y alivia el estrés oxidativo para mitigar la AA no ha sido ampliamente reportado. Este estudio demostró principalmente los eventos de estrés oxidativo mediados por la señalización de la proteína forkhead box O3A (FOXO3a) mediante la intervención de AMG en el tratamiento del modelo de AA en ratones C3H/HeJ y en el modelo de lesión de melanocitos epidérmicos primarios humanos (HPEMs) inducido por H2O2.
Protocolo
Ethics approval and consent to participate
The experimental protocols involving animals were authorized by the Ethics Committee of Scientist Biotechnology Co., Ltd. (Ethical Approval Number: SYST-2024-014), following the ARRIVE 2.0, NIH Guide for the Care and Use of Laboratory Animals. And the Ethics Committee of Sichuan Provincial People’s Hospital granted approval for the ethical use of human clinical samples for in vitro experiments (Ethical Approval Number: 2024103). Informed consent was obtained from all tissue donors. All commercial details of the reagents and the equipment used in this study are provided in the Table of Materials.
Construction of the AA model in C3H/HeJ mice and AMG administration
Based on the previous literature, the AA model of C3H/HeJ mice was induced and treated with AMG38,39. In brief, thirty female C3H/HeJ mice (6–8 weeks old) underwent a one-week acclimatization period before being randomly assigned to five distinct groups: Control, AA, AMG-L, AMG-M, and AMG-H. Except for the control group, the AA model in the remaining four groups was established by applying 0.05 g imiquimod cream to the murine dorsal skin. This application was performed three times weekly, accumulating to a total of nine doses. The area of the skin that was applied was 1.5 cm × 1.5 cm. Mice in both the control and AA cohorts received 0.02 mL/g of normal saline by gavage daily. While the mice in AMG groups were given intragastric injections of 60, 90, and 120 mg/kg daily. The administration period is 21 days. For the general observation and assessment of the AA model, a well-defined circular alopecia patch ≥ 1 cm in diameter, with no scarring or severe inflammation, and with broken hair shafts, is required. If mice show diffuse whole-body depilation, severe skin ulceration, or spontaneous rapid hair regrowth, they are excluded.
HPEMs
Following the previous method40, healthy skin tissues from patients who underwent circumcision in the hospital were selected and immersed in 75% alcohol for 5 min. The skin tissues were then repeatedly washed with PBS containing ampicillin (100 U/mL) and streptomycin sulfate (100mg/mL), and incubated in dispase II solution at 4°C overnight for digestion. The separated and isolated epidermal layers were minced and filtered via a sterile membrane to yield the cell suspension. After centrifugation, the sedimentary lower-layer cells were harvested and subsequently resuspended in melanocyte 254 medium without serum and reseeded at a density of approximately 5 × 10⁵ in culture flasks and cultured in a CO2 incubator. After three passages, pure melanocytes were employed for subsequent experiments.
Establishment of H2O2-induced human melanocyte oxidative stress injury model and AMG intervention
Human melanocytes with a fusion degree of 60% to 80% were divided into a control group and groups with different concentrations of H2O2 (200, 400, 600, 800, and 1000 µM). After a 24-h incubation, cell viability was assessed by the CCK-8 method. Subsequently, the optimal concentration of H2O2 was used to establish the melanocyte oxidative stress model, and different concentrations of AMG (0.1, 0.25, 0.5, 1, 2.5, 5, and 10 mg/mL) were added for a 24-hour culture. Cell viability was then chosen to assess and screen the concentration of AMG.
HE examination
Mouse liver and kidney tissues were fixed in 4% paraformaldehyde for 24 h and embedded with paraffin, followed by a dehydration process in the following steps: 70% ethanol for 4 h, 80% ethanol for 2 h, 90% ethanol for 2 h, 95% ethanol for 2 h, anhydrous ethanol, twice, 1 h each time; xylene, twice, 30 min each time38,39,41. Then, 4-µm paraffin sections underwent H&E staining, were dehydrated, cleared, and mounted with neutral gum. A 3D HISTECH scanner was employed to digitize the tissue sections, and images at 20× and 40× magnifications were captured.
Enzyme-linked immunosorbent assay (ELISA) and biochemical detection
Skin tissues were homogenized in a buffer solution at a 1:9 (w/v) ratio, then centrifuged at 1006–1789 × g for 10 min. After protein quantification in serum, skin tissue extracts, and cell supernatants using BCA, the levels of MDA, IL-6, IL-15, and IFN-γ were assessed using the corresponding ELISA kits. And the enzyme activities of SOD, CAT, and GPX-4 were detected according to the instructions of the respective biochemical kits.
Flow cytometry for detecting reactive oxygen species (ROS)
Serum-free culture medium was used to dilute 10µM DCFH-DA at a 1:1000 ratio. And then, mouse skin tissues or human melanocytes were prepared into cell suspensions of 1–20×106 cells/mL using 10µM DCFH-DA. Cells were incubated at 37°C for 20 min. During this period, cells were shaken and mixed every 3–5 min. Following three washes with serum-free medium, intracellular ROS levels were quantified via flow cytometry, setting the excitation and emission wavelengths at 488nm and 525nm, respectively42,43.
Immunofluorescence measurement
FOXO3a (1:1000) primary antibody was incubated with 4-µm skin tissue sections or fixed HPEMs overnight at 4°C. And then, the specimens were treated with secondary antibodies labeled with Alexa Fluor fluorophores and counterstained with DAPI solution. Finally, the sections were observed and captured through fluorescence microscopy. For fluorescence imaging with ROS, a 4-µm frozen section of skin tissue or HPEMs slides were rewarmed at room temperature and dried. A circle was drawn around the tissue with a histochemical pen. The slides were treated with an autofluorescence quencher for 5 min and then rinsed under running water for 10 min. ROS staining solution was dropped and incubated in the dark at 37°C for 30 min. The sections underwent three 5-minute washes in PBS using a decolorization shaker. Then, DAPI staining solution was dropped and incubated for a duration of 10 min under dark conditions at room temperature. The slides were sealed with an anti-fluorescence quencher medium. The specimens were then observed, and images were collected via a fluorescence microscope. The excitation/emission profiles are 330–380/420 nm for DAPI and 510–560/590 nm for Cy3.
Western blot
For mouse skin tissue or human melanocytes, 50 mg of the skin tissue or 2 × 10⁵ cells and 1 mL of RIPA lysis buffer, enriched with protease inhibitors, were dispensed into a 1.5-mL microcentrifuge tube. After an ice bath for 30 min, a 5-min centrifugation was performed at 12,000 g to collect the supernatant fraction. After protein concentration was determined by the BCA method, the protein solution and 5× SDS loading buffer were mixed in a volume ratio of 4:1, and then boiled in a metal bath at 95 °C for 5 min. After the sample was subjected to 10% SDS-PAGE electrophoresis at 80 V or 120 V, proteins were electrotransferred onto a 0.22-µm PVDF membrane at a constant current of 200 mA for 1 h44,45. The membranes were then blocked at room temperature on a centrifuge shaker for 1 h using 5% skimmed milk (prepared with TBST buffer). The membranes were then exposed to primary antibodies specific to major histocompatibility complex class I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actin (1:1000), SOD (1:1000), CAT (1:1000), glutathione peroxidase 4 (GPX-4) (1:1000), and FOXO3a (1:1000) at 4 °C overnight. And the membranes were probed with the secondary antibody (1:10000) for 1 h at room temperature. ECL chemiluminescent reagent was employed to develop and capture images using ChemiScope 6100.
Quantitative reverse transcription-polymerase chain reaction (qRT-PCR)
Firstly, the sample RNA from mouse skin tissue or human melanocytes was obtained in accordance with the manufacturer’s instructions of the total RNA extraction kit. According to the operation instructions of the reverse transcription kit, the PCR instrument parameters were set as 25°C for 10 min, 42°C for 15 min, and 85°C for 5 min to obtain cDNA samples. Similarly, the parameters for setting up the PCR instrument were as follows to obtain sufficient DNA copy numbers: Pre-denaturation: 95°C for 5 min, 1 cycle; Denaturation: 95°C for 10 s, 40 cycles; Annealing and extension: 60°C for 30 s, 40 cycles. The normalized expression of the gene of interest is calculated using the following formula: 2‑ΔΔCq (ΔΔCq = Cqtarget‑Cqβ‑Actin)46,47. The information on the gene primer sequences for qRT-PCR is shown in Table 1.
ChIP-PCR analysis
ChIP-PCR analysis was carried out in accordance with the previous protocol48. First, the cells were cross-linked with 1% formaldehyde for 10 min, and glycine solution was added to terminate the cross-linking reaction. After washing with pre-cooled PBS containing PMSF, the cells were lysed with SDS lysis buffer containing PMSF. Subsequently, the chromatin DNA was sheared into fragments mainly ranging from 200 to 1,000 bp using an ultrasonic cell disruptor, and the fragment size was verified by agarose gel electrophoresis. The sheared chromatin samples were resuspended in ChIP dilution buffer containing PMSF, and 20µL of the sample was taken as the input control group. The remaining samples were pre-treated with Protein A+G Agarose/Salmon Sperm DNA. Then, 0.5µg of primary antibody was applied, followed by an overnight incubation at 4°C with slow shaking. The negative control group was treated with an equal amount of rabbit IgG. The next day, Protein A+G agarose beads were added to capture the antigen-antibody complexes, and the complexes were washed successively with low salt immune complex wash buffer, high salt immune complex wash buffer, LiCl immune complex wash buffer, and TE buffer. The immunoprecipitated complexes were eluted with elution buffer, and both the elution products and the samples in the input control group underwent a heat treatment of 65°C for 4h to break the cross-links. Subsequent to proteinase K-mediated protein digestion, DNA was isolated via phenol-chloroform extraction followed by ethanol precipitation. The purified DNA was dissolved in TE buffer and used for subsequent qRT-PCR analysis. And the gene sequence information for ChIP-PCR is shown in Table 2.
The candidate genomic sites for ChIP-PCR were selected through in silico prediction using the JASPAR database (https://jaspar.elixir.no/). Specifically, researchers retrieved the promoter sequences spanning 2000 bp upstream of the TSS of the CAT, SOD, and GPX4 genes. These sequences were scanned for FOXO3a binding motifs using the corresponding position weight matrix. To balance sensitivity and specificity, the authors set a relative profile score threshold of >80%. Among all predicted motifs meeting this criterion, the authors selected the top two highest-scoring putative sites for each gene as candidate regions for ChIP-PCR validation. For example, in the CAT gene, the selected sites were located at -733 bp and -1259 bp relative to the TSS. The anti-FOXO3a antibody used in this study is a commercially available ChIP-grade antibody. To ensure specificity, the authors applied two independent negative controls for every ChIP-PCR assay: isotype IgG and a negative genomic locus. The isotype IgG control was performed as parallel immunoprecipitations using non-immune IgG from the same species. For the negative genomic locus, the authors designed a specific primer pair targeting a non-binding region that lacks any predicted FOXO3a consensus motif. This control region allowed the authors to exclude enrichment due to random chromatin shearing or nonspecific PCR amplification. The fold enrichment was calculated using a three-step normalization strategy.
Step 1: Input normalized ΔCt, ΔCt [normalized IP] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [normalized IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = Input Dilution Factor; in the experiment, DF = 10, as they used 10% input.
Step 2: ΔΔCt between IP and IgG:
ΔΔCt [IP/IgG] =ΔCt [normalized IP]-ΔCt [normalized IgG] (3)
Step 3: Fold enrichment = 2(-ΔΔCt [IP/IgG]). (4)
Statistical analysis
Data are expressed as mean ± standard deviation based on a minimum of three independent experiments. Statistical analyses were performed using GraphPad Prism software (version 6.0). Comparison of data among multiple groups following a normal distribution and homogeneity of variance was assessed using one-way analysis of variance (ANOVA), followed by Tukey’s post-test. Statistical significance was established at p < 0.05.
Resultados
AMG no tiene toxicidad hepatorenal en ratones C3H/HeJ normales
Para identificar claramente desde una perspectiva experimental la posible toxicidad hepática y renal de AMG, los investigadores administraron las tres dosis (60, 90 y 120 mg/kg) estudiadas previamente en ratones C3H/HeJ normales mediante gavaje 38. Como se muestra en Figura 1, tras la administración intragástrica de AMG a tres dosis durante 21 días, la arquitectura de los lóbulos hepáticos era definida, con hepatocitos dispuestos de manera ordenada. Los tejidos cortical y medular del riñón eran normales, y no se observaron daños ni lesiones en los glomérulos ni en los túbulos renales. Durante el periodo de administración de AMG, ninguno de los ratones presentó manifestaciones conductuales anormales. De hecho, en este artículo no se evaluaron datos bioquímicos de toxicidad ni de peso corporal, lo cual podría afectar la racionalidad de afirmar que AMG no presenta toxicidad hepática y renal. Sin embargo, basándose en los resultados del examen histopatológico del hígado y del riñón, estos datos sugieren parcialmente que el tratamiento con AMG para la AA en las dosis establecidas por los autores es razonable.
AMG inhibe la ocurrencia y el desarrollo de AA, así como la generación de ERO
En primer lugar, midieron los indicadores de MHC I e IL-15 que son intrínsecamente vinculado al inicio y progresión de AA. Como se muestra en Figura 2A–C, bajo las condiciones patológicas de la simulación de AA, la cantidad de proteínas MHC I e IL-15 en los tejidos cutáneos de ratones C3H/HeJ aumentó significativamente (p < 0,001). Por el contrario, los tratamientos con AMG-M y AMG-H redujeron significativamente los niveles de expresión de estas dos proteínas (p < 0.01 o p < 0.001). Asimismo, las tres dosis del tratamiento con AMG suprimieron significativamente el nivel de IL-15 en suero (p < 0.001, Figura 2D). Además, los resultados de inmunofluorescencia indicaron que había una gran cantidad de ERO en la piel de los ratones del grupo AA, mientras que la intervención con AMG redujo significativamente la expresión de ERO en comparación con el grupo AA (p < 0.001, Figura 2E y F). De forma consistente, los resultados de citometría de flujo mostraron que los niveles de ERO en los tejidos cutáneos del grupo AA estaban significativamente elevados en comparación con el grupo control. Sin embargo, en comparación con el grupo AA, la intervención con AMG revirtió el aumento en las ERO (p < 0.001, Figura 2G y H).
AMG estimuló la expresión proteica y génica de FOXO3a
Para investigar el efecto de AMG sobre FOXO3a, los autores analizaron sus niveles de expresión tanto a nivel proteico como genético. Los resultados de inmunofluorescencia demostraron que el grupo AA presentó una reducción marcada en la expresión proteica de FOXO3a, mientras que AMG estimuló el nivel de la proteína FOXO3a en el tejido cutáneo de ratones C3H/HeJ (p < 0.001, Figura 3A y B). Datos adicionales de qRT-PCR indican que AMG aumentó significativamente la expresión génica de FOXO3a (p < 0.001; Figura 3C). De manera similar, el experimento de inmunotransferencia (Western blot) indicó que AMG aumentado sustancialmente la expresión proteica de FOXO3a (p < 0.05 o p < 0.001, Figura 3D y E).
AMG inhibió los eventos de estrés oxidativo en los tejidos cutáneos de ratones con AA
La progresión patológica de la AA inducida por el estrés oxidativo conduce a su deterioro. Los resultados de las pruebas bioquímicas en Figura 4 muestran que, en comparación con el grupo control, los indicadores antioxidantes SOD, CAT y GPX-4 en los tejidos cutáneos de los ratones del grupo AA se inhibieron significativamente (p < 0,001, Figura 4A y B), mientras que el indicador pro-oxidativo MDA aumentó sustancialmente (p < 0,001, Figura 4C). Como se esperaba, los investigadores encontraron que tras el tratamiento con AMG, los indicadores antioxidantes aumentaron significativamente, mientras que los indicadores pro-oxidativos disminuyeron significativamente (p < 0,001; Figura 4A–C). De manera similar, los datos de inmunotransferencia también sugirieron que la intervención con AMG aumentó significativamente los niveles de expresión proteica de los indicadores antioxidantes SOD, CAT y GPX-4 (p < 0,001; Figuras 4D y 4E).
AMG redujo la apoptosis y los eventos inflamatorios en HPEMs inducidos por H2O2
Los resultados mostrados en la Figura 5A indican que concentraciones crecientes de H2O2 (200–1000 µM) deterioraron progresivamente la viabilidad de los HPEMs (p < 0,001). Entre ellas, 600 µM de H2O2 fue la concentración más adecuada para reducir la viabilidad celular de los HPEMs (p < 0,001). Además, los autores encontraron que bajo la condición de estimulación de las células HPEM con 600 µM de H2O2, AMG en concentraciones de 0,1–10 mg/mL pudo aumentar significativamente la viabilidad celular (p < 0,05 o p < 0,001, Figura 5B). En consonancia con los resultados experimentales en animales, los autores también hallaron que AMG inhibió significativamente la apoptosis inducida por H2O2 en HPEMs, tal como se indica mediante citometría de flujo para la detección de apoptosis en las Figuras 5C y 5D (p < 0,001). En cuanto al indicador MHC I, el análisis por inmunotransferencia demostró además que AMG suprimió marcadamente la expresión proteica en HPEMs sometidos a lesión inducida por H2O2 (p < 0,05 o p < 0,01; Figuras 5E y 5F). Para la detección de factores inflamatorios, los resultados del ELISA indicaron que AMG redujo significativamente la abundancia de citocinas proinflamatorias, incluyendo IFN-γ, IL-6 e IL-15, en HPEMs inducidos por H2O2 (p < 0,001; Figura 5G). Además, la inhibición de estas tres proteínas proinflamatorias por AMG fue validada adicionalmente mediante análisis por inmunotransferencia, como se presenta en las Figuras 5H y 5I (p < 0,01 o p < 0,001).
AMG redujo los niveles de ERO en HPEM inducidos por H2O2
En comparación con las células HPEM que no fueron tratadas con H2O2 ni con AMG, la estimulación con 600 µM de H2O2 promovió significativamente la producción de ERO, como lo muestran los resultados de los experimentos de inmunofluorescencia (p < 0,001, Figura 6A y B) y citometría de flujo (p < 0,001, Figura 6C y D), respectivamente. Curiosamente, AMG redujo significativamente la cantidad de ERO (p < 0,001, Figura 6).
AMG confinó el evento de estrés oxidativo en HPEMs inducido por H2O2
De manera similar, los autores evaluaron cómo influye AMG en el estrés oxidativo en HPEM inducido por H2O2. En comparación con el grupo control, H2O2 la estimulación provocó una disminución en las funciones de SOD, CAT y GPX-4 (p < 0.001, Figura 7A y B), mientras aumenta significativamente los niveles de MDA (p < 0.001, Figura 7C). Sorprendentemente, la intervención con AMG mejoró significativamente las actividades de SOD, CAT y GPX-4 (p < 0.001, Figura 7A y B), mientras se reduce el nivel de MDA (p < 0.001, Figura 7C). Otros resultados de inmunotransferencia también confirmaron que la intervención con AMG aumentó significativamente la expresión proteica de SOD, CAT y GPX-4 (p < 0.05 o p < 0.01, Figura 7D y E).
AMG promovió el nivel de FOXO3a y de SOD, CAT y GPX-4 reguladas por FOXO3a en HPEMs inducidas por H2O2
En comparación con el grupo control, H2O2 la estimulación resultó en una marcada reducción de la expresión del gen FOXO3a (p < 0.001, Figura 8A), mientras que la intervención con AMG atenuó significativamente este efecto (p < 0.05, Figura 8A). Western blot adicional (p < 0.05, Figura 8B y C) e inmunofluorescencia (p < 0.05, Figura 8D y E) también confirmaron que la aplicación de AMG aumentó sustancialmente la expresión proteica de FOXO3a. El experimento de ChIP-PCR confirmó que AMG puede aumentar los niveles de expresión de SOD (p < 0,001), CAT (p < 0.01) y GPX-4 (p < 0.01), como se muestra en Figura 8F–I, así como el nivel de enriquecimiento de FOXO3a en los promotores de SOD (p < 0.001), CAT (p < 0.001) y GPX-4 (p < 0.001) (Figura 8J–L).
AMG reprimió el estrés oxidativo y los fenómenos apoptóticos regulados por FOXO3a en HPEM inducidos por H2O2
Inicialmente, los investigadores establecieron una línea de HPEM con baja expresión de FOXO3a, caracterizada por una disminución sustancial en los niveles de expresión proteica (p < 0,001, Figura 9A y B) y génica (p < 0,001, Figura 9C) de FOXO3a. Los resultados de citometría de flujo indicaron además que, en comparación con el grupo H2O2, AMG redujo marcadamente los niveles de ERO y la apoptosis celular en HPEM con baja expresión de FOXO3a (p < 0,001, Figura 9D–G). Mientras tanto, AMG aumentó significativamente la expresión proteica y génica de FOXO3a (p < 0,01, Figura 9H–J) y los niveles de expresión de las proteínas SOD, CAT y GPX-4 reguladas por FOXO3a (p < 0,05, p < 0,01 o p < 0,001, Figura 9H, K–O) y sus genes en HPEM con baja expresión de FOXO3a.
DISPONIBILIDAD DE LOS DATOS:
Todos los datos brutos están disponibles en el repositorio público de datos en la siguiente URL https://doi.org/10.5281/zenodo.22090466.
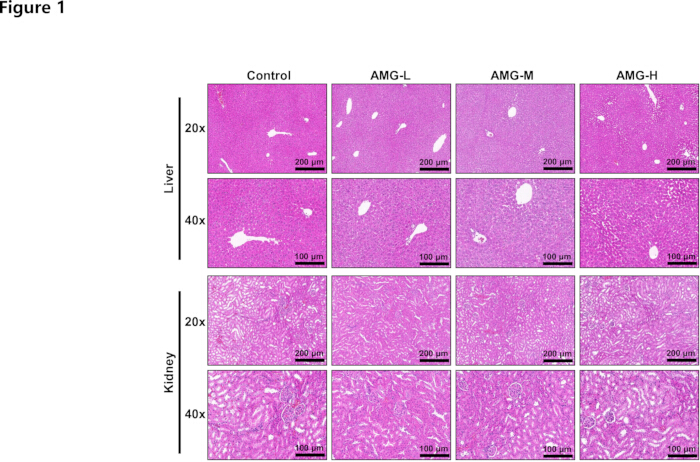
Figura 1: Tinción HE. Se utilizó la tinción HE para evaluar la toxicidad dependiente de la dosis de AMG (60, 90 y 120 mg/kg) en el hígado y el riñón de ratones C3H/HeJ normales. No se observó ningún daño patológico específico en el hígado ni en el riñón a los aumentos de 20× (200 µm) y 40× (100 µm). n = 6. Haga clic aquí para ver una versión más grande de esta figura.
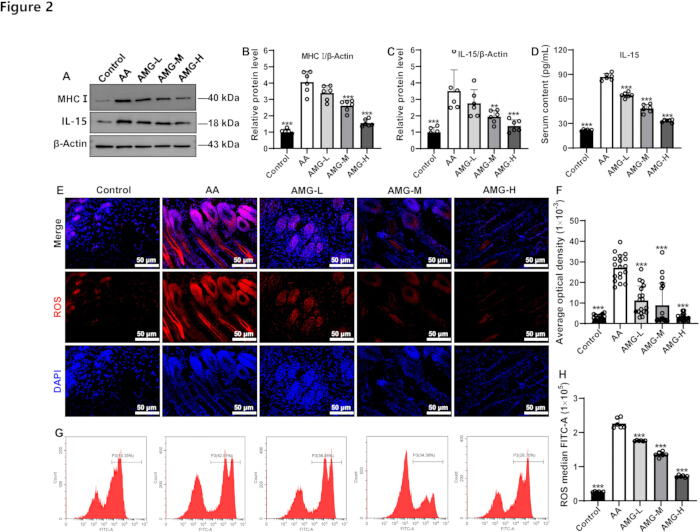
Figura 2: Efectos de AMG sobre MHC I, IL-15 y ERO en muestras de piel de ratones con AA. (A–C), AMG redujo los niveles de expresión proteica de MHC I y de IL-15, según se evaluó mediante blot de Western. (D), AMG redujo Niveles de IL-15 en el suero de los ratones. (E y F), AMG redujo los niveles de ERO en muestras de piel de ratón, tal como se detectó mediante el ensayo de IF. (G y H), AMG redujo los niveles de ERO en muestras de piel de ratón, según se determinó mediante citometría de flujo. Los resultados experimentales se presentan en forma de media ± SD. **p < 0,01 y ***p < 0,001 frente al grupo AA; n = 6. Haga clic aquí para ver una versión más grande de esta figura.
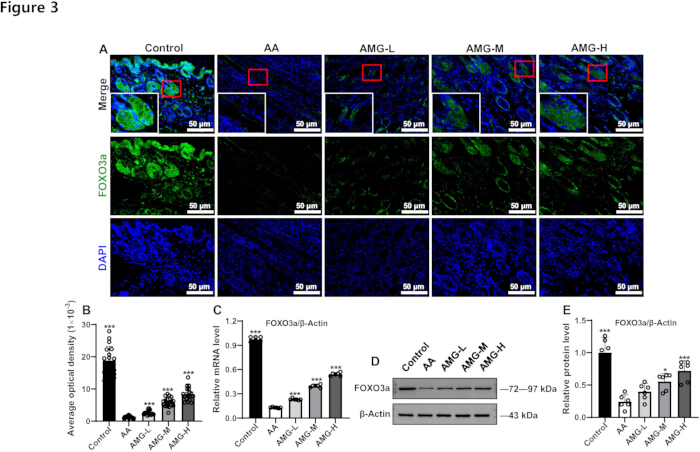
Figura 3: Efectos de AMG sobre los niveles proteicos y genéticos de FOXO3a en muestras de piel de ratones AA. (A) AMG aumentó los niveles de la proteína FOXO3a, evaluado mediante el ensayo de IF. (B) Resultados cuantitativos de IF. (C) AMG aumentó la expresión génica de FOXO3a. (D) AMG aumentó la expresión proteica de FOXO3a, detectado mediante Western blot. (E) Resultados cuantitativos del Western blot. Los resultados experimentales se presentan como media ± DE. *p < 0,05 y ***p < 0,001 frente al grupo AA; n = 6. Haga clic aquí para ver una versión más grande de esta figura.
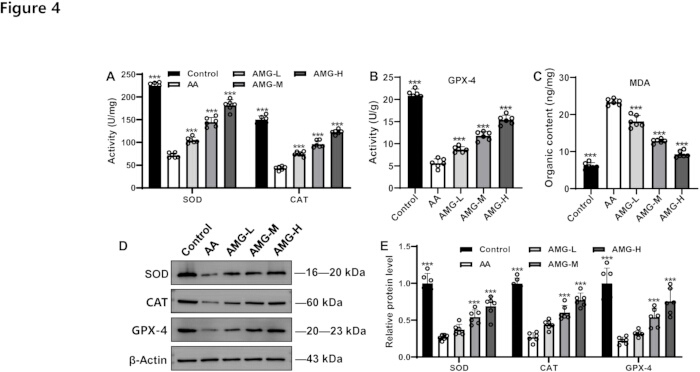
Figura 4: Efectos de AMG sobre los indicadores de estrés oxidativo en muestras de piel de ratones AA. (A) AMG estimuló los niveles de SOD y CAT, evaluados mediante un kit de prueba bioquímica. En (B) y (C), AMG aumentó los niveles de GPX-4 y redujo los niveles de MDA. (D) bandas proteicas representativas de SOD, CAT y GPX-4. (E) Resultados cuantitativos de la expresión proteica de SOD, CAT y GPX-4. Los resultados experimentales se presentan como media ± DE. ***p < 0,001 frente al grupo AA; n = 6. Haga clic aquí para ver una versión más grande de esta figura.
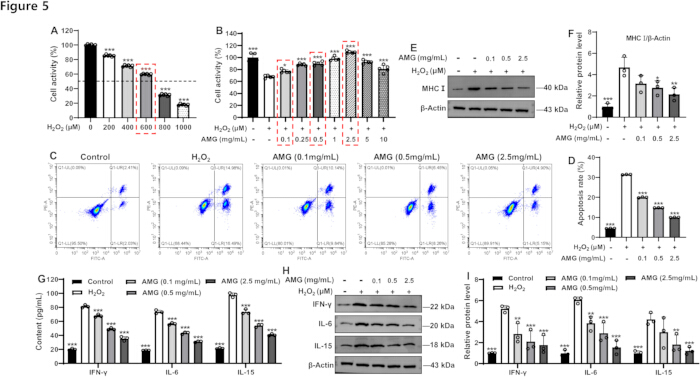
Figura 5: Efectos de AMG sobre la apoptosis y los indicadores inflamatorios de HPEMs inducidos por H2O2. (A) consecuencias de diferentes concentraciones de H2O2 sobre la viabilidad de HPEMs (n = 6). (B) Efectos de distintas concentraciones de AMG sobre la supervivencia de HPEMs inducidos por estímulos de H2O2 (n = 6). (C) Se empleó análisis citométrico de flujo para evaluar la apoptosis mediada por AMG en HPEMs inducidos por estímulos de H2O2. (D) Resultados estadísticos de la apoptosis celular. (E) Franja de inmunotransferencia de MHC I. (F) Resultado cuantitativo de la expresión relativa de la proteína MHC I. (G) Efectos de AMG sobre IFN-γ, IL-6 e IL-15 en HPEMs inducidos por estímulos de H2O2. (H) Franjas de inmunotransferencia de IFN-γ, IL-6 e IL-15. (I) Resultado cuantitativo del nivel relativo de las proteínas IFN-γ, IL-6 e IL-15. Los resultados experimentales se presentan como media ± DE. *p < 0,05, **p < 0,01 y ***p < 0,001 frente al grupo H2O2; n = 3. Haga clic aquí para ver una versión ampliada de esta figura.
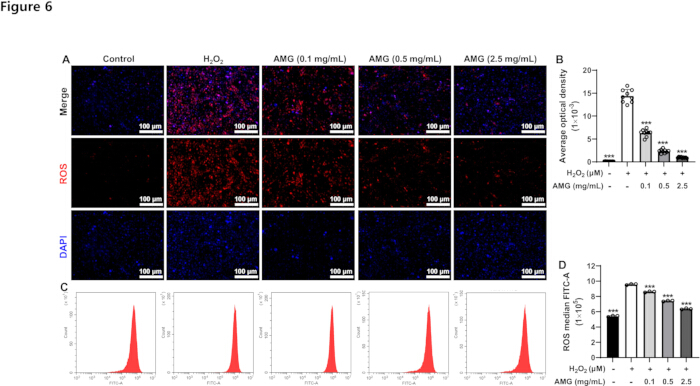
Figura 6: Efectos de AMG sobre las ERO en HPEM inducidas por H2O2. (A) La imagen de fluorescencia de las ERO. (B) Los resultados estadísticos cuantitativos de fluorescencia de las ERO. (C) La imagen de citometría de flujo de las ERO. (D) Los resultados estadísticos cuantitativos de citometría de flujo de las ERO. Los resultados experimentales se presentan en forma de media ± DE. ***p < 0,001 frente al grupo de H2O2; n = 3. Haga clic aquí para ver una versión más grande de esta figura.
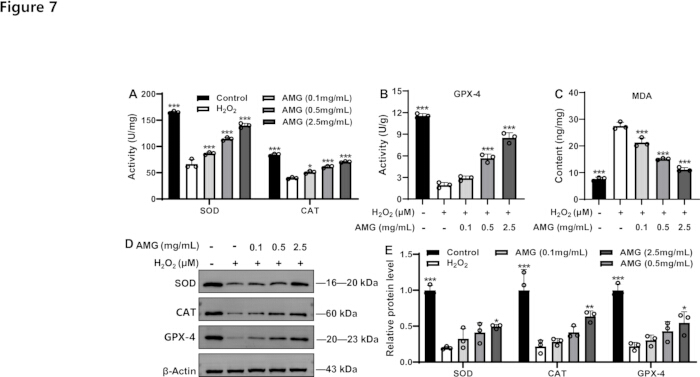
Figura 7: Efectos de AMG sobre los indicadores de estrés oxidativo en HPEMs inducidos por H2O2. Los niveles de SOD, (A) CAT, (B) GPX-4 y (C) MDA en HPEMs se midieron utilizando kits bioquímicos o ELISA. Bandas de inmunotransferencia de SOD, CAT y GPX-4 (D) y sus resultados cuantitativos (E). Los resultados experimentales se presentan como media ± DE. *p < 0,05, **p < 0,01 y ***p < 0,001 frente al grupo H2O2; n = 3. Haga clic aquí para ver una versión más grande de esta figura.
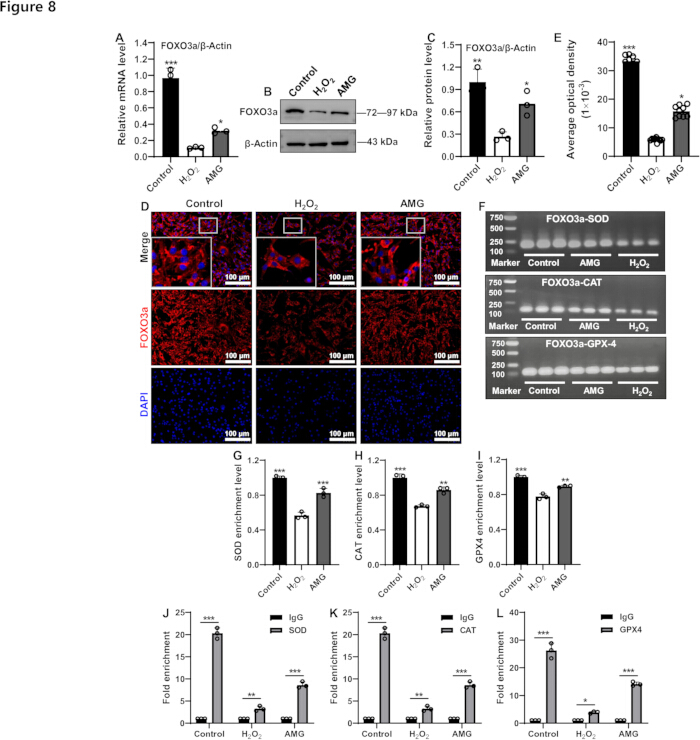
Figura 8: Efectos de AMG sobre FOXO3a en HPEMs inducidos por H2O2. (A) el nivel de expresión del gen FOXO3a. Bandas de inmunotransferencia de FOXO3a (B) y sus resultados cuantitativos (C). La imagen de fluorescencia de FOXO3a (D) y sus resultados estadísticos cuantitativos de fluorescencia (E). (F) patrones electroforéticos representativos de ChIP-PCR para FOXO3a-SOD, FOXO3a-CAT y FOXO3a-GPX-4. Análisis cuantitativo de los valores de densidad de las bandas de ChIP-PCR para SOD (G), CAT (H) y GPX-4 (I). Los niveles de enriquecimiento de FOXO3a en los promotores de SOD (J), CAT (K) y GPX-4 (L) se detectaron mediante ChIP-PCR. Los resultados experimentales se presentan como media ± DE. *p < 0,05, **p < 0,01 y ***p < 0,001 frente al grupo H2O2, o frente a los grupos indicados; n = 3. Haga clic aquí para ver una versión ampliada de esta figura.
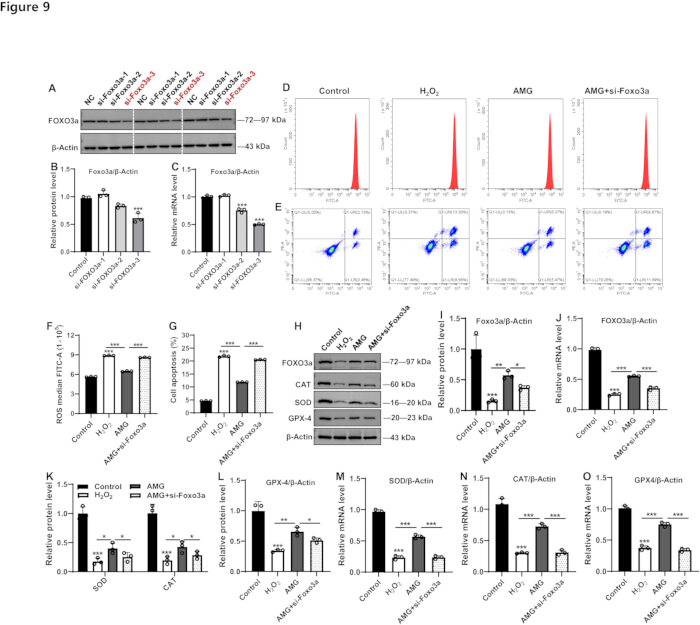
Figura 9: Efectos de AMG sobre el estrés oxidativo y la apoptosis en células HPEMs con baja expresión de FOXO3a y estímulos de H2O2. (A) Bandas de inmunotransferencia de FOXO3a y su resultado cuantitativo (B). (C) resultado cuantitativo de la expresión de ARNm de FOXO3a. (D) gráfico de citometría de flujo de ERO y apoptosis celular (E). Y los hallazgos estadísticos asociados (F y G). (H) bandas de inmunotransferencia de FOXO3a, SOD, CAT y GPX-4. (I) El resultado cuantitativo de la expresión proteica de FOXO3a. (J) resultado cuantitativo de la expresión de ARNm de FOXO3a. (K y L) resultados cuantitativos de la expresión proteica de SOD, CAT y GPX-4. Resultados cuantitativos de la expresión génica de SOD (M), CAT (N) y GPX-4 (O). Los resultados experimentales se presentan como media ± DE. *p < 0,05, **p < 0,01 y ***p < 0,001 frente al grupo control, o frente a los grupos indicados; n = 3. Haga clic aquí para ver una versión ampliada de esta figura.
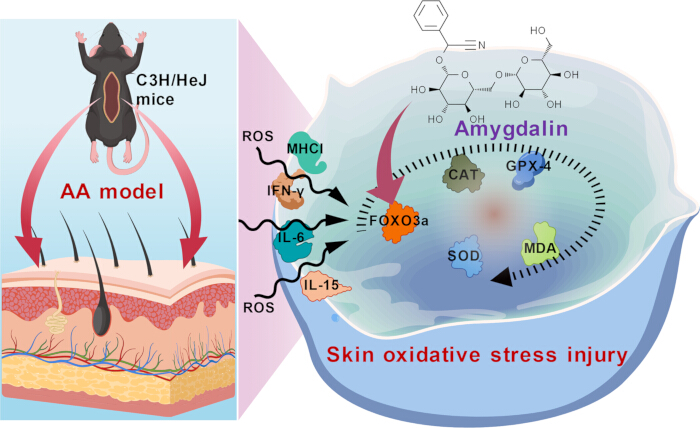
Figura 10: Diagrama esquemático. Este diagrama ilustra el mecanismo mediante el cual AMG estimula la expresión de FOXO3a, inhibiendo así el estrés oxidativo y la inflamación y mejorando el AA. Fue creado por los autores utilizando BioGDP.com, y no existen problemas de derechos de autor. Haga clic aquí para ver una versión más grande de esta figura.
| Genes | Especie | Secuencias (5' - 3') | Longitud (pb) |
| FOXO3a | Ratón | Directo: GCAAGCCGTGTACTGTGGA | 116 |
| Inverso: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Humano | Directo: CGGACAAACGGCTCACTCT | 150 |
| Inverso: GGACCCGCATGAATCGACTAT | |||
| SOD | Humano | Directo: AAAGATGGTGTGGCCGATGT | 167 |
| Inverso: CAAGCCAAACGACTTCCAGC | |||
| CAT | Humano | Directo: CTATCCTGACACTCACCGCC | 129 |
| Inverso: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Humano | Directo: GCAAGGGCATCCTGGGAAAT | 84 |
| Inverso: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actina | Humano | Directo: AATCTGGCACCACACCTTCTACAA | 172 |
| Inverso: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actina | Ratón | Directo: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Inverso: ATGCCACAGGATTCCATACC |
Tabla 1: Información de las secuencias génicas para qRT-PCR. Los cebadores utilizados para qRT-PCR.
| Genes | Especies | Secuencias (5' - 3') | Longitud (pb) |
| SOD | Humano | Forward: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Reverse: ATCCGCCCACAGACACGAGAG | |||
| CAT | Humano | Forward: GGGAAGCAGATTTCTCCAGTG | 141 |
| Reverse: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | Humano | Forward: TGGCACATTTTGGGGTTGGAAC | 103 |
| Reverse: TGAACGCTCCTCCTCCTTAAACG |
Tabla 2: Información de las secuencias génicas para ChIP-PCR. Los cebadores utilizados para ChIP-PCR.
Discusión
El AMG en sí no tiene toxicidad directa. Es hidrolizado por enzimas microbianas intestinales o por el ácido gástrico, generando y liberando cianuro de hidrógeno altamente tóxico49. El cianuro de hidrógeno luego se absorbe rápidamente a través del tracto digestivo hacia la circulación sanguínea y se disemina por los tejidos del cuerpo, provocando hipoxia en los tejidos del sistema nervioso, sistema cardiovascular y sistema respiratorio50. En cuanto al mecanismo, el cianuro de hidrógeno se combina con los iones de hierro en la citocromo oxidasa, bloqueando la cadena respiratoria celular, lo que resulta en hipoxia tisular y trastornos metabólicos celulares, y desencadenando una intoxicación aguda51. Los síntomas tóxicos incluyen dolor de cabeza, náuseas, vómitos y dificultad respiratoria49,52. En casos graves, puede provocar insuficiencia respiratoria y muerte49,52. Por lo tanto, garantizar un rango de dosis seguro de AMG es un requisito previo para estudiar sus efectos farmacológicos. En este estudio, los autores confirmaron primero mediante examen histopatológico que las dosis utilizadas (60, 90 y 120 mg/kg) no causaron toxicidad hepática ni renal en ratones C3H/HeJ normales, lo cual constituye la base para investigar más a fondo el tratamiento de la alopecia areata con AMG.
El IFN-γ actúa como un impulsor crítico de la inflamación durante el desarrollo de la AA, siendo secretado principalmente por linfocitos T CD4+/CD8+ activados53,54,55. Altera el privilegio inmunológico de los folículos pilosos (por ejemplo, al inhibir la baja expresión de MHC I), lo que induce a los linfocitos T autorreactivos a atacar los melanocitos de los folículos pilosos, provocando vacuolización de las células madre del cabello y una queratinización anormal de la papila pilosa56,57. Experimentos en animales han demostrado que los ratones deficientes en el gen IFN-γ presentan resistencia a la AA58. La IL-6 y la IL-15 pueden potenciar las respuestas inmunitarias de tipo Th1 mediante la activación de la cascada de transducción de señales JAK/STAT y la promoción de la liberación de IFN-γ 59. Además, la IL-15 puede estimular la proliferación de células NK y linfocitos T, agravando la infiltración inflamatoria alrededor de las estructuras de los folículos pilosos60. Las papilas pilosas normales evaden la vigilancia inmunitaria mediante una baja expresión de MHC I, mientras que en pacientes con AA, el MHC I se sobreexpresa anormalmente, haciendo que los melanocitos de los folículos pilosos se conviertan en diana del ataque de los linfocitos T61. En este estudio, los autores observaron que el tratamiento con AMG redujo significativamente los niveles de las proteínas MHC I y IL-15 en la piel de ratones C3H/HeJ. Experimentos previos en animales también confirmaron que el AMG puede inhibir los niveles de IFN-γ e IL-6 en ratones con AA38. En el daño inducido por H2O2 en HPEMs, el MHC I, así como las citoquinas proinflamatorias incluyendo IFN-γ, IL-6 e IL-15, se restringieron considerablemente tras el tratamiento con AMG. Estos datos sugieren que el potencial del AMG en el tratamiento de la AA podría estar relacionado con la capacidad de mantener el equilibrio entre la inmunidad y la inflamación.
El desequilibrio entre el sistema de enzimas antioxidantes (SOD, CAT y GPX-4) y los marcadores de peroxidación lipídica MDA y ROS desempeña un papel crucial en la patogénesis de la AA62. La SOD reduce el estrés oxidativo al catalizar la conversión de O2·⁻ en H2O2, mientras que la CAT y la GPX-4 descomponen aún más el H2O2 en H2O, evitando la acumulación de ROS. Hay evidencia de que un exceso de ROS puede desencadenar la peroxidación lipídica, lo que lleva a niveles elevados de MDA y daño directo a las células del folículo piloso63. En pacientes con AA, la capacidad de eliminación de ROS en los folículos pilosos disminuye, y la acumulación de MDA agrava la muerte apoptótica de las células de la papila pilosa, haciendo que los folículos pilosos entren prematuramente en la fase de reposo63. Además, el estrés oxidativo puede promover la liberación del factor proinflamatorio IFN-γ, lo que agrava aún más el ataque inmunitario y la degeneración del folículo piloso64. En este estudio, los investigadores aclararon que la intervención con AMG redujo la sobreexpresión de ROS en la piel de los ratones con AA y la lesión de las células HPEM inducida por H2O2. Mientras tanto, las investigaciones experimentales in vivo y ex vivo mostraron que el tratamiento con AMG aumentó significativamente los indicadores antioxidantes (SOD, CAT y GPX-4), al tiempo que redujo el indicador pro-oxidativo MDA. Estas evidencias indican que el mantenimiento del equilibrio del estrés oxidativo es la contribución de AMG a la AA. Dado que una actividad reducida de GPX-4 podría conducir a una generación descontrolada de MDA, esto podría desencadenar el proceso de ferroptosis. Estos procesos moleculares también podrían contribuir a la agravación de la AA y servir como un mecanismo potencial del tratamiento con AMG. Todo esto requiere una verificación experimental adicional en el futuro.
Como un factor de transcripción clave, FOXO3a podría estar implicado en la patogénesis de la alopecia areata a través de las vías de estrés oxidativo y regulación inmunitaria65Puede translocarse al núcleo bajo estrés oxidativo, regulando positivamente enzimas antioxidantes clave como SOD y CAT para eliminar el exceso de ERO y reducir el daño oxidativo en el tejido del cuero cabelludo. Al mitigar la carga oxidativa local, FOXO3a puede estabilizar el privilegio inmune de los folículos pilosos y limitar el ataque autoinmune que provoca la alopecia no cicatricial. En cuanto a la regulación del estrés oxidativo, la activación de FOXO3a puede aumentar la expresión de enzimas antioxidantes como SOD y CAT e inhibir la acumulación de ERO.65Sin embargo, la función alterada de FOXO3a puede desencadenar un aumento en la generación de MDA, un producto clave de la peroxidación lipídica, exacerbando así la apoptosis celular 66. A nivel de regulación inmunitaria, FOXO3a induce ataques autoinmunes mediante la regulación de antígenos restringidos por el MHC I67Este estudio informó que AMG aumentó drásticamente los niveles de la proteína y del gen FOXO3a en el tejido cutáneo de ratones C3H/HeJ y en células HPEM inducidas por H2O2. Además, AMG redujo los niveles de ERO y la apoptosis celular, al tiempo que incrementó la expresión de FOXO3a y los niveles de SOD, CAT y GPX-4 regulados por FOXO3a en células HPEM con baja expresión de FOXO3a. En conjunto, estos hallazgos indican que el efecto terapéutico de AMG sobre la alopecia areata (AA) está estrechamente relacionado con el equilibrio regulador mediado por FOXO3a entre el estrés oxidativo y la apoptosis celular. Dada la relación causal del FOXO3a mediado por AMG en la mejora de la AA, será necesario realizar estudios futuros que incluyan la sobreexpresión de FOXO3a o su inhibición farmacológica bajo la intervención de AMG. Además, aún debe investigarse si el FOXO3a mediado por AMG puede mitigar el estrés oxidativo y modular las respuestas inflamatorias para proteger a las células madre del folículo piloso frente al daño inducido por especies reactivas de oxígeno (ROS) y la destrucción mediada por el sistema inmunitario. Otro aspecto digno de mención es si AMG ejerce su efecto antioxidante al contrarrestar directamente la toxicidad del H₂O₂ o mediante la regulación de la transducción de señales intracelulares sigue siendo un tema no resuelto en esta investigación.
En conclusión, este estudio confirmó por primera vez que AMG no era potencialmente tóxico para el hígado y los riñones a las dosis evaluadas. Además, se demostró a nivel molecular que AMG podría promover la expresión de FOXO3a, activando así transcripcionalmente las expresiones de SOD, CAT y GPX-4, e inhibiendo las respuestas inflamatorias y los eventos apoptóticos para tratar la AA (Figura 10). Sin embargo, algunas limitaciones que existen en este estudio aún deben explorarse y aclararse en investigaciones posteriores. En primer lugar, la aclaración de la toxicidad a largo plazo y de las propiedades farmacocinéticas de AMG en animales con AA constituye la base y el requisito previo para investigar a fondo sus efectos farmacológicos y sus mecanismos moleculares. En segundo lugar, los efectos farmacológicos de AMG en el tratamiento de la AA aún requieren confirmación mediante estudios a gran escala en múltiples modelos animales y ensayos clínicos. En cuanto al mecanismo molecular, aún es necesario realizar experimentos de rescate para confirmar más a fondo si es FOXO3a el que media el efecto farmacológico de AMG. Asimismo, se requiere mayor exploración para determinar si es la actividad antioxidante directa de AMG o el efecto antioxidante ejercido por FOXO3a mediado por AMG.
Divulgaciones
Los autores no tienen conflictos de intereses que declarar.
APORTES DE LOS AUTORES:
Xun He: Investigación, Metodología, Escritura – borrador original. Jingsong Liu, Jiawei Wang y Zhe Dai: Curación de datos. Yugang Gong, Wei Lu y Xiaowei Sha: Software, Visualización y Validación. Xun He: Conceptualización, Escritura – revisión &Edición, adquisición de financiamiento y supervisión.
Agradecimientos
Este trabajo fue respaldado por el Comité de Atención Médica para Funcionarios de la Provincia de Sichuan (2024-221).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| 5×Mezcla maestra todo en uno (con kit de eliminación de ADN genómico AccuRT) | Applied Biological Materials Inc., Jiangsu, China | G492 | |
| Anticuerpo contra β-actina | Affinity Biosciences Co., Ltd., Wuhan, China | AF7018 | |
| Amygdalina | Chengdu Herbpurify Co., Ltd., Chengdu, China | K-001-181216 | |
| Anticuerpo contra catalasa | Proteintech, Wuhan, China | 66765-1-Ig | |
| Kit de catalasa | Elabscience, Wuhan, China | E-BC-K031-M | |
| Ratones C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, China | N000190 | |
| Kit de ensayo ChIP | Beyotime Biotechnology, Shanghai, China | P2078 | |
| Medio de cultivo 254 | Gibco, Thermo Fisher Scientific, America | M-254-500 | |
| Reactivo de tinción DAPI | Servicebio, Wuhan, China | G1012 | |
| Dispasa II | Shanghai Yuanye Bio-Technology Co., Ltd., Shanghai, China | S25046 | |
| EvaGreen Express 2×qPCR MasterMix-Sin colorante | Applied Biological Materials Inc., Jiangsu, China | MasterMix-ES | |
| Negro rápido HB | Sangon Biotech Co., Ltd., Shanghai, China | A602008-0025 | |
| Suero bovino fetal | Every Green | 13011-8611 | |
| Microscopio de fluorescencia | SOPTOP | CX40 | |
| Anticuerpo contra FOXO3a | Proteintech, Wuhan, China | 10849-1-AP | |
| Microtomo congelador | Thermo | Cryotome E | |
| Anticuerpo contra glutatión peroxidasa 4 | Proteintech, Wuhan, China | 67763-1-Ig | |
| Kit de glutatión peroxidasa 4 | Elabscience, Wuhan, China | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| Crema de imiquimod | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, China | H20030129 | |
| Anticuerpo contra interferón gamma | Proteintech, Wuhan, China | 15365-1-AP | |
| Kit de interferón gamma | Elabscience, Wuhan, China | E-EL-H0108 y E-EL-M0048 | |
| Anticuerpo contra interleucina 6 | Proteintech, Wuhan, China | 21865-1-AP | |
| Kit de interleucina 6 | Elabscience, Wuhan, China | E-EL-H6156 y E-EL-M0044 | |
| Anticuerpo contra interleucina 15 | Affinity Biosciences Ltd., Wuhan, China | DF2521 | |
| Kit de interleucina 15 | Elabscience, Wuhan, China | E-EL-H0222 y E-EL-M0728 | |
| Kit de malondialdehído | Elabscience, Wuhan, China | E-EL-0060 | |
| Anticuerpo contra MHC | Affinity Biosciences Ltd., Wuhan, China | DF8558 | |
| Microscopio óptico | ZEISS | Primo Star | |
| Cortador de parafina | Thermo scientific | HM325 | |
| Software de escaneo patológico | 3DHISTECH (Hungary) | Slide Viewer2.5.0 | |
| Solución de penicilina-sintroid | Biosharp, Beijing, China | BL505A | |
| IgG de conejo | Beyotime Biotechnology, Shanghai, China | A7016 | |
| Kit de ensayo de ROS | Beyotime Biotechnology, Shanghai, China | S0033M | |
| Anticuerpo contra superóxido dismutasa 1 | Proteintech, Wuhan, China | 10269-1-AP | |
| Incrustador de tejidos | Wuhan Junjie Electronics Co., Ltd., Wuhan China | JB-P5 | |
| Hidroextractor de tejidos | Thermo scientific | STP420 ES | |
| Kit de aislamiento de ARN total | Foregene, Chengdu, China | RE-03014 | |
| Kit de superóxido dismutasa total | Elabscience, Wuhan, China | E-BC-K020-M | |
| Vaselina blanca | Shanghai Aladdin Biochemical Technology Co., Ltd., Shanghai, China | P434227 |
Referencias
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.