La electroacupuntura mitiga la insuficiencia cardíaca crónica y la remodelación cardíaca patológica al restablecer la actividad neuronal dentro del núcleo del tracto solitario. Esta neuromodulación terapéutica central se asocia con la sobreexpresión del factor de transcripción YY1, un objetivo biológico candidato.
Artículo de investigación
Mecanismos centrales de la electroacupuntura en la insuficiencia cardíaca crónica: perspectivas de la proteómica cuantitativa del núcleo del tracto solitario
* These authors contributed equally
En este artículo
Resumen
Resumen
La insuficiencia cardíaca crónica (ICC) es una causa principal de mortalidad cardiovascular a nivel mundial, impulsada por la disregulación autónoma y la sobreactivación simpática. Aunque la electroacupuntura (EA) ejerce efectos cardioprotectores mediante neuromodulación central, sus objetivos moleculares específicos dentro del núcleo del tracto solitario (NTS), un centro clave de integración autónoma, permanecen poco claros. Para investigar esto, se estableció el modelo de rata con ICC mediante ligadura de la arteria coronaria descendente anterior izquierda. Las ratas recibieron EA en los puntos de acupuntura HT7 bilaterales durante siete días consecutivos. La función cardíaca y el daño miocárdico se evaluaron mediante ecocardiografía, ensayos inmunoenzimáticos y tinción histológica. La actividad neuronal del NTS se evaluó mediante inmunofluorescencia de c-Fos y electrofisiología in vivo. Los mecanismos moleculares se exploraron utilizando proteómica cuantitativa y bioinformática, con los objetivos principales verificados mediante PCR cuantitativa y transferencia Western. La EA mejoró la fracción de eyección del ventrículo izquierdo, mitigó la fibrosis miocárdica y redujo los marcadores séricos de insuficiencia cardíaca. Concurrentemente, la EA restauró las tasas espontáneas de disparo neuronal, la energía del potencial de campo local y la expresión de c-Fos dentro del NTS. El perfilado proteómico identificó 85 proteínas principales diferencialmente expresadas moduladas por la EA. La estratificación funcional de las 58 proteínas reguladas a la baja y las 27 reguladas al alza reveló su participación respectiva en la organización de la matriz extracelular y en la remodelación de la cromatina dependiente de ATP. El enfoque de cribado por etapas, que integra el mapeo topológico de redes, el enriquecimiento de vías y el perfilado de expresión tisular, identificó al factor de transcripción YY1 como un candidato objetivo altamente sensible. La validación in vivo confirmó que la EA reguló positivamente la expresión de YY1. En conjunto, la EA mitigó la remodelación cardíaca patológica y restauró la actividad neuronal del NTS. Se identificó a YY1 como un objetivo candidato asociado con esta neuromodulación central, proporcionando una perspectiva molecular sobre los mecanismos subyacentes a los efectos de la EA en la ICC.
Introducción
Se reconoce ampliamente que la insuficiencia cardíaca crónica (ICC) es la etapa final de diversas patologías cardiovasculares y sigue siendo una de las principales causas de mortalidad cardiovascular en todo el mundo, lo que representa una carga enorme para los sistemas sanitarios globales1. La progresión fisiopatológica de la ICC está impulsada principalmente por la disregulación del sistema nervioso autónomo, caracterizada por una sobreactivación simpática sostenida y un retiro parasimpático2. Por lo tanto, la restauración de la homeostasis autónoma se considera una estrategia terapéutica crucial para mitigar el remodelado cardíaco patológico y mejorar la función cardíaca global3.
La electroacupuntura (EA) representa un avance moderno de la acupuntura tradicional y ha ganado reconocimiento generalizado por su eficacia clínica en el manejo de afecciones cardiovasculares4. Investigaciones extensas, incluidos nuestros estudios previos, han destacado que esta terapia ejerce efectos cardioprotectores significativos principalmente mediante la modulación del sistema nervioso autónomo central. Específicamente, hemos demostrado que la EA en el punto de acupuntura Shenmen (HT7) puede suprimir eficazmente el flujo simpático excesivo y restablecer el equilibrio simpato-vagal a través de mecanismos neuronales centrales específicos, mejorando así la progresión patológica de la IC5,6,7,8.
El núcleo del tracto solitario (NTS), ubicado en la médula oblonga, es un centro de integración vital para mantener el equilibrio autónomo central. Actúa como la estación de relevo principal para los reflejos cardiovasculares y las entradas sensoriales periféricas, regulando el equilibrio dinámico entre el tono simpático y el vagal9. A pesar de su importancia anatómica y funcional, las alteraciones moleculares específicas dentro de este centro crítico del tronco encefálico durante el tratamiento con EA para la IC permanecen en gran parte desconocidas. La proteómica avanzada de alto rendimiento combinada con análisis bioinformáticos ofrece una herramienta potente para mapear de manera imparcial las complejas redes de proteínas y cascadas de señalización implicadas en este proceso neurobiológico central10.
Por lo tanto, este estudio tuvo como objetivo investigar los efectos de la electroacupuntura (EA) en el punto de acupuntura HT7 sobre la función cardíaca y la actividad neuronal del núcleo del tracto solitario (NTS) en la insuficiencia cardíaca crónica (CHF), así como caracterizar las alteraciones moleculares dentro del NTS asociadas al tratamiento con EA. Al integrar la electrofisiología in vivo con proteómica cuantitativa, análisis bioinformáticos y validación molecular, este estudio buscó identificar dianas moleculares candidatas asociadas a la neuromodulación central mediada por EA en la CHF.
Protocolo
Todos los métodos que involucraron animales vertebrados se realizaron cumpliendo con el Comité de Cuidado y Uso de Animales de la Universidad de Medicina China de Anhui, con el número de aprobación AHUCM-rats-2024145. Los reactivos y el equipo utilizados se enumeran en la Tabla de Materiales.
Preparación y agrupación de los animales
Se utilizaron ratas macho Sprague-Dawley de grado limpio, con 8 semanas de edad y un peso de 200 a 250 g, para todos los experimentos. Los animales se mantuvieron en un ambiente controlado a 24 ± 2 °C y una humedad relativa del 50%–60%, bajo un ciclo estándar de 12 h de luz y 12 h de oscuridad. A todas las ratas se les proporcionó acceso ad libitum a alimento y agua, y pasaron por un período de aclimatación de una semana antes de cualquier procedimiento experimental.
Para el experimento I, que evaluó la actividad funcional y neural central, 24 ratas se dividieron aleatoriamente en cuatro grupos de seis animales cada uno: grupos Falso, IC, AE e IC Falso (Figura 1A). Para el experimento II, que evaluó los blancos moleculares y la proteómica de alto rendimiento, 36 ratas se asignaron aleatoriamente a tres grupos de 12 cada uno: Falso, IC y AE. Los tamaños de muestra se determinaron según el método de la ecuación de recursos para cumplir con la ética en el bienestar animal y el principio de reducción, garantizando al mismo tiempo validez estadística (E = 20 para el experimento I; E = 33 para el experimento II)11. Esta estrategia de tamaño de muestra fue coherente con los protocolos utilizados en estudios previos sobre AE para enfermedades cardiovasculares8,12. Los análisis de potencia post hoc indicaron que una potencia estadística superior a 0,90 respaldaba la adecuación de esta asignación. El grupo IC Falso se excluyó del experimento II porque evaluaciones funcionales preliminares indicaron ausencia de eficacia terapéutica.
Establecimiento del modelo de insuficiencia cardíaca crónica
Las ratas fueron sometidas a ayuno durante 12 h antes de la cirugía y tuvieron acceso libre al agua. La anestesia se indujo con isoflurano al 3% y se mantuvo entre el 1,5% y el 2% de isoflurano durante el procedimiento. Dado que el isoflurano es un anestésico volátil, se utilizó un sistema adecuado de captación y el procedimiento se realizó en un área bien ventilada para prevenir la exposición ocupacional.
Se registraron continuamente electrocardiogramas (ECG) de extremidades. Se realizó una toracotomía izquierda para exponer el corazón, y la arteria coronaria descendente anterior izquierda (LAD) se ligó de forma permanente a 2-3 mm por debajo del apéndice auricular izquierdo utilizando una sutura no absorbible 7-013. Se confirmó la isquemia exitosa identificando una elevación del segmento ST de al menos 0,2 mV en el ECG (Figura 1B). Se administraron inyecciones intraperitoneales de penicilina (200.000 U/mL) e inyecciones subcutáneas de carprofeno (5 mg/kg) diariamente durante tres días consecutivos después de la cirugía para prevenir infecciones y aliviar el dolor.
Para el grupo control falso, se realizó un procedimiento de toracotomía idéntico, seguido de una inserción superficial de aguja en la ubicación anatómica correspondiente sin ligadura de la arteria coronaria descendente anterior (LAD). Se proporcionó un cuidado y monitoreo postoperatorio idéntico. La evaluación ecocardiográfica se realizó a las 4 semanas posteriores a la cirugía. Se consideró que el modelo se estableció con éxito cuando la fracción de eyección del ventrículo izquierdo (LVEF) fue ≤45%8 (Figura 1C). Los animales que no cumplieron con estos criterios, presentaron anomalías basales en el ECG preoperatorio o sufrieron mortalidad prematura fueron excluidos sistemáticamente. Se sometieron ratas suplementarias a protocolos quirúrgicos idénticos para reemplazar inmediatamente los animales excluidos y mantener un tamaño de muestra uniforme.
Intervención con electroacupuntura
De acuerdo con los protocolos anatómicos comparativos establecidos14, los puntos de acupuntura bilaterales HT7 en el meridiano del Corazón de la Mano-Shaoyin se localizaron en la cara palmar del pliegue transversal de la muñeca, cerca del borde cubital, directamente dentro de la depresión radial del tendón del flexor cubital del carpo. Se desinfectó rutinariamente la zona local. Se insertaron perpendicularmente dos agujas estériles desechables de acupuntura (0,25 x 25 mm) en cada área del punto HT7 hasta una profundidad objetivo de 2 a 3 mm y se colocaron a aproximadamente 1 mm de distancia entre sí, para permanecer estrictamente dentro de la misma región del punto de acupuntura. Para la documentación en video, la profundidad de inserción se verificó visualmente marcando previamente el vástago de la aguja en la posición de 3 mm antes de la inserción.
Una aguja se conectó al terminal catódico del aparato de EA, y la aguja adyacente se conectó al terminal anódico para establecer un circuito eléctrico localizado (Figura 1D). Se administró una forma de onda eléctrica continua a una frecuencia constante de 2 Hz y una intensidad de 1 mA, calibrada para producir contracciones musculares observables pero leves en las extremidades correspondientes, durante 30 minutos diarios durante siete días consecutivos bajo anestesia con isoflurano.
Se aplicó un protocolo mínimo de punción en el grupo de intervención simulada para tener en cuenta las respuestas somatosensoriales no específicas15,16. Se insertaron agujas estériles superficialmente a una profundidad de 0,5–1 mm en las mismas localizaciones HT7 sin conectar electrodos ni administrar corriente, coincidiendo con la duración anestésica de 30 min. Los grupos control basales de simulación y de ICC fueron sometidos a una exposición diaria idéntica a isoflurano (1,5%–2% de isoflurano durante 30 min diarios durante siete días consecutivos) sin inserción de agujas ni estimulación eléctrica. Este procedimiento estandarizó la línea base anestésica en todos los grupos experimentales y controló posibles artefactos neurosupresores o cardioprotectores inducidos por anestesia volátil repetitiva.
Evaluación ecocardiográfica y eutanasia del animal
Después de la intervención, las ratas fueron anestesiadas con 3% de isoflurano para la inducción y 1% para el mantenimiento, y fijadas en posición supina sobre la plataforma para animales. El vello del tórax se eliminó cuidadosamente utilizando un agente depilatorio, y se aplicó uniformemente un agente acoplante acústico sobre la piel expuesta. La función cardíaca se evaluó mediante un sistema de ultrasonido digital equipado con un transductor eco de 18 MHz. Se registró ecocardiografía en modo M para medir la fracción de eyección del ventrículo izquierdo (LVEF) y el acortamiento fraccional del ventrículo izquierdo (LVFS), y se calculó el valor medio de 3 réplicas técnicas para el análisis final.
Se extrajo sangre de la aorta abdominal mientras los animales permanecían bajo anestesia para prevenir pérdidas sanguíneas posteriores y coagulación, y para asegurar la calidad de la muestra para el ensayo inmunoenzimático (ELISA). Las ratas fueron sacrificadas inmediatamente mediante inducción continua con isoflurano al 5 % hasta la cesación de los latidos cardíacos y la respiración.
Las muestras de tejido se asignaron posteriormente según el diseño experimental. Para el Experimento I, se utilizaron 3 ratas por grupo para extraer el corazón para tinción con hematoxilina y eosina (HE)/Masson y el cerebro para inmunofluorescencia de c-Fos. Las tres ratas restantes se asignaron para electrofisiología in vivo. Para el Experimento II, se extrajeron tejidos del NTS bilateral de seis ratas por grupo para proteómica. Los tejidos de las seis ratas restantes se recolectaron para verificación molecular: tres se utilizaron para inmunotransferencia (Western blotting) y qPCR, y tres se utilizaron exclusivamente para qPCR.
Ensayo inmunoenzimático
Se dejó que las muestras de sangre recolectadas coagularan naturalmente a 4 °C durante 10–20 min. Las muestras se centrifugaron a 1.000 x g durante 15 min a 4 °C para separar el suero, y se recolectaron los sobrenadantes. Cuando no se realizaba el análisis inmediatamente, las muestras de suero se almacenaban a −80 °C hasta su uso. Las concentraciones séricas de péptido natriurético cerebral N-terminal (NT-proBNP) y troponina T cardíaca (cTnT) se cuantificaron utilizando kits ELISA específicos según las instrucciones estándar. Se midieron los valores de absorbancia, y los niveles de biomarcadores se calcularon en función de las curvas patrón.
Tinción histológica e inmunofluorescencia
Los tejidos cardíacos recolectados se enjuagaron en solución de cloruro de sodio al 0,9 % previamente enfriada, seccionados a 5 mm por encima del ápice e incluidos en parafina. Los cortes de tejido se desparafinizaron y rehidrataron. La tinción con HE se realizó aplicando hematoxilina durante 10 min, seguida de contratincción con eosina durante 2,5 min. La tinción de Masson se llevó a cabo aplicando hematoxilina durante 60 s y tricrómica de Masson durante 30–60 s. Los cortes se diferenciaron en ácido fosfórico al 6 %–8 % y se contratinjeron con verde claro durante 5 min. Se cuantificó la fracción de volumen de colágeno (CVF) para evaluar la fibrosis miocárdica.
Los tejidos cerebrales recolectados se fijaron en paraformaldehído al 4%, se deshidrataron en soluciones de sacarosa progresivas y se seccionaron con un grosor de 30 µm. Dado que el paraformaldehído es tóxico y un posible carcinógeno, se manipuló dentro de una campana extractora de gases, utilizando equipo de protección personal adecuado. Las secciones se bloquearon con un tampón que contenía Triton X-100 al 0,5% y albúmina sérica bovina al 3%, y luego se incubaron durante la noche a 4 °C con un anticuerpo primario contra c-Fos. Posteriormente, las secciones se lavaron con solución salina tamponada con fosfato e incubaron con los anticuerpos secundarios correspondientes durante 2 h a temperatura ambiente en la oscuridad. Los cortes se montaron con una solución antifade que contenía 4',6-diamidino-2-fenilindol (DAPI), y se obtuvieron imágenes de las neuronas positivas para c-Fos.
Electrofisiología in vivo
Las ratas fueron anestesiadas con isoflurano al 3 % para la inducción y al 1 % para el mantenimiento, y fijadas en un aparato estereotáxico para el cerebro. Se afeitó y desinfectó el cuero cabelludo. Se realizó una incisión media para exponer el bregma, y se retiró la duramadre. Se perforó un orificio craneal con precisión por encima de la región del NST según las siguientes coordenadas estereotáxicas respecto al bregma: anteroposterior (AP) ±12,6 mm, mediolateral (ML) ±0,9–2,1 mm, y dorsoventral (DV) ±7,6–8,1 mm.
Tras finalizar los registros electrofisiológicos, se verificó la localización estereotáxica exacta de la punta del electrodo. Se aplicó brevemente una corriente continua de 1 mA al electrodo de registro durante 10 s para crear una pequeña lesión electrolítica. Después del experimento, se seccionó el bulbo raquídeo y se confirmó histológicamente que el trayecto de la lesión estaba localizado anatómicamente dentro del NTS.
Se implantó un arreglo de microelectrodos de ocho canales (2 x 4) y se avanzó lentamente hasta la región cerebral objetivo a una velocidad de 5 µm/s utilizando un micromanipulador motorizado. Una vez establecida la actividad neural estable, las grabaciones se adquirieron continuamente durante 400 s. Se utilizó un sistema de adquisición multicanal para capturar descargas de potenciales de acción neuronales (filtradas a 150–8.000 Hz, frecuencia de muestreo de 40 kHz) y potenciales de campo local (LFP; filtrados a 0,7–400 Hz, frecuencia de muestreo de 1 kHz).
Se utilizó un software de clasificación de picos para eliminar señales de interferencia y artefactos típicos de alta amplitud mediante la correlación cruzada de formas de onda. El análisis posterior de las señales neuronales se realizó utilizando un software de análisis neuronal. Las neuronas se clasificaron como activas únicamente cuando exhibían una frecuencia media de disparo espontáneo >2 Hz y mantenían una relación señal-ruido estable >3:1. Se seleccionó el umbral de 2 Hz basándose en las características fisiológicas establecidas de las neuronas del NTS relacionadas con el sistema autónomo; este umbral excluyó eficazmente las células predominantemente silenciosas y las ráfagas rítmicas respiratorias de baja frecuencia, asegurando así que el análisis se centrara en neuronas tónicamente activas que median la regulación cardiovascular basal17,18,19,20. Se generaron la frecuencia media de disparo neuronal y gráficos de raster de descarga de picos según estos criterios. Se construyeron espectrogramas de energía del LFP 2D y topografías de densidad espectral de potencia (PSD) 3D para evaluar las características de energía oscilatoria neural.
Después del registro, se suturó la incisión y se monitoreó a las ratas hasta que se recuperaron completamente de la anestesia. Se administró penicilina mediante inyección intraperitoneal y carprofeno (5 mg/kg, s.c.) se administró diariamente durante tres días consecutivos.
Análisis cuantitativo de proteómica mediante adquisición independiente de datos
Se extrajo la proteína total con un tampón de lisis y se cuantificó mediante el método del ácido bicinconínico. Las proteínas se desnaturalizaron, se sometieron a alquilación reductora y se digirieron con tripsina a 37 °C durante 2 h. Los péptidos resultantes se desalaron utilizando una columna C18, se concentraron a 45 °C y se resuspendieron para el posterior análisis por espectrometría de masas.
Los péptidos se cargaron en una columna de atrapamiento (C18 de 5 µm, 300 µm x 5 mm) equilibrada con 96% del tampón A (ácido fórmico al 0,1% en agua). Los péptidos se separaron a lo largo de una columna analítica de cromatografía líquida de ultra alto rendimiento de alto rendimiento utilizando un gradiente rigurosamente optimizado de tampón A y tampón B (ácido fórmico al 0,1% en acetonitrilo al 80%).
Se realizó espectrometría de masas en modo de adquisición independiente de datos (DIA) en ionización positiva con un voltaje de electroaspersión de 1,9 kV. Se obtuvieron escaneos completos del espectrómetro de masas en un rango de masas de 380 a 980 m/z con una resolución de 240.000, un objetivo de control automático de ganancia (AGC) del 500 % y un tiempo máximo de inyección de 3 ms. Los espectros MS/MS se adquirieron con una resolución de 80.000 (objetivo de AGC: 500 %; tiempo máximo de inyección: 3 ms; amplitud del lente de RF: 40 %). Los iones precursores se fragmentaron mediante disociación por colisión de alta energía, utilizando una ventana de aislamiento de 2 Th y una energía de colisión normalizada del 25 %, bajo un tiempo de ciclo definido de 0,6 s.
Los datos brutos de espectrometría de masas se procesaron utilizando el software DIA-NN. Se generó una biblioteca espectral mediante el algoritmo interno de aprendizaje profundo, y se aplicó la función de coincidencia entre corridas para la cuantificación frente a la base de datos del proteoma de referencia de Rattus norvegicus, con digestión por tripsina y hasta 2 cortes perdidos. La matriz final de proteínas cuantitativas se filtró utilizando un umbral estricto de tasa de descubrimiento falso del 1 % tanto a nivel de ión precursor como a nivel de proteína.
Análisis bioinformático y minería de genes centrales
Los análisis de bioinformática y las visualizaciones de datos se realizaron principalmente utilizando el entorno de programación R junto con software especializado para la visualización de redes. Para garantizar la transparencia y la reproducibilidad metodológica, todos los scripts personalizados en R utilizados durante estos procesos analíticos se incluyeron en el Archivo Suplementario 1. Se realizó el control de calidad inicial de los datos y la evaluación de las distribuciones generales mediante el paquete ropls. Se compiló un resumen estadístico de la identificación/cuantificación de proteínas; se llevó a cabo un análisis de discriminación por mínimos cuadrados parciales (PLS-DA) entre los tres grupos; se realizó un análisis de discriminación por mínimos cuadrados parciales ortogonales (OPLS-DA) para comparaciones por pares; y se generaron mapas de calor de correlación entre muestras utilizando el paquete pheatmap.
Las proteínas expresadas diferencialmente en el núcleo se seleccionaron utilizando umbrales que incluían un valor de p <0.05, un cambio de régimen >1.2 y una puntuación de importancia variable en la proyección >1.0. Los gráficos de doble volcán se generaron utilizando el paquete ggplot2, las intersecciones se identificaron mediante el paquete ggVennDiagram y los mapas de calor de agrupamiento jerárquico se trazaron usando el paquete pheatmap para visualizar las proteínas intersecadas. Se realizaron análisis de enriquecimiento de Gene Ontology (GO) y del Kyoto Encyclopedia of Genes and Genomes (KEGG) por separado para las proteínas reguladas positivamente y negativamente, utilizando el paquete enrichR basado en la base de datos Enrichr.
Todas las proteínas expresadas diferencialmente se asignaron a la base de datos STRING con un umbral de confianza de 0,4 para construir la red de interacción proteína-proteína. Los datos de interacción se importaron al software de visualización de redes. Se aplicó el complemento cytoHubba para calcular las puntuaciones topológicas, y se extrajeron los 18 principales genes con mayor puntuación según la intensidad del color del nodo. Los 18 candidatos centrales fueron sometidos a un análisis de enriquecimiento de vías, y se seleccionaron las 10 proteínas más destacadas para evaluar sus niveles de expresión en tejidos humanos mediante la base de datos Genotype-Tissue Expression (GTEx). El gen central más importante se identificó según los niveles de expresión en el cerebro humano y las puntuaciones topológicas de la red. Se utilizó el Cistrome Data Browser para predecir los factores de transcripción y modificaciones de histonas asociados al gen central específico.
Transferencia Western y reacción en cadena de la polimerasa cuantitativa
Se extrajo la proteína total de los tejidos del SNT utilizando una mezcla de lisado que contenía tampón de lisado con fluoruro de fenilmetilsulfonilo, PMSF e inhibidores de fosfatasa. Las muestras se homogenizaron usando un disruptor celular ultrasónico y se centrifugaron a 13.800 x g durante 20 min a 4 °C para recolectar los sobrenadantes. Las concentraciones de proteína se determinaron utilizando el kit de ensayo de proteína con ácido bicinconínico. Un total de 20 µg de proteína de cada muestra se separaron mediante electroforesis en gel de poliacrilamida al 10 % con dodecilsulfato de sodio y posteriormente se transfirieron a membranas de fluoruro de polivinilideno.
Las membranas se bloquearon con leche descremada al 5 % en Tween de salina tamponada con Tris (TBST) durante 1 h a temperatura ambiente e incubarón durante la noche a 4 °C con anticuerpos primarios específicos dirigidos contra Yin Yang 1 (YY1) y β-actina como proteína de referencia. Las membranas se lavaron con TBST durante 5 min tres veces e incubarón con un anticuerpo secundario conjugado con peroxidasa de rábano picante durante 1,5 h a temperatura ambiente. Las bandas diana se visualizaron utilizando un kit de quimioluminiscencia mejorada, se capturaron mediante un sistema de imagen y se cuantificaron en relación con β-actina.
Se extrajo ARN total de tejidos de NTS utilizando un reactivo de extracción de ARN. Se midió la concentración y pureza del ARN mediante un espectrofotómetro, y se sintetizó el ADN complementario de cadena simple utilizando un kit de transcripción inversa. Se realizó la reacción en cadena de la polimerasa cuantitativa en tiempo real (PCR) utilizando un kit de PCR con SYBR Green en un sistema de PCR en tiempo real. Las secuencias específicas de cebadores utilizadas para la amplificación, junto con sus respectivos números de acceso a la Secuencia de Referencia del NCBI, fueron las siguientes: YY1 (NM_001002271.1), sentido 5'-AGCGTTCGTTGAGAGCTCAA-3' y antisentido 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), sentido 5'-TGTGATGACTGTGACCGTGG-3' y antisentido 5'-TCCAAACACAGGTGGCAACT-3'; DMAP1 (NM_001007705.1), sentido 5'-GGTGTGACATTACGGAGCCA-3' y antisentido 5'-TCCAGCAGCATCTGTTCCAG-3'; y gliceraldehído-3-fosfato deshidrogenasa (GAPDH) (NM_017008.4), sentido 5'-GGCACAGTCAAGGCTGAGAATG-3' y antisentido 5'-ATGGTGGTGAAGACGCCAGTA-3'. Los niveles relativos de expresión de ARN mensajero se calcularon mediante el método 2-ΔΔCt y se normalizaron respecto al gen de referencia interno GAPDH.
Análisis estadístico
Todos los datos experimentales se analizaron utilizando software estadístico y se presentaron como la media ± desviación estándar (SD). La normalidad se evaluó mediante la prueba de Shapiro-Wilk, y la homogeneidad de la varianza se analizó mediante la prueba de Brown-Forsythe.
Para comparaciones entre dos grupos independientes, se utilizó la prueba t de Student o la prueba t pareada para datos que cumplían con los criterios de normalidad. Los datos que no satisfacían los supuestos de normalidad se analizaron mediante la prueba U de Mann-Whitney o la prueba de rangos con signo de Wilcoxon. Para comparaciones entre múltiples grupos, se empleó el análisis de varianza de un factor, seguido de la prueba post hoc de Holm-Sidak, cuando se cumplían los supuestos de normalidad y homogeneidad. Se utilizó la prueba H de Kruskal-Wallis, seguida de la prueba post hoc de Dunn, cuando estos supuestos no se cumplían.
Las correlaciones se evaluaron utilizando el coeficiente de correlación de Pearson calculado con el paquete Hmisc en R. Los valores p correspondientes se ajustaron mediante el método de tasa de descubrimientos falsos de Benjamini-Hochberg a través del paquete stats para controlar el aumento de la tasa de error tipo I debido a las pruebas múltiples. La significancia estadística general se estableció en p <0.05.
Resultados
La electroacupuntura mejora la función cardíaca y atenúa la lesión miocárdica en ratas con insuficiencia cardíaca crónica
Para evaluar los efectos de la EA sobre la IC, se estableció el modelo de rata mediante ligadura de la arteria coronaria descendente anterior (LAD), seguida de intervenciones específicas de EA o EA simulada. Se realizaron evaluaciones sistemáticas, incluyendo ecocardiografía, ensayos bioquímicos y tinción histológica (Figura 2A). Funcionalmente, el grupo con IC presentó dilatación ventricular y deterioro de la contractilidad. El tratamiento con EA mejoró las reducciones en la FEVI y en la FSVI observadas en las ratas con IC, mientras que el grupo con EA simulada mostró niveles de función cardíaca comparables a los del grupo con IC (Figura 2B y Figura 2C).
Además, la AE redujo los niveles séricos de NT-proBNP y cTnT, lo que indica una disminución de la sobrecarga cardíaca y una atenuación de la lesión miocárdica. En contraste, el grupo de AE simulada mostró parámetros bioquímicos similares a los del grupo con ICC (Figura 2E,F). El análisis histológico mostró que el grupo con ICC presentaba daño estructural miocárdico y fibrosis. El tratamiento con AE mejoró la arquitectura miocárdica y redujo la FVC, mientras que el grupo de AE simulada mantuvo cambios patológicos y niveles de FVC similares a los del grupo con ICC (Figura 2D). En general, la AE ejerció efectos cardioprotectores frente a la ICC, mientras que la intervención con AE simulada no produjo resultados terapéuticos similares.
La electroacupuntura activa neuronas en el núcleo del tracto solitario de ratas con insuficiencia cardíaca crónica
Para determinar si el SNT media la respuesta central al tratamiento con AE, se evaluó la activación neuronal mediante tinción para c-Fos, un marcador de excitación neural. La imagen de inmunofluorescencia (Figura 3A) y el recuento cuantitativo de células (Figura 3B) revelaron que el número de neuronas positivas para c-Fos en el SNT fue menor en el grupo ICC en comparación con el grupo Falso. Sin embargo, el tratamiento con AE aumentó la expresión de c-Fos hasta niveles comparables a la línea base del grupo Falso. En paralelo con los resultados funcionales periféricos, el grupo Falso AE mostró niveles de expresión de c-Fos similares a los del grupo ICC.
Para evaluar el estado funcional de estas neuronas del SNT, se registraron señales electrofisiológicas in vivo. Los trazos del disparo de potenciales de acción (Figura 3C) y la frecuencia media cuantitativa de descarga (Figura 3D) coincidieron con los hallazgos histológicos. La frecuencia de disparo espontáneo de las neuronas del SNT se redujo bajo condiciones de IC. En contraste, la intervención con AE aumentó la frecuencia de disparo neuronal, mientras que el procedimiento de AE simulado no produjo cambios electrofisiológicos de este tipo.
Este patrón de activación neuronal fue respaldado por el análisis del potencial de campo local. Como se muestra en los espectrogramas de color de LFP en 2D y en los mapas tridimensionales de densidad espectral de potencia (Figura 3E), la energía oscilatoria neuronal dentro del NST se atenuó durante el estado de IC. Tras el tratamiento con AE, se observó un aumento en la intensidad de potencia a lo largo del espectro de frecuencia neuronal, lo que indica una activación de la red, la cual estuvo ausente en el grupo control de AE simulada.
Para examinar la relevancia fisiológica de esta activación central, se realizó un análisis de correlación de Pearson, integrando métricas cardíacas periféricas con la actividad neuronal central en el núcleo del tracto solitario (Figura 3F). El análisis demostró que la frecuencia media de disparo y la expresión de c-Fos en el NTS se correlacionaron positivamente con la FEVI. Por el contrario, estos indicadores de actividad neural central mostraron una correlación negativa con el marcador sérico de insuficiencia cardíaca NT-proBNP. Estas correlaciones indican que la activación neural del NTS modulada por la EA está relacionada con su eficacia cardioprotectora periférica.
La electroacupuntura altera el perfil proteómico global en el núcleo del tracto solitario
Debido a la falta de eficacia terapéutica observada en el grupo de EA simulada durante las evaluaciones funcionales previas, la fase de proteómica incluyó únicamente los grupos de simulación (Sham), IC y EA. Antes de la recolección de tejidos, 12 ratas por grupo se sometieron a evaluación ecocardiográfica para valorar los efectos terapéuticos de la EA, y estos resultados se presentan en la Figura suplementaria 1A. Tras esta evaluación, 6 réplicas biológicas de cada grupo se sometieron a un análisis proteómico cuantitativo basado en espectrometría de masas.
Se realizaron análisis multivariantes y de control de calidad para evaluar la fiabilidad y la distribución general de los datos proteómicos. El número total de proteínas identificadas fue de 5.914 en el grupo Sham, 5.980 en el grupo CHF y 5.836 en el grupo EA, lo que indica una detección de proteínas comparable entre los tres grupos experimentales (Figura 4A y Tabla Suplementaria 1). El análisis de discriminación por mínimos cuadrados parciales mostró una clara separación entre los grupos Sham, CHF y EA, lo que indica perfiles proteómicos globales distintos asociados con el estado de la enfermedad y la intervención EA (Figura 4B).
El análisis discriminante de mínimos cuadrados parciales por pares ortogonales demostró además la separación entre los grupos Sham y CHF (Figura 4C) y entre los grupos CHF y EA (Figura 4D). Las pruebas de permutación correspondientes respaldaron la fiabilidad de los modelos respectivos. Además, el mapa de calor de correlación de Pearson mostró altas correlaciones dentro de los grupos y patrones intergrupales distintos entre las muestras proteómicas, lo que apoya la reproducibilidad de los réplicas biológicas (Figura 4E). En conjunto, estos análisis de control de calidad y multivariantes indicaron que el conjunto de datos proteómicos era suficientemente robusto para la identificación posterior y el análisis bioinformático de las proteínas diferencialmente expresadas.
La electroacupuntura modula las proteínas expresadas diferencialmente principales y las vías de señalización en el núcleo del tracto solitario
Para explorar los objetivos moleculares de la AE, se analizaron las alteraciones proteicas. Los gráficos de volcanes mostraron la distribución de proteínas reguladas al alza y reguladas a la baja en las comparaciones entre Falso y ICC, y entre ICC y AE (Figura 5A, Tabla Suplementaria 2 y Tabla Suplementaria 3). Para identificar los objetivos terapéuticos, se realizó un análisis de intersección. Como se ilustra en los diagramas de Venn, se identificaron 58 proteínas reguladas al alza en el grupo ICC pero reguladas a la baja tras el tratamiento con AE, junto con 27 proteínas reguladas a la baja en el grupo ICC y reguladas al alza mediante la intervención con AE (Figura 5B y Tabla Suplementaria 4). Este cribado arrojó un total de 85 proteínas expresadas diferencialmente clave. El mapa de calor de agrupamiento jerárquico demostró que la intervención con AE moduló los patrones de expresión anormal de estas 85 proteínas, desplazando sus perfiles hacia la línea base del grupo Falso (Figura 5C).
Para determinar las funciones biológicas de estos objetivos principales, se realizaron análisis de enriquecimiento GO y KEGG por separado para los dos subconjuntos distintos de proteínas. Para el subconjunto de 58 proteínas reguladas a la baja por EA, el gráfico de burbujas GO mostró un enriquecimiento significativo en procesos biológicos, incluyendo la organización de la matriz extracelular y la organización de estructuras extracelulares, junto con componentes celulares como la estructura encapsulante externa y el trímero de colágeno, y funciones moleculares, incluyendo la unión al colágeno y la unión al receptor de glutamato (Figura 5D y Tabla Suplementaria 5). El análisis subsiguiente de vías KEGG, visualizado mediante diagramas de acordes y de Sankey, reveló que estas 58 proteínas participan en cascadas que incluyen la digestión y absorción de proteínas, el citoesqueleto en células musculares y la vía de señalización de TGF-β (Figura 5E y Tabla Suplementaria 6). Estas visualizaciones topológicas destacaron proteínas específicas, incluyendo COL3A1, COL14A1, MYH11, DCN y DPF2, como nodos prominentes que conectan múltiples vías patológicas.
Por el contrario, se realizó una anotación funcional para el subconjunto de 27 proteínas reguladas positivamente por la intervención con EA. El análisis de enriquecimiento de GO indicó su participación en procesos biológicos como la regulación del crecimiento celular y la regulación positiva de la elongación de la transcripción templada por ADN, así como funciones moleculares que incluyen unión a proteínas dependiente de calcio y unión a tetrapirrol (Figura 5F y Tabla Suplementaria 7). Los diagramas circulares y de Sankey de KEGG correspondientes asignaron estas proteínas a vías críticas, incluyendo el remodelado de cromatina dependiente de ATP y el complejo represor policombo (Figura 5G y Tabla Suplementaria 8). Destacablemente, este mapeo de red aisló proteínas clave como YY1, E2F2 y ENTPD5, conectando estas redes de señalización centrales. Esta estratificación funcional integral sentó las bases estructurales para la validación posterior de los objetivos principales.
La topología de la red y el perfilado de expresión identifican a YY1 como un objetivo candidato asociado con los efectos de la intervención mediante electroacupuntura
Para determinar el gen central entre las 85 proteínas expresadas diferencialmente, se construyó una red de interacción proteína-proteína. El análisis topológico identificó 18 nodos con altas puntuaciones de conectividad (Figura 6A y Tabla Suplementaria 9). Posteriormente, se realizó un análisis de vías KEGG específicamente para estas 18 proteínas centrales. Los diagramas de acordes y de Sankey correspondientes representaron las relaciones complejas entre estos centros y las cascadas de señalización enriquecidas, incluyendo el remodelado de la cromatina dependiente de ATP, el complejo represor policombo y la vía de señalización de TGF-β (Figura 6A y Tabla Suplementaria 10). Basándose en este perfil funcional, se seleccionaron las 10 proteínas más enriquecidas para un cribado adicional. Dado que el objetivo terapéutico de EA se encuentra en el sistema nervioso central, estos 10 candidatos se evaluaron utilizando la base de datos de expresión tisular humana GTEx (Figura 6B y Figura Suplementaria 1B–J). Los resultados indicaron que solo YY1 (Figura 6B), DMAP1 (Figura Suplementaria 1C) y DPF2 (Figura Suplementaria 1D) se expresaban en tejidos cerebrales.
Para aislar el candidato objetivo altamente sensible de la EA, se realizaron experimentos moleculares in vivo utilizando tejidos del SNT. Se empleó PCR cuantitativa en tiempo real para evaluar la respuesta transcripcional de los 3 candidatos enriquecidos en el cerebro. La expresión de mRNA de YY1 se redujo en condiciones de ICC y aumentó tras el tratamiento con EA, mientras que los niveles de expresión de mRNA de DPF2 y DMAP1 no mostraron cambios estadísticamente significativos entre los grupos experimentales (Figura 6C). Este cribado transcripcional excluyó a DPF2 y DMAP1 de futuras validaciones y respaldó a YY1 como el candidato sensible principal. Un análisis posterior mediante inmunotransferencia indicó que los niveles de la proteína YY1 se redujeron en el grupo de ICC en comparación con la línea base Sham, mientras que la intervención con EA contrarrestó esta tendencia, aumentando la expresión de la proteína YY1 (Figura 6D y Figura 6E). Estos resultados experimentales indican que la EA regula al alza la expresión de YY1 dentro del SNT.
Para investigar los mecanismos reguladores upstream que controlan la expresión de YY1, se analizaron sus modificaciones histonas relacionadas y los factores de transcripción. Es importante señalar que estos hallazgos se basan exclusivamente en predicciones bioinformáticas computacionales derivadas del Cistrome Data Browser y no representan una validación experimental directa mediante ChIP-seq. La predicción epigenética destacó modificaciones en las histonas, incluyendo H3K27ac, H3K27me3 y H3K4me3, con altas puntuaciones de potencial regulador para el locus YY1 (Figura 6F). Al mismo tiempo, la puntuación de potencial regulador identificó factores de transcripción como CDK9, PRDM1 y ELL2 como reguladores upstream de YY1 (Figura 6G). Estas predicciones bioinformáticas describen las posibles redes epigenéticas y transcripcionales que controlan la expresión de YY1 en el NTS.
En resumen, los datos presentados demuestran que la intervención con EA mejora eficazmente la función cardíaca sistémica y atenúa la lesión miocárdica en ratas con ICC. Estos efectos cardioprotectores periféricos van acompañados centralmente por la restauración de la actividad de disparo neuronal y de la energía oscilatoria neural en el NST. Además, el cribado proteómico cuantitativo identificó 85 proteínas diferencialmente expresadas clave y destacó al factor de transcripción YY1 como un candidato objetivo altamente sensible. En conjunto, estos hallazgos sugieren que la eficacia terapéutica de la EA frente a la ICC está estrechamente asociada con la restauración de la función neural del NST y que la sobreexpresión de YY1 podría estar involucrada en este proceso neurobiológico central.
Disponibilidad de datos
Todos los datos generados y analizados para respaldar los hallazgos de este estudio se incluyen dentro del manuscrito y su Archivo Suplementario 1. Para cumplir con el requisito de accesibilidad pública de los datos, todos los datos brutos disponibles que sustentan esta investigación se han depositado en el repositorio público Zenodo y son libremente accesibles a través del siguiente enlace: https://doi.org/10.5281/zenodo.22030720. Datos adicionales de apoyo están disponibles bajo solicitud razonable a los autores correspondientes.
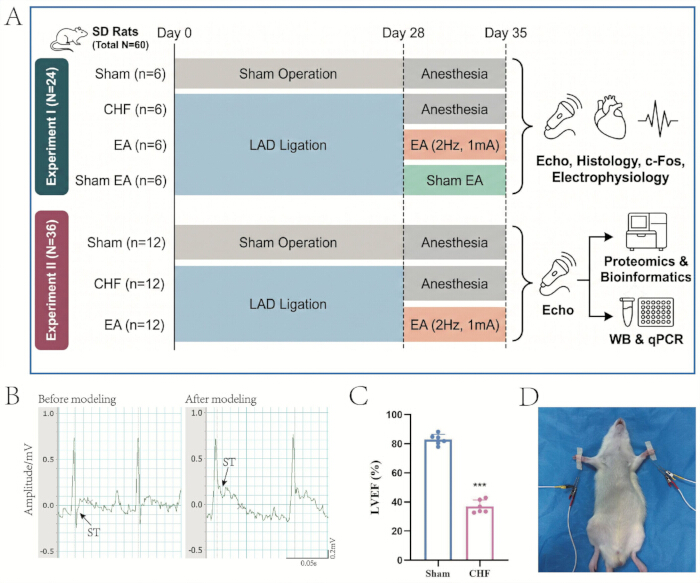
Figura 1: Diseño experimental, establecimiento del modelo de rata con insuficiencia cardíaca crónica e intervención con electroacupuntura. (A) Diagrama de flujo experimental general, que incluye la cronología y la asignación de grupos para las dos series experimentales independientes. (B) Registros representativos del electrocardiograma antes y después de la ligadura de la arteria coronaria descendente anterior (LAD), con flechas que indican el ascenso del segmento ST que confirma la isquemia miocárdica. (C) Análisis cuantitativo de la FEVI 4 semanas después de la cirugía para confirmar un modelado exitoso (réplicas biológicas n = 6, media ± DE). ***p < 0,001 frente al grupo Sham. (D) Intervención con EA en los puntos de acupuntura HT7 bilaterales. Haga clic aquí para ver una versión más grande de esta figura.
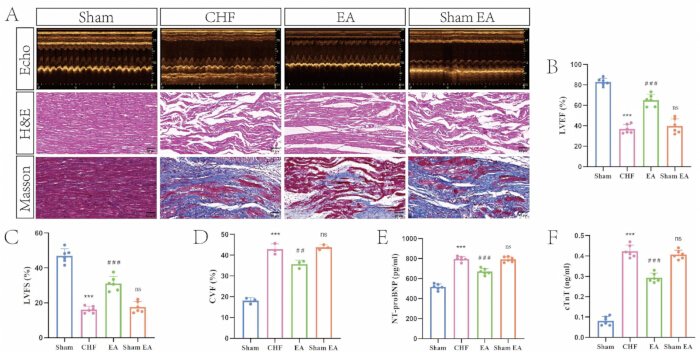
Figura 2: La electroacupuntura mejora la función cardíaca y atenúa la lesión miocárdica en ratas con insuficiencia cardíaca crónica. (A) Ecocardiogramas representativos en modo M junto con imágenes de tinción con hematoxilina y eosina y tricrómica de Masson de tejidos miocárdicos en los 4 grupos experimentales (barra de escala = 50 µm). (B) Análisis cuantitativo del FEVI entre los grupos (réplicas biológicas n = 6, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. (C) Análisis cuantitativo del FSVC entre los grupos (réplicas biológicas n = 6, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. (D) Análisis cuantitativo del CVF entre los grupos (réplicas biológicas n = 3, media ± DE). ***p < 0,001 frente al grupo Sham; ##p < 0,01 frente al grupo CHF; ns, no significativo frente al grupo CHF. (E) Análisis cuantitativo de los niveles séricos de NT-proBNP entre los grupos (réplicas biológicas n = 6, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. (F) Análisis cuantitativo de los niveles séricos de cTnT entre los grupos (réplicas biológicas n = 6, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. Haga clic aquí para ver una versión más grande de esta figura.
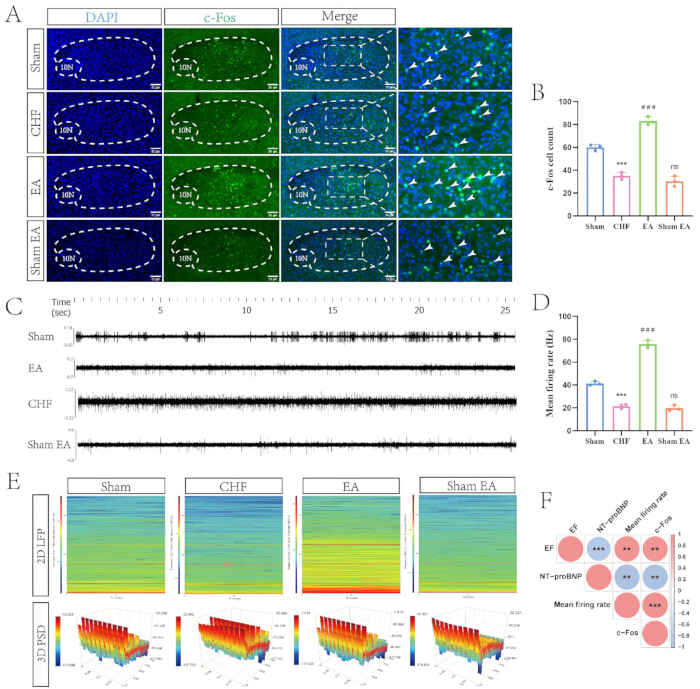
Figura 3: La electroacupuntura restaura la actividad neuronal en el núcleo del tracto solitario en ratas con insuficiencia cardíaca crónica. (A) Imágenes representativas de inmunofluorescencia de la expresión de c-Fos en el NTS entre los grupos. Los núcleos se contratinjan con DAPI, y las células positivas para c-Fos se tiñen de verde. Las líneas discontinuas delimitan la región anatómica, y las flechas blancas indican neuronas representativas positivas para c-Fos (barra de escala = 30 µm). (B) Análisis cuantitativo del recuento de células positivas para c-Fos entre los grupos (réplicas biológicas n = 3, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. (C) Registros representativos de descargas de potenciales de acción mediante electrofisiología in vivo en el NTS entre los grupos. (D) Análisis cuantitativo de la frecuencia media de disparo neuronal entre los grupos (réplicas biológicas n = 3, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. (E) Espectrogramas locales representativos de potenciales de campo en 2D y topografías tridimensionales de densidad espectral de potencia que ilustran la energía oscilatoria neural dentro del NTS. (F) Matriz de correlación que evalúa las relaciones entre los fenotipos cardiovasculares periféricos y los parámetros de actividad neural central. Los círculos rojos y azules indican correlaciones positivas y negativas, respectivamente. **p < 0,01; ***p < 0,001. Haga clic aquí para ver una versión más grande de esta figura.
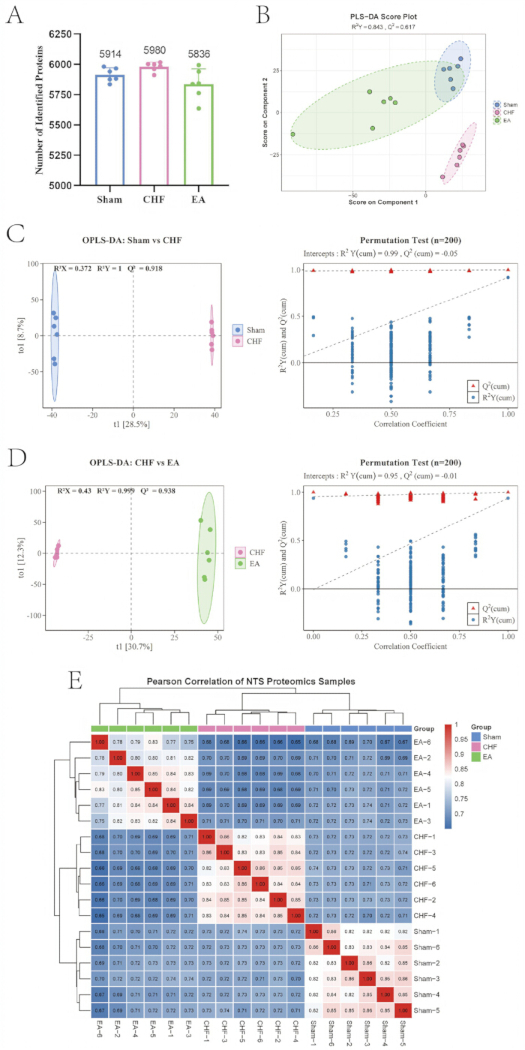
Figura 4: Control de calidad y evaluación estadística multivariante de los perfiles proteómicos en el núcleo del tracto solitario. (A) Vista cuantitativa general de las proteínas identificadas en los 3 grupos experimentales (réplicas biológicas n = 6). (B) Gráfico de puntuaciones de análisis discriminante de mínimos cuadrados parciales que ilustra la distribución espacial general y la separación entre los grupos. (C) Gráfico de puntuaciones de análisis discriminante de mínimos cuadrados parciales ortogonales y la prueba de permutación correspondiente que valida la fiabilidad del modelo para la comparación entre Sham y CHF (200 permutaciones). (D) Gráfico de puntuaciones de análisis discriminante de mínimos cuadrados parciales ortogonales y la prueba de permutación correspondiente que valida la fiabilidad del modelo para la comparación entre CHF y EA (200 permutaciones). (E) Mapa de calor de agrupamiento jerárquico de los coeficientes de correlación de Pearson que evalúa la reproducibilidad intra-grupo y la varianza inter-grupos en todas las muestras proteómicas. Haga clic aquí para ver una versión más grande de esta figura.
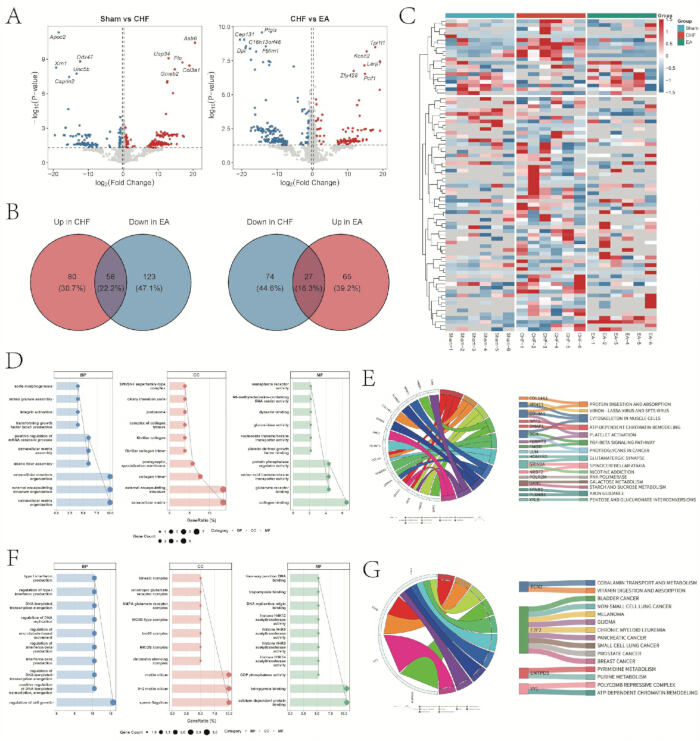
Figura 5: Identificación y análisis de enriquecimiento funcional de las proteínas centrales diferencialmente expresadas moduladas por electroacupuntura en el núcleo del tracto solitario. (A) Gráficos de volcan que ilustran la distribución de proteínas reguladas al alza y reguladas a la baja en las comparaciones de Falso frente a ICC y ICC frente a EA. (B) Diagramas de Venn que representan el análisis de intersección para identificar las proteínas centrales reguladas a la baja y reguladas al alza tras la intervención con EA. (C) Mapa de calor de agrupamiento jerárquico de los perfiles de expresión de las proteínas centrales diferencialmente expresadas. (D) Gráficos de burbujas de GO que detallan los procesos biológicos, componentes celulares y funciones moleculares enriquecidos para el subconjunto de proteínas reguladas a la baja. (E) Diagramas de acordes y de Sankey de KEGG que representan las vías de señalización enriquecidas por las proteínas reguladas a la baja. (F) Gráficos de burbujas de GO que detallan los procesos biológicos, componentes celulares y funciones moleculares enriquecidos para el subconjunto de proteínas reguladas al alza. (G) Diagramas de acordes y de Sankey de KEGG que representan las vías de señalización enriquecidas por las proteínas reguladas al alza. Haga clic aquí para ver una versión más grande de esta figura.
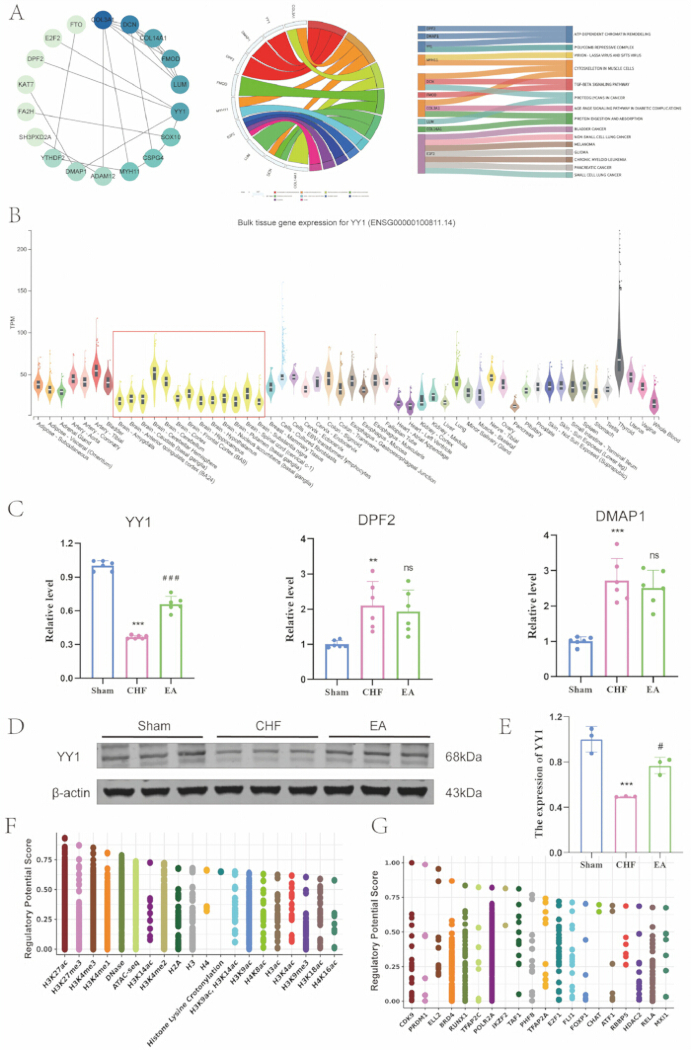
Figura 6: La topología de la red, el perfil de expresión tisular y la validación molecular identifican a YY1 como un objetivo candidato asociado con la electroacupuntura. (A) Red de interacción proteína-proteína, diagrama de acordes y diagrama de Sankey de las proteínas centrales identificadas. (B) Perfil de expresión tisular humana de YY1 derivado de la base de datos GTEx, donde el recuadro rojo resalta los tejidos cerebrales. (C) Análisis cuantitativo de la expresión de ARNm de YY1, DPF2 y DMAP1 en el NTS entre los grupos (réplicas biológicas n = 6, media ± DE). **p < 0,01, ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF; ns, no significativo frente al grupo CHF. (D) Bandas representativas de inmunotransferencia de Western de YY1 y β-actina en el NTS entre los grupos. (E) Análisis cuantitativo de la expresión proteica de YY1 entre los grupos (réplicas biológicas n = 3, media ± DE). ***p < 0,001 frente al grupo Sham; #p < 0,05 frente al grupo CHF. (F) Predicción bioinformática de modificaciones epigenéticas de histonas que regulan el locus de YY1 basada en puntajes de potencial regulador. (G) Predicción bioinformática de factores de transcripción upstream que regulan el locus de YY1 basada en puntajes de potencial regulador. Haga clic aquí para ver una versión más grande de esta figura.
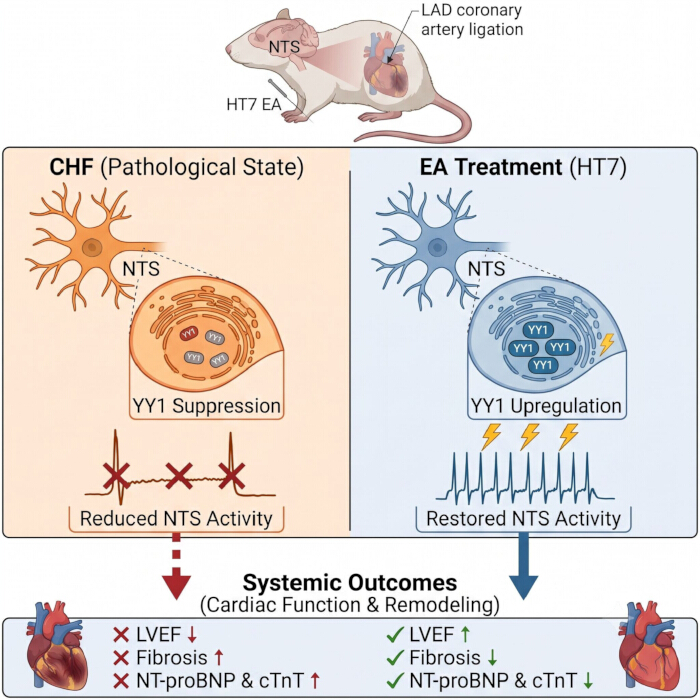
Figura 7: Modelo propuesto de la asociación entre la electroacupuntura en HT7, la sobreexpresión de YY1, la recuperación de la actividad neuronal en el núcleo del tracto solitario y la mejora de la insuficiencia cardíaca crónica. (Izquierda) Estado patológico: En el modelo de ICC inducido por ligadura de la arteria coronaria descendente anterior (LAD), la actividad neuronal dentro del NTS se reduce, acompañada por la supresión del factor de transcripción YY1. Esta inhibición neural central se asocia con el remodelado cardíaco patológico, manifestado como disminución de la FEVI, aumento de la fibrosis miocárdica y elevación de los marcadores séricos de insuficiencia cardíaca. (Derecha) Tratamiento con EA: La intervención con EA en el punto de acupuntura HT7 aumenta la expresión de YY1 en el NTS y restaura la actividad de disparo neuronal. Esta neuromodulación central ejerce efectos cardioprotectores, atenuando el remodelado patológico y mejorando la función cardíaca sistémica. Haga clic aquí para ver una versión más grande de esta figura.
Figura suplementaria 1: Evaluación de la función cardíaca de la cohorte proteómica y perfiles de expresión tisular humana de los genes centrales candidatos. (A) Análisis cuantitativo del FEVI y del FSIV en los diferentes grupos (réplicas biológicas n = 12, media ± DE). ***p < 0,001 frente al grupo Sham; ###p < 0,001 frente al grupo CHF. (B-J) Perfiles de expresión tisular humana de los genes centrales candidatos derivados de la base de datos GTEx, incluyendo COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH11 (F), E2F2 (G), LUM (H), DCN (I) y COL14A1 (J).Haga clic aquí para descargar este archivo.
Tabla suplementaria 1: Matriz completa de identificación y cuantificación del proteoma global en el núcleo del tracto solitario. Esta tabla presenta el conjunto completo de datos de proteómica cuantitativa en todas las cohortes experimentales. Las columnas importantes incluyen ID de proteína (número de acceso de UniProt), Gen (símbolo del gen), Primera.descripción.de.proteína (anotación funcional) y los valores de intensidad proteica normalizados para cada réplica biológica en los grupos Sham, IC y AE (n = 6 por grupo).Haga clic aquí para descargar este archivo.
Tabla suplementaria 2: Puntuaciones de importancia variable en la proyección OPLS-DA para proteínas en la comparación entre Sham y CHF. Esta tabla enumera las características que distinguen los grupos Sham y CHF según el modelo OPLS-DA. Las columnas principales incluyen característica (que representa el identificador de la proteína/gen específica) y el valor VIP (Importancia Variable en la Proyección), que indica la contribución de cada característica a la separación entre grupos (umbral VIP > 1,0).Haga clic aquí para descargar este archivo.
Tabla suplementaria 3: Puntuaciones de importancia de variables en proyección (VIP) del OPLS-DA para proteínas en la comparación entre CHF y EA. Esta tabla enumera las características que diferencian los grupos CHF y EA según el modelo OPLS-DA. De forma similar a la Tabla S2, incluye la columna de características y el valor VIP correspondiente, resaltando las características más sensibles a la intervención EA.Haga clic aquí para descargar este archivo.
Tabla suplementaria 4: Lista detallada de las 85 proteínas centrales con expresión diferencial moduladas por electroacupuntura. Esta tabla proporciona la intersección de proteínas que se alteraron significativamente por la ICC y luego se invirtieron mediante la intervención de EA. Las columnas importantes incluyen Protein_ID, Gene, log2FC (cambio de la razón log2 que indica variación en la expresión), P_value para la significancia estadística (umbral p < 0,05) y VIP_value que evalúa la contribución al modelo.Haga clic aquí para descargar este archivo.
Tabla suplementaria 5: Análisis de enriquecimiento de la ontología genética del subconjunto de proteínas centrales reguladas a la baja. Esta tabla muestra la anotación funcional de la ontología genética (GO) para las 58 proteínas reguladas a la baja por EA. Las columnas importantes incluyen ONTOLOGÍA (categorizada en Proceso Biológico [BP], Componente Celular [CC] y Función Molecular [MF]), Descripción funcional, p.adjust (valor p ajustado para pruebas múltiples) y geneID, que corresponde a los genes específicos enriquecidos en cada término.Haga clic aquí para descargar este archivo.
Tabla suplementaria 6: Análisis de enriquecimiento de vías del Kyoto Encyclopedia of Genes and Genomes para el subconjunto de proteínas centrales reguladas a la baja. Esta tabla muestra las cascadas de señalización enriquecidas para las 58 proteínas reguladas a la baja. Las columnas clave incluyen el Término de la vía, el valor de p ajustado que indica la significancia estadística del enriquecimiento y los genes específicos que participan en cada vía.Haga clic aquí para descargar este archivo.
Tabla suplementaria 7: Análisis de enriquecimiento de la Ontología Genética del subconjunto de proteínas centrales reguladas positivamente. Esta tabla muestra la anotación funcional de la Ontología Genética (GO) para las 27 proteínas reguladas positivamente por EA. El formato y las definiciones de las columnas (ONTOLOGÍA [BP, CC, MF], Descripción, p.adjust, geneID) son idénticos a los detallados en la Tabla S5.Haga clic aquí para descargar este archivo.
Tabla suplementaria 8: Análisis de enriquecimiento de vías del Kyoto Encyclopedia of Genes and Genomes para el subconjunto de proteínas centrales reguladas hacia arriba. Esta tabla muestra las cascadas de señalización enriquecidas para las 27 proteínas reguladas hacia arriba. El formato y las definiciones de las columnas (Término, valor p ajustado, Genes) son idénticos a los detallados en la Tabla S6.Haga clic aquí para descargar este archivo.
Tabla suplementaria 9: Puntuaciones de conectividad topológica de las 18 proteínas centrales derivadas de la red de interacción proteína-proteína. Esta tabla resume los parámetros topológicos de red utilizados para identificar los genes centrales principales. Las columnas clave incluyen el nombre del gen y métricas centrales de la red, como Grado, Centralidad de Intermediación y Centralidad de Cercanía, que cuantifican la importancia relativa y la conectividad de cada nodo dentro de la red biológica.Haga clic aquí para descargar este archivo.
Tabla suplementaria 10: Análisis de enriquecimiento de vías del Kyoto Encyclopedia of Genes and Genomes de las 18 proteínas centrales de la red. Esta tabla presenta las vías de señalización específicas enriquecidas exclusivamente por las 18 proteínas centrales identificadas. Las columnas clave incluyen el Término de la vía, el valor p ajustado para la significancia y los respectivos Genes responsables del enriquecimiento funcional.Haga clic aquí para descargar este archivo.
Archivo suplementario 1: Secuencias de comandos de R utilizadas para el análisis y visualización de datos e imágenes no recortadas de inmunotransferencias tipo Western. El archivo suplementario contiene las secuencias de comandos de R utilizadas para el análisis de correlación de Pearson, la generación de gráficos de doble volcán e identificación de proteínas revertidas por EA, el análisis de enriquecimiento de Ontología Genética (GO), la generación de mapas de calor mediante agrupamiento jerárquico, la visualización del enriquecimiento en la Enciclopedia de Kioto de Genes y Genomas (KEGG), el análisis discriminante ortogonal de mínimos cuadrados parciales (OPLS-DA) y pruebas de permutación, el análisis discriminante de mínimos cuadrados parciales (PLS-DA), la generación de mapas de calor de correlación de muestras proteómicas y el análisis de diagramas de Venn.Haga clic aquí para descargar este archivo.
Discusión
The present study investigated the central mechanisms of EA at the HT7 acupoint in the rat model of CHF. Physiological and histological data indicated that EA improved LVEF and attenuated myocardial fibrosis. In parallel with these peripheral changes, in vivo electrophysiological recordings and neural mapping supported that EA restored neuronal firing rates within the NTS. Through mass spectrometry-based proteomics, the molecular landscape of the NTS was mapped, and 85 differentially expressed proteins whose abnormal expression patterns were modulated by the intervention were identified. Subsequent topological analysis and tissue expression profiling isolated the transcription factor YY1 as a candidate biological target. Molecular validation indicated that EA upregulates YY1 expression. These findings construct a central molecular network for EA and suggest YY1 as a potential neurobiological target linking central autonomic regulation with the amelioration of CHF. The comprehensive central mechanisms are summarized in Figure 7.
The NTS serves as the integration center for central cardiovascular reflexes and autonomic regulation21,22. In the context of cardiovascular diseases, CHF involves sustained autonomic imbalance characterized by sympathetic overactivation and vagal withdrawal23. During the pathophysiological progression of this condition, the sensitivity of peripheral baroreceptors decreases, which reduces excitatory afferent inputs to the NTS24. Consequently, this neural blunting leads to a diminished activation of the caudal ventrolateral medulla and a subsequent disinhibition of the rostral ventrolateral medulla, culminating in excessive central sympathetic outflow25. In parallel with these mechanisms, the electrophysiological and histological data indicated that the spontaneous firing frequency and c-Fos expression of NTS neurons were reduced in the CHF state. As a targeted neuromodulation approach, EA-generated somatosensory afferent signals are theoretically proposed to be transmitted through peripheral nerves to the dorsal horn of the spinal cord and to ascend to brainstem structures, including the NTS26. The results indicated that EA intervention at the HT7 acupoint increased neural oscillatory energy and restored neuronal firing rate in this brain region. Physiologically, the restored NTS neuronal activity facilitates activation of inhibitory interneurons in the medulla, thereby suppressing hyperactive sympathetic premotor neurons while concurrently enhancing parasympathetic efferent signals27. Linking these central neural mechanisms to peripheral cardiovascular phenotypes, the correlation analysis supported that this central neural activation was positively associated with LVEF and negatively associated with the peripheral heart failure marker NT-proBNP. These findings indicate that EA may exert its peripheral cardioprotective effects by alleviating the pathological inhibition of NTS neurons and promoting central autonomic homeostasis.
To elucidate the molecular pathways underlying this central neuromodulation, the proteomic landscape of the NTS was analyzed. Mass spectrometry-based proteomics identified 85 proteins whose expression patterns were modulated by the intervention. Functional stratification revealed that a subset of 58 proteins downregulated by EA is prominently involved in extracellular matrix organization and the transforming growth factor β-signaling pathway. The extracellular matrix in the central nervous system forms an organized lattice, including perineuronal nets that physically enwrap synaptic terminals and regulate local ion homeostasis28. Under chronic pathological stress, such as heart failure, aberrant extracellular matrix deposition creates a restrictive microenvironment within the brainstem29. This structural remodeling physically impedes synaptic structural plasticity and maintains neural circuits in a state of sympathetic hyperactivity30. By modulating the expression of structural proteins, such as COL3A1 and COL14A1 alongside DCN, EA remodels this pathological extracellular barrier. Concurrently, the enrichment of related signaling cascades—categorized under the "cytoskeleton in muscle cells" KEGG pathway, which indicates general structural and integrin-mediated alterations rather than implying the actual presence of myocytes within the NTS—suggests that extracellular changes are transmitted into the intracellular compartment31. This mechanotransduction signaling restores the dynamic turnover of dendritic spines and regulates synaptic transmission and efficacy in the autonomic reflex arc32.
Beyond extracellular structural reorganization, functional annotation of the 27 proteins upregulated by the intervention indicated the involvement of ATP-dependent chromatin remodeling. Sustained cardiovascular autonomic imbalance is maintained by epigenetic restrictions, where condensed chromatin limits the accessibility of promoter regions for genes regulating neural inhibition33. ATP-dependent chromatin remodeling complexes use energy from ATP hydrolysis to slide or evict nucleosomes, thereby opening genomic loci for active transcription34. The enrichment of this pathway, alongside the positive regulation of DNA-templated transcription elongation, indicates that EA acts at the epigenetic level to remodel disease-associated transcriptional memory35. The structural relaxation of the extracellular microenvironment translates into nuclear epigenetic modifications, facilitating the coordinated transcription of neuroprotective gene networks bridged by key proteins such as YY1 and E2F236,37. To systematically isolate the biological target mediating the therapeutic efficacy of EA, a stepwise screening strategy was applied. The 85 differentially expressed proteins were filtered through topological network mapping and pathway enrichment analysis to identify 10 prominent hub candidates. Subsequent tissue expression profiling verified that only YY1 and DPF2, alongside DMAP1, are expressed in human brain tissues. In vivo molecular validation further excluded DPF2 and DMAP1 due to a lack of transcriptional responsiveness, confirming YY1 as a highly responsive candidate target. YY1 is a zinc-finger transcription factor that exerts control over central nervous system development and neuronal plasticity38. In mature neural circuits, YY1 functions as a neuroprotective regulator by maintaining mitochondrial homeostasis and mitigating oxidative stress39. During the pathological progression of CHF, sustained hemodynamic stress and peripheral inflammation induce metabolic dysfunction and structural damage in brainstem neurons40. The experimental data indicated that YY1 expression is suppressed in the NTS under CHF conditions, whereas EA intervention counteracted this pathological suppression. Based strictly on computational bioinformatics predictions rather than empirical validation, YY1 is hypothesized to interact with active histone modifications, such as H3K27ac and H3K4me3, to orchestrate the transcription of downstream neuroprotective gene networks 41. The restoration of YY1 activity may facilitate repair of neuronal metabolic pathways and promote the structural integrity of synaptic connections. Consequently, the modulated NTS neurons improve their capacity to process peripheral baroreflex inputs and exert inhibitory control over descending sympathetic premotor pathways, which ameliorates the cardiovascular deterioration associated with CHF42.
Despite these discoveries, several methodological limitations warrant rigorous consideration. First, the current experimental design relied on correlational omics and expression profiling without direct functional evidence. Future investigations must incorporate targeted genetic manipulations, such as viral vector-mediated knockdown or overexpression within the NTS, alongside empirical ChIP-seq or CUT&Tag assays, to definitively establish the causal role of YY1 and validate its downstream epigenetic networks. Second, excluding the Sham EA cohort from the proteomics phase limits our ability to definitively rule out molecular signatures induced by nonspecific somatosensory stimulation. However, comparing the CHF and EA groups relative to the Sham baseline is considered sufficient to isolate EA-specific molecular changes in the current design. This is because all non-intervention cohorts, specifically the Sham and CHF groups, underwent strict baseline standardization of daily isoflurane anesthesia exposure, which effectively minimized the most profound non-specific neurological stress confounders. Furthermore, our initial functional data showed that Sham EA did not elicit significant cardiovascular or neural activation relative to the CHF group, suggesting that superficial somatosensory stimulation without electrical current does not reach the threshold required to drive substantial central molecular reprogramming. Third, the study lacks standard non-acupoint control groups, which prevents the definitive confirmation of HT7 acupoint specificity. Furthermore, the proposed HT7-to-NTS afferent neural pathways remain speculative without direct neural tracing or nerve-blockade validation. Finally, the in vivo electrophysiology evaluated global NTS activity at a single time point without distinguishing between specific excitatory and inhibitory neuronal subpopulations, nor did it assess long-term neural plasticity. Subsequent research must address these critical gaps to refine the central neurobiological mechanisms.
Ultimately, by integrating these findings while acknowledging their correlational nature, this research provides a valuable molecular framework indicating that EA mitigates pathological cardiac remodeling by restoring NTS neuronal function. These data highlight YY1 as a highly responsive candidate target for central cardiovascular neuromodulation, offering novel neurobiological insights for the clinical application of acupuncture therapy in heart failure management.
Divulgaciones
Todos los autores declaran que no tienen conflictos de intereses. Los autores también declaran que no se utilizaron herramientas de inteligencia artificial en ninguna parte del proceso de preparación del manuscrito.
Agradecimientos
Deseamos expresar nuestro sincero agradecimiento a todos los investigadores que contribuyeron a este estudio y reconocemos respetuosamente el sacrificio de los animales experimentales. Este trabajo fue apoyado por el Programa Nacional Clave de Investigación y Desarrollo de China (n.º de beca 2022YFC3500500 y 2022YFC3500502) y el Programa de Apoyo a Talentos a Nivel Universitario Xu Nenggui (n.º de beca DT2400000222). Los financiadores no tuvieron ningún papel en el diseño del estudio, la recopilación y análisis de datos, la decisión de publicar ni en la preparación del manuscrito.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Ratas macho adultas Sprague-Dawley | Liaoning Changsheng Biotechnology Co., Ltd. | No. SCXK (LIAO) 2025-0001 | RGD_70508 |
| Agujas de acupuntura | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Medio de montaje antidesvanecimiento con DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| Anticuerpo primario anti-YY1 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| Anticuerpo primario anti-Beta Actina | 66009-1-Ig | AB_2687938 | |
| Albúmina sérica bovina (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| Kit de ensayo de proteína BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P0012S | — |
| c-Fos (9F6) mAb de conejo | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | The Cytoscape Consortium | versión 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| Aparato de electroacupuntura | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-200A | — |
| Matriz de microelectrodos de ocho canales (2 × 4) | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| Kit ELISA (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| Kit ELISA (cTnT) | MM-0795R2 | — | |
| Kit de quimioluminiscencia mejorada | Proteintech Group, Inc | PK10001 | — |
| Goat anti-rabbit IgG | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| Anticuerpo secundario HRP-conjugado Goat Anti-Mouse IgG | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | N/A |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| Software ImageJ | National Institutes of Health | versión 4.0 | SCR_003070 |
| Sistema de imagen | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Máquina de anestesia para pequeños animales de múltiples canales | RWD Life Science Co., Ltd | R510-22-10 | — |
| Microscopio | Olympus Optical Co., Ltd. | DP72 | — |
| Software NeuroExplorer | Beijing Plexon Technology Co., Ltd. | versión 5.0 | SCR_001818 |
| Software Offline Sorter | Beijing Plexon Technology Co., Ltd. | versión 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Sistema estándar de derivación de extremidades Powerlab II | AD Instruments International Trading Co., Ltd. | ML118 | — |
| Columna PepMap Neo Trap | Thermo Fisher Scientific | — | — |
| Inhibidores de fosfatasa | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| Software R | — | versión 4.5.2 | SCR_001905 |
| Tampón de lisis RIPA | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Sistema de ultrasonido digital para pequeños animales | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| Software estadístico | GraphPad Software | versión 8.0 | SCR_002798 |
| Sistema de adquisición multicanal OmniPlex | Beijing Plexon Technology Co., Ltd. | versión 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Sistema Vanquish Neo UHPLC | Thermo Fisher Scientific | — | — |
| Columna de alto rendimiento µPAC Neo | Thermo Fisher Scientific | — | — |
Referencias
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.