Ce vidéo montre la génération de virus de la rougeole recombinants à l'aide de liposomes pour délivrer des plasmides codant pour l'antigénome viral et des protéines auxiliaires essentielles dans des cellules productrices. L'ARN transcrit et répliqué conduit à la formation de particules virales exprimant des protéines rapporteuses immunostimulantes et fluorescentes. La microscopie à fluorescence est ensuite utilisée pour visualiser la formation de syncytiums, confirmant ainsi la production réussie de virus recombinants.
Article de méthode
Génération d'un virus recombinant de la rougeole codant pour une protéine immunostimulante
22 vues
⸱
30 septembre 2026
Dans cet article
Résumé
Protocole
REMARQUE : [O], [P] et [M] indiquent respectivement des sous-sections applicables aux : virus oncolytiques (VO) en général, (la plupart des) paramyxovirus ou uniquement au virus de la rougeole (VR). [B] indique les sections spécifiques aux transgènes d'engageurs bispécifiques de cellules T (BTE).
1 Clonage de transgènes codant des immunomodulateurs dans des vecteurs viraux de la rougeole
- [O] Concevoir la séquence d'insertion.
- [O] Choisir un immunomodulateur d'intérêt en se basant sur des recherches bibliographiques ou des données exploratoires telles que des criblages génétiques, puis extraire la séquence d'ADN complémentaire (cDNA) correspondante à partir de bases de données appropriées telles que GenBank, l'Archive Européenne des Nucléotides ou le système international d'information ImMunoGeneTics (IMGT).
- [O] Ajouter des éléments supplémentaires à la séquence du transgène (Figure 1). Une séquence de Kozak précédant le gène et une optimisation des codons spécifique à l'espèce peuvent améliorer l'expression. Des séquences signal sont nécessaires pour la sécrétion. Inclure des séquences codant des marqueurs protéiques N-terminal et/ou C-terminal pour la détection et la purification. Inclure des sites de restriction pour l'insertion dans le vecteur.
REMARQUE : [M] Des unités de transcription supplémentaires (ATU) contenant les signaux de début et de fin du gène de la polymérase du virus de la rougeole (MV) sont nécessaires à l'expression du transgène à partir de génomes MV recombinants. Des vecteurs d'ADN anti-génomique appropriés, contrôlés par des promoteurs du cytomégalovirus (CMV) et contenant des ATU avec des sites de restriction uniques pour l'introduction de transgènes à sens positif à des positions définies, ont déjà été développés. [P] Le positionnement adéquat du transgène est crucial, car il influence la réplication virale et l'expression du transgène en raison du gradient d'expression typique des paramyxovirus. L'insertion dans une ATU proche de l'extrémité 3' de l'anti-génome (c'est-à-dire en position leader ou en aval du gène P) entraîne généralement une forte expression du transgène au détriment de la réplication virale. Une réplication accrue accompagnée d'une expression plus faible du transgène peut être attendue lorsqu'on utilise l'ATU en aval du gène H. L'empaquetage du génome de plusieurs paramyxovirus, y compris le virus de la rougeole, nécessite la liaison de six nucléotides par chaque protéine de nucléocapside. Pour l'insertion de transgènes dans ces virus, s'assurer que le nombre total de nucléotides du génome complet soit divisible par six. C'est ce qu'on appelle la « règle des six ». Si nécessaire, ajouter des nucléotides supplémentaires dans l'insert (en amont de la séquence de Kozak ou en aval du codon d'arrêt) sans introduire de décalage du cadre de lecture ni de codons d'arrêt prématurés. [M] Éviter certaines séquences dans le transgène qui ressemblent aux signaux de début (AGGRNCMARGW) et de fin (RTTAWANAAAA) du gène MV, ainsi que les séquences d'édition de l'ARN (AAAAAGGG). - [O] Commander des oligonucléotides de la séquence souhaitée ou assembler la séquence à partir de fragments disponibles par clonage moléculaire standard.
REMARQUE : [O] Pour l'amplification par réaction en chaîne par polymérase (PCR) du transgène, concevoir un amorceur direct incluant le site de restriction en amont et les 15 à 20 premiers nucléotides de l'insert, ainsi qu'un amorceur inverse incluant les 15 à 20 derniers nucléotides de l'insert suivis du site de restriction en aval.
- [O] Cloner l'insert dans l'ADN codant le (anti-)génome viral.
- [O] Cloner l'insert dans des vecteurs d'ADN ou des anti-génomes d'ADN de virus à ARN par des techniques standard de clonage moléculaire (c'est-à-dire restriction enzymatique suivie de ligature de l'ADN).
- [O] Prévenir la religation du vecteur en utilisant des sites de restriction incompatibles ou en déphosphorylant le vecteur avant la ligature.
- [O] Isoler le produit de ligature par électrophorèse sur gel d'agarose, puis purification du gel à l'aide de kits commercialement disponibles. En général, une efficacité optimale de ligature est obtenue avec un rapport molaire insert/vecteur de 3:1.
- [O] Transformer le produit de ligature dans des bactéries compétentes adaptées à la récupération efficace de grands plasmides (c'est-à-dire effectuer un choc thermique sur E. coli) et identifier les clones bactériens contenant l'ADN correct par PCR de colonies.
- [O] Isoler l'ADN amplifié à partir d'un clone bactérien unique à l'aide de kits commerciaux de préparation d'ADN. Confirmer l'intégrité génomique par digestion contrôle avec des enzymes de restriction appropriées (par exemple, HindIII pour les génomes MV [M]). Confirmer l'insertion correcte et l'intégrité du transgène par séquençage.
REMARQUE : [M] Pour les transgènes insérés dans l'ATU H du MV, effectuer un séquençage de Sanger avec les amorces suivantes : H-9018 [amorceur direct, se lie à la position 9018 du génome MV dans le cadre de lecture ouvert (ORF) du gène H] : 5' GTGTGCTTGCGGACTCAGAATC 3' ; L-9249+ (amorceur inverse, se lie à la position 9249 du génome MV dans l'ORF du gène L) : 5' CAGATAGCGAGTCCATAACGG 3'.
- [O] Cloner l'insert dans des vecteurs d'ADN ou des anti-génomes d'ADN de virus à ARN par des techniques standard de clonage moléculaire (c'est-à-dire restriction enzymatique suivie de ligature de l'ADN).
2. Récupération de particules de virus de la rougeole recombinantes codant pour des immunomodulateurs
- [O] Générer des particules de virus recombinants à partir d'ADN (anti-)génomique par transfection de cellules productrices de virus selon le protocole standard pour le virus concerné. Suivre les directives relatives au travail en conditions stériles. Réaliser la culture cellulaire sous hotte, en particulier toutes les étapes impliquant le virus, dans des enceintes de sécurité biologique de classe II.
- [M] Pour la récupération de virus de la rougeole à partir d'ADNc, ensemencer uniformément des cellules productrices de MV (cellules Vero dérivées de rein de singe vert africain) dans une plaque 6 puits 24 h avant la transfection. Séminer 2 x 10⁵ cellules dans 2 mL de milieu de culture de Dulbecco modifié (DMEM) contenant 10 % de sérum de veau fœtal (FBS) par puits afin d'obtenir une confluence de 65 à 75 % au moment de la transfection.
REMARQUE : [P] Réduire le nombre de cellules si celles-ci dépassent la confluence avant la formation de syncytium induite par le virus. - [P] Transfecter les cellules avec de l'ADN codant l'anti-génome viral, les plasmides auxiliaires requis, et, si souhaité, un plasmide codant une protéine rapporteur fluorescente pour évaluer l'efficacité de la transfection.
- [M] Mélanger 5 µg d'ADN recombinant codant l'anti-génome du virus de la rougeole, 500 ng chacun des plasmides d'expression mammifère codant les protéines N et L du virus de la rougeole, et 100 ng chacun des plasmides codant la protéine P, dans un volume total de 200 µL de DMEM. Si désiré pour évaluer l'efficacité de la transfection (et si ce n'est pas déjà présent dans la construction de l'anti-génome viral), ajouter 100 ng d'un plasmide rapporteur fluorescent.
- Ajouter 18,6 µL de réactif de transfection liposomal, mélanger immédiatement en agitant doucement le tube, puis incuber 25 min à température ambiante (RT).
- [P] Remplacer le milieu par 1,8 mL de DMEM, 2 % de FBS, 50 µg/mL de kanamycine (ou un autre antibiotique pour prévenir la contamination) par puits, puis ajouter le mélange de transfection goutte à goutte dans le puits et agiter délicatement. Incuber les cellules toute la nuit à 37 °C, 5 % CO2. Le lendemain, remplacer le milieu par 2 mL de DMEM frais, 2 % de FBS et 50 µg/mL de kanamycine ; répéter cette opération lorsque le milieu devient acide.
PRÉCAUTION : [O] Manipuler les cellules et les matériaux conformément aux réglementations de sécurité biologique, car le virus peut être présent dès la transfection et au cours des étapes suivantes. Jeter les déchets (éventuellement) infectieux de manière appropriée.
- [M] Pour la récupération de virus de la rougeole à partir d'ADNc, ensemencer uniformément des cellules productrices de MV (cellules Vero dérivées de rein de singe vert africain) dans une plaque 6 puits 24 h avant la transfection. Séminer 2 x 10⁵ cellules dans 2 mL de milieu de culture de Dulbecco modifié (DMEM) contenant 10 % de sérum de veau fœtal (FBS) par puits afin d'obtenir une confluence de 65 à 75 % au moment de la transfection.
Résultats
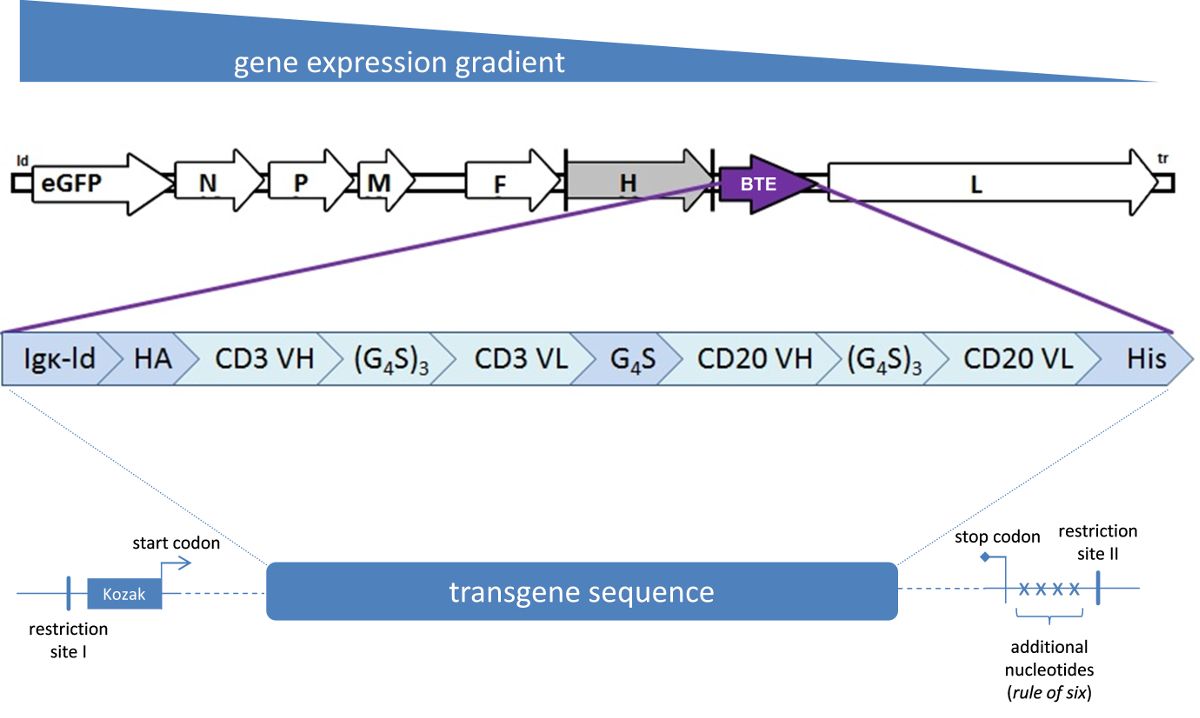
Figure 1 : Représentation schématique du génome d’un virus de la rougeole. La protéine fluorescente verte améliorée (eGFP) est codée dans une unité de transcription supplémentaire en aval de la séquence leader (ld). Les gènes N, P, M, F, H et L désignent respectivement les gènes codant pour les protéines structurales du virus de la rougeole : la nucléoprotéine, la protéine P, la protéine matricielle, la protéine de fusion, la protéine hémagglutinine et la grande protéine (polymérase), dont l'expression différentielle est illustrée ci-dessus. Un transgène codant pour un engageur bispécifique de lymphocytes T (BTE) est inséré dans une unité de transcription supplémentaire (ATU) en aval du cadre de lecture ouvert H. Ce transgène code pour un peptide signal de la chaîne kappa d'immunoglobuline (Igκ), assurant une sécrétion efficace, ainsi que pour des marqueurs protéiques d'hémagglutinine de grippe (HA) et d'hexa-histidine (His), utilisés pour la détection et la purification. Les gènes codant pour les domaines variables de chaîne lourde (VH) et de chaîne légère (VL) d'anticorps ciblant respectivement CD3 et CD20 sont reliés via des séquences d'acides aminés intermédiaires contenant des résidus de glycine (G) et de sérine (S). La séquence du transgène est précédée d'une séquence de Kozak. En aval de la région codante, des nucléotides supplémentaires ont été ajoutés à titre d'exemple afin de respecter la règle des six. Le cassette d'insertion est encadré par deux sites de restriction permettant son insertion dans l'ATU correspondante.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Kit de déphosphorylation et de ligature rapide de l'ADN | Roche Life Science, Mannheim, Allemagne | 4898117001 | |
| Kit CloneJET de clonage PCR | Thermo Fisher Scientific, St. Leon-Rot | K1231 | |
| Agarose | Sigma-Aldrich, Taufkirchen, Allemagne | A9539-500G | |
| Kit d'extraction de gel QIAquick | QIAGEN, Hilden, Allemagne | 28704 | |
| E. coli compétents NEB 10-beta | New England Biolabs (NEB), Francfort-sur-le-Main, Allemagne | C3019I | |
| Kit de minipréparation QIAquick | QIAGEN, Hilden, Allemagne | 27104 | |
| Enzyme de restriction HindIII-HF | New England Biolabs (NEB), Francfort-sur-le-Main, Allemagne | R3104S | |
| Milieu de culture de Dulbecco modifié (DMEM) | Invitrogen, Darmstadt, Allemagne | 31966-021 | |
| Sérum de veau fœtal (FBS) | Biosera, Boussens, France | FB-1280/500 | |
| FugeneHD | Promega, Mannheim, Allemagne | E2311 | peut être remplacé par un réactif de transfection au choix |
| Kanamycine | Sigma-Aldrich, Taufkirchen, Allemagne | K0129 | |
| Cellules Vero | ATCC, Manassas, Virginie, États-Unis | CCL81 | |
| Plaques 6 puits | Neolab, Heidelberg, Allemagne | 353046 |
