La peinture chromosomique est une méthode utile pour étudier l’organisation du noyau cellulaire et l’évolution du caryotype. Ici, nous démontrons une approche pour isoler et amplifier des régions spécifiques d’intérêt des chromosomes simples de polytène qui sont ensuite utilisés pour l’hybridation in situ fluorescente bidimensionnelle et tridimensionnelle (FISH).
Article de méthode
Peinture chromosomique 2D et 3D chez les moustiques du paludisme
Dans cet article
Résumé
Résumé
L’hybridation in situ fluorescente (FISH) des sondes chromosomiques du bras entier est une technique robuste pour cartographier les régions génomiques d’intérêt, détecter les réarrangements chromosomiques et étudier l’organisation tridimensionnelle (3D) des chromosomes dans le noyau cellulaire. L’avènement de la microdissection par capture laser (LCM) et de l’amplification du génome entier (WGA) permet d’obtenir de grandes quantités d’ADN à partir de cellules individuelles. La sensibilité accrue des kits WGA nous a incités à développer des peintures chromosomiques et à les utiliser pour explorer l’organisation et l’évolution des chromosomes dans des organismes non modèles. Ici, nous présentons une méthode simple pour isoler et amplifier les segments euchromatiques des bras chromosomiques polytènes simples des cellules infirmières ovariennes du moustique africain du paludisme Anopheles gambiae. Cette procédure fournit une plate-forme efficace pour obtenir des peintures chromosomiques, tout en réduisant le risque global d’introduction d’ADN étranger dans l’échantillon. L’utilisation de WGA permet plusieurs cycles de ré-amplification, résultant en de grandes quantités d’ADN qui peuvent être utilisées pour de multiples expériences, y compris 2D et 3D FISH. Nous avons démontré que les peintures chromosomiques développées peuvent être utilisées avec succès pour établir la correspondance entre les parties euchromatiques des bras de polytène et de chromosome mitotique dans An. gambiae. Dans l’ensemble, l’union du LCM et du WGA à chromosome unique fournit un outil efficace pour créer des quantités significatives d’ADN cible pour de futures études cytogénétiques et génomiques.
Introduction
La peinture chromosomique est une technique utile pour étudier l’évolution des caryotypes 1-5 et pour visualiser les anomalies cytogénétiques via l’hybridation de l’ADN chromosomique marqué par fluorescence 1,6-8. Cette méthode est également appliquée à l’étude de la dynamique 3D des territoires chromosomiques dans le développement 9 et la pathologie 10. Les peintures chromosomiques marqués différentiellement sont utilisées pour la visualisation des chromosomes mitotiques 11,12,méiotiques 13,14ou interphase non polytènes 15,16 et polytène 9,11,17. Un protocole simple et robuste pour obtenir des peintures chromosomiques serait très utile pour étendre cette technique aux organismes non modèles, tels que les moustiques. Le complexe Anopheles gambiae est un groupe de sept moustiques morphologiquement indiscernables dont le comportement et l’adaptation varient, y compris la capacité de transmettre le paludisme. Ces moustiques constituent un excellent modèle pour mieux comprendre l’évolution d’espèces étroitement apparentées qui diffèrent grandement par leur capacité vectorielle. La plupart des études cytogénétiques chez les moustiques du paludisme ont été réalisées à l’aide de chromosomes bien développés et hautement polyténétiques (examinés en 18,19). Les modèles de bandes lisibles des chromosomes polytènes ont permis aux chercheurs de démontrer l’association entre les inversions polymorphes et les adaptations écologiques chez Anopheles gambiae 20. En outre, 21 tissu-spécifique et 22 caractéristiques espèces-spécifiques de l’organisation 3D de chromosome de polytène ont été caractérisées dans le complexe d’An. macullipennis. Cependant, l’étude des chromosomes mitotiques pourrait fournir des informations importantes supplémentaires. Par exemple, un niveau plus élevé de polymorphisme de l’hétérochromatine observé dans les chromosomes mitotiques a été corrélé avec une activité d’accouplement et une fertilité réduites chez An. gambiae 23. La correspondance entre les segments euchromatiques du polytène et des bras mitotic de chromosome pourrait être difficile à établir seulement en comparant leurs longueurs relatives. En effet, l’hétérochromatine constitue une partie importante des chromosomes mitotiques, mais est sous-représentée dans les chromosomes polytènes 24. La disponibilité de peintures chromosomiques pour les moustiques du paludisme permettrait aux chercheurs d’élargir considérablement les études cytogénétiques en incluant d’autres espèces, tout en réduisant considérablement le coût et le temps dans les analyses de l’évolution caryotypique et de la dynamique 3D des chromosomes de ce groupe d’insectes d’importance épidémiologique.
Afin d’obtenir de grandes étendues de chromosomes, la microdissection est devenue une technique intégrale pour manipuler et isoler des régions spécifiques d’intérêt du complément chromosomique. Lorsqu’elle est associée à l’amplification du génome entier (WGA), la microdissection donne de puissantes applications enaval,notamment FISH 11,12 et le séquençage du génome de nouvelle génération 25-27. Auparavant, la technique nécessitait l’utilisation d’aiguilles de microdissection spécialisées qui devaient être commandées manuellement par un utilisateur expérimenté 28. L’avancement de la microdissection de capture laser (LCM) a abouti à un outil simplifié mieux adapté pour isoler les cellules simples 29,30 ou les chromosomes individuels 31-33 avec un risque réduit de contamination. Cette approche permet à l’utilisateur d’étudier les hétérogénéités génétiques et les anomalies chromosomiques qui se produisent dans les cellules individuelles, au lieu d’un paysage de consensus qui résulte de la mise en commun de plusieurs cellules ensemble 34-36. Plusieurs méthodes ont été employées pour amplifier l’ADN produit par la microdissection. La DOP-PCR, technique utile à l’amplification de séquences hautement répétitives, a été utilisée pour amplifier les chromosomes microdissectés d’espèces dont la sauterelle 37,l’anguille épineuse 38et le tilapia du Nil 39. Plus récemment, le kit monocellulaire GenomePlex WGA4 basé sur pcr et le kit monocellulaire Repli-G à amplification à déplacement multiple (MDA) sont devenus des outils précieux pour les expériences impliquant l’analyse génétique de cellules humaines uniques ainsi que des chromosomes40-42,y compris les systèmes du chromosome B chez les sauterelles 37 et les criquets 43. Ces deux kits présentent chacun des avantages et des inconvénients, mais leur supériorité apparente par rapport aux autres systèmes d’amplification disponibles a été démontrée 44.
La quantité d’ADN qui peut être obtenue à partir d’un seul chromosome ou d’un segment chromosomique est significativement inférieure à celle d’un noyau entier. Par conséquent, la microdissection, l’amplification et l’analyse ultérieure d’un seul chromosome sont beaucoup plus difficiles, en particulier chez les organismes avec de petits génomes comme chez la drosophile ou l’anophèle. Bien que des peintures aient été développées à partir de chromosomes microdissectés simples d’un humain 33 et d’une guêpe 45,une expérience fish réussie a nécessité plusieurs (au moins 10-15) chromosomes mitotiques microdissectés d’une mouche des fruits 11. Cependant, la capacité de microdissécter et d’amplifier un seul chromosome serait importante pour (i) réduire le risque de contamination par du matériel provenant d’un chromosome différent, (ii) minimiser le nombre de préparations chromosomiques nécessaires à la microdissection, (iii) réduire le nucléotide et le polymorphisme structurel de l’échantillon microdisséqué dans les applications fish et séquençant en aval. Les chromosomes polytènes trouvés chez de nombreuses espèces de diptères offrent une occasion unique d’acquérir une quantité initiale d’ADN beaucoup plus élevée. Ils fournissent également une résolution et une structure chromosomique plus élevées qui ne peuvent pas être obtenues par l’utilisation de chromosomes mitotiques. Cette résolution supplémentaire peut être critique dans la visualisation des réarrangements chromosomiques, de la structure de la chromatine et des segments chromosomiques à microdissécer 28,46.
Ici, nous présentons une procédure pour isoler efficacement un segment euchromatique d’un seul bras de chromosome polytène, amplifier l’ADN et l’utiliser dans des applications FISH en aval chez les moustiques du paludisme. Tout d’abord, nous appliquons LCM pour isoler et extraire un seul bras chromosomique à partir de lames membranaires spécialement préparées. Deuxièmement, WGA est utilisé pour amplifier l’ADN du matériau microdisséqué. Troisièmement, nous hybridons l’ADN amplifié dans les expériences FISH aux préparations de courge polytène 47,aux lames chromosomiques métaphases et interphases 48,ainsi qu’aux échantillons de montage ovarien entier 3D. Cette procédure a été faite pour peindre avec succès une majorité de l’euchromatine dans les bras chromosomiques d’An. gambiae.
Protocole
1) Préparation de la lame du chromosome polytène pour la microdissection de capture laser
- Disséquer les femelles anophèles semi-gravides à 25 heures après l’alimentation par le sang. Fixer les ovaires d’environ cinq femelles dans 500 μl de solution de Carnoy fraîchement modifiée (100% méthanol: acide acétique glacial, 3:1) à température ambiante pendant 24 heures. Transférer les ovaires à -20 °C pour un stockage à long terme.
- Préparez la solution de Carnoy (100% éthanol: acide acétique glacial, 3:1) et 50% d’acide propionique juste avant de faire des lames chromosomiques.
- Placez une paire d’ovaires dans une goutte de solution de Carnoy sur une lame de membrane PET Zeiss 1.0. Selon la taille, divisez les ovaires en environ 2-4 sections avec des aiguilles de dissection et placez-les dans une goutte d’acide propionique à 50% sur des lames propres sous un microscope de dissection.
- Séparer les follicules et enlever le tissu restant à l’aide d’une serviette en papier sous un stéréomicroscope de dissection. Ajouter une nouvelle goutte d’acide propionique à 50% aux follicules et leur laisser reposer pendant 3-5 min à température ambiante.
- Placez une lamelle de couverture siliconée sur le dessus de la gouttelette. Laissez reposer la glissière pendant environ 1 min.
- Couvrez la lame avec un matériau absorbant (le papier filtre est utilisé pour cette méthode), et tout en utilisant le côté gomme d’un crayon, appliquez une pression généreuse sur la lame de couverture en tapant dessus à plusieurs reprises avec la gomme.
- Chauffer la lame à 60 °C sur un système de dénéaturation/hybridation de la lame pendant 15 à 20 minutes pour aider à aplatir les chromosomes polytènes. Placez les lames dans une chambre humide à 4 °C pendant la nuit pour permettre à l’acide d’aplatir davantage les chromosomes.
- Placer les lames dans de l’éthanol froid à 50% pendant 10 min. Retirez délicatement la lamelle et remplacez froidement l’éthanol à 50% pendant 10 minutes de plus.
- Déshydrater les lames dans 70%, 90%, 100% éthanol pendant 5 min chacune. Toboggans secs à l’air.
- Préparer une solution de solution tampon GURR en ajoutant un seul comprimé tampon à 1 L d’eau distillée. autoclave.
- Préparez la solution de Giemsa en ajoutant 1 ml de solution de coloration de Giemsa à 50 ml de tampon GURR.
- Placez les lames séchées à l’air dans une solution Giemsa pendant 10 min et lavez trois fois dans un PBS 1X. Les lames sèches à l’air à nouveau dans un climat stérile contrôlé pour éviter la contamination.
2) Microdissection de capture laser d’un seul bras chromosomique polytène
Cette section détaille l’utilisation du logiciel PALMRobo, fourni avec le système de microdissection palm microbeam laser.
- Nettoyez le microscope avec 100% d’éthanol. Stérilisez les gants et les tubes avec une lumière UV dans un réticulant UV.
- Mettez sous tension le microscope à microdissection palm microfumeau laser et allumez le laser. Ouvrez la suite de dissection laser, PALMRobo, et configurez les paramètres « Alimentation » et « Mise au point » si nécessaire.
- Recherchez le bras du chromosome polytène d’intérêt.
- À l’aide de l’outil « Crayon », décrivez la région sélectionnée.
- Ouvrez la « fenêtre Eléments » depuis la barre de menus.
- Sélectionnez l’élément « Dessiné », assurez-vous d’avoir sélectionné « Couper ».
- Installez le tube adhésif dans le support et placez-le au-dessus de la glissière, en laissant un petit espace de <1 mm, et démarrez la découpe laser.
- Placez la « sélection de catapulte » dans le site de coupe, en laissant de l’espace entre le bord et le chromosome.
- Sélectionnez « LPC » dans l’option déroulante et commencez à catapulter.
- Vérifiez que l’échantillon a été catapulté dans le capuchon en appuyant sur l’icône « Œil ».
3) Purification de l’ADN à partir d’un seul bras chromosomique polytène microdisséqué
Suivez les instructions du QIAamp DNA Micro Kit pour libérer et purifier l’ADN collecté. L’étape 3.1 a été modifiée pour tenir compte du tube inversé.
- Ajouter 15 μl de tampon ATL et 10 μl de protéinase K au tube inversé (à l’intérieur du bouchon) et incuber à 56 °C pendant 3 h.
- Ajouter 25 μl de tampon ATL, 50 μl de tampon AL et 1 μl d’ARN porteur; mélanger. Ajouter 50 μl 100% EtOH; mélanger.
- Transférer le lysat dans la colonne QIAamp; centrifugeuse. Laver en ajoutant 500 μl de tampon AW1; centrifugeuse. Placer la colonne dans le nouveau tube de collecte, ajouter 500 μl de tampon AW2; centrifugeuse. Placez la colonne dans un nouveau tube; centrifugeuse pour éliminer l’excès de liquide.
- Placer la colonne dans un tube de microcentrifugation de 1,5 μl et ajouter 20 μl d’eau pour éluer; centrifugeuse.
- Évaporer l’ADN fraîchement élué jusqu’à un volume final de 9 μl à l’aide d’un vacuumfuge.
4) Amplification de l’ADN à partir d’un seul bras chromosomique polytène microdissecté
Deux protocoles différents ont été utilisés pour le WGA d’un bras simple de chromosome.
- Amplification de l’ADN et préparation de sonde via GenomePlex WGA
- Suivez le protocole GenomePlex Single Cell WGA4 Kit pour produire le premier lot d’ADN amplifié :
- Ajouter la solution de protéinase K fraîchement préparée à l’échantillon de 9 μl; Mélanger. Incuber l’ADN à 50 °C pendant 1 heure, puis chauffer à 99 °C pendant 4 min. Restez sur la glace.
- Ajouter 2 μl 1X tampon de préparation de bibliothèque unicellulaire et 1 μl de solution de stabilisation de bibliothèque; Mélanger. Échantillon thermique à 95 °C pendant 2 min. Refroidir sur la glace et centrifuger.
- Ajouter 1 μl d’enzyme de préparation de bibliothèque; mélanger et centrifuger. Incuber comme suit :
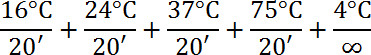
- Ajouter 7,5 μl 10X Amplification Master Mix, 48,5 μl d’eau. 5,0 μl d’ADN polymérase WGA; mélanger et centrifuger.
- Thermocycler comme suit:
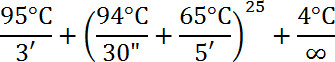
- Purifier l’ADN à l’aide du kit Genomic DNA Clean &Concentrator. Le protocole est le suivant :
- Ajouter 5:1 tampon de liaison à l’ADN: échantillon d’ADN (spécifiquement pour l’ADN génomique de moins de 2 kb. Si l’ADN de l’échantillon est supérieur à 2 kb, utilisez un rapport de 2:1) et transférez-le à la colonne de rotation fournie. centrifugeuse.
- Ajouter 200 μl de tampon de lavage de l’ADN et centrifugeuse. Répétez l’étape de lavage. Ensuite, ajoutez 50 μl d’eau et éluez l’ADN dans un nouveau tube de 1,5 ml.
- Ré-amplifier l’ADN de l’échantillon à l’aide du kit de réamplification GenomePlex WGA3 comme suit:
- Ajouter 10 μl d’ADN au tube PCR (le kit recommande 10 ng d’ADN total) avec 49,5 μl d’eau, 7,5 μl 10x Amplification Master Mix, 3,0 μl 10 mM de mélange de DNTP et 5,0 μl d’ADN polymérase WGA. Mélanger et centrifuger.
- Utilisez le profil suivant pour la réaction :
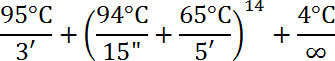
- Conserver l’ADN à -20 °C.
- Étiquetez l’ADN du poisson à l’aide du kit de réamplification GenomePlex WGA3 comme suit:
- Créez un mélange maître à partir du kit de réamplification GenomePlex WGA3 en ajoutant 10 μl d’ADN au tube PCR avec 49,5 μl d’eau, 7,5 μl 10X Amplification Master Mix, 3,0 μl 1 mM de mélange dNTP (1 mM de dATP, dCTP, dGTP, 0,3 μl 1 mM dTTP - si vous utilisez du dUTP étiqueté), 1 μl de 25 nM de dUTP marqué et 5,0 μl d’ADN polymérase WGA.
- Utilisez le profil suivant pour la réaction :
- L’éthanol précipite la sonde étiquetée en ajoutant 1/10 du volume de réaction final (7,5 μl pour une réaction de 75 μl) de l’acétate de sodium 3 M pH 5,2 et 2-3 volumes d’éthanol à 100 %. Refroidir l’échantillon d’ADN à -80 °C pendant au moins 30 min.
- Échantillon de centrifugeuse à 4 °C pendant 10 min pour créer des pastilles étiquetées et éliminer les pastilles surnageantes et sèches à l’air.
- Créez la mémoire tampon d’hybridation comme suit :
0,2 g de sulfate de dextrane
Formamide désionisé de 1200 μl
580 μlH2O
120 μl 20X SSC - Ajouter 40 μl de tampon d’hybridation aux granulés séchés à l’air.
- Suivez le protocole GenomePlex Single Cell WGA4 Kit pour produire le premier lot d’ADN amplifié :
- Amplification de l’ADN et préparation de sonde par l’intermédiaire de REPLI-G Single Cell WGA suivie d’une traduction de nick
- Suivez le protocole REPLI-g Single Cell WGA Kit pour produire l’ADN amplifié :
- Préparer le tampon D2 (3 μl de 1 M de TNT + 33 μl de tampon DLB).
- Mélanger 4 μl de matériau microdissecté purifié avec 3 μl de tampon D2. Tube scintillant à mélanger. Incuber pendant 10 min à 65 °C. Ajouter 3 μl de solution Stop; mélanger.
- Ajouter 9 μlH2O,29 μl de tampon de réaction REPLI-g et 2 μl d’ADN polymérase REPLI-g à l’échantillon. Incuber à 30 °C pendant 8 h. Inactiver l’ADN polymérase en chauffant à 65 °C pendant 3 min. Conserver l’ADN à -20 °C.
- Suivez le protocole de traduction nick pour étiqueter l’ADN amplifié REPLI-g :
- Préparez le mélange d’étiquetage suivant :
1 μg d’ADN amplifié
Tampon d’ADN polymérase 5 μl 10X
5 μl 10X dNTP
5 μl 1X BSA
1 μl 1 mM dNTP marqué
4 μl 1 U/μl DNase I
1 μl 10 U/μl ADN polymérase I
H2O à 50 μl - Incuber à 15 °C pendant 2 h. Ajouter 2 μl d’EDTA 0,5 M pour arrêter la réaction. Vérifiez la taille des fragments d’ADN en courant sur gel.
- Suivre les étapes du 4.1.4.3-4.1.4.6 pour précipiter et solubiliser les pastilles.
- Préparez le mélange d’étiquetage suivant :
- Suivez le protocole REPLI-g Single Cell WGA Kit pour produire l’ADN amplifié :
5) POISSON 2D sur les préparations de courge de polytène et de chromosome mitotique
Veuillez vous référer aux protocoles détaillés pour FISH sur les préparations de courges polytènes 47 et de lames du chromosome mitotique 48. Ici, nous fournissons de brefs protocoles.
- POISSON sur les préparations de courge du chromosome polytène
- Immerger les lames dans du PBS 1X pendant 20 min à RT. Fixer les lames dans du paraformaldéhyde à 4% dans du PBS 1X pendant 1 min.
- Déshydrater les lames à travers des lavages à l’éthanol: 50%, 70%, 90%, 100% pendant 5 min chacun à RT. Lames sèches à l’air.
- Préréguer la sonde dans le tampon d’hybridation à 37 °C. Ajouter 10-20 μl de sonde à faire glisser. Housse avec 22 X 22 mm coverlip. Appuyez sur les bulles d’air à l’aide d’une pointe de pipette.
- Dénaturer les chromosomes et sonder à 90 °C pendant 10 min. Sceller les bords de la lamelle avec du ciment en caoutchouc. Transférer la glissière dans une chambre humide et incuber à 39 °C pendant la nuit.
- Laver les lames avec 1X SSC à 39 °C pendant 20 min. Lavez les lames avec 1X SSC à RT pendant 20 min. Rincez les lames dans un PBS 1X, puis ajoutez Prolonger anti-fondu avec DAPI. Couvrir avec une lame de couverture et conserver dans une boîte à diapositives à 4 °C pendant au moins une heure avant la visualisation.
- POISSON sur les préparations de courge du chromosome mitotique
- Extraire les chromosomes mitotiques des disques imaginaux de la larve du4 e stade d’An. gambiae.
- Préparer des lames chromosomiques adaptées aux poissons.
- Ajouter 2-3 μl de sonde à ADN marqué au tampon d’hybridation dans un tube et mélanger doucement par pipetage.
- Appliquer 10 μl du mélange de sondes sur la lame et couvrir avec une lame de 22 X 22 mm. Appuyez sur les bulles d’air à l’aide d’une pointe de pipette.
- Pour la contre-altération et la détection, appliquez Prolonger l’anti-fondu avec DAPI à la préparation et maintenez-la dans l’obscurité pendant au moins une heure avant la visualisation.
6) POISSON 3D sur le tissu ovarien à montage entier
- Préparez le mélange A de tampon suivant :
60 mM KCl
NaCl 15 mM
0,5 mM spermidine
0,15 mM Spermine
EDTA 2 mM
EGTA de 0,5 mM
TUYAUX DE 15 mM - Préparez des diapositives pour la visualisation nucléaire en ajoutant une couche de nailpolish dans un motif carré pour correspondre à la taille des lamouches. Cela crée une surface surélevée pour empêcher l’écrasement des noyaux lors de la mise sur la lamelle à l’avenir.
- Disséquer les ovaires frais des femelles de stade 3 de Christopher et les conserver dans une solution de tampon A de 150 à 250 μl avec 0,5 % de digitonine. Exécutez une aiguille de dissection plus grande sur les follicules (dans le tube avec le tampon A avec 0,5% de digitonine) pour détruire la membrane folliculaire.
- Vortex pendant 5-10 min pour perturber davantage les follicules. Grattez toutes les grandes pièces folliculaires et le tube de centrifugation pendant 30 secondes au réglage le plus bas d’environ 500 tours par minute (RPM). Transférer le surnageant dans un nouveau tube Eppendorf de 2 ml et ajouter 100 μl de tampon A. Répétez l’étape 6.3 entre 5 et 7 fois, jusqu’à ce que le tissu visible soit brisé en petites particules.
- Faites tourner les deux tubes pendant 10 min à 2 000 tr/min. Jeter le surnageant dans les deux tubes. Remarque : Les deux tubes seront utilisés pour réaliser les diapositives de visualisation nucléaire finales. Le tube contenant du surnageant recueilli doit contenir principalement des noyaux extraits, tandis que le tube d’origine avec du tissu contiendra un mélange de tissu et de noyaux incorporés dans des cellules nourricières. Ajouter 200 μl de tampon A – 0,1 % de triton et incuber pendant la nuit à 4 °C. Centrifuger 5 min à 10 000 tr/min (10 621 x G) et enlever le surnageant.
- Ajouter 200 μl de paraformaldéhyde à 4 % dans le PBS. Incuber dans un thermomixeur pendant 30 min, en mélangeant à 450 rpm. Centrifuger 5 min à 5 000 tr/min (2 655 x G) et enlever le surnageant. Laver avec le tampon A avec 0,1% de Triton pendant 5 min, en mélangeant à 450 rpm dans un thermomixeur. Centrifuger 5 min à 5 000 tr/min (2 655 G) et retirer le surnageant.
- Ajouter la sonde préchauffée à 37 °C dans le tube. Dénaturer à 95 °C dans un thermomixeur, mélanger à 450 tr/min, pendant 10 min. Poursuivre la daturation à 80 °C pendant 15 min en continuant le mélange. Incuber à 37 °C dans un thermomixeur, avec un mélangeur à 450 tr/min pendant la nuit. Centrifugeuse 5 min à 5 000 tr/min (2 655 x G). Enlever le surnageant.
- Laver avec le tampon A avec 0,1% de Triton pendant 5 min. Centrifugeuse 5 min à 5 000 tr/min (2 655 x G). Répétez 2 fois. Appliquez la goutte de Prolong Anti-fade avec DAPI.
- Pipetez soigneusement les noyaux / solution DAPI (en évitant les bulles), appliquez sur la glissière et couvrez avec une lame de couverture.
Résultats
La figure 1 décrit le flux global du protocole décrit dans cet article. L’utilisateur commence d’abord par microdissécuter des échantillons d’ADN chromosomique à partir de lames membranaires. Le matériau microdissecté est extrait et purifié. L’ADN purifié est ensuite amplifié, ré-amplifié, marqué, puis utilisé pour fish pour étiqueter les propagations chromosomiques.
Le protocole LCM peut être décomposé en trois étapes globales: 1) Trouver les chromosomes d’intérêt et préparer la région pour la coupe(Figure 2A),2) Couper et catapulter la région chromosomique d’intérêt par laser(Figure 2B), et 3)Vérifier pour déterminer si l’échantillon est réellement catapulté dans le capuchon adhésif(Figure 2C). Le processus de LCM utilisé sur les chromosomes polytènes de la souche An. gambiae Sua est montré dans la vidéo 1. La vidéo détaille l’ensemble du processus depuis le démarrage du programme, y compris les fonctions et les conseils logiciels importants.
Les kits WGA unicellulaires GenomePlex et REPLI-g utilisés dans ce protocole diffèrent grandement par la taille du produit ainsi que par le rendement global. La figure 3 montre les résultats de l’électrophorèse sur gel effectuée pour les kits GenomePlex et REPLI-g, ainsi que la quantification des échantillons par Nanodrop.
Le matériel microdissecté a été employé pour créer des sondes FISH qui ciblent les régions euchromatiques d’un chromosome. La figure 4 montre fish de cinq sondes générées à partir de matériaux microdissectés sur des chromosomes polytènes d’An. gambiae. Quatre bras autosomiques ont été marqués avec trois fluorophores utilisant le kit WGA3 : le chromosome 3R est marqué en vert (fluorescéine), le chromosome 3L est dans un mélange de rouge (Cy-3) et de jaune (Cy-5), le chromosome 2R est en jaune (Cy-5), et le chromosome 2L est en rouge (Cy-3). Le chromosome de X a été marqué en orange (Cy-3) utilisant la nick-traduction du matériel de REPLI-g dans une expérience séparée. Pour établir la correspondance entre les parties euchromatiques des bras chromatiques polytènes et mitotiques, des peintures chromosomiques ont été hybridées aux chromosomes interphase, prophase, prophasée et métaphase d’An. gambiae (Figure 5). Pour visualiser l’organisation 3D d’un seul bras chromosomique polytène dans le noyau cellulaire, le support fish entier a été réalisé sur des cellules nourricières ovariennes de souche An. gambiae Sua (vidéo 2). Des territoires distincts du bras chromosomique sont clairement visibles dans les noyaux avec des chromosomes interphasés (Figure 5D) et polytènes (Vidéo 2).
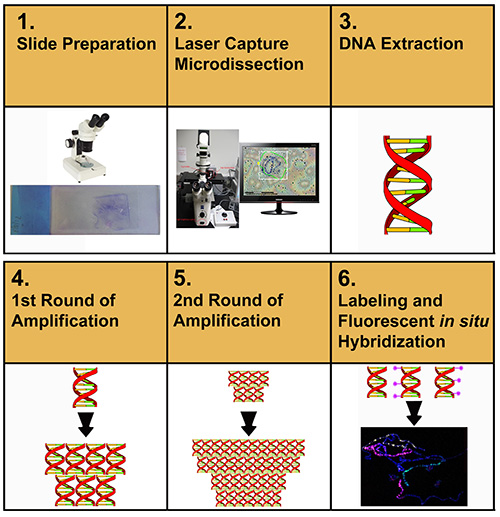
Figure 1. Représentation schématique des procédures expérimentales vers la préparation des peintures chromosomiques. Cliquez ici pour agrandir l’image.

Figure 2. Les principales étapes de la microdissection chromosomique. A) Découpe assistée par laser de la région chromosomique d’intérêt à travers la membrane. B) La membrane avec un trou après la catapulte est effectuée. C) La vue de la pièce catapultée de la membrane avec un segment chromosomique attaché au capuchon adhésif. La flèche indique l’hétérochromatine du chromosome X qui est resté sur la lame. L’astérisque montre un morceau d’un autre chromosome qui est resté sur la lame. Cliquez ici pour agrandir l’image.
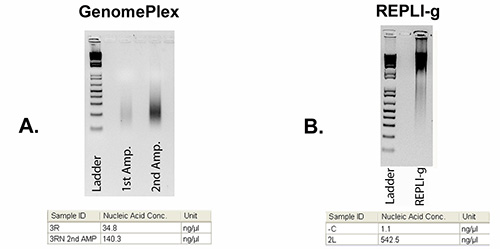
Figure 3. Images de gel d’agarose montrant l’ADN après WGA. A) ADN de faible poids moléculaire (200-500 pb) du bras 3R après utilisation des kits WGA4 et WGA3 GenomePlex. B) Adn de poids moléculaire élevé (10-20 kb) du bras 2L après amplification de REPLI-g. L’échelle de 100 pb est indiquée dans les voies de gauche. Les tableaux ci-dessous montrent les concentrations d’ADN mesurées par Nanodrop. Cliquez ici pour agrandir l’image.
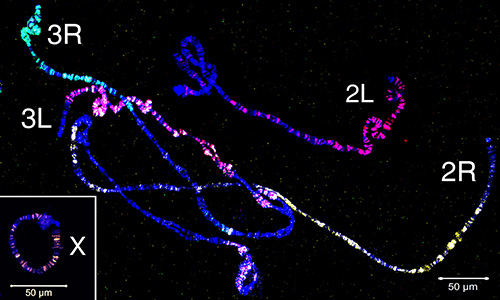
Figure 4. Peinture des chromosomes de polytène des cellules ovariennes d’infirmière d’An. gambiae utilisant quatre sondes générées à partir du matériel microdissected. Le chromosome X est marqué en orange (Cy-3) par surtraite du matériau REPLI-g. Le bras 2R est étiqueté en jaune (Cy-5); le bras de 2L est en rouge (Cy-3); le bras 3R est étiqueté en vert (fluorescéine); le bras 3L est marqué dans un mélange de rouge (Cy-3) et de jaune (Cy-5). Les autosomes sont étiquetés avec le kit d’amplification WGA3. La chromatine est colorée en bleu (DAPI). Les noms de chromosomes sont placés près des régions télomériques. Cliquez ici pour agrandir l’image.
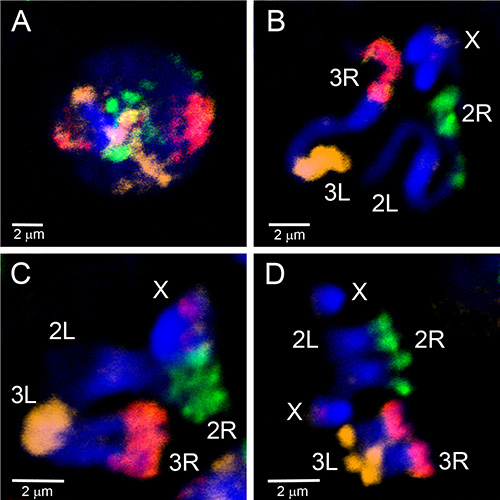
Figure 5. Peinture des chromosomes interphase (A), prophase (B), prometaphase (C) et métaphase (D) des disques imaginaux larvaires de la souche d’An. gambiae Mopti utilisant trois sondes générées à partir du matériel microdissected étiqueté par WGA3. Le bras 2R est étiqueté en vert (fluorescéine); le bras de 2L n’est pas étiqueté; le bras 3R est en rose, un mélange de rouge (Cy-3) et d’orange (Cy-5); le bras 3L est étiqueté en orange (Cy-5). Le chromosome X a une étiquette rouge correspondant à la sonde de l’ADNr 18S. La chromatine est colorée en bleu (DAPI). Les régions des chromosomes brillamment colorées correspondent à l’hétérochromatine. Cliquez ici pour agrandir l’image.
Vidéo 1. Le processus de LCM des chromosomes de polytène d’An. gambiae. Cliquez ici pour visionner la vidéo 1.
Vidéo 2. Fish 3D de montage entier réalisé sur des cellules nourricières ovariennes d’An. gambiae. La sonde est étiquetée en Cy-3 (représenté en bleu) et a été fabriquée à partir d’un bras chromosomique 2R microdissecté. La chromatine a été colorée avec du DAPI et est représentée par une pseudo-coloration cyan (bleu clair). Cliquez ici pour visionner la vidéo 2.
Discussion
Il existe plusieurs étapes essentielles pour amplifier avec succès l’ADN à partir d’échantillons de chromosomes polytènes microdissectés. Le protocole utilise l’utilisation du LCM, une méthode qui augmente l’efficacité globale et réduit l’exposition à l’ADN étranger en éliminant l’interaction des outils physiques avec l’échantillon. Cependant, l’amplification de l’ADN étranger reste le plus grand écueil potentiel de cette expérience. Ainsi, tout au long du processus, il est essentiel de protéger les échantillons de la contamination. Tout au long des phases de préparation des lames et de microdissection, il est essentiel de laver à l’éthanol les aiguilles de dissection, les lames, les bordereaux de couverture, ainsi que l’espace de travail. Il est également conseillé de traiter aux UV tout l’équipement applicable (aiguilles, lames, lamaux de couverture) avant utilisation.
La membrane sur les lames de dissection rend la propagation des chromosomes très difficile. Il est important d’utiliser plus de l’ovaire (la moitié à une paire complète d’ovaires) lors de la fabrication de ces lames, pour fournir une plus grande chance de trouver un noyau bien répandu. Il est également recommandé d’utiliser des tissus frais lors de la fabrication de lames, car les taux d’amplification semblent baisser à mesure que les tissus vieillissent de 49 ans et que la propagation des chromosomes devient plus difficile. La préparation des lames pour la microdissection est l’étape la plus longue de ce protocole. Les chromosomes doivent être bien répartis pour éviter l’acquisition accidentelle de matériel indésirable. La coloration Giemsa permet à l’utilisateur de vérifier la qualité de propagation avec un microscope à contraste de phase avant d’utiliser le système de microdissection.
La combinaison de la microdissection et de l’amplification offre la possibilité d’extraire et d’analyser des fragments chromosomiques allant de petites régions d’intérêt à une majorité des bras. Ce protocole permet à l’utilisateur d’obtenir de l’ADN à partir de régions morphologiquement distinctes telles que les inversions, les bandes euchromatiques spécifiques et les bandes interbandes, l’hétérochromatine télomérique, centromère et intercalaire. L’utilisateur peut appliquer les sondes de peinture générées à l’examen des chromosomes aberrants, à l’étude de l’homologie inter-espèces à des loci particuliers ou à la caractérisation de l’organisation spatiale des chromosomes dans un noyau 3D intact. Pour développer des peintures chromosomiques, nous avons sélectionné des segments euchromatiques afin d’éviter l’hybridation de l’ADN répétitif avec de multiples régions chromosomiques. En conséquence, nous avons obtenu une peinture spécifique au bras sans utiliser de concurrent, comme l’ADN génomique total ou la fraction d’ADN C0t-1.
Nous avons choisi d’utiliser les kits GenomePlex WGA et REPLI-G sur la base d’examens qui comparaient l’efficacité et le taux d’abandon de plusieurs kits d’amplification 40,44. Les deux kits ont obtenu les meilleurs résultats parmi les méthodes disponibles en termes de taux d’abandon (GenomePlex avait un taux de 12,5% par rapport à 37,5% pour REPLI-g). et le pourcentage de marqueurs amplifiés (GenomePlex avait un taux d’amplification de 45,24 % contre 30,0 % pour REPLI-g) 40. Le kit GenomePlex a également fourni une plus grande quantité d’ADN, ce qui en a fait un meilleur candidat pour de multiples techniques en aval. Un kit de ré-amplification pour le système GenomePlex est également disponible, permettant une amplification supplémentaire de l’ADN. Cependant, il est important de noter que l’amplification n’est pas parfaite. La possibilité reste qu’une amplification réussie puisse introduire des erreurs ou avoir un biais vers des loci spécifiques dans l’ADN cible. Il est important de tenir compte de la taille finale des fragments des méthodes d’amplification du génome disponibles. La fragmentation de GenomePlex donne une bibliothèque avec des fragments allant de 200 à 500 pb, tandis que le kit REPLI-g produit des fragments d’une taille d’environ 10 à 20 kb. L’application en aval prévue de ce protocole est FISH, ce qui rend le kit GenomePlex une option plus réalisable, car il a fourni la taille de fragment souhaitée et la capacité d’étiqueter les fragments d’ADN directement via WGA. Les molécules d’ADN longues produites par l’amplification DE REPLI-g doivent être fragmentées dans la réaction de étiquetage de nick-translation en aval.
Ce protocole a été adapté pour amplifier avec succès l’ADN d’un seul bras chromosomique polytène. D’autres protocoles nécessitent la mise en commun de nombreux fragments chromosomiques (typiquement 10-30) afin d’amplifier avec succès l’échantillon 7,11,28,40. Bien que la mise en commun de plusieurs chromosomes soit possible à l’aide de notre méthode, la probabilité accrue de contamination de l’échantillon souligne l’importance de commencer l’expérience avec le moins de chromosomes possible. Si les chromosomes polytènes ne sont pas disponibles, notre protocole pourrait être adapté pour une utilisation dans les chromosomes mitotiques. Il peut être nécessaire, cependant, de mettre en commun 10-15 chromosomes mitotiques avant l’amplification pour le poisson réussi 11. Le biais d’amplification est plus faible avec des quantités élevées d’ADN de modèle de départ 50. Les chromosomes polytènes fournissent environ 512 copies d’une seule séquence d’ADN et 1024 copies de deux séquences d’ADN homologues. Ainsi, la mise en commun des chromosomes mitotiques aidera à augmenter la qualité globale du produit de l’ADN après amplification.
Cette procédure a beaucoup d’utilisations potentielles dans des études cytogénétiques et genomic. Ici, nous avons utilisé des peintures chromosomiques pour établir la correspondance entre les segments euchromatiques de polytène et les bras chromosomiques mitotiques chez An. gambiae. Les mêmes sondes de peinture peuvent être appliquées à la caractérisation cytogénétique des variétés de cellule d’An. gambiae. Les réarrangements génomiques étendus et les changements dans le nombre de chromosomes sont des caractéristiques communes des lignées cellulaires 51,52. L’aneuploïdie, la polyploïdie et les réarrangements chromosomiques tels que les translocations, les inversions, les délétions et les chromosomes de l’anneau ont été détectés dans différentes lignées cellulaires de moustiques 53,54. Les observations cytogénétiques classiques 55 et la cartographie physique 56 ont démontré la survenue de translocations chromosomiques à bras entier dans l’évolution des moustiques du paludisme. Par conséquent, le matériel microdisséqué peut être utilisé en conjonction avec des expériences FISH pour comparer l’homologie des régions chromosomiques entre les espèces. Nous avons avec succès exécuté le poisson 3D avec la sonde de 2R-peinture sur des chromosomes de polytène en cellules ovariennes entières d’infirmière de montage. Cette méthode facilitera le traçage des trajectoires chromosomiques et l’étude de l’architecture nucléaire dans les Anophèles. Des techniques telles que le génotypage de l’ADN 57,58,le séquençage du génome de nouvelle génération 26,27,le développement de cartes physiques et de liaison et la génération de sondes pour la peinture chromosomique 33,59 peuvent toutes bénéficier d’une microdissection spécifique au bras et à la région. En combinant la technologie LCM et en faisant progresser le WGA unicellulaire, nous démontrons une méthode efficace et pratique pour produire des quantités raisonnables d’ADN à partir d’un seul bras chromosomique polytène.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Ce travail a été soutenu par la subvention des National Institutes of Health 1R21AI094289 à Igor V. Sharakhov
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Acide acétique | Fisher Scientific | A491-212 | |
| Méthanol | Fisher Scientific | A412-4 | |
| Acide propionique ; | Sigma-Aldrich | 402907 | |
| Lames à membrane 1.0 PET | Zeiss | 415190-9051-000 | |
| Comprimés tampons " GURR" | Life Technologies | 10582-013 | |
| KaryoMAX Giemsa Stain | Life Technologies | 10092-013 | |
| Système de dénaturation/hybridation de lames ThermoBrite | Abbott Molecular | 30-144110 | |
| Concentrateur sous vide Vacufuge | Eppendorf | 22820001 | |
| Spectroline Réticulant UV contrôlé par microprocesseur XL-1000 | Fisher Scientific | 11-992-89 | |
| Thermo Scientific NanoDrop | Fisher Scientific | ND-2000 | |
| REPLI-g Kit unicellulaire | Qiagen | 150343 | |
| GenomePlex Single Cell Kit (WGA4) | Sigma-Aldrich | WGA4-10RXN | |
| GenomePlex WGA Reamplification Kit (WGA3) | Sigma-Aldrich | WGA3-50RXN | |
| MZ6 Leica stéréomicroscope | Leica | VA-OM-E194-354 | Un autre stéréomicroscope peut être utilisé |
| Olympus CX41 Microscope de phase | Olympus | CX41RF-5 | Un microscope de phase différent peut être utilisé |
| PALM MicroBeam Microscope de microdissection laser | Zeiss | ||
| Thermomixer | Eppendorf | 22670000 | |
| 10x PBS | Invitrogen | P5493 | |
| 50x Denhardt& rsquo ; s solution | Sigma-Aldrich | D2532 | |
| 99 % Formamide | Fisher | Scientific BP227500 | |
| Dextran sulfate sel de sodium | Sigma | D8906 | |
| 20x tampon SSC | Invitrogen | AM9765 | |
| ProLong Gold réactif anti-décoloration avec DAPI | Invitrogen | P-36931 | |
| dATP, dCTP, dGTP, dTTP | Fermentas | R0141, R0151, R0161, R0171 | |
| Cy3-dUTP, Cy5-dUTP | GE Healthcare | PA53022, PA55022 | |
| BSA | Sigma-Aldrich | A3294 | |
| ADN polymérase I | Fermentas | EP0041 | |
| DNase I | Fermentas | EN0521 | |
| Spermine | Sigma-Aldrich | S3256-1G | |
| Spermidine | Sigma-Aldrich | S0266-1G | |
| Chlorure de potassium (KCl) | Fisher Scientific | BP366-500 | |
| Chlorure de sodium (NaCl) | Fisher Scientific | BP3581 | |
| EGTA | Sigma-Aldrich | E0396-25G | |
| PIPES | Sigma-Aldrich | P6757-25G | |
| EDTA | Fisher Scientific | S311-500 | |
| Digitonin | Sigma-Aldrich | D141-100MG | |
| Triton-X100 | Fisher Scientific | BP151-100 | |
| AdhesiveCap 500 clear | Zeiss | 415190-9211-000 | |
| QIAamp DNA Micro Kit (50) | Qiagen | 56304 | |
| Kit de nettoyage et de concentration d’ADN génomique | Zymo Research | D4010 | |
| 37 % paraformaldéhyde | Fisher Scientific | F79-500 |
Références
- Ried, T., Schrock, E., Ning, Y., Wienberg, J. Chromosome painting: a useful art. Human molecular genetics 7. , 1619-1626 (1998).
- Yang, F., et al. Reciprocal chromosome painting illuminates the history of genome evolution of the domestic cat, dog and human. Chromosome Res. 8, 393-404 (2000).
- Badenhorst, D., Dobigny, G., Robinson, T. J. Karyotypic evolution of hapalomys inferred from chromosome painting: a detailed characterization contributing new insights into the ancestral murinae karyotype. Cytogenet Genome Res 136. , 83-88 (2012).
- Trifonov, V. A., et al. Chromosomal evolution in Gekkonidae. I. Chromosome painting between Gekko and Hemidactylus species reveals phylogenetic relationships within the group. Chromosome Res. 19, 843-855 (2011).
- Nie, W., et al. Chromosomal rearrangements and karyotype evolution in carnivores revealed by chromosome painting. Heredity (Edinb. , 108-1017 (2012).
- Guan, X. Y., et al. Detection of chromosome 6 abnormalities in melanoma cell lines by chromosome arm painting probes). Cancer Genet Cytogenet. 107, 89-92 (1998).
- Guan, X. Y., et al. Characterization of a complex chromosome rearrangement involving 6q in a melanoma cell line by chromosome microdissection. Cancer genetics and cytogenetics 134. , 65-70 (2002).
- Breen, M., et al. Detection of equine X chromosome abnormalities in equids using a horse X whole chromosome paint probe (WCPP). Vet J. 153, 235-238 (1997).
- Kokhanenko, A. A., Anan'ina, T. V., Stegniy, V. N. The changes in chromosome 6 spatial organization during chromatin polytenization in the Calliphora erythrocephala Mg. (Diptera: Calliphoridae) nurse cells. Protoplasma 250. , 141-149 (2013).
- Timme, S., et al. Nuclear position and shape deformation of chromosome 8 territories in pancreatic ductal adenocarcinoma. Anal Cell Pathol (Amst. 34, 21-33 (2011).
- Drosopoulou, E., et al. Sex chromosomes and associated rDNA form a heterochromatic network in the polytene nuclei of Bactrocera oleae (Diptera: Tephritidae). Genetica. 140, 169-180 (2012).
- Pazian, M. F., Shimabukuro-Dias, C. K., Pansonato-Alves, J. C., Oliveira, C., Foresti, F. Chromosome painting of Z and W sex chromosomes in Characidium (Characiformes). Crenuchidae). Genetica. 141, 1-9 (2013).
- Howe, E. S., Murphy, S. P., Bass, H. W. Three-dimensional acrylamide fluorescence in situ hybridization for plant cells. Methods Mol Biol 990. , 53-66 (2013).
- Lysak, M. A., Mandakova, T. Analysis of plant meiotic chromosomes by chromosome painting. Methods Mol Biol 990. , 13-24 (2013).
- Ji, Z., Zhang, L. Chromosomics: detection of numerical and structural alterations in all 24 human chromosomes simultaneously using a novel OctoChrome FISH assay. J Vis Exp. 10, (2012).
- Idziak, D., et al. Painting the chromosomes of Brachypodium: current status and future prospects. Chromosoma. 120, 469-479 (2011).
- Fuchs, J., Kuhfittig, S., Reuter, G., Schubert, I. Chromosome painting in Drosophila. Chromosome Res. 6, 335-336 (1998).
- Zhimulev, I. F. Morphology and structure of polytene chromosomes. 34, Academic Press. 1-490 (1996).
- Sharakhov, I. V., Sharakhova, M. V. in Chromosome Mapping Research Developments eds. J.F. Verrity & L.E. Abbington) (Nova Science. , Publishers, Inc. (2008).
- Coluzzi, M., Sabatini, A., Torre, della, Di Deco, A., A, M., Petrarca, V. A polytene chromosome analysis of the Anopheles gambiae species complex). Science. 298, 1415-1418 (2002).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malaria mosquitoes. Genetika. 23, 821-827 (1987).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malarial mosquitoes. II. Species specificity in the pattern of chromosome relations with the nuclear envelope of nutrient ovarian cells. Genetika. 23, 1194-1199 (1987).
- Bonaccorsi, S., Santini, G., Gatti, M., Pimpinelli, S., Colluzzi, M. Intraspecific polymorphism of sex chromosome heterochromatin in two species of the Anopheles gambiae complex. Chromosoma. 76, 57-64 (1980).
- Zhimulev, I. F. Polytene chromosomes, heterochromatin, and position effect variegation. Adv Genet. 37, 1-566 (1998).
- Seifertova, E., et al. Efficient high-throughput sequencing of a laser microdissected chromosome arm. BMC Genomics. 14, 1471-2164 (2013).
- Weise, A., et al. High-throughput sequencing of microdissected chromosomal regions. European journal of human genetics. EJHG. 18, 457-462 (2010).
- Murphy, S. J., et al. Mate pair sequencing of whole-genome-amplified DNA following laser capture microdissection of prostate cancer. DNA research : an international journal for rapid publication of reports on genes and genomes 19. , 395-406 (2012).
- Moshkin, Y. M., et al. Microdissection and sequence analysis of pericentric heterochromatin from the Drosophila melanogastermutant Suppressor of Underreplication. Chromosoma. 111, 114-125 (2002).
- Decarlo, K., Emley, A., Dadzie, O. E., Laser Mahalingam, M. capture microdissection: methods and applications. Methods Mol Biol 755. , 1-15 (2011).
- Iyer, E. P., Cox, D. N. Laser capture microdissection of Drosophila peripheral neurons. J Vis Exp. 10, (2010).
- Kubickova, S., Cernohorska, H., Musilova, P., Rubes, J. The use of laser microdissection for the preparation of chromosome-specific painting probes in farm animals. Chromosome Res. 10, 571-577 (2002).
- Fukova, I., et al. Probing the W chromosome of the codling moth, Cydia pomonella, with sequences from microdissected sex chromatin. Chromosoma. 116, 135-145 (2007).
- Thalhammer, S., Langer, S., Speicher, M. R., Heckl, W. M., Geigl, J. B. Generation of chromosome painting probes from single chromosomes by laser microdissection and linker-adaptor PCR. Chromosome Res. 12, 337-343 (2004).
- Sims, C. E., Allbritton, N. L. Analysis of single mammalian cells on-chip. Lab on a chip 7. , 423-440 (2007).
- Hutchison, C. A., 3rd,, Venter, J. C. Single-cell genomics. Nature biotechnology. 24, 657-658 (2006).
- Lasken, R. S., Egholm, M. Whole genome amplification: abundant supplies of DNA from precious samples or clinical specimens. Trends in biotechnology 21. , 531-535 (1016).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in the grasshopper Eyprepocnemis plorans. Cytogenet Genome Res. 125, 286-291 (2009).
- Liu, J. D., et al. Sex chromosomes in the spiny eel (Mastacembelus aculeatus) revealed by mitotic and meiotic analysis. Cytogenet Genome Res. 98, 291-297 (2002).
- Harvey, S. C., et al. Molecular-cytogenetic analysis reveals sequence differences between the sex chromosomes of Oreochromis niloticus: evidence for an early stage of sex-chromosome differentiation. Cytogenet Genome Res. 97, 76-80 (2002).
- Hockner, M., Erdel, M., Spreiz, A., Utermann, G., Kotzot, D. Whole genome amplification from microdissected chromosomes. Cytogenet Genome Res. 125, 98-102 (2009).
- Kitada, K., Taima, A., Ogasawara, K., Metsugi, S., Aikawa, S. Chromosome-specific segmentation revealed by structural analysis of individually isolated chromosomes. Genes Chromosomes Cancer. 50, 217-227 (2011).
- Ma, L., et al. Direct determination of molecular haplotypes by chromosome microdissection. Nature methods. 7, 299-301 (2010).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in Locusta migratoria. Chromosome Res. 17, 11-18 (2009).
- Treff, N. R., Su, J., Tao, X., Northrop, L. E., Scott, R. T. Single-cell whole-genome amplification technique impacts the accuracy of SNP microarray-based genotyping and copy number analyses. Molecular human reproduction 17. , 335-343 (2011).
- Rutten, K. B., et al. Chromosomal anchoring of linkage groups and identification of wing size QTL using markers and FISH probes derived from microdissected chromosomes. in Nasonia(Pteromalidae : Hymenoptera). Cytogenetic and Genome Research 105. , 126-133 (2004).
- Post, R. J., Kruger, A., Somiari, S. B. Laser-assisted microdissection of polytene chromosomes from Diptera for the development of molecular markers. Molecular Ecology Notes. 6, 634-637 (2006).
- George, P., Sharakhova, M. V., Sharakhov, I. V. High-throughput physical mapping of chromosomes using automated in situ hybridization. Journal of visualized experiments : JoVE. 10, (2012).
- Timoshevskiy, V. A., Sharma, A., Sharakhov, I. V., Sharakhova, M. V. Fluorescent in situ Hybridization on Mitotic Chromosomes of Mosquitoes. J Vis Exp. 10, (2012).
- Frumkin, D., et al. Amplification of multiple genomic loci from single cells isolated by laser micro-dissection of tissues. BMC biotechnology. 8, 10-1186 (2008).
- Raghunathan, A., et al. Genomic DNA amplification from a single bacterium. Applied and environmental microbiology 71. , 3342-3347 (2005).
- Cassio, D. Long term culture of MDCK strains alters chromosome content. BMC Res Notes. 6, 162-1610 (2013).
- Landry, J. J., et al. The Genomic and Transcriptomic Landscape of a HeLa Cell Line. G3. , Bethesda. (1534).
- Steiniger, G. E., Mukherjee, A. B. Insect chromosome banding: technique for G- and Q-banding pattern in the mosquito Aedes albopictus. Can J Genet Cytol. 17, 241-244 (1975).
- Brown, S. E., et al. Toward a physical map of Aedes aegypti. Insect Mol Biol. 4, 161-167 (1995).
- Green, C., Hunt, R. Interpretation of variation in ovarian polytene chromosomes of Anopheles funestus Giles. A. parensis Gillies, and A. aruni? Genetica. 51, 187-195 (1980).
- Sharakhova, M. V., Xia, A., Leman, S. C., Sharakhov, I. V. Arm-specific dynamics of chromosome evolution in malaria mosquitoes. BMC evolutionary biology. 11, 10-1186 (2011).
- Gu, L. H., et al. DNA genotyping of oral epithelial cells by laser capture microdissection]. Fa yi xue za zhi 22. , 196-197 (2006).
- Rook, M. S., Delach, S. M., Deyneko, G., Worlock, A., Wolfe, J. L. Whole genome amplification of DNA from laser capture-microdissected tissue for high-throughput single nucleotide polymorphism and short tandem repeat genotyping. The American journal of pathology 164. , 23-33 (2004).
- Houen, A., Field, B. L., Saunders, V. A. Microdissection and chromosome painting of plant B chromosomes. Methods in cell science : an official journal of the Society for In. Vitro Biology. 23, 115-124 (2001).
Réimpressions et autorisations
