Toute une analyse de biorapporteur cellulaire avec Burkholderia sartisoli RP037-MCHE a été développé pour détecter fractions d'un contaminant organique (par exemple, le fluorène) disponible pour la dégradation bactérienne après le transport actif par mycéliums de pontage des pores remplis d'air dans un système de modèle insaturé de l'eau.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Une approche Cell biorapporteur entières pour évaluer transport et la biodisponibilité des contaminants organiques dans les systèmes insaturés eau
Dans cet article
Résumé
Résumé
La biodisponibilité des contaminants est une condition préalable à leur biodégradation efficace dans le sol. Toutefois, la concentration apparente moyenne d’un contaminant n’est pas une mesure appropriée de sa disponibilité ; La biodisponibilité dépend plutôt de l’interaction dynamique du transfert de masse potentiel (flux) d’un composé vers une cellule microbienne et de la capacité de cette dernière à dégrader le composé. Dans les parties du sol insaturées d’eau, il a été démontré que le mycélium surmonte les limites de biodisponibilité en transportant et en mobilisant activement les composés organiques sur une gamme de centimètres. Alors que l’étendue du transport basé sur le mycélium peut être facilement quantifiée par des moyens chimiques, la vérification de la biodisponibilité des contaminants pour les cellules bactériennes nécessite une méthode biologique. Pour remédier à cette contrainte, nous avons choisi le fluorène HAP (FLU) comme composé modèle et développé un microcosme modèle insaturé d’eau reliant une source ponctuelle de FLU séparée dans l’espace et la bactérie biorapporteuse dégradant le FLU Burkholderia sartisoli RP037-mChe par un réseau mycélien de Pythium ultimum. Étant donné que le biorapporteur exprime l’eGFP en réponse au flux de HAP vers la cellule, l’exposition et la dégradation bactériennes de la grippe ont pu être surveillées directement dans les microcosmes par microscopie confocale à balayage laser (CLSM). L’analyse CLSM et l’analyse d’images ont révélé une augmentation significative de l’expression de l’eGFP en présence de P. ultimum par rapport aux témoins sans mycélium ni grippe, indiquant ainsi la biodisponibilité de la grippe pour les bactéries après le transport médié par le mycélium. Les résultats du CLSM ont été confirmés par des analyses chimiques dans des microcosmes identiques. Le microcosme développé s’est avéré approprié pour étudier la biodisponibilité des contaminants et pour visualiser simultanément les interactions bactéries-mycéliums impliquées.
Introduction
Le sol est densément peuplé par une large gamme de micro-organismes tels que les bactéries 1,2. Cependant, les conditions dans cet habitat sont difficiles, notamment en termes de disponibilité de l'eau 3. Les bactéries ont besoin en permanence à la recherche de conditions optimales dans des environnements hétérogènes quatre, mais l'absence de films d'eau continues se traduit par une mobilité restreinte 5 les empêchant de se propager librement. En outre, les taux de diffusion de solutés (par exemple, les éléments nutritifs) sont abaissés dans des conditions insaturés 6. Ainsi, les bactéries et les nutriments sont souvent physiquement séparés et l'accessibilité des éléments nutritifs est limitée 3. Par conséquent, un vecteur de transport pour des composés chimiques qui ne nécessite pas une phase aqueuse continue peut aider à surmonter ces limitations. En fait, de nombreux micro-organismes tels que les champignons et oomycètes ont développé une forme de croissance filamenteuse leur permettant de se développer à travers les pores remplis d'air et atteindre ainsi mobilizing aussi physique nutriments 7 et 8 substances carbonées séparé sur de longues distances. Ils peuvent même agir comme des vecteurs de transport biologiques qui fournissent des sucres et d'autres sources d'énergie à 9 bactéries. Absorption et le transport dans les organismes de mycélium a également été montré pour les polluants organiques hydrophobes tels que les hydrocarbures aromatiques polycycliques (HAP) dans Pythium ultimum 10 ou à 11 champignons mycorhiziens. Depuis HAP sont des contaminants solubles dans l'eau omniprésents et mal 12 dans le sol, le transport de mycélium médiation pourrait aider à augmenter la biodisponibilité des contaminants bactériens pour dégradeurs potentiels. Considérant que le montant total de transport de contaminants peut être quantifiée directement par des moyens chimiques 10, la biodisponibilité des contaminants transportés par mycélium bactéries dégradant et d'autres organismes ne peut être évaluée facilement.
Le protocole suivant présente une méthode pour évaluer l'impact de mycelia sur la biodisponibilité des contaminants bactériens à dégradeurs d'une manière directe; il permet la collecte d'informations sur l'impact spatio-temporelle des contaminants sur les écosystèmes microbiens. Nous décrivons comment mettre en place un système de microcosme insaturé élaborée imitant interfaces air-eau dans le sol en reliant une source ponctuelle de HAP séparés physiquement avec biorapporteur bactéries HAP dégradants par des vecteurs de transport mycéliens. Parce que le transport aérien est exclu, l'effet du transport mycélium basée sur les HAP biodisponibilité pour les bactéries peut être étudié de manière isolée. Dans le détail, le RP037-MCHE de trois anneaux HAP fluorène, l'organisme mycélium Pythium ultimum et de la bactérie Burkholderia biorapporteur 13 ont été appliquées dans les configurations décrites microcosme. La bactérie B. sartisoli RP037-MCHE a été construit pour étudier phénanthrène flux à la cellule 14 et exprime améliorées protéine fluorescente verte (eGFP) à la suite de la HAP aux fluxla cellule, alors que la fluorescence rouge mCherry est exprimé de façon constitutive. Des informations détaillées sur la construction rapporteur est donnée par Tecon et al. 13 Dans les tests préliminaires, la bactérie n'a pas révélé de natation et seulement la capacité d'essaimage très lent. Il a été en mesure de migrer lentement hyphes de Pythium ultimum lorsqu'il est appliqué comme une suspension dense sur le dessus des hyphes. Comme les bactéries ont été intégrés dans l'agarose dans le protocole suivant, la migration sur les hyphes n'a pas eu lieu.
En utilisant la microscopie confocale à balayage laser (CLSM), les bactéries biorapporteur peuvent être visualisées directement dans les microcosmes et l'expression de eGFP peut être quantifiée par rapport à la quantité de cellules (proportionnelle au signal mCherry) à l'aide de la ImageJ logiciel. Ce permet de comparer la biodisponibilité qualitativement différents scénarios (ce est à dire, supérieur ou inférieur). FLU est révélée être biodisponible après le transport du mycélium de P. ultimum (ie, ilétait plus élevé que dans un contrôle négatif). En outre, le protocole décrit comment quantifier la quantité totale de transport de mycélium à médiation par des moyens chimiques et de vérifier la biodisponibilité des contaminants en utilisant des fibres de verre revêtu de silicium (fibres SPME) dans des microcosmes identiques. Résultats en utilisant cette configuration microcosme ont été publiés et discuté pour la combinaison de P. ultimum, le fluorène et B. sartisoli RP037-MCHE 15. Ici, l'accent est mis sur une description détaillée de la méthode et l'identification des pièges potentiels du protocole de fournir cette connaissance pour d'autres applications potentielles. D'autres applications peuvent impliquer différents fongique, espèces bactériennes (par exemple, provenant de sites contaminés), et d'autres contaminants (par exemple, les pesticides) ou d'un contaminant d'alimentation (par exemple, les sols âgés).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1. Préparation de plats, des diapositives et incubation Chambers
- Préparer le matériel suivant pour chaque microcosme: une grande boîte de Petri en plastique inférieure (d = 10 cm), une modification (voir l'étape 1.2) petite boîte de Petri en plastique inférieure (d = 5 cm) avec des couvercles et une chambre de comptage diapositive avec trois cavités.
- Prenez le nombre désiré de Petri parties inférieures plat (d = 5 cm). Enlever une partie du bord avec une scie pour se adapter exactement une diapositive (26 mm de longueur d'arête). Pour stériliser le système, faire tremper Petri fond plat et les couvercles dans 70% d'éthanol O / N et les sécher pendant au moins 2 heures dans une hotte à flux sous lumière UV. Rangez les boîtes de Pétri dans un récipient en plastique hermétiquement fermés, qui avait également été exposés à la lumière UV pendant 2 h.
- Essuyez le nombre désiré de diapositives avec 70% d'éthanol et de les sécher à l'air. Enveloppez les lames dans du papier d'aluminium et les mettre dans un four à moufle pendant 5 heures à 450 ° C pour éliminer d'éventuelles contaminations.
- Préparer chambres d'incubation de verre munis de couvercles. Nettoyez-les avec 70% d'éthanol et d'exposer chambres ouvertes à la lumière UV pendant au moins deux heures dans une hotte à flux.
NOTE: Pour les dessiccateurs (diamètre d'environ 30 cm) avec des couvercles peut être utilisé à cet effet; chaque dessiccateur peut accueillir jusqu'à dix configurations de microcosme.
2. Préparation des milieux et cultures
- Pour exécuter 20 microcosmes parallèles, obtenir 100 ml de milieu tryptone-levure modifiée (MTY) 14, environ 150 ml de 21C milieu minimal 16 (MM), 5 ml de milieu agar minimal (MMA; 0,5%, p / v), trois des plaques de gélose de dextrose de pomme de terre (PDA; 1,5%, p / v) pour P. ultimum, quatre plaques vierges, une plaque de PDA contenant 2 mg L -1 cycloheximide, quatre plaques d'agarose (3%, poids / volume) contenant 0,3 g ml -1 charbon actif et 40 mg de la grippe en deux parties mg.
- Préparez MTY contenant 50 mg L -1 de kanamycine (kanamycine est required pour maintenir la eGFP plasmide rapporteur) et MM contenant de l'acétate 10 mM pour la culture bactérienne. Utilisez MM sans l'acétate de préparer 0,5% de MMA pour l'immobilisation des bactéries dans les microcosmes et versez plaques (chacune 20 ml) de 1,5% PDA pour la culture de Pythium ultimum et le microcosme configurations.
- Inoculer un certain hyphes de P. ultimum sur trois plaques de PDA frais et incuber dans l'obscurité à 25 ° C pendant environ 72 heures. Puis assurer que les plaques sont envahies par mycélium complètement fraîche et mousseuse.
- Lancer deux cultures de B. sartisoli RP037-MCHE dans 50 ml de MTY à partir d'un stock de glycérol. Incuber à 30 ° C avec 230 rpm mouvement rotatif ballon O / N.
- culture de mesurer la densité optique (DO) à 578 nm et centrifuger à 1000 g pendant 10 min (pour RP037-MCHE B., l'OD prévu 578 est d'environ 1,0 et les cellules sont en phase exponentielle). Rejeter le surnageant et remettre en suspension les cellulesdans une quantité appropriée de MM pour atteindre une DO 578 de 0,4. Inoculer 20 ml de MM contenant 50 mg L -1 kanamycine avec 400 pi des cellules remises en suspension. Incuber à 30 ° C avec 230 rpm mouvement rotatif ballon O / N.
- Mesurer OD 578 de la culture MM (pour RP037-MCHE B., l'OD prévu 578 est d'environ 0,2 et les cellules sont en phase exponentielle précoce). culture Centrifuger à 2000 xg pendant 10 min et remettre en suspension les cellules dans une quantité appropriée de MM pour atteindre une DO de 0,4. Mélanger 50 ul de la suspension cellulaire avec 500 pi de chaud, MMA liquide dans tubes de 2 ml et conserver à 50 ° C jusqu'à l'utilisation. Utilisez 150 pi de cellules dans le MMA pour chaque microcosme.
- Pour des plaques de gel d'agarose contenant du charbon actif. Faire fondre agarose (3%; p / v) dans de l'eau distillée deux fois. Mélanger soigneusement avec du charbon actif (0,3 g ml -1) et versez le mélange dans des boîtes de Petri en plastique(D = 10 cm).
3. Microcosm montage
NOTE:. La configuration complète de microcosme est représenté schématiquement à la figure 1 Se il vous plaît se référer à la figure 1 pour toutes les mesures individuelles suivantes. Les étapes suivantes décrivent la préparation d'un échantillon (SAM) avec des vecteurs de transport mycéliens et trois configurations de contrôle différents (CON AIR, CON NEG, CON POS). Un résumé de toutes les différentes configurations peut être trouvé dans le tableau 1.
- Prenez nombre désiré de boîtes de Pétri et les diapositives et de les exposer à la lumière UV sous une hotte à flux pendant 30 min.
- Placez la petite boîte de Petri à l'intérieur du grand et ajuster la diapositive à travers la fente de la petite boîte de Petri. Prélever un échantillon de la suspension cellulaire chaud en MMA et ajouter 150 ul dans la cavité milieu d'une diapositive. Répétez cette étape jusqu'à ce que les cavités moyennes de toutes les diapositives sontrempli de MMA. Attendez 5 min pour le MMA se solidifier.
- Utilisez un perce-bouchon de 1 cm à punch out taches circulaires d'une plaque de PDA vide. Placer une pièce à une distance de 2 mm à côté de l'intérieur du MMA petite boîte de Petri. Ajouter ce pour favoriser la croissance du mycélium dans la configuration (PDA 3 sur la figure 1).
- Couper les correctifs de PDA courbes que des barrières mécaniques. Utilisez une partie inférieure petite boîte de Petri propre et stérile et l'enfoncer dans une plaque de PDA. Utilisez une spatule pour couper un autre petit anneau à une distance de 0,5 cm dans la gélose qui se traduit par un PDA-anneau.
- Découpez un morceau, ce qui correspond exactement à l'écart de la petite boîte de Petri dans la configuration du microcosme et le placer dans l'espace au-dessus de la diapositive. Se assurer que la distance entre le MMA et le pare-PDA circulaire est d'environ 2 mm. Fermez le couvercle de la petite boîte de Petri appuyant doucement dans la barrière de PDA.
- Répéter les étapes 3.4 et 3.4.1 avec une plaque de PDA contenant 2 g L -1de cycloheximide.
NOTE: Ce est la configuration de contrôle pour le transport aérien (CON AIR) vers les cellules de biorapporteur, depuis mycélium sont inhibés par le cycloheximide et ne envahissent pas MMA.
- Utilisez un perce-bouchon de 1 cm à punch out taches circulaires d'une plaque de PDA vide. Utilisez un autre perce-bouchon de 0,5 cm pour découper le milieu du premier patch. Placez le petit PDA torique résultant à une distance de 1 mm à côté de la barrière de PDA (assistant personnel 1 sur la figure 1).
- Ajouter 2 mg de la grippe dans le trou du PDA 1. Utilisez un 1 cm perce-bouchon à découper taches circulaires de plaques de PDA envahis par P. ultimum et placez un patch (PDA 2 de la figure 1) en bas vers le bas sur l'anneau de PDA afin que le mycélium est confrontée à des cristaux de grippe.
- Répétez l'étape précédente sans ajouter cristaux de grippe.
NOTE: Ce est la configuration de contrôle négatif (CON NEG) pour déterminer fondfluorescence des cellules biorapporteur.
- Répétez l'étape précédente sans ajouter cristaux de grippe.
- Utilisez un perce-bouchon de 1 cm à punch out taches circulaires de l'agar contenant du charbon actif. Placez quatre correctifs dans chaque configuration de microcosme pour diminuer encore la concentration de GRIPPE gazeux (Figure 1).
- Préparer un contrôle positif (CON POS). Ajoutez quelques cristaux de Grippe À 200 pi de MMA suspension cellulaire et le mettre dans une cavité d'un diaporama vide.
- Placer une boîte de Petri (d = 10 cm) avec de la poudre de charbon actif sur le fond de la chambre d'incubation pour réduire au minimum la concentration de FLU gazeux dans la chambre. Aussi, placer quatre à cinq 50 ml béchers avec de l'eau stérile sur le fond de maintenir une forte humidité dans la chambre.
- Transfert configurations de microcosme dans les chambres d'incubation et incuber à 25 ° C pendant 96 heures. Placer les échantillons au hasard dans les différentes chambres de croissance pour excluent les effets de localisation.
NOTE: Ce ap temps d'incubationnappes à l'P. oomycète ultimum. Il pourrait être différente pour d'autres organismes.
- Transfert configurations de microcosme dans les chambres d'incubation et incuber à 25 ° C pendant 96 heures. Placer les échantillons au hasard dans les différentes chambres de croissance pour excluent les effets de localisation.
4. confocale à balayage laser
- Idéalement utiliser une configuration CLSM avec microscope droit.
NOTE: Il peut être équipé avec des lasers conventionnels offrant par exemple, 488, 561 et 633 lignes nm pour l'excitation ou avec une source laser accordable blanc. - Utilisez les paramètres suivants pour la collecte d'images: Excitation: 490 nm (eGFP) et 585 nm (mCherry) à l'intensité du laser approprié (excitation simultanée); fourchettes d'émissions: de 500 à 550 nm (eGFP) et de 605 à 650 nm (mCherry); objectif: 63X NA 0,9 immergé de l'eau (en raison de sa longue distance de travail); taille de pas pour Z-piles: 0,5 um.
- Configuration microcosme Ouvrir et utiliser un scalpel pour enlever PDA 1, 2, 3 et la barrière PDA. Mettez une lamelle de verre sur le dessus de la MMA et appuyez doucement pour éliminer les bulles d'air. Mont diaporama sur scène de microscope. Ajouter une goutte d'eau sur le dessus de ee lamelle et utiliser les paramètres mCherry pour trouver cellules biorapporteur dans l'échantillon.
- Obtenez un aperçu rapide de l'échantillon et d'optimiser le rapport signal sur bruit en utilisant un canal lueur-dessus-dessous table de consultation pour le rouge (mCherry) et vert (eGFP). Choisissez une position aléatoire sur l'échantillon à analyser fluorescence biorapporteur.
REMARQUE: hyphes peut montrer autofluorescence dans la gamme des émissions de biorapporteur (par exemple, auto-fluorescence verte) 17. Ne oubliez pas de sélectionner des zones sans hyphes si ce est le cas. - Définir et enregistrer z-piles pour chaque position dans le vert (eGFP) et le (mCherry) canal de rouge. Évitez blanchiment de l'échantillon par une longue exposition à la lumière de épifluorescence ou la lumière laser.
- Répétez étape précédente pendant dix positions hasard, également répartie.
- Répétez toutes les étapes en utilisant les mêmes paramètres pour tous les échantillons de la piste d'essai (SAM), CON AIR, CON NEG et CON POS.
Analyse 5. Image
REMARQUE: Pour analyser rouge (mCherry) et vert (eGFP) fluorescence dans les z-piles enregistrées, entre autres options la ImageJ du logiciel libre 18 (http://rsb.info.nih.gov/ij/download.html) peut être utilisé.
- Veillez à installer le plugin logi_tool (http://downloads.openmicroscopy.org/bio-formats/4.4.10/).
- Ouvrir le fichier dans ImageJ. Sélectionnez «canaux split" et canal vert à proximité. Utilisez la «zone mCherry 'macro fourni sous forme de fichier de code supplémentaire pour quantifier domaine de la fluorescence rouge en z-stack. Réglez les paramètres préférés dans la macro (indiquées en gras).
- La sortie est un tableau avec les pixels mesurées dessus du seuil (et au-dessus de la taille minimale définie) dans la pile z.
NOTE: La somme de toutes les valeurs est le nombre total de pixels rouges (région) dans la pile.
- La sortie est un tableau avec les pixels mesurées dessus du seuil (et au-dessus de la taille minimale définie) dans la pile z.
- Ouvrir le fichier dans ImageJ. Sélectionnez «canaux split" et le canal rouge proche. Utilisez la macro 216; eGFP int 'fourni sous forme de fichier de code supplémentaire pour quantifier l'intensité de la fluorescence verte dans la pile z. Réglez les paramètres préférés dans la macro (indiquées en gras).
- La sortie est un tableau avec les intensités moyennes et de la zone de tous les objets verts-dessus du seuil (et au-dessus de la taille minimale définie) en z-stack. Pour calculer l'intensité totale de pixels verts dans la pile, multiplier chaque intensité par la zone correspondante signifie.
- Calculer l'induction eGFP relative (eGFP rel):
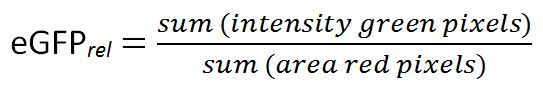 (1)
Remarque: Comme mCherry est exprimée de manière constitutive, la valeur résultante de eGFP rel est une mesure relative de la quantité de eGFP exprimée par un certain nombre de cellules. Se il vous plaît se référer au tableau 3 pour plus d'informations sur le calcul des eGFP rel.
REMARQUE: les configurations de Microcosm peuvent également être utilisés pour effectuer la quantification chimique de translocation montants GRIPPE avec ou sans un dissipateur contaminant abiotique.
- Enveloppez 15 ml des flacons en verre, flacons / MS 1 ml de GC et inserts en feuille d'aluminium. Remplissez évaporation plats avec Na 2 SO 4; placer tous dans le moufle pendant 5 heures à 450 ° C pour éliminer d'éventuelles contaminations. Rangez le Na 2 SO 4 à l'intérieur d'un dessiccateur activé.
- Couper fibres de verre enduit PDMS dans 0,5 cm de longueur. Laver fibres en secouant quatre fois 2 heures dans du méthanol frais. Répétez étapes de lavage, un autre quatre fois à l'eau ultra pure et de fibres propres magasins dans l'eau ultra pure dans un flacon de verre scellé.
- Préparer 1,5 L de toluène / acétone (3: 1, v / v) contenant 10 pg L -1 phénanthrène-d 10.
- Effectuer les étapes 1, 2 et 3 du protocole. Préparer microcosmes sans biorcellules eporter pour étudier le transport GRIPPE (SAM (-) et CON AIR (-)) et avec des cellules biorapporteur (SAM) de vérifier la dégradation de la grippe.
- En option (sans cellules biorapporteur): Placez trois PDMS revêtus fibres de verre (habituellement utilisés pour des expériences de SPME) que évier contaminant artificielle et quantifiable l'intérieur MMA de la SAM (-) à l'aide de pinces fines.
- Enlever les fibres de verre en utilisant une pince fine et de transférer chacun dans un GC / MS flacon avec insert.
- Ajouter 200 pi de toluène et secouer verticalement O / N et d'analyser par GC / MS. Utilisez les paramètres fournis dans le tableau 2.
- Transfert MMA de la cavité dans un milieu 15 ml flacon en verre et ajouter environ trois spatules de Na 2 SO 4. Bien mélanger avec une spatule et ajouter 10 ml de solvant. Vortex le mélange et secouer horizontalement O / N dans l'obscurité.
- Transférer 1001; l d'échantillon dans GC / MS flacon avec insert. Ajouter 10 pi de acénaphtylène-d 08 (10 mg L -1) et d'analyser par CG / MS en utilisant le même programme que décrit au point 6.4.3.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Les résultats présentés ici ont déjà été publiés plus tôt 15. Se il vous plaît se référer à l'article de discussion mécaniste et environnementale détaillée.
Après l'enregistrement d'image par CLSM, une projection d'intensité maximale peut être réalisée en utilisant le logiciel de microscope respective ou ImageJ pour gagner une première impression visuelle de l'échantillon et les contrôles (figure 2). Plus tard, les ensembles de données peuvent ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
La configuration du microcosme présenté est avéré approprié pour étudier la biodisponibilité des produits chimiques spatialement séparés pour les organismes après absorption et le transport par mycélium dégradant. Potentiel de transport en phase gazeuse de composés volatils en partie est empêchée et les cellules bactériennes biorapporteur peut être visualisé sans préparation de l'échantillon complexe, et donc avec une perturbation minimale du système sensible. Dans le même temps, l'analyse chimique de l'écha...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont pas d’intérêt financier concurrent.
Remerciements
Le financement par la Fondation allemande pour l’environnement (DBU) est reconnu. Les auteurs remercient Ute Kuhlicke pour son aide technique pour l’analyse CLSM et Birgit Würz, Rita Remer et Jana Reichenbach pour leur aide expérimentale qualifiée. Les auteurs tiennent à remercier tout particulièrement le professeur Jan Roelof van der Meer et le Dr Robin Tecon pour la discussion fructueuse et la fourniture de la souche biorapporteure. Il contribue au programme de recherche « Chemicals in the Environment » (CITE) de l’Association Helmholtz.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Microscope confocal | Leica | TCS SP5X, LAS AF - Version 2.6.1 ; ou équivalent CLSM | |
| GC HP 7890 Series GC et Agilent 5975C MSD | Agilent | un GC/MS équivalent peut être utilisé | |
| colonne capillaire J& W 121-5522 ; ; ; ; ; ; ; ; ; ; ; ; ; | Agilent | ||
| Perceuse de liège | Fisher Scientific | 12863952 | ou tout autre |
| Couvercles | Marienfeld | 107222 | Haute performance, No.1.5H |
| GC/MS insterts | WICOM | WIC 47080 | |
| Flacons GC/MS 2 ml | WICOM | WIC 41150 | |
| Couvercles / septa pour flacons à bouchon à vis | DIONEX | 49463 / 049464 ; | |
| Couvercles pour flacons GC/MS WICOM | WIC 43948/B | ||
| Lames d’objectif | Fibres | revêtues Menzel | |
| PDMS | Polymicro Technologies, Inc. | V (PDMS) = 13,55 ; ± ; ; 0,02 et micro ; l ; m-1 | |
| Boîtes de Petri petites / grandes | Greiner | 633-102 / 628-102 | |
| Flacons à bouchon à vis 40 ml | DIONEX | 48783 | d’autres flacons en verre peuvent être utilisés |
| Flacons à bouchon à vis 60 ml | DIONEX | 48784 | d’autres flacons en verre peuvent être utilisés |
| Acénaphtylène d08 | Dr. Ehrenstorfer | C 20510100 | |
| Acétone | Carl Roth | 9372.2 | |
| Charbon actif | Sigma-Aldrich | 242276-1kg | |
| Agarose | Carl Roth | 2267.4 | |
| Fluorène | Fluka | 46880 | |
| Sulfate de kanamycine | Carl Roth | T832.2 | 50 mg L-1 |
| Méthanol | Carl Roth | P7171 | |
| minimal Moyen : 100 ml Solution 1 + 25 ml Solution 2 + 5 ml Solution 3 ad. 1 000 ml aqua dest | |||
| Solution 1Sulfate d’ammonium | |||
| Carl Roth | 3746.1 | 5 g L-1 ; | |
| Chlorure de magnésium x 6 ; H2O | Carl Roth | 2189.1 | 1 g L-1 |
| Nitrate de calcium x 4 ; H2O | Carl Roth | P740.1 | 0,5 g L-1 |
| Solution 2 | |||
| Phosphate disodique | Carl Roth | P030.1 | 55,83 g L-1 |
| phosphate monopotassique | Carl Roth | 3904.1 | 20 g L-1 |
| Solution 3 (pH 6,0) | |||
| EDTA disodique | MERCK | 1084180250 | 0,8 g L-1 |
| chlorure de fer(II) x 4 ; H2O | MERCK | 1038610250 | 0,3 g L-1 |
| chlorure de cobalt(II) x 6 ; H2O | Carl Roth | T889.3 | 4 mg L-1 |
| chlorure de manganèse(II) x 1 H2O | Carl Roth | 4320.2 | 10 mg L-1 |
| sulfate de cuivre(II) | Carl Roth | P023.1 | 1 mg L-1 |
| Molybdate de sodium x 2 ; H2O | Carl Roth | 0274.1 | 3 mg L-1 |
| chlorure de zinc | MERCK | 1088160250 | 2 mg L-1 |
| Chlorure de lithium | Carl Roth | P007.1 | 0,5 mg L-1 |
| chlorure d’étain(II) x 2 ; H2O | Carl Roth | 4473.1 | 0,5 mg L-1 |
| Acide borique | Riedel-de-Haen ; ; ; ; ; ; ; ; ; ; ; ; ; | 11606 | 1 mg L-1 |
| bromure de potassium | Carl Roth | A137.1 | 2 mg L-1 |
| iodure de potassium | Carl Roth | 6750.1 | 2 mg L-1 |
| chlorure de baryum | Carl Roth | 4453.1 | 0,5 mg L-1 |
| MMA | Minimal medium + agarose 0,2 % | ||
| Phénanthrène d10 | Dr. Ehrenstorfer | C 20920100 | |
| Potato Dextrose Agar : 24 g L-1 bouillon + bacto-agar 1,5 %; pH 6,8 | |||
| Bouillon de dextrose de pomme de terre | Difco/ Beckton Dickinson | 254920 | |
| Bacto-agar | Difco/ Beckton Dickinson | 214040 | |
| Acétate de sodium x 3 hydr. | Carl Roth | 6779.1 | |
| Sulfate de sodium | MERCK | 1066495000 | |
| Toluène | MERCK | 1083252500 | |
| mTY moyen : 3 g ; L-1 extrait de levure, 5 ; g ; L-1 bacto tryptone et 50 mM d’extrait de levure NaCl | |||
| Merck | 1037530500 | ||
| Tryptone | Serva | 4864702 | |
| Chlorure de sodium | Carl Roth | 3957.1 | |
| ImageJ avec plugin | tool http://rsb.info.nih.gov/ij/download.html et http://downloads.openmicroscopy.org/bio-formats/4.4.10 | ||
| Pythium ultimum souche 67-1 | Obtenue du laboratoire du Dr Christoph Keel ; Département de microbiologie fondamentale, Université de Lausanne, Suisse | ||
| Burkholderia sartisoli RP037-mChe | Obtenu du laboratoire du Prof. Jan Roelof van der Meer ; Département de microbiologie fondamentale, Université de Lausanne, Suisse |
Références
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
