Xénogreffes de tumeurs humaines sont vascularisées et infiltrés par des cellules d'origine murine pendant la phase de croissance in vivo. Pour contourner le biais causé par ces cellules contaminantes lors de l'analyse en aval, nous avons développé une méthode permettant l'épuisement complet de toutes les cellules de souris par tri magnétique des cellules.
Article de méthode
Appauvrissement des cellules de souris de xénogreffes de tumeurs humaines améliore de manière significative l'analyse en aval des cellules cibles
Dans cet article
Résumé
Résumé
L'utilisation de modèles in vitro dans des lignées cellulaires pour la recherche sur le cancer a été un outil utile. Cependant, il a été montré que ces modèles ne parviennent pas à simuler de façon fiable les tumeurs des patients dans les différents essais 1. Xénogreffes de tumeurs humaines représentent l'étalon-or par rapport à la biologie de la tumeur, la découverte de médicaments et la recherche de métastases 2-4. Xénogreffes de tumeur peuvent être dérivées de différents types de matériaux comme des lignées de cellules de tumeur, un tissu tumoral de tumeurs de patients ou de tumeurs primaire 4 en série transplantées. Lorsqu'elles sont propagées in vivo, le tissu xénogreffe est infiltrée et vascularisé par les cellules d'origine murine. De multiples facteurs tels que l'entité tumorale, l'origine du matériel xénogreffe, le taux de croissance et de la région de la transplantation influence sur la composition et la quantité de cellules de souris présents dans les xénogreffes tumorales. Cependant, même lorsque ces facteurs sont maintenus constants, le degré de contamination des cellules de souris est très variable.
Coles cellules de souris ntaminating altèrent considérablement les analyses en aval de xénogreffes de tumeurs humaines. Comme fibroblastes de souris montrent des efficacités haute de placage et des taux de prolifération, ils ont tendance à envahir les cultures de cellules tumorales humaines, en particulier la prolifération lentement sous-populations. Cellules de souris dérivé de l' ADN, l' ARNm, et des composants protéiques peuvent fausser l' analyse de l' expression des gènes en aval, le séquençage de prochaine génération, ainsi que l' analyse du protéome 5. Pour surmonter ces limitations, nous avons développé une méthode rapide et facile à isoler les cellules tumorales humaines intactes du tissu tumoral xénogreffe. Cette procédure est basée sur l'épuisement complet des cellules d'origine murine par la combinaison de dissociation tissulaire automatisé avec le dissociateur tissulaire paillasse et le triage magnétique de cellules. Ici, nous démontrons que les cellules cibles humaines peuvent être peuvent être obtenus avec une pureté supérieure à 96% en moins de 20 min, indépendamment du type de tumeur.
Introduction
tumeurs humaines solides se composent de multiples physiologique ainsi que les types de cellules néoplasiques. Ils forment des tissus hétérogènes avec des structures biologiques complexes. Les processus biologiques tels que la formation de tumeurs, la progression et les réponses vers les thérapies ne sont pas encore pleinement compris. In vitro des modèles de culture cellulaire représentent un outil utile pour étudier et comprendre la biologie de la tumeur. Cependant, ils ne peuvent refléter en partie des structures et des procédés trouvés dans les tissus tumoraux. Des modèles fiables et stables tumorales humaines pré - cliniques sont une condition préalable pour le développement de médicaments anti-tumoraux et des thérapies 4,6, ainsi que pour la compréhension de la biologie des tumeurs et l'interaction des cellules tumorales et leur environnement.
Des modèles de xénogreffes de tumeurs humaines dérivées de tumeurs primaires de patients montrent des relations élevées au tissu d'origine en ce qui concerne l' architecture histologique, les interactions avec les micro-environnement structures, potentiel métastatique et les réponses aux médicaments 7 . Même lorsque les xénogreffes tumorales sont dérivées de cellules cultivées ou des lignées cellulaires , ils imitent plus étroitement les tumeurs des patients, montrant ainsi la validité plus élevée dans la plupart des dosages in vitro par rapport aux modèles de culture cellulaire. Ces caractéristiques en font le standard des modèles précliniques 4 d'or. Outre son application dans la recherche sur le cancer, la xénotransplantation de cellules humaines dans des souris est également fréquemment utilisé dans la recherche sur les cellules souches pour déterminer le potentiel stemness et la différenciation d'une population cible 8.
Il a été démontré que les microvaisseaux humains et les cellules immunitaires humaines sont remplacées lors de la propagation in vivo de tumeurs humaines 2,9. Des facteurs tels que le sous-type de tumeur, le taux de croissance, et la région de la transplantation ont un impact majeur sur le niveau global de l'infiltration, ainsi que la composition des types de cellules de souris trouvée. Cependant, même lorsque ces facteurs sont maintenus constants, la quantité et la composition des cellules de souris sont très variables.
Les analyses en aval des tissus xénogreffes sont souvent contestées par les cellules d'origine murine. Des cultures primaires de cellules tumorales humaines provenant de xénogreffes sont fréquemment est envahi par les fibroblastes. En plus de gêner la génération de lignées de cellules tumorales in vitro, des dosages en aval , tels que le test de cytotoxicité de la drogue ou la pharmacocinétique sont biaisées puisque la correction de silico pour les effets provenant de contaminer les cellules de souris est impossible dans la plupart des cas. Au - delà, la diaphonie que partiellement élucidé entre les fibroblastes de souris et des cellules tumorales humaines a un impact direct sur les résultats expérimentaux des études 10. En outre, la variation la plus largement imprévisible de l'infiltration des cellules de souris aggrave les analyses en aval moléculaires précises. Dans NGS ou protéome analyse chaque signal de souris dérivé mesuré au lieu d'un signal de tumeur humaine diminue directement la sensibilité de séquençage. Aussi les analyses d'expression de microréseaux à base sont contestés par nuc murinacides léiques hybridant éventuellement croix aux sondes humaines.
Afin de contourner les obstacles de contamination des cellules de souris dans les analyses en aval des cellules tumorales humaines à partir de modèles de xénogreffes différentes approches ont été proposées. De nombreuses études des cellules cibles souhaitées pour l'analyse en aval sont isolés en utilisant des marqueurs ou combinaisons de marqueurs exclusivement exprimés sur des cellules tumorales humaines. Cependant, le manque de marqueurs fiables pour l'identification positive des cellules tumorales humaines représente souvent un grand obstacle. Marqueurs Même largement exprimés, tels que EpCAM sur carcinomes humains, montrent souvent des différences tumeur d'expression intrinsèque 11. Cela augmente le risque que les sous - populations à faible exprimant, par exemple, les cellules tumorales subi épithéliale-mésenchymateuse transition, sont perdus lors de l' isolement. En outre, la liaison directe d'un agent de sélection pour la cellule cible peut influer sur les résultats des analyses ultérieures. Les tentatives d'appauvrissement de cellules de souris paren utilisant une combinaison d'anticorps spécifiques de CD45 murin et du CMH épitopes de classe I ont également été 12. Cependant, cette combinaison de marqueurs détecte uniquement un sous-ensemble de cellules de souris. Une autre approche consiste à améliorer les processus d'analyse par le logiciel. Néanmoins, toutes ces approches sont soit pas adapté à tout type de dispositif expérimental ou pour toute entité tumorale et la méthode de transplantation.
Dans cette étude, nous présentons une méthode nouvelle et rapide pour appauvrissent complètement les cellules de souris à partir de tissus xénogreffes indépendants de la souche de souris et de tissus d'origine. Dans des projections sur plusieurs organes cibles et des tissus destinés à la transplantation de xénogreffes (y compris la peau, les poumons, le cerveau, les reins et le muscle squelettique), nous avons pu identifier une combinaison d'anticorps permettant la détection complète des cellules de souris. Ces anticorps ont été couplés à des particules superparamagnétiques, titrés et optimisés pour épuisement en utilisant le tri cellulaire magnétique. Comme seulement spécifique de la sourison utilise des anticorps, les cellules cibles humaines restent "intacte" et le procédé ne se limite pas à un tissu tumoral transplantées. Nous démontrons que les cellules de souris enlever complètement à partir d'échantillons de tumeur xénogreffe uniformise et facilite les cultures de cellules tumorales humaines. En outre, nous montrons que l'analyse des xénogreffes de tumeurs humaines par le séquençage de la prochaine génération est nettement améliorée. Comme on l'a observé cet effet même si une sélection spécifique de la séquence humaine a été réalisée au cours de l'enrichissement de l'exome, l'influence sur le génome entier et le séquençage du transcriptome entier devraient être encore plus important. Pris ensemble, l'élimination des cellules de souris à l'aide de ce nouveau procédé facilite la culture de cellules tumorales humaines et améliore les analyses en aval des xénogreffes de tumeurs humaines de manière significative.
Protocole
Toutes les expériences animales ont été réalisées conformément aux lignes directrices éthiques et juridiques locales de Regierungspräsidium Freiburg Referat 35.
1. Préparation des réactifs
NOTE: Avant de commencer l'expérience, préparer les réactifs suivants du kit de dissociation:
- Pour préparer une enzyme H dissoudre chaque flacon de la poudre lyophilisée dans 3 ml de RPMI 1640 Roswell Park Memorial Institute 1640 (RPMI 1640) ou de Eagle modifié par du milieu de Dulbecco (DMEM). Afin d'éviter la congélation et la décongélation répétées préparer des aliquotes appropriés (par exemple, 200 pi) et les stocker à - 20 ° C pendant jusqu'à 6 mois.
- Pour préparer l'enzyme R dissoudre le flacon de la poudre lyophilisée dans 2,7 ml de milieu RPMI ou DMEM. Afin d'éviter la congélation et la décongélation répétées préparer des aliquotes appropriés (par exemple, 100 pi) et les stocker à - 20 ° C pendant jusqu'à 6 mois.
- Pour préparer une enzyme de dissoudre le vial de la poudre lyophilisée dans 1 ml de tampon A fourni avec le kit sans tourbillonnement. Afin d'éviter la congélation et la décongélation répétées préparent aliquotes appropriées et de les stocker à (par exemple, 25 pl.) - 20 ° C pendant jusqu'à 6 mois. Assurez-vous de bien mélanger cette suspension immédiatement avant de retirer le volume de réaction nécessaire.
- Préparer 250 ml de tampon (1 x PBS avec BSA à 0,5%) pour la procédure de séparation de cellules et la coloration d'anticorps.
NOTE: Lorsque la culture de cellules après élimination des cellules de souris filtrent tous les tampons et solutions enzymatiques à travers un filtre de 0,22 um.
2. Tumor Protocole Dissociation
NOTE: Dans cette étude de xénogreffes de cancer non à petites cellules du poumon (NSCLC) provenant de patients, le cancer du rein et de la vessie ont été utilisés. Les tumeurs ont été générées par l' implantation des xénogreffes de cancer non à petites cellules du poumon (NSCLC) le cancer du rein et de la vessie 4 - 6 semaines NMRI souris nu / nu femelle tel que décrit précédemment 13 .
NOTE: Comme ce protocole est complètement indépendant du type de tumeur, il peut être utilisé pour tout type de patient ou d'une cellule tumorale de la ligne dérivée ainsi que d'autres types de tissus transplantées humain sans modification du protocole.
- Préparer 5 ml de digestion mélange par échantillon tissulaire (jusqu'à 1 g) fraîchement par addition de 4,7 ml de RPMI 1640 ou DMEM, 200 ul de l'enzyme H, 100 ul d'enzyme R, et 25 ul d'enzyme A dans un tube de dissociation cellulaire ( C Tube). Assurez-vous de bien mélanger l'enzyme R suspension avant de prélever le volume requis.
- Sacrifiez les animaux par dislocation cervicale sous anesthésie. Désinfecter la souris par pulvérisation avec une petite quantité de 80% v / v d'éthanol.
- récolte tumeur sous-cutanée sur le flanc de la souris à l'aide de pinces et des ciseaux dans une hotte de culture tissulaire. Couper la peau ouverte à la place de la tumeur en utilisant des ciseaux, puis séparer la tumeur du tissu sain adjacent à l'aide de pinces et ciseaux.
NOTE: En fonction de l'objectif del'expérience et effectuer cette étapes suivantes dans des conditions aseptiques. Dans cette étude, toutes les étapes ont été réalisées dans une hotte de culture cellulaire dans des conditions aseptiques afin d'être en mesure de cultiver les cellules. - Préparer l'échantillon de la tumeur pour digestions en enlevant la graisse (comme cela va rendre l'échantillon float) et des zones nécrotiques (comme cela se traduira par une diminution de la viabilité) en le coupant à une distance en utilisant une pince et un scalpel. Émincer le tissu en morceaux de 2 - 4 mm en utilisant des scalpels et des pinces.
- Transférer les morceaux de tissu dans le tube à C contenant le mélange de digestion.
- Fermez le C Tube et assurez-vous qu'il est bien fermé. Attachez-le à l'envers sur le manchon du dissociateur de tissu paillasse et assurez-vous que les morceaux de tissu sont situés dans la zone du rotor / stator.
- Choisissez le mode "h_tumor_01" en appuyant sur le "haut" ou le bouton "down" jusqu'à ce que le mode apparaît à l'écran, puis en appuyant sur le bouton "start".
- Si tuchanter la fonction de chauffage du dissociateur tissulaire de paillasse, assurez-vous de joindre également le chauffage. Ensuite, exécutez le mode 37C_h_TDK_1 (pour les tumeurs molles), 37C_h_TDK_2 (pour les tumeurs moyennes) ou 37C_h_TDK_3 (pour les tumeurs dures) en cliquant sur le symbole de dossier sur l'écran tactile jusqu'à ce que le dossier "Miltenyi" apparaît.
- Pour choisir le mode, cliquez sur le flèche haut ou bas jusqu'à ce que le mode de dissociation 37C_h_TDK_2 est mis en évidence. Les manches de la dissociateur tissulaire benchtop sont représentés comme des positions sur l'écran du dispositif. Choisissez les positions des échantillons sont exécutés par eux en cliquant sur l'écran tactile. Appuyez sur "start" pour lancer le mode et passez à l'étape 2.16.
NOTE: En fonction du type de tumeur d'un autre programme de dissociation pourrait être approprié (voir étape 2.7.1).
- Observer une fenêtre montrant «Résiliation du programme" sur l'écran. Après la fin du programme, détacher C Tube du dissociateur tissulaire de paillasse.
- Incuber l'échantillon pendant 30 min à 37° C sous une rotation continue, par exemple en utilisant un dispositif de rotation du tube.
- Après incubation attacher C Tube à l'envers sur le manchon du dissociateur tissulaire de paillasse. faire à nouveau en sorte que le matériau d'échantillon est situé dans la zone du rotor / stator.
- Exécutez le programme h_tumor_02 de dissociation (pour les tumeurs molles et moyennes) ou h_tumor_01 (pour les tumeurs dures), comme décrit à l'étape 2.7.1.
- Après la fin du programme, détacher C Tube du dissociateur tissulaire de paillasse.
- Incuber l'échantillon pendant 30 min à 37 ° C sous rotation continue.
- Attacher C Tube à l'envers sur le manchon du dissociateur tissulaire après une incubation de paillasse. faire à nouveau en sorte que le matériau d'échantillon est situé dans la zone du rotor / stator.
- Exécutez le programme h_tumor_03 de dissociation (pour les tumeurs molles), h_tumor_02 (pour les tumeurs moyennes) ou h_tumor_01 (pour les tumeurs dures) comme décrit dans l'étape 2.7.
- Pour recueillir l'échantillon au fond du tube effectuer un short étape de centrifugation (à 100 g pendant 10 sec).
- Remettre en suspension les cellules et les appliquer à un tamis cellulaire de 70 pm de taille nesh placée sur un tube de 50 ml. Laver le tamis cellulaire avec 20 ml de RPMI 1640 ou DMEM.
- Centrifugeuse suspension de cellules à 300 xg pendant 7 min. Aspirer le surnageant complètement.
- Resuspendre les cellules dans 5 ml de tampon pour le comptage. Procéder à la souris déplétion des cellules par séparation magnétique de cellules (section 3).
3. Souris cellulaire Épuisement par Magnetic Cell Technology de séparation
NOTE: Les volumes pour l' étiquetage magnétique donnés ci - dessous sont pour un maximum de 2 x 10 6 cellules tumorales ou 10 7 cellules totales , y compris les globules rouges. En fonction de la taille de la tumeur inférieur ou un nombre de cellules plus élevées seront obtenues. En cas de moins de cellules, utiliser les mêmes volumes comme indiqué. Lors de l' utilisation des numéros de cellules plus élevées, l' échelle de tous les volumes de réactifs et les volumes totaux en conséquence (par exemple, pour 4 10 6 cellules tumorales x ou 2 x 10 7 cellules totales, utiliser deux fois le volume de tous les volumes de réactifs indiqués et les volumes totaux).
- Déterminer le nombre de cellules d'une aliquote de suspension de cellules à l'étape 2.21 en utilisant un microscope et une chambre adaptée pour le comptage.
Remarque: À ce stade, la suspension cellulaire est constituée d'un mélange hétérogène de cellules tumorales humaines, ainsi que stromales de souris et les cellules sanguines, y compris les globules rouges. La composition des cellules dépend fortement du type de tumeur et de la région pour la transplantation. - Lorsque vous effectuez une analyse de cytométrie de flux après élimination des cellules de souris retirer 100 ul aliquotes à tubes appropriés pour un unstained et deux pour l'analyse de cytométrie de flux de couleur unique contrôle coloration. Conservez-les dans un réfrigérateur à 2-8 ° C jusqu'à ce que des étapes de coloration (section 4).
- Centrifugeuse suspension de cellules à 300 xg pendant 10 min. Jeter le surnageant.
- Resuspendre le culot cellulaire dans 80 pi de tampon par 2 x 10 6 cellules tumorales ou 10 7cellules totales Ajouter 20 ul de réactif de marquage magnétique pour les cellules de souris.
- Bien mélanger et incuber pendant 15 min au réfrigérateur (2-8 ° C). Pendant marquage magnétique, préparer de grandes colonnes d'échelle (LS colonnes) pour la séparation magnétique, en le plaçant dans le champ magnétique d'un aimant approprié (voir le tableau des matériaux et équipements) selon le protocole du fabricant. Rincer la colonne avec 3 ml de tampon.
- Ajuster le volume de l' échantillon de 500 ul en utilisant un tampon pour les cellules tumorales jusqu'à 2 x 10 6 ou 7 jusqu'à 10 cellules au total. (Jusqu'à 1 x 10 7 cellules tumorales ou jusqu'à 5 x 10 7 cellules totales peuvent être traitées sur une colonne de LS. Lorsque vous travaillez avec plusieurs cellules divisé l'échantillon sur plusieurs colonnes LS).
- Lorsqu'on effectue une analyse cytométrique de flux, l'analyse moléculaire ou en comparant les fractions dans des cultures, retirer une partie aliquote de 50 ul d'échantillon comme non triées. Conservez-la dans un réfrigérateur à 2-8 ° C jusqu'à un traitement ultérieur.
- Appliquer 500 ul de la suspension cellulaire sur la colonne préparée précédemment. Recueillir écoulement contenant des cellules cibles non marquées, ce qui représente les cellules enrichies de tumeurs humaines.
REMARQUE: Lorsque l'on travaille avec un nombre de cellules supérieur à 2,5 ml de la suspension cellulaire qui a été préparée selon l'étape 3.5 peut être appliqué à une colonne. - Laver la colonne avec 2 x 1 ml de tampon. Recueillir les cellules qui passent à travers et se combinent avec l'écoulement de l'étape 3.6. Effectuer les étapes de lavage par l'addition des aliquotes de 1 ml de tampon dès que le réservoir de la colonne est vide.
NOTE: L'écoulement contient des cellules purifiées tumorales humaines. - Pour recueillir également les cellules de souris retenues dans la colonne, retirez la colonne du séparateur et le placer sur un tube approprié. Pipette 3 ml de tampon sur la colonne et immédiatement utiliser le piston pour éliminer les cellules de souris en le poussant fermement dans la colonne.
- Isoler les fractions et les échantillons de contrôle à 300 xg pendant 10 min. Aspirer supernatant complètement et remettre les cellules dans un tampon, milieu de culture ou geler le culot dans de l'azote liquide, selon l'application désirée en aval.
4. Analyses en aval
- Coloration pour analyse par cytométrie en flux
REMARQUE: Avant de procéder à des analyses ultérieures en aval, une partie des cellules obtenues à partir de la procédure de déplétion des cellules de souris peuvent être analysées (par exemple, d' évaluer la pureté et rendement) en cytométrie de flux.- Pour les analyses cytométrie de flux, tourner au moins 10% de la fraction négative et positive obtenue à partir de la procédure de séparation magnétique de cellules (section 3), ainsi que les échantillons de contrôle de l'étape 3.2 et 3.5 à 300 xg pendant 10 min.
- Jeter le surnageant. Remettre en suspension le culot cellulaire des échantillons de contrôle de la coloration de l'étape 3.2 dans 90 ul de tampon. Remettre en suspension les fractions obtenues à partir de processus de séparation magnétique des cellules dans 80 ul de tampon.
- Ajouter 10 pi de réactif de blocage souris FcR à touséchantillons. Bien mélanger et incuber pendant 5 minutes à 2-8 ° C dans un réfrigérateur.
- Ajouter 10 ul d'EpCAM-PE anti-humaine (anticorps est égal à une dilution de 1:10) et 25 pi d'anticorps anti-souris-APC cocktail (égal anticorps dilution de 1: 4) pour les échantillons provenant de la section 3. Ajouter 10 pi d'anticorps anti -Droits EpCAM-PE à un seul échantillon de contrôle de couleur (égal anticorps dilution 1:10) et 10 pi d'EpCAM-APC anti-humain à l'autre (l'anticorps est égale à une dilution de 1:10). Mélanger tous les échantillons et on incube pendant 10 minutes à 2-8 ° C dans un réfrigérateur.
REMARQUE: EpCAM ne convient pas comme marqueur des cellules tumorales de tout type de tumeur. Pour les tumeurs utilisées dans cette expression étude de EpCAM a été connue. - Pour laver les échantillons, ajouter 1 ml de tampon à chaque rotation et à 300 xg pendant 5 min.
- Jeter le surnageant et remettre en suspension le culot de cellules à une concentration pour l'analyse cytométrique de flux. Pour exclure les cellules mortes ajouter l'iodure de propidium (1 pg / ml).
- Effectuer une analyse de cytométrie de flux en utilisant un f appropriéfaible cytomètre selon les protocoles du fabricant.
- La culture des cellules tumorales humaines
NOTE: En plus de la cytométrie en flux, les cellules obtenues à partir du procédé de séparation peuvent être cultivées et utilisées pour d' autres essais in vitro.- Remettre en suspension la fraction triée de la section 3 dans un milieu de culture à une concentration de 5 x 10 5 cellules / ml.
REMARQUE: En fonction du revêtement de type de tumeur, la densité de semis approprié, et les conditions de culture peuvent différer. - Ajouter 500 ul de suspension cellulaire dans les puits d'une plaque à 24 puits revêtue avec 0,1% de gélatine.
- Incuber les cellules dans un incubateur de culture cellulaire à 37 ° C et 5%.
REMARQUE: Les conditions optimales de culture varient selon le type de tumeur utilisé. Par conséquent, appliquer des conditions de culture appropriées pour le type de tumeur utilisé.
- Remettre en suspension la fraction triée de la section 3 dans un milieu de culture à une concentration de 5 x 10 5 cellules / ml.
- Immunofluorescence des cellules cultivées
- Préparer une solution de blocage par addition de 10% de FCS et 0,1%Triton X-100 à 1 x PBS.
- milieu de culture Jeter. Ajouter 500 ul de PBS 1x par puits pour laver les cellules. Incuber pendant 2 min à température ambiante (RT), puis jeter complètement 1x PBS.
- Fixer les cellules en ajoutant 300 ul d'une solution à 4% de PFA. Incubation à température ambiante pendant 15 min.
- Jeter la solution PFA. Laver les cellules fixes 3 fois comme indiqué à l'étape 4.3.2.
- Effectuer perméabilisation et le blocage en ajoutant 300 pi de blocage par puits. Incubation à température ambiante pendant 30 min.
- Jeter la solution de blocage. Laver les cellules comme indiqué à l'étape 4.3.2.
- Ajouter 300 pi d'anticorps primaire dilué dans une solution de blocage pour les cellules. Un anticorps anti-humain EpCAM est dilué 1:40, un anticorps vimentine est dilué 1: 200. Incuber une nuit à 2-8 ° C.
Nota: Les anticorps utilisés ne sont pas adaptés à tous les types de tumeur comme EpCAM peut ne pas être exprimé sur des cellules et / ou la vimentine tumorales est également exprimé par les cellules tumorales. Assurez-vous que les anticorps utilisés sont adaptés pour le mo de xénogreffeDelaware - Jeter la solution d'anticorps primaire. Laver les cellules 3 fois comme indiqué à l'étape 4.3.2.
- Ajouter 300 ul d'anticorps secondaire dilué dans une solution de blocage pour les cellules. Les deux anticorps, anti-IgG de lapin-Alexe594 et anti-IgG de souris-Alexa488 sont dilués 1: 400. Incuber pendant 1 heure dans l'obscurité à la température ambiante.
- Jeter la solution d'anticorps secondaire. Laver les cellules 2 fois comme indiqué à l'étape 4.3.2.
- Ajouter 300 pi de solution de DAPI (0,1 pg / ml) à chaque puits. Incuber pendant 10 min à l'obscurité à température ambiante.
- Jeter la solution DAPI. Laver les cellules 3 fois comme indiqué à l'étape 4.3.2.
- Ajouter 500 ul de 1 x PBS à chaque puits. Effectuer la microscopie par fluorescence en utilisant un microscope approprié.
- Whole Séquençage Exome
- Pour l'ensemble de séquençage de l'exome (WES) Granulés de gel de l'étape 3.9 dans de l'azote liquide. Magasin et recueillir des échantillons à -80 ° C.
- Après avoir recueilli les cellules, effectuer la capture de exome et suivants exome ensembleuencer conformément aux instructions du kit respective du fabricant (voir le tableau des matériaux et équipements).
Résultats
Différentes approches ont été proposées pour identifier ou éliminer les cellules de souris à partir de tumeurs humaines xénogreffes, par exemple une combinaison d'anticorps spécifiques de la souris contre CD45 et du CMH de classe I. Toutefois, seuls les sous-populations de cellules de souris ont été détectés en utilisant ces combinaisons alors que la combinaison proposée détectée CD45 et CMH de classe I des cellules de souris exprimant ainsi que le reste des cellules de souris trouvées dans les tissus cibles pour la transplantation (figure 1). En utilisant cette nouvelle combinaison d'anticorps pour le triage magnétique de cellules, les cellules tumorales humaines ont pu être isolés indépendamment du type de tumeur (figure 2).
Les cellules obtenues à partir de la séparation des cellules de souris retrait magnétique des cellules basée sur des procédures peuvent être mises en culture, conduisant à des cultures pures de cellules tumorales humaines (figure 4). En outre, les cellules de souris viables peuvent être obtenues et mises en culture à partir dumême échantillon. En plus de l' élimination des cellules de souris, aussi débris a été éliminé lors de l' épuisement des cellules de souris (DCC) (figure 3).
L'épuisement complet des cellules de souris, ainsi que l'enlèvement des débris en aval conduisent à des analyses moléculaires améliorées. Ceci a été démontré en comparant les résultats obtenus à partir de séquençage de l' exome entier (WES) réalisées sur des morceaux de tumeur en vrac et des échantillons de cellules appauvri de souris à partir de trois modèles de xénogreffes de tumeurs provenant de patients (figures 5 - 9). Nos données indiquent que l'élimination des cellules de souris avant d' effectuer WES sur des échantillons de tumeurs de xénogreffes non seulement augmente significativement la quantité totale de lectures (figure 5) , mais permet également de réduire considérablement le nombre d'hôte dérivé lectures mis en correspondance avec le génome humain de référence (figure 6B). Comme ces souris par erreur mappé lectures interfère fréquemment avec SNP appel, nous avons observé une forte réduction de faussement préditSNPs après MCD (figures 7-8). Enfin, nous avons montré que la suppression in silico de souris dérivées lit par bioinformatique méthodes ne pouvaient pas remplacer complètement la procédure expérimentale, comme une cession par séquence sans équivoque à l'espèce d'origine n'a pas été possible pour toutes les lectures. En outre, la procédure silico ne pouvait pas correct pour la meilleure qualité et une couverture d' élément de lecture plus élevé in vitro d' échantillons décimés (figure 9).
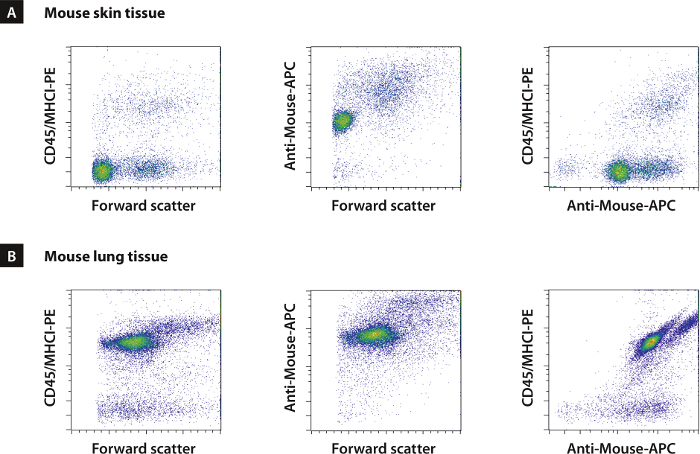
Figure 1. L' établissement d' un cocktail d'anticorps reconnaissant toutes les cellules de la souris sur plusieurs organes 14. Screenings dans plusieurs organes, y compris la peau, les poumons, le cerveau, les reins et le muscle squelettique, ont été réalisées. Ces organes représentent les principaux tissus cibles pour la xénotransplantation. Des combinaisons telles que les mou reconnaissantse CD45 et CMH épitopes de classe I ont déjà été utilisées afin d'éliminer les cellules de souris après la xénotransplantation. Cependant, ces combinaisons de marqueurs ont reconnu qu'un sous-ensemble de cellules de souris dans tous les tissus analysés. Dans les projections précédentes, une combinaison de cinq anticorps a été identifié permettant la détection complète de toutes les cellules d'origine de souris. Ce panneau comprend des globules rouges et est indépendante du tissu d'origine (A, B, et données non représentées). Modifié à partir de 14. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
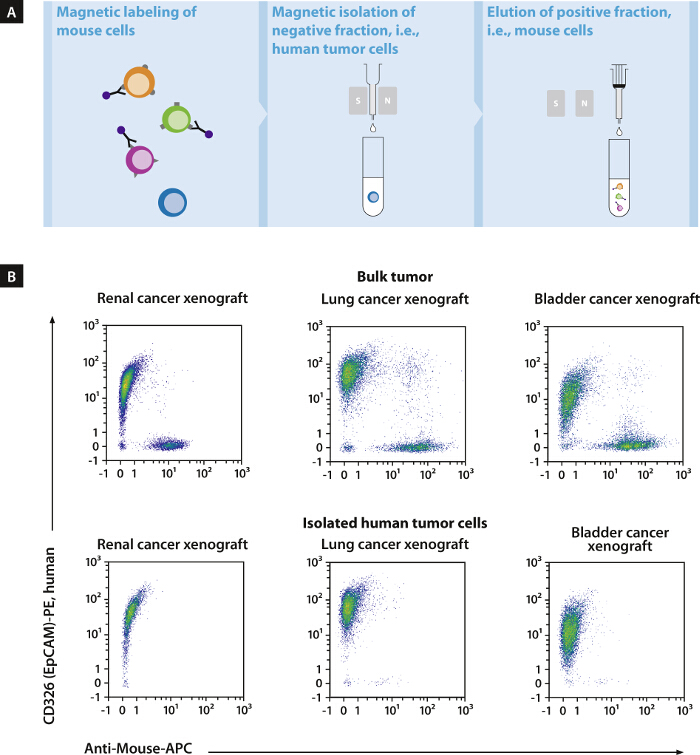
Figure 2. Épuisement fiable et rapide des cellules de souris 15. Conjugués de la combinaison d'anticorps avec superparamagnétique nanoparticles ont été utilisés pour développer un protocole optimisé pour la déplétion des cellules de souris de xénogreffes de tumeurs humaines avec des cellules de tri magnétique (séparation magnétique de cellules) (A). Ce protocole selon l'invention a permis l'élimination de> 99% de contamination des cellules de souris en moins de 20 minutes, quel que soit le type de tumeur. Fractions cellulaires obtenues à partir de la procédure de séparation magnétique des cellules ont été marquées avec le cocktail pan-anticorps de souris et un anticorps spécifique humain contre CD326 (EpCAM) (B). Modifié à partir de 15. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
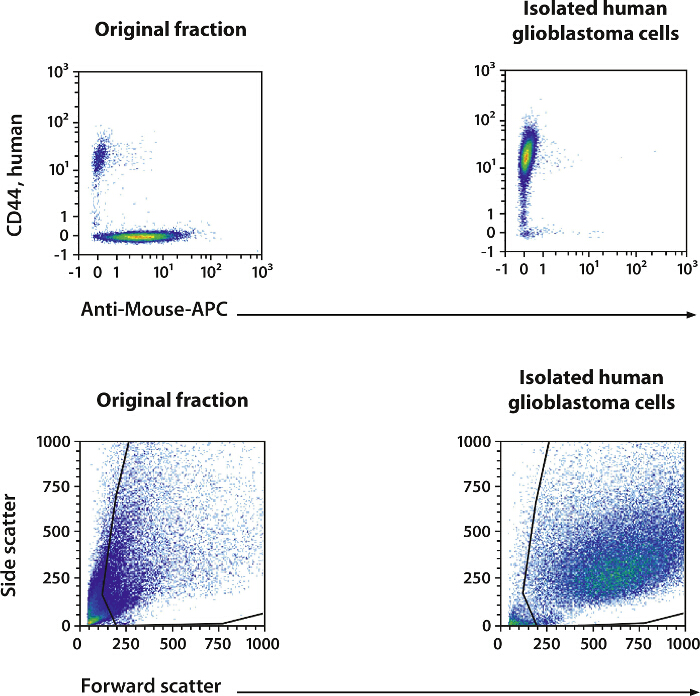
Figure 3. Isolement des cellules de glioblastome humain. Souris Kit Cell déplétion a été utilisé pour isoler les cellules de glioblastome humain d'adultes mouse cerveau. Pendant la dissociation du tissu neuronal des quantités élevées de débris est généralement généré. MCDK épuise efficacement les cellules mortes et les débris comme on le voit par la représentation graphique montrant la taille des cellules par rapport à la granularité des cellules. Avec ce conjugué cocktail, il a été possible d'éliminer> 99% des cellules de souris contaminantes et> 60% des débris. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
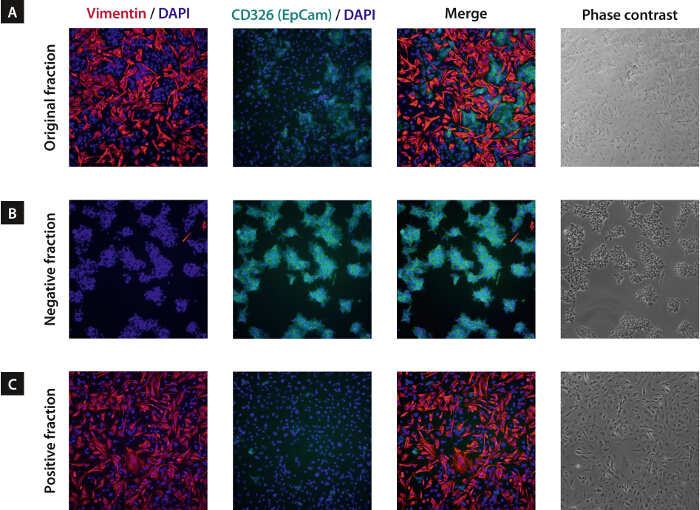
Figure 4. Épuisement des cellules de souris Facilite Cultures en aval des cellules tumorales humaines 14. Fibroblastes de souris entravent souvent la culture de cellules tumorales humaines après dissociation des tissus transplantés ou conduisent à des cultures hétérogènes. Fibroblastes attacher et développer plus efficacement, overgrowing ainsi la cible c aunes. Ce perturbe tests in vitro de culture cellulaire (par exemple, les tests de cytotoxicité des médicaments), puisque la correction mathématique pour les effets résultant de la contamination des cellules de souris est impossible dans la plupart des cas. La borne négative (B) et les fractions positives (C) après épuisement des cellules de souris ont été cultivées pendant trois jours, fixées et colorées pour un fibroblaste marqueur spécifique de la souris (vimentine) et le marqueur spécifique de la tumeur humaine CD326 (EpCAM). En tant que témoin, la fraction d' origine contenant des cellules non séparées (A) a été cultivé et coloré ainsi. Même après trois jours de culture, d' une population pratiquement pure de cellules tumorales humaines a été observée dans la fraction négative (B), tandis que la fraction non triés (A) était presque envahies par les fibroblastes. Seule une partie mineure des cellules cibles a été perdue à la fraction positive (C). Modifié à partir de 14.ge.jpg "target =" _ blank "> S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
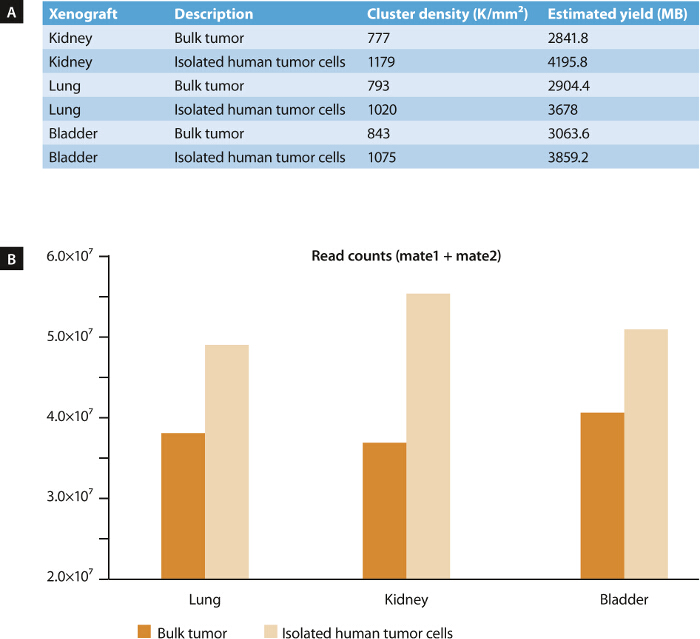
Figure 5. Whole Exome Sequencing (WES) des échantillons de tumeur Avant et après Souris cellulaire Depletion (MCD) 15. Nous avons effectué WES sur trois modèles de xénogreffes différents dérivés de rein humain, du poumon et le cancer de la vessie afin d'évaluer l'impact de la MCD sur la qualité des données de séquençage de nouvelle génération. L'ADN de la tumeur en vrac et à partir de cellules tumorales isolées après déplétion des cellules de souris a été utilisé pour générer des banques de séquençage Exome capturés appliquant une trousse exome de capture. Pour le séquençage sur un instrument de bureau séquenceur, un kit de réactifs bureau du séquenceur 150 cycles, a été utilisé pour générer 75 pb apparié-end lit. Une augmentation significative (p <0,05) de la densité de la grappe (A) ainsi qu'un aveaugmentation de la rage dans les chiffres de lecture de 33% (B) a été observée pour les échantillons déplétés en cellules de souris, ce qui indique une meilleure qualité de l' échantillon. En conséquence, une forte réduction des débris et des cellules mortes sur MCD pourrait également être démontrée par cytométrie de flux (voir Figure 3). Modifié à partir de 15. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
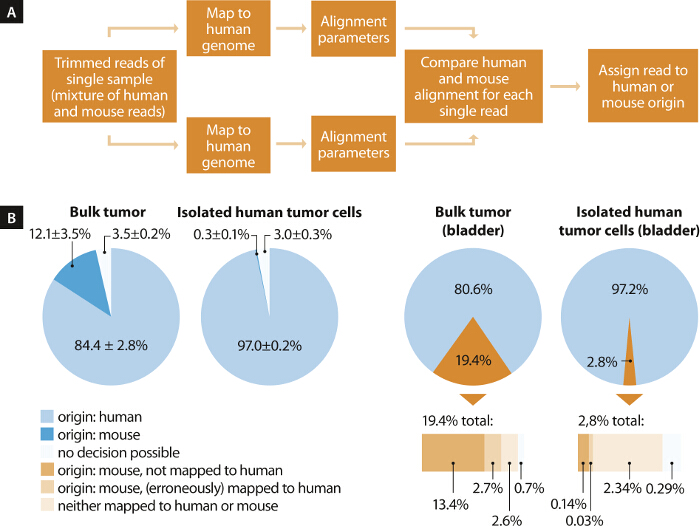
Figure 6. Souris Cellule Depletion (MCD) réduit fortement Nombre de par erreur mappé Souris Lit après Whole Exome Sequencing (WES) 15. Comme oligonucléotides de capture utilisés pour l' enrichissement ciblée de séquences codant pour des protéines ont été conçues sur la base du génome humain, un pré initial l'enrichissement des fragments d'ADN d'origine humaine from a été prévu que le mélange de souris et des cellules humaines. Afin d'évaluer le nombre d'oligonucléotides de capture qui pourrait contre-hybrider avec l'ADN génomique de la souris, nous avons mené des recherches BLAST de chaque sonde capture exome rapide unique contre le génome de la souris. Les paramètres d'alignement résultantes ont été utilisées pour déterminer l'hybridation croisée possible. (.. La longueur d'alignement, aucun de non-concordance, aucun des écarts) en fonction des seuils de sélection, nous avons prédit une réactivité croisée de 5 - 10% des sondes de capture avec la transcription de la souris (données non montrées). Après l' adaptateur écrêtage (de v0.32 trimmomatic 16), nous avons cartographié les lectures de tous les échantillons contre génomes de l' homme et de la souris (bwa v0.7.12 17) et déterminé leur origine supposée basée sur les paramètres d'alignement respectifs (shell LINUX, ligne de commande Perl) (A). Une moyenne de 12% des lectures provenant des échantillons de tumeur en vrac a été attribuée à des cellules de souris. Ce montant peut être réduit à 0,3% par épuisement préalable des cellules de souris (B ). Comme en moyenne 15% de la souris dérivées lectures mappé par erreur au génome humain, ce qui correspond à 1,9% du total des lectures dans des échantillons de tumeur en vrac et 0,04% dans les cellules tumorales isolées, une forte influence positive de la déplétion des cellules de la souris sur des analyses en aval peut être prévu. la figure 6B illustre l'affectation de lecture détaillée de la tumeur en vrac et des cellules tumorales humaines isolées dérivées de la xénogreffe de cancer de la vessie. Modifié à partir de 15. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
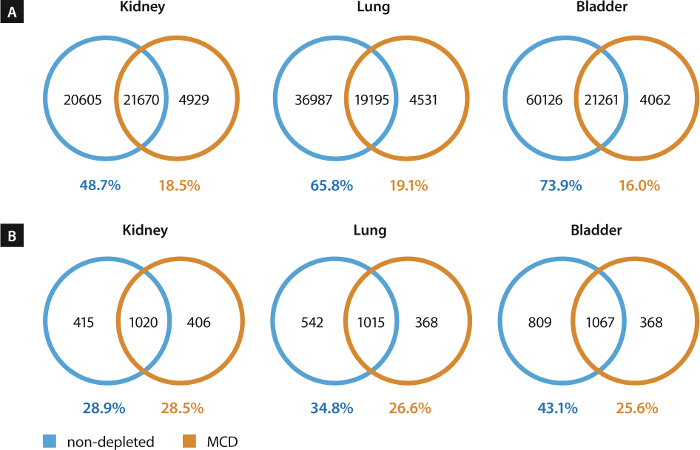
Figure 7. MCD Réduit fortement le nombre de SNP Faussement prédites 15. Afin de déterminer l'impact de la souris lectures mappé sur le génome humain, nous avons déterminé le nombre de predicteSNPs d pour les échantillons de xénogreffes avant et après MCD. En l'absence d'un tissu sain est disponible à titre de comparaison, un SNP a été définie comme la différence entre l'échantillon séquencée et le génome de référence (hg19). Après élimination du double lit, SNP et INDEL appel a été mené 18 et a été limitée aux régions ciblées par un kit exome de capture. 63 ± 10% de l' ensemble des SNP prévu pour les échantillons de tumeur en vrac ne sont plus détectés après déplétion des cellules de souris, 18 ± 1% étaient spécifiques des cellules tumorales humaines isolées (A). Alors que les premiers ont été principalement causés par la souris par erreur mappé lit celui-ci semblait être détectée en raison de la hausse des chiffres de lecture et de la couverture en conséquence plus élevée dans les échantillons isolés de cellules tumorales humaines. Cet effet a également été visible INDEL prédites (B). Modifié à partir de 15. S'il vous plaît cliquer ici pour voir une version plus grande de cettefigure.
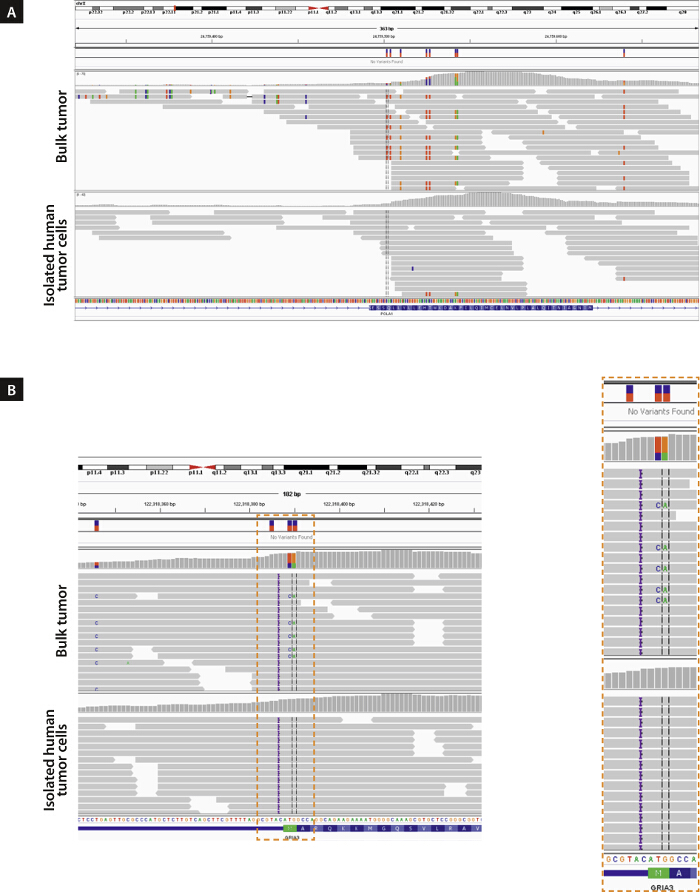
Figure 8. MCD améliore la prédiction de haut impact SNP 15. (A) Impact de MCD sur la prévision SNP dans un exon codant pour la protéine du gène POLA1 19 est illustré. Alors que la souris par erreur mappé lectures a causé un certain nombre de SNP faussement prédits dans la xénogreffe de cancer du rein en vrac, ces SNP ont été portées disparues après MCD. En outre, MCD a également amélioré la prévision de fort impact SNP. Par exemple, la souris se lit mappée sur le génome humain de référence dans l'échantillon de tumeur en vrac entraîné la destruction erronée prédite du codon d'initiation du gène de la GRIA3 (B). Modifié à partir de 15. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
s = "jove_content" fo: keep-together.within-page = "1"> 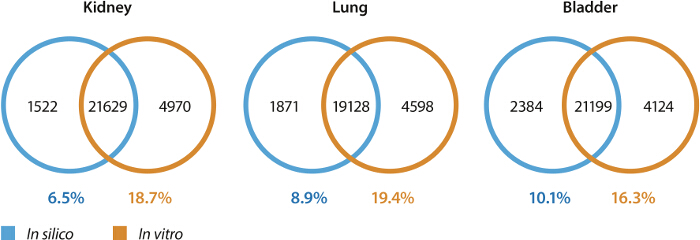
Figure 9. In Silico Épuisement des souris dérivées Reads ne peut pas remplacer entièrement I n Vitro MCD 15. Le lectures prévu pour être d'origine de la souris ont été informatiquement enlevés à partir des données de séquençage, et SNP appel a été répété. Par cette approche, le nombre de SNP prévu pour les échantillons de tumeur en vrac a été considérablement réduite de 63% à 8,5% du nombre total de SNP (comparer avec la figure 8). Cependant, cette approche in silico ne pouvait pas remplacer complètement dans MCD vitro, surtout si l'amélioration de la qualité de l' échantillon et l'augmentation concomitante de la numération de lecture et de la couverture sont considérés. Modifié à partir de 15."_blank"> S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
Discussion
Nous avons développé une méthode rapide et facile à isoler les cellules tumorales humaines intactes du tissu tumoral xénogreffe. Cette procédure est basée sur l'épuisement complet des cellules d'origine murine par la combinaison de dissociation tissulaire automatisé et le triage magnétique de cellules. En plus de l'épuisement de toutes les cellules de souris également la quantité de cellules mortes et les débris est significativement réduite dans la fraction de la cellule cible. Pris dans leur ensemble, ce procédé améliore de façon significative les analyses moléculaires en aval, et la culture des cellules tumorales humaines.
Par contraste avec d'autres méthodes, il n'y a pas besoin de connaissance de marqueurs spécifiques de cellules tumorales, l'ajustement des compositions de cellules de souris ou de mise en place d'algorithmes variables. La méthode présentée est indépendante de la souche de souris et le type de tumeur. Par conséquent, un parti pris par l' isolement des sous - populations tumorales humaines sur la base de marqueurs spécifiques humains simples qui peuvent varier dans l' expression, comme le montre pour EpCAM 11, est évitered. En outre, elle ne se limite pas à la matière tumorale, mais peut être utilisé pour tout type de tissu que les cellules transplantées de la souris sont destinées à la place des sous-populations spécifiques de tumeurs humaines (données non présentées).
élimination complète des cellules de souris est facilitée par le ciblage des épitopes de surface exclusivement exprimés sur les cellules d'origine de la souris. En dehors de la méthode bien établie pour la dissociation de la tumeur telle qu'elle est présentée dans la présente étude, il existe de nombreux procédés utilisant différents types d'enzymes. La conservation des épitopes de surface cellulaire est une condition sine qua non pour ce nouveau procédé, mais également pour des analyses précises des populations de cellules tumorales humaines. Par conséquent, il est crucial que les enzymes douces sont utilisées pour la digestion du tissu tumoral. Ainsi, l'épuisement des cellules de souris ne peuvent être utilisés en combinaison avec des procédés de digestion enzymatique qui ne sont évidemment pas d'effet sur epitopes ciblés durant la procédure cellule d'appauvrissement de la souris. En cas de doute, ce ne peut être vérifié par le fabricant respectif.
Cette méthode fonctionne également pour les cellules humaines circulantes tumorales (CTC). Cependant, comme la fréquence des cellules cibles sont habituellement <0,1% d'élimination des cellules de souris requiert en outre rouge sang lyse des cellules et des puretés de plus de 50% ne peut pas être attendu. Dans ce cas, depletion des cellules de souris peut être utilisé comme pré-enrichissement de CTCs suivie par un enrichissement en utilisant des marqueurs positifs (données non présentées).L'élimination des cellules de souris améliore de manière significative la culture des cellules tumorales humaines, en évitant la culture de surcroissance des fibroblastes de souris. En outre, l'analyse des xénogreffes de tumeurs humaines par séquençage de nouvelle génération est significativement améliorée et standardisée. Comme on l'a observé cet effet même si une sélection ciblée spécifique à la séquence humaine a été réalisée au cours de l'enrichissement de l'exome, l'influence sur le génome entier et le séquençage du transcriptome entier devraient être encore plus important.
De plus, le procédé présenté facilite accuraétudes moléculaires te des sous-populations tumorales au sein de tumeurs humaines xénotransplantées. L' élimination des cellules de souris à partir d' un échantillon respectif dans la première étape et ensuite le tri des cellules tumorales humaines dans les deux sous - populations différentes permet une comparaison directe moléculaire de la sous - population de la tumeur d'intérêt à des cellules tumorales humaines 20 en vrac. l'expression génique différentielle entre les sous-types de cellules tumorales peut être évaluée de façon plus fiable car elle n'a pas été affectée par l'hybridation croisée de molécules dérivées de la souris.
Déclarations de divulgation
David Agorku, Stefan Tomiuk, Stefan Wild, Silvia Rüberg, Lisa Zatrieb, Andreas Bosio et Olaf Hardt sont ou ont été employés de Miltenyi Biotec GmbH, Allemagne. Kerstin Klingner et Julia Schüler sont employées chez Oncotest GmbH, Allemagne.
Remerciements
Nous sommes reconnaissants à Janina Kuhl, Nadine Chelius, Petra Kussmann, Lena Willnow et Dorothee Lenhard pour leur excellente assistance technique.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Kit de dissociation tumorale, humain | Miltenyi Biotec | 130-095-929 | contient les enzymes H, R et A ; voir la fiche technique pour les instructions de reconstitution |
| RPMI 1640 | Biowest | L0501-500 | |
| gentleMACS C-Tubes | Miltenyi Biotec | 130-096-334 | |
| gentleMACS Octo Dissociateur avec radiateurs | Miltenyi Biotec | 130-096-427 | |
| MACS SmartStrainer (70 & micro ; m) | Miltenyi Biotec | 130-098-462 | |
| Boîte de Pétri 100 mm | Divers | ||
| Scalpel | Divers | ||
| Kit d’appauvrissement des cellules de souris | Miltenyi Biotec | 130-104-694 | |
| PBS | Utilisation variée | 1x PBS pour tampon PEB | |
| EDTA | Sigma-Aldrich | 3610 | utilisation concentration finale de 2 mM dans le tampon PEB |
| BSA | Miltenyi Biotec | 130-091-376 | ou utiliser 5 mg/L BSA dans un tampon PEB |
| Colonnes MACS LS | Miltenyi Biotec | 130-042-401 | |
| Séparateur QuadroMACS | Miltenyi Biotec | 130-090-976 | |
| MACS MultiStand | Miltenyi Biotec | 130-042-303 | |
| Filtres PreSep (70 µ ; m) | Miltenyi Biotec | 130-095-823 | |
| Rotateur de tube MACSmix | Miltenyi Biotec | 130-090-753 | |
| CD326-FITC, humain | Miltenyi Biotec | 130-080-301 | utiliser 1:40 pour la coloration par immunofluorescence ; |
| anticorps anti-Vimentine | abcam | ab92547 | |
| chèvre-anti-souris IgG-Alexa488 | Life Technologies | A11029 | |
| chèvre-anti-lapin IgG-Alexa594 | Life Technologies | A11012 | |
| DAPI | Sigma-Aldrich | D9542 | diluer à une concentration finale de 0,1 µ ; g/ml dans 0,1 M de bicarbonate de sodium ; |
| Kit de teinture intérieure | Miltenyi Biotec | 130-090-477 | InsideFix de ce kit peut être utilisé pour l’étape de fixation lors de la coloration par immunofluorescence ; |
| FBS | Divers | ||
| Triton X-100 ; | Sigma-Aldrich | 93418 | |
| FcR Réactif bloquant, souris | Miltenyi Biotec | 130-092-575 | |
| Gélatine | Sigma-Aldrich | G2500-100g | |
| Nextera Rapid Capture Enrichiment | Kit Illumina | FC-140-1000 | |
| Kit de réactifs MiSeq v3 | Illumina | MS-102-3001 |
Références
- Daniel, V. C., et al. A primary xenograft model of small-cell lung cancer reveals irreversible changes in gene expression imposed by culture in vitro. Cancer Res. 69 (8), 3364-3373 (2009).
- Tentler, J. J., et al. Patient-derived tumour xenografts as models for oncology drug development. Nat Rev Clin Oncol. 9 (6), 338-350 (2012).
- DeRose, Y. S., et al. Tumor grafts derived from women with breast cancer authentically reflect tumor pathology, growth, metastasis and disease outcomes. Nat Med. 17 (11), 1514-1520 (2011).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Wong, S. Q., et al. Targeted-capture massively-parallel sequencing enables robust detection of clinically informative mutations from formalin-fixed tumours. Sci Rep. 3, 3494(2013).
- Sausville, E. A., Burger, A. M. Contributions of human tumor xenografts to anticancer drug development. Cancer Res. 66 (7), 3351-3354 (2006).
- Rubio-Viqueira, B., Hidalgo, M. Direct in vivo xenograft tumor model for predicting chemotherapeutic drug response in cancer patients. Clin Pharmacol Ther. 85 (2), 217-221 (2009).
- Reubinoff, B. E., Pera, M. F., Fong, C. Y., Trounson, A., Bongso, A. Embryonic stem cell lines from human blastocysts: somatic differentiation in vitro. Nat Biotechnol. 18 (4), 399-404 (2000).
- Merk, J., Rolff, J., Becker, M., Leschber, G., Fichtner, I. Patient-derived xenografts of non-small-cell lung cancer: a pre-clinical model to evaluate adjuvant chemotherapy. Eur J Cardiothorac Surg. 36 (3), 454-459 (2009).
- Baiocchi, M., Biffoni, M., Ricci-Vitiani, L., Pilozzi, E., De Maria, R. New models for cancer research: human cancer stem cell xenografts. Curr Opin Pharmacol. 10 (4), 380-384 (2010).
- Gires, O., Stoecklein, N. H. Dynamic EpCAM expression on circulating and disseminating tumor cells: causes and consequences. Cell Mol Life Sci. 71 (22), 4393-4402 (2014).
- Zhang, C. C., et al. Synergistic effect of the gamma-secretase inhibitor PF-03084014 and docetaxel in breast cancer models. Stem Cells Transl Med. 2 (3), 233-242 (2013).
- Boven, E., et al. Phase II preclinical drug screening in human tumor xenografts: a first European multicenter collaborative study. Cancer Res. 52 (21), 5940-5947 (1992).
- Agorku, D., Hardt, O., Bosio, A. Depletion of mouse cells from human tumor xenografts significantly reduces bias in molecular analysis and improves culture of target cells. Abstract 95. , AACR. (2014).
- Agorku, D., et al. Next-generation sequencing of human tumor xenografts is significantly improved by prior depletion of mouse cells. Abstract 1455. , AACR. (2015).
- Bolger, A. M., Lohse, M., Usadel, B. Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics. 30 (15), 2114-2120 (2014).
- Li, H., Durbin, R. Fast and accurate short read alignment with Burrows-Wheeler transform. Bioinformatics. 25 (14), 1754-1760 (2009).
- Koboldt, D. C., Larson, D. E., Wilson, R. K. Using VarScan 2 for Germline Variant Calling and Somatic Mutation Detection. Curr Protoc Bioinformatics. 44, (2013).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Aloia, A., et al. The sialyl-glycolipid stage-specific embryonic antigen 4 marks a subpopulation of chemotherapy-resistant breast cancer cells with mesenchymal features. Breast Cancer Res. 17 (1), 146(2015).
Réimpressions et autorisations
