Marquage immunohistochimique des isoformes de la chaîne lourde de myosine a émergé comme le discriminant de l’état-of-the-art des fibres musculaires squelettiques de type (c'est-à-direde type I, type IIA, tapez IIX, type IIB). Nous présentons ici un protocole de coloration avec un nouvel algorithme semi automatisé qui facilite l’évaluation rapide de la morphologie de type fibre et fibre.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Analyse semi-automatique de souris Muscle squelettique morphologie et la Composition de la fibre de type
Dans cet article
Résumé
Résumé
Pendant des années, distinctions entre les types de fibres musculaires squelettiques ont été mieux visualisées par la souillure de la myosine-ATPase. Plus récemment, la coloration immunohistochimique des isoformes de myosine lourde chaîne (chaîne) a émergé comme un discriminateur plus fin des fibres de type. De type I, type IIA, le type IIX et de fibres de type IIB peuvent être identifiés avec précision selon leur profil de chaîne ; Cependant, l’analyse manuelle de ces données peut être lent et bas-droite fastidieux. À cet égard, une évaluation rapide et précise de la composition de la fibre de type et de la morphologie est un outil très souhaitable. Nous présentons ici un protocole pour une coloration immunohistochimique de l’état-of-the-art de chaînes lourdes de myosine dans les coupes congelées provenant du muscle du membre postérieur souris en concert avec un nouvel algorithme semi-automatisé qui accélère l’analyse de la morphologie de type fibre et fibre. Comme prévu, le muscle soléaire affiche une coloration pour type I et type fibres IIA, mais pas pour les fibres de type IIX ou type IIB. En revanche, le muscle jambier antérieur était essentiellement composé de fibres IIB type IIX et le type, une petite fraction des fibres de type IIA et peu ou pas fibres de type I. Plusieurs transformations d’image ont été utilisées pour générer des cartes de probabilité dans le but de mesurer les différents aspects de la morphologie de la fibre (c.-à-d., section transversale (CSA), diamètre de Feret maximal et minimal). Les valeurs obtenues pour ces paramètres ont ensuite été comparées avec les valeurs obtenues manuellement. Pas de différences significatives ont été observées entre deux modes d’analyse en ce qui concerne les CSA, maximal ou minimal diamètre Feret (tous p > 0,05), indiquant la précision de notre méthode. Ainsi, notre protocole d’analyse immuno-coloration peut être appliquée à l’étude des effets sur la composition de muscle dans de nombreux modèles de vieillissement et de la myopathie.
Introduction
On sait depuis longtemps que le muscle squelettique est composé de fibres isolées de nombreux types1. Au départ, deux groupes de fibres ont été caractérisées selon leurs propriétés contractiles et nommé, convenablement, contraction lente (type I) et rapides (type II). Ces catégories sont distinguent encore sur la base du métabolisme de la fibre. Depuis de type I fibres sont riches en mitochondries et tributaire de métabolisme oxydatif, ils ont été élucidées par robustement positive nicotinamide adénine dinucléotide-tétrazolium réductase (NADH-TR) diaphorase2 ou succinate déshydrogénase (SDH)3 la coloration. En revanche, les fibres de type II exposé moindre et des degrés variables de TR-NADH diaphorase ou SDH coloration et ont été divisés en deux sous-groupes de contraction rapide (types IIA et IIB) un peu grossièrement basée sur leur capacité oxydative relative. Ces distinctions entre les fibres ont été visualisées plus efficacement par la myosine-ATPase coloration où de type I fibres tachent sombres après une pré incubation à pH 4,0 et absorbent les fibres de type IIB précipitée après incubation préalable à pH 10,0 avec des fibres de type IIA la coloration moyennement4.
Plus récemment, la coloration immunohistochimique des isoformes de myosine lourde chaîne (chaîne) a émergé comme un discriminateur plus fin des fibres de type5. De type I, type IIA et les fibres de type IIB peuvent être tous identifiés avec précision selon leur profil de chaîne. En outre, un autre type de contraction rapide métaboliquement intermédiaire fibre, tapez IIX, a été identifié6. Les fibres hybrides exprimant plus d’une chaîne ont également été confirmés5,7,8. Certaines espèces comme le chat et le babouin n’est pas connues de myosine de Type IIB express6. Si la chaîne immunostaining est actuellement à l’évaluation de l’état-of-the-art de la composition du muscle, l’analyse des données obtenues par l’intermédiaire de cette technique est lourd et fastidieux sans aide automatisée. À cette fin, une poignée de méthodes semi-automatisé pour analyser ces données ont été développés5,9,10. Nous présentons ici un protocole relativement standard pour l’identification immunohistochimique des fibres musculaires de type5,7,8,10, avec un roman semi-automatisé algorithme qui accélère l’analyse de la morphologie de type fibre et fibre avec précision.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
toutes les procédures impliquant des souris ont été approuvés par l’Université du Colorado-Anschutz médicale Campus institutionnels et animalier Comité d’urbanisme (91813(05)1D).
1. jour 1 : primaires (1°) immunomarquage avec blocage Bovine Serum Albumin (BSA)
- sechage coupes congelées de muscle du membre postérieur de la souris (par exemple, jambier antérieur, muscle soléaire) montés sur des diapositives chargées pour ~ 30 min 11. dessiner une bordure autour les sections à l’aide d’un stylo PAP barrière hydrophobe.
- Place ~ 250 µL de solution saline tamponnée au phosphate/BSA 5 % (BSA/PBS) sur chaque diapositive pour bloquer la liaison de l’anticorps non spécifiques. Incuber les lames à température ambiante pendant 1 h.
- Tout en bloquant, préparer à 01:50 les dilutions de l’anticorps 1 ° surnageant dans 5 % BSA/PBS (tous sont des anticorps monoclonaux de souris ; voir tableau 1 6 , 12) préparer 250 µL de solution par diapositive. Garder des stocks d’anticorps de 1° et des dilutions sur Ice.
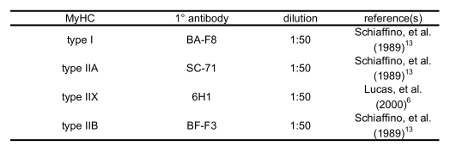
tableau 1 : anticorps primaires utilisés pour distinguer les chaînes lourdes de myosine.
- suite à l’aspiration de la solution de saturation 5 % BSA/PBS, ajouter 250 µL de dilution de 1° anticorps aux diapositives appropriés. Ajouter 250 µL de 5 % BSA/PBS au secondaire (2°) anticorps seule témoin négatif glisse.
- Incuber à 4 ° C pendant 24 à 48 heures dans une atmosphère humide.
Remarque : Une boîte de Pétri couvert de papier d’aluminium avec du papier filtre imbibé peut servir une chambre d’incubation approprié.
2. Jour 2:2 ° immunohistochimie avec des anticorps fluorescents
- aspirer la solution d’anticorps 1° ou 5 % BSA/PBS solution de contrôle. Lavez tout glisse trois fois, 10 min avec 5 % de BSA.
- Tout laver, préparer des dilutions de 1 : 200 des anticorps purifiés, conjugué à un fluorophore 2 ° 5 % BSA/PBS (voir tableau 2, tous sont chèvre anti-souris). Préparez 250 µL de solution par diapositive. Garder les anticorps conjugué à un fluorophore 2° dans l’obscurité sur la glace

tableau 2 : anticorps secondaire conjugué à un Fluorophore utilisé pour visualiser les principaux anticorps reconnaissance de chaînes lourdes de myosine.
- suite à l’aspiration de la troisième demande de solution de saturation 5 % BSA/PBS, ajouter 250 µL de dilution d’anticorps de 2° à toutes les diapositives. Incuber pendant 90 min à température ambiante dans un environnement sombre et humide.
- Solution d’anticorps obtenus par aspiration 2°. Lavez tout glisse trois fois, 10 min avec 5 % BSA/PBS.
- Rinçage avec du PBS. Sécher pendant 10 min.
- Monter la lamelle avec un milieu de montage aqueux non permanents, de faible viscosité.
- Une fois sec, sceller les bords de la diapositive avec vernis à ongles. Sécher et mettre dans un sombre slidebox.
3. Imagerie des diapositives avec la microscopie à épifluorescence
- nettoyer les lames avec une petit, 70 % éthanol imbibé lab-lingette.
- Obtenir des images numériques des sections de muscle d’immunomarquage à l’aide d’un microscope à épifluorescence équipé d’un appareil photographique (voir la Table des matières).
- Sélectionnez une zone d’environ 1 mm 2 (objectif 10 X, NA 1,4). Filtre
- vue fluorescence anticorps conjugué Alexa 488 2° via une 505 nm long-pass. Découvre la fluorescence générée par l’excitation des anticorps conjugué Alexa 594 2° via un filtre de passe longue 595 nm. Numériser des images avec un ordinateur PC équipé d’un logiciel d’imagerie compatible. Inclure l’échelle graphique du logiciel pour une analyse ultérieure d’imagerie.
4. Analyse d’Images avec les îles Fidji
Remarque : avant de procéder à l’analyse, les Fidji (disponible gratuitement sur le National Institutes of Health, Bethesda, MD) doit être installé par l’intermédiaire de https://imagej.net/Fiji/Downloads. En outre, la macro utilisée dans ce processus est fournie dans le Fichier supplémentaires. Placez le fichier de macro dans un répertoire facilement accessible.
Image de- charge un fond clair d’une section sélectionnée dans les îles Fidji. Accédez au Plugins → Segmentation → Segmentation Weka Trainable.
- Afin de préciser les zones cellulaires de la section, tracez une ligne sur une fibre et cliquez sur " ajouter à la classe 1 ". Puis, tracez une ligne sur l’espace entre les fibres, puis cliquez sur " ajouter à la classe 2 " pour marquer les domaines extracellulaires. Répétez jusqu'à ce qu’il y a 5-10 étiquettes dans chaque classe.
- Cliquez sur Train classifieur. Sur la superposition rouge et verte qui en résulte, ajouter des étiquettes plus manuellement (Voir l’étape 4.2) aux pièces mal segmentées de l’image, si nécessaire. Répétez jusqu'à ce que les fibres (rouge) sont bien séparées de l’espace entre les fibres (vert).
- Cliquez " probabilité d’obtenir " et enregistrez l’image dans un dossier nouvellement étiqueté.
- Répéter la procédure ci-dessus (étapes 4.2 et 4.3) avec l’image fluorescente prise sur le même terrain. Immunomarquage fibres comme l’étiquette " classe 1 " et toutes les régions non fluorescent comme " classe 2 ". Enregistrer la carte de probabilité résultante dans le même dossier où l’image de fond clair transformés est stockée.
- Ouvrir une des cartes probabilité enregistré précédemment à Fidji. Dessiner une ligne droite sur la barre d’échelle fournie par le logiciel d’imagerie. Aller à analyser → définissez échelle. Modifier les paramètres (p. ex., distance connue, unité de longueur) à leurs valeurs appropriées telle que donnée par la barre d’échelle, puis vérifiez le " Global " boîte de normaliser l’échelle pour chaque image.
- Accédez à Plugins → Macros → Run → Tyagi et coll. fibre quantification macro.ijm (voir le Fichier supplémentaire). Immédiatement, un volet de navigation s’affiche. Ouvrez l’image ' dossier d’hôte s ; une boîte de dialogue apparaîtra. Pour chaque boîte de dialogue Modifier le " fond " valeur dropdown à " lumière. "
Remarque : le dossier est maintenant rempli avec des images des contours fibre et fichiers logiciel tableur des résultats (CSA et Feret diamètre sont plus pertinents dans quantifier la morphologie des fibres ; paramètres mesurés peuvent être ajustées à analyser les mesures de la valeur). Données de morphologie de fibre générées par la fonction de pore-analyse des Fidji seront automatiquement transférées à fichiers logiciel tableur pour les deux images de champ fluo et lumineux. - Calculer la fraction de fibres exprimant une chaîne donnée dans un champ en divisant le nombre de fibres fluorescentes dans le domaine par le nombre de fibres totales dans l’image correspondante du champ lumineux.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Muscles postérieurs (p. ex., jambier antérieur, muscle soléaire), disséqués de souris C57BL/6 mâles d’âge inconnu ont été flash congelés en fonçant un moule en plastique contenant le muscle en OCT composé dans l’isopentane refroidi à l’azote liquide. Puis, coupes sériées de 8-10 µm en utilisant un cryotome, ont été coupés à-20 ° C et transférés à différents verre chargé positivement diapositives12.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Ici, nous avons fourni une orientation utile pour l’identification des types de fibres musculaires squelettiques. Ce faisant, les auteurs décrivent un nouvel algorithme pour l’analyse des données.
Étant donné que dans une large mesure, nos résultats confirment ceux des précédents rapports5,8,10 et reflètent nos propres mesures manuelles, l’algorithme semble être précis. Pourtant, nous avons rencontré ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont aucun intérêt contradictoires de divulguer.
Remerciements
Nous sommes reconnaissants à la Fondation de Boettcher et l’Association de la sclérose latérale amyotrophique (#17-II-344) pour leur soutien à cette recherche.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Albumine sérique bovine | Sigma Aldrich | A9418-100G | 5 % dans PBS |
| Barrière hydrophobe Pap Pen | Dispositif scientifique Laboratoire | 9804-02 | |
| Lames de microscope | Globe Scientific | 1358W | |
| Coverglass | Fisher Scientific | 12-544-E | |
| Immumount | Thermo Scientific | 9990402 | |
| Vernis à ongles | L’Oréal | ||
| Nikon Eclipse TE-200 Microscope à fluorescence inversée et à fond clair | abandonné | ||
| 1:50 | |||
| SC-71 Études de développement d’anticorps primaires | d’hybridomes de souris monclonales IgG1 de l’Université de l’Iowa | ; 1:50 | |
| BF-F3 Études de développement d’anticorps primaires | Banque d’hybridomes de souris monoclonales de l’Université de l’Iowa | IgGM ; 1 | |
| Banque d’hybridomes de souris monoclonales de l’Université de l’Iowa | |||
| Alexa Fluor 594 anti-IgG2b | Invitrogen | A21145 | chèvre anti-souris ; 1:200 |
| Alexa Fluor 488 anti-IgG1 | Invitrogen | A21121 | chèvre anti-souris ; 1:200 |
| Alexa Fluor 594 anti-IgGM | Invitrogen | A21044 | chèvre anti-souris ; 1:200 |
| OCT | Sakura Finetek | 4583 | |
| isopentane | Fisher Scientific | O3551-4 | refroidir avec de l’azote liguid |
| PBS | Fisher Bioreagents | BP665-1 | 10x, diluer à 1x |
| Kim wipes | Kimberly-Clark | 06-666A |
Références
- Engel, W. K. The essentiality of histo- and cytochemical studies of skeletal muscle in the investigation of neuromuscular disease. Neurol. 12, 778-784 (1962).
- Dobrowolny, G., et al. Skeletal muscle is a primary target of SOD1G93A-mediated toxicity. Cell Metab. 8, 425-436 (2008).
- Sultana, N., et al. Restricting calcium currents is required for correct fiber type specification in skeletal muscle. Development. 143 (9), 1547-1559 (2016).
- Guth, L., Samaha, F. J. Procedure for the histochemical demonstration of actomyosin ATPase. Exp Neurol. 28 (2), 365-367 (1970).
- Bloemberg, D., Quadrilatero, J. Rapid determination of myosin heavy chain expression in rat, mouse, and human skeletal muscle using multicolor immunofluorescence analysis. PLoS One. 7 (4), (2012).
- Lucas, C. A., Kang, L. H., Hoh, J. F. Monospecific antibodies against the three mammalian fast limb myosin heavy chains. Biochem Biophys Res Commun. 272 (1), 303-308 (2000).
- Lee, C. S., et al. Ca2+ permeation and/or binding to Cav1.1 fine-tunes skeletal muscle Ca2+ signaling to sustain muscle function. Skelet Muscle. 5 (4), (2015).
- Sawano, S., et al. A one-step immunostaining method to visualize rodent muscle fiber type within a single specimen. PLoS One. 11 (11), (2016).
- Meunier, B., Picard, B., Astruc, T., Labas, R. Development of image analysis tool for the classification of muscle fibre type using immunohistochemical staining. Histochem Cell Biol. 134 (3), 307-317 (2010).
- Kammoun, M., Casser-Malek, I., Meunier, B., Picard, B. A simplified immunohistochemical classification of skeletal muscle fibres in mouse. Eur J Histochem. 58 (2), 2254(2014).
- Kumar, A., Accorsi, A., Rhee, Y., Girgenrath, M. Do's and don'ts in the preparation of muscle cryosections for histological analysis. J Vis Exp. (99), (2015).
- Schiaffino, S., et al. Three myosin heavy chain isoforms in type 2 skeletal muscle fibres. J Muscle Res Cell Motil. 10 (197), (1989).
- Augusto, V., Padovani, C. R., Campos, G. E. R. Skeletal muscle fiber types in C57Bl6j mice. Braz J Morphol Sci. 21 (2), 89-94 (2004).
- Schiaffino, S., Reggiani, C. Fiber types in mammalian skeletal muscles. Physiol Rev. 91 (4), 1447-1531 (2011).
- Allen, D. L., Harrison, B. C., Maass, A., Bell, M. L., Byrnes, W. C., Leinwand, L. A. Cardiac and skeletal muscle adaptations to voluntary wheel running in the mouse. J Appl Physiol. 90 (5), 1900-1908 (2001).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
