Ce protocole décrit un système de culture dynamique pour produire des agrégats de taille contrôlée des cellules souches pluripotentes humaines et stimuler davantage la différenciation des organoïdes cérébellaires dans des conditions chimiquement définies et sans alimentation à l’aide d’un bioréacteur à usage unique.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Génération évolutive d’Organoïdes cérébellaires matures à partir de cellules souches pluripotentes humaines et caractérisation par immunostaining
Dans cet article
Résumé
Résumé
Le cervelet joue un rôle critique dans le maintien de l’équilibre et de la coordination motrice, et un défaut fonctionnel dans différents neurones cérébellaires peut déclencher un dysfonctionnement cérébelleux. La plupart des connaissances actuelles sur les phénotypes neuronaux liés à la maladie sont basées sur des tissus post mortem, ce qui rend difficile la compréhension de la progression et du développement de la maladie. Des modèles animaux et des lignées cellulaires immortalisées ont également été utilisés comme modèles pour les troubles neurodégénératifs. Cependant, ils ne récapitulent pas complètement la maladie humaine. Les cellules souches pluripotentes induites par l’homme (iPSC) ont un grand potentiel pour la modélisation des maladies et fournissent une source précieuse pour les approches régénératrices. Ces dernières années, la génération d’organoïdes cérébraux à partir d’iPSC dérivés du patient a amélioré les perspectives de modélisation des maladies neurodégénératives. Cependant, les protocoles qui produisent un grand nombre d’organoïdes et un rendement élevé de neurones matures dans les systèmes de culture 3D font défaut. Le protocole présenté est une nouvelle approche pour la production reproductible et évolutive d’organoïdes humains dérivés de l’iPSC dans des conditions chimiquement définies à l’aide de bioréacteurs évolutifs à usage unique, dans lesquels les organoïdes acquièrent l’identité cétebelaire. Les organoïdes générés sont caractérisés par l’expression de marqueurs spécifiques à la fois au niveau de l’ARNm et des protéines. L’analyse de groupes spécifiques de protéines permet la détection de différentes populations de cellules cérebelaires, dont la localisation est importante pour l’évaluation de la structure organoïde. La cryosection organoïde et l’immunostaining supplémentaire des tranches organoïdes sont utilisés pour évaluer la présence de populations spécifiques de cellules cérebelaires et leur organisation spatiale.
Introduction
L’émergence de cellules souches pluripotentes humaines (CSP) représente un excellent outil pour la médecine régénérative et la modélisation des maladies, parce que ces cellules peuvent être différenciées dans la plupart des lignées cellulaires du corps humain1,2. Depuis leur découverte, la différenciation psc utilisant diverses approches a été rapportée pour modéliser différentes maladies, y compris les désordres neurodégénératifs3,4,5,6.
Récemment, il y a eu des rapports des cultures 3D dérivées des PSC ressemblant aux structures cérébrales humaines ; ceux-ci sont appelés organoïdes du cerveau3,7,8. La génération de ces structures à partir de CSP sains et spécifiques aux patients offre une occasion précieuse de modéliser le développement humain et les troubles neurodéveloppementaux. Cependant, les méthodes utilisées pour générer ces structures cérébrales bien organisées sont difficiles à appliquer pour leur production à grande échelle. Pour produire des structures suffisamment grandes pour récapituler la morphogenèse tissulaire sans nécrose à l’intérieur des organoïdes, les protocoles s’appuient sur l’engagement neuronal initial dans des conditions statiques, suivi de l’encapsulation dans les hydrogels et de la culture subséquente dans les systèmes dynamiques3. Toutefois, de telles approches peuvent limiter l’augmentation potentielle de la production d’organoïdes. Même si des efforts ont été faits pour diriger la différenciation psc à des régions spécifiques du système nerveux central, y compris cortical, striatal, midbrain, et les neurones de la moelle épinière9,10,11,12, la génération de régions spécifiques du cerveau dans des conditions dynamiques est toujours un défi. En particulier, la génération de neurones cérebelaires matures dans les structures 3D n’a pas encore été décrite. Muguruma et coll. ont été les pionniers de la génération de conditions culturelles qui récapitulent le développement cérébellaire précoce13 et ont récemment signalé un protocole qui permet aux cellules souches embryonnaires humaines de générer une structure polarisée rappelant le cervelet du premier trimestre7. Cependant, la maturation des neurones cérébellaires dans les études rapportées nécessite la dissociation des organoïdes, le tri des progéniteurs cérébellaires, et la coculture avec des cellules d’alimentation dans un système de culture monocouche7,14,15,16. Par conséquent, la génération reproductible des organoïdes cérébellaires désirés pour la modélisation de la maladie dans des conditions définies est toujours un défi associé à la culture et à la variabilité des sources d’alimentation.
Ce protocole présente des conditions de culture optimales pour l’expansion 3D et une différenciation efficace des CSP humains en neurones cérébellaires à l’aide de bioréacteurs à roue verticale à usage unique (voir tableau des matériaux pour les spécifications), ci-après appelé bioréacteurs. Les bioréacteurs sont équipés d’un grand rotor vertical, qui, en combinaison avec un fond en forme de U, fournissent une distribution de cisaillement plus homogène à l’intérieur du récipient, permettant un mélange doux et uniforme et la suspension des particules avec des vitesses d’agitation réduites17. Avec ce système, des agrégats cellulaires contrôlés par la forme et la taille peuvent être obtenus, ce qui est important pour une différenciation plus homogène et plus efficace. En outre, un plus grand nombre d’organoïdes dérivés de l’iPSC peuvent être générés d’une manière moins laborieuse.
La principale caractéristique des organoïdes, qui sont des structures multicellulaires 3D habituellement formées à partir de cellules souches, est l’auto-organisation de différents types de cellules qui forme des formes spécifiques comme celles observées dans la morphogenèse humaine18,19,20. Par conséquent, la morphologie organoïde est un critère important à évaluer au cours du processus de différenciation. La cryosection des organoïdes et l’immunostaining supplémentaire des tranches d’organoïdes avec un ensemble spécifique d’anticorps permettent la visualisation spatiale des marqueurs moléculaires pour analyser la prolifération cellulaire, la différenciation, l’identité de la population cellulaire et l’apoptose. Avec ce protocole, par cryosections organoïdes immunostaining, un engagement neuronal efficace initial est observé par le7ème jour de différenciation. Au cours de la différenciation, plusieurs populations cellulaires avec l’identité cérebelaire sont observées. Après 35 jours dans ce système dynamique, le neuroépithélium cérébellaire s’organise le long d’un axe apicobasal, avec une couche apicale de progéniteurs proliférants et de neurones postmitotiques basally situés. Au cours du processus de maturation, à partir des jours 35 à 90 de différenciation, des types distincts de neurones cérébellaires peuvent être vus, y compris les cellules Purkinje (Calbindin+), les cellules de granule (PAX6+/MAP2+), les cellules Golgi (Neurogranin+), les cellules de brosse unipolaires (TBR2+), et les neurones profonds de projection de noyaux cérébraux (TBR1+). En outre, une quantité non significative de mort cellulaire est observée dans les organoïdes cérébellaires générés après 90 jours dans la culture.
Dans ce système, les organoïdes humains dérivés de l’iPSC mûrissent en différents neurones cérébellaires et survivent jusqu’à 3 mois sans avoir besoin de dissociation et de coculture de mangeoire, fournissant une source de neurones cérebelaires humains pour la modélisation des maladies.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1. Passage et entretien des iPSCs humains dans la culture monocouche
- Préparation des plaques
- Décongeler la matrice membranaire du sous-sol (voir tableau des matériaux)à 4 °C et préparer 60 aliquots μL. Congeler les aliquots à -20 °C.
- Pour recouvrir les puits d’une plaque de 6 puits, décongeler un aliquot de la matrice de membrane du sous-sol sur la glace. Une fois décongelé, ajouter 60 μL à 6 mL de DMEM-F12. Resuspendez doucement en faisant des pipes de haut en bas.
- Ajouter 1 mL de solution diluée de matrice de membrane de sous-sol à chaque puits d’une plaque de 6 puits et incuber à RT pendant au moins 1 h avant de passer ou de stocker à 4 °C pendant jusqu’à 1 semaine.
- Passage des colonies iPSC avec EDTA
- Maintenir les iPSC dans la culture monocouche dans 6 plaques de puits dans l’incubateur à 37 °C, 95% d’humidité et 5% de CO2.
REMARQUE : Dans ce protocole, trois lignes iPSC humaines distinctes ont été utilisées : F002.1A.1321, ligne iPSC épisomale humaine (iPSC6.2)22, et iPS-DF6-9-9T.B obtenue commercialement (voir tableau des matériaux). - Avant de passer, incuber les plaques stockées (étape 1.1) à température ambiante (RT) pendant 15 min et préparer le milieu mTesR1 (tableau 1).
- Apirate la solution de la plaque à l’aide d’une pipette sérologique et ajouter immédiatement 0,5 mL de milieu mTeSR1 à chaque puits.
- Apirate le milieu usé du puits contenant des iPSC et laver une fois à l’aide de 1 mL de 0,5 mM EDTA par puits.
- Ajouter 1 mL de 0,5 mM EDTA à chaque puits et incuber à RT pendant 5 min.
- Aspirate EDTA et retirer les cellules des puits en ajoutant doucement le milieu mTeSR1 et en canalisant les colonies à l’aide d’une micropipette P1000. Recueillir les cellules dans un tube conique.
REMARQUE : Ne pas pipette cellules de haut en bas de plus de 3x. - Ajoutez 1 mL de suspension cellulaire (dilué 1:4) à chaque puits de sorte que chaque puits contient 1,5 mL de milieu après l’ajout de la suspension cellulaire. Retourner les cellules à l’incubateur à 5% CO2, 37 °C.
- Remplacez le milieu dépensé tous les jours et passez tous les 3 jours lorsque la confluence de 75 à 80 %.
- Maintenir les iPSC dans la culture monocouche dans 6 plaques de puits dans l’incubateur à 37 °C, 95% d’humidité et 5% de CO2.
2. Semis d’iPSCs humains dans le bioréacteur
- Incuber les iPSC cultivés sous forme de monocouches dans mTeSR1 complétés par 10 μM d’inhibiteur de rock Y-27632 (ROCKi). Ajouter 1 mL de milieu complété à chaque puits à partir d’une plaque de culture tissulaire de 6 puits et incuber pendant 1 h à 37 °C, 95% d’humidité et 5% de CO2.
REMARQUE : ROCKi est utilisé pour protéger les iPSC dissociés de l’apoptose23. - Après 1 h d’incubation, apirate le milieu usé de chaque puits et laver 1x avec 1 mL de 1× PBS par puits.
- Ajouter 1 mL du milieu de détachement cellulaire (voir tableau des matériaux)à chaque puits d’une plaque de 6 puits et incuber à 37 °C pendant 7 min jusqu’à ce que les cellules se détachent facilement des puits avec une secousse douce.
- Pipette le milieu de détachement cellulaire de haut en bas avec une micropipette P1000 jusqu’à ce que les cellules se détachent et se dissocient en cellules uniques. Ajouter 2 ml de milieu de culture cellulaire complète à chaque puits pour inactiver la digestion enzymatique et pipette les cellules doucement dans un tube conique stérile.
- Centrifugeuse à 210 × g pendant 3 min et retirer le supernatant.
- Resuspendez le granulé cellulaire dans le milieu de culture (c.-à-d. mTeSR1 complété par 10 μM de ROCKi) et comptez les iPSC avec un hémocytomètre à l’aide de colorant bleu trypan.
- Graine 15 × 106 cellules individuelles dans le bioréacteur (volume maximum de 100 mL) avec 60 mL de mTeSR1 complété par 10 μM de ROCKi à une densité cellulaire finale de 250 000 cellules/mL.
- Insérez le récipient contenant les iPSC dans l’unité de base universelle placée dans l’incubateur à 37 °C, 95 % d’humidité et 5 % de CO2.
REMARQUE : L’agitation du bioréacteur est maintenue pendant 24 h en fixant le contrôle universel de l’unité de base à 27 tr/min pour promouvoir l’agrégation iPSC.
3. Différenciation et maturation des agrégats humains dérivés d’iPSC dans les organoïdes cérébellaires
- Définissez le jour de l’ensemencement à cellule unique comme jour 0.
- Le premier jour, prélever 1 mL de l’échantillon d’agrégats iPSC à l’aide d’une pipette sérologique. Maintenir le bioréacteur sous agitation comme auparavant en plaçant l’unité de base universelle avec le bioréacteur contenant les agrégats dans un flux stérile avant la collecte de l’échantillon. Plaquez la suspension cellulaire dans une plaque de puits à très basse fixation 24. Vérifiez que les agrégats dérivés d’iPSC sont formés.
- Acquérir des images avec un microscope optique à l’aide d’un grossissement total de 40x ou 100x pour mesurer le diamètre total.
- Mesurer la zone des agrégats dans chaque image à l’aide du logiciel FIJI.
- Sélectionnez "Analyser | Définissez les mesures" à partir de la barre de menu et cliquez sur "Area" et "OK« .
- Sélectionner "Fichier | Ouvrez" à partir de la barre de menu pour ouvrir un fichier image stocké. Sélectionnez l’outil de sélection de lignes présenté dans la barre d’outils et créez une ligne droite sur la barre d’échelle présentée dans l’image. Sélectionnez "Analyser | Définir l’échelle" à partir de la barre de menus.
- Dans " Distance connue« , ajoutez l’étendue de la barre d’échelle de l’image en μm. Définirl'« unité de longueur» comme μm. Cliquez sur "Global" pour maintenir les réglages et "OK« . Sélectionnez Sélection ovale dans la barre d’outils.
- Pour chaque agrégat délimitez la zone avec l’outil ovale. Sélectionnez "Analyser | Mesure« . Calculer leur diamètre en fonction de la superficie mesurée, étant donné que les agrégats sont approximativement sphériques
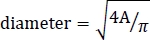
avec A comme zone de l’agrégat.
- Lorsque le diamètre moyen des agrégats est de 100 μm, remplacer 80 % du milieu dépensé par du mTeSR1 frais sans ROCKi. Lorsque les agrégats atteignent 200–250 μm de diamètre, remplacez tous les milieux usés par du gfCDM (tableau 1),en laissant les organoïdes s’installer au fond du bioréacteur.
REMARQUE : Si le diamètre total moyen dépasse 350 μm, ne démarrez pas le protocole de différenciation. Répétez l’ensemencement de cellules individuelles. En général, il faut environ 1 jour pour que l’agrégat atteigne un diamètre moyen de 100 μm. - Insérez le bioréacteur contenant les agrégats dans l’unité de base universelle placée dans l’incubateur à 37 °C, 95% d’humidité et 5% de CO2.
- Diminuer l’agitation bioréacteur à 25 tr/min.
- Le jour 2, répétez les étapes 3.2, 3.3 et 3.4 pour évaluer le diamètre global. Ajouter 30 μL de FGF2 (concentration finale, 50 ng/mL) et 60 μL de SB431542 (concentration finale, 10 μM) à 60 mL de milieu de différenciation gfCDM (tableau 1). Remplacez tous les milieux dépensés du bioréacteur par le gfCDM complété. Répétez l’étape 3.6.
NOTE: SB431542 est crucial pour inhiber la différenciation mésendodermique, induisant la différenciation neuronale24. FGF2 est utilisé pour promouvoir la caudalisation du tissu neuroepithelial25. - Le jour 5, répétez les étapes 3.2, 3.3, 3.4 et 3.8.
REMARQUE : La taille globale doit augmenter au cours du protocole de différenciation. Cependant, le diamètre n’est critique que lorsque la différenciation commence, car ce paramètre pourrait influencer l’efficacité de la différenciation. - Le jour 7, répétez les étapes 3.2, 3.3 et 3.4. Diluer FGF2 et SB431542 à 2/3 : Ajouter 20 μL de FGF2 et 40 μL de SB431542 à 60 mL de milieu de différenciation gfCDM. Remplacer tous les milieux dépensés du bioréacteur par un gfCDM complété. Répétez l’étape 3.6 et augmentez l’agitation bioréacteur à 30 tr/min.
- Le jour 14, répétez les étapes 3.2, 3.3 et 3.4. Ajouter 60 μL de FGF19 (concentration finale, 100 ng/mL) à 60 mL de milieu de différenciation gfCDM. Remplacer tous les milieux dépensés du bioréacteur par gfCDM complété par FGF19. Répétez l’étape 3.6.
REMARQUE : Le FGF19 est utilisé pour promouvoir la polarisation des structures du cerveaumoyen-arrière 26. - Le jour 18, répétez les étapes 3.2, 3.3, 3.4 et 3.11.
- Le jour 21, répétez les étapes 3.2, 3.3 et 3.4. Remplacer tous les milieux passés du bioréacteur par un milieu neurobasal complet (Tableau 1). Répétez l’étape 3.6.
REMARQUE : Le milieu neurobasal est un milieu basal utilisé pour maintenir la population de cellules neuronales dans l’organoïde7. - Le jour 28, répétez les étapes 3.2, 3.3 et 3.4. Ajouter 180 μL de SDF1 (concentration finale, 300 ng/mL) à 60 mL de milieu neurobasal complet. Remplacez tous les milieux dépensés du bioréacteur par un milieu neurobasal complet complété par SDF1. Répétez l’étape 3.6.
REMARQUE : SDF1 est utilisé pour faciliter l’organisation de couches cellulaires distinctes27. - Le jour 35, répétez les étapes 3.2, 3.3 et 3.4. Remplacer tous les milieux passés du bioréacteur par un milieu BrainPhys complet (Tableau 1). Répétez l’étape 3.6.
REMARQUE : BrainPhys est un milieu neuronal qui soutient les neurones synaptiquement actifs28. - Remplacez 1/3 du volume total tous les 3 jours par un milieu BrainPhys complet jusqu’au jour 90 de la différenciation.
4. Préparation d’organoïdes pour la cryosection et l’immunohistorique
- Collection d’organoïdes pour l’immunostaining
- Recueillir 1 ml d’échantillon d’organoïdes contenant des aliments moyens à l’aide d’une pipette sérologique du bioréacteur à un tube conique de 15 mL.
REMARQUE : Les Organoïdes doivent être recueillis à différents délais pour évaluer l’efficacité de la différenciation, y compris les jours 7, 14, 21, 35, 56, 70, 80 et 90. - Retirer le supernatant et laver une fois avec 1 mL de 1× PBS.
REMARQUE : Ne centrifugez pas les organoïdes. Laissez les organoïdes s’installer au fond du tube par gravité. - Retirer le supernatant et ajouter 1 mL de 4% de paraformaldéhyde (PFA). Incuber à 4 °C pendant 30 min. Retirez la PFA dépensée et ajoutez 1 mL de 1 × PBS.
- Conserver les organoïdes dans 1 mL de 1× PBS à 4 °C jusqu’au traitement de la cryosection.
REMARQUE : Conservez les organoïdes dans 1x PBS pendant au plus 1 semaine après la fixation.
- Recueillir 1 ml d’échantillon d’organoïdes contenant des aliments moyens à l’aide d’une pipette sérologique du bioréacteur à un tube conique de 15 mL.
- Préparation d’organoïdes pour la cryosection
- Retirez le supernatant des organoïdes stockés. Ajouter 1 mL de saccharose à 15 % (w/v, dilué en 1 × PBS), bien mélanger par un tourbillon doux et incuber pendant la nuit à 4 °C.
- Préparer une solution de 15 % de gélatine de saccharose/7,5 %(tableau 2)et maintenir à 37 °C pendant la préparation pour éviter la gélatine pour se solidifier.
- Retirer la solution de saccharose de 15 %, ajouter 1 mL de 15 % de gélatine de saccharose/7,5 % aux organoïdes, et mélanger rapidement par tourbillonnement doux. Incuber à 37 °C pendant 1 h.
- Ajouter 15 % de solution de gélatine au saccharose/7,5 % dans un contenant en plastique jusqu’à la moitié de son volume. Attendez la solidification à RT.
- Après une incubation de 1 h, déposer soigneusement une goutte de saccharose/gélatine contenant les organoïdes sur la gélatine solidifiée à l’aide d’une pipette Pasteur. Laisser se solidifier à RT pendant environ 15 min. Assurez-vous d’éviter la formation de bulles.
- Déposer 15 % de gélatine de saccharose/7,5 % sur les organoïdes jusqu’à ce que le contenant soit rempli. Attendez une solidification complète chez RT.
- Après solidification, incuber 20 min à 4 °C.
- Couper la gélatine dans un cube contenant les organoïdes au centre et fixer le cube de gélatine sur un morceau de carton avec une goutte de composé O.C.T.
- Placer 250 ml d’isopentane dans une tasse de 500 ml et remplir un contenant approprié d’azote liquide. À l’aide de forceps et de gants épais, placez soigneusement la tasse contenant de l’isopentane à la surface de l’azote liquide et refroidissez l’isopentane à -80 °C.
- Lorsque -80 °C est atteint, placez le cube de gélatine dans la tasse contenant de l’isopentane jusqu’à ce qu’il gèle, en maintenant la température à -80 °C. Selon la taille du cube, il peut prendre 1 à 2 min.
REMARQUE : Évitez les températures inférieures à -80 °C ou le temps de congélation excessif, car cela pourrait provoquer une fissuration du cube. - Une fois congelé, conserver rapidement le cube de gélatine à -80 °C et conserver jusqu’à ce que la cryosection.
- Cryosection des organoïdes
- Allumez le cryostat et définissez à la fois les températures du spécimen (OT) et de la cryochamber (CT) à -25 °C.
- Lorsque les deux températures se stabilisent, fixer le cube de gélatine contenant les organoïdes sur le spécimen à l’aide de composé O.C.T.
- Définir l’épaisseur de la section à 12 μm.
- Couper le cube et recueillir 3 à 4 tranches sur des lames de microscope d’adhérence (voir tableau des matériaux).
- Conserver à -20 °C jusqu’à l’utilisation.
- Immunostaining des tranches d’organoïdes
- Placez les lames de microscope contenant des sections organoïdes dans un bocal de copling avec 50 ml de PBS préguerre, tenant jusqu’à 10 diapositives dos à dos.
REMARQUE : Toutes les sections organoïdes doivent être submergées de liquide. - Incuber pendant 45 min à 37 °C pour dégélater les diapositives.
- Laver 1x avec 50 ml de 1× PBS pendant 5 min à RT: Transférer les diapositives dans un bocal de copling contenant 1× PBS frais.
- Transférer les lames dans un bocal de copling contenant 50 ml de glycine fraîchement préparée (tableau 2) et incuber pendant 10 min à RT.
- Transférer les diapositives dans un bocal de copling contenant 50 ml de triton de 0,1 %(tableau 2) et perméabiliser pendant 10 min à RT.
- Laver avec 1× PBS pendant 5 min 2x.
- Préparer le plat immunostaining avec du papier de 3 mm trempé dans 1× PBS. Sécher les lames avec un mouchoir tout autour des tranches et les placer sur du papier de 3 mm. Avec une pipette Pasteur, recouvrez toute la surface des lames d’une solution de blocage (tableau 2) avec ~0,5 mL par diapositive. Incuber pendant 30 min à RT.
- Retirez l’excès de solution de blocage et séchez les lames avec un tissu tout autour des tranches. Placer 50 μL de l’anticorps primaire (tableau 3) dilué dans la solution de blocage sur les sections et couvrir avec les couvercles. Placer les tranches dans un plat d’immunostaining préalablement préparé. Incuber toute la nuit à 4 °C.
- Transférer les diapositives dans un bocal de copling avec 50 ml de TBST (tableau 2), laisser tomber les couvercles, et laver avec TBST pendant 5 min 3x.
- Placer 50 μL de l’anticorps secondaire dilué dans la solution de blocage sur les sections et couvrir avec les couvercles. Placez les tranches dans le plat immunostaining préalablement préparé. Incuber pendant 30 min à RT, à l’abri de la lumière.
- Transférer les diapositives dans un bocal de copling à nouveau et laver avec 50 ml de TBST pendant 5 min 3x.
- Séchez les lames avec un tissu tout autour des tranches et placez les tranches dans un plat immunostaining préalablement préparé. Ajouter 0,5 mL de solution DAPI sur toute la surface des lames avec une pipette Pasteur. Incuber pendant 5 min à RT.
- Répétez l’étape 4.4.9.
- Sécher soigneusement les lames avec un tissu. Ajouter 50 μL de montage moyen goutte par goutte le long de la diapositive, puis abaisser soigneusement un couvercle sur chaque diapositive, légèrement le plier pour éviter les bulles.
- Placez les lames de microscope contenant des sections organoïdes dans un bocal de copling avec 50 ml de PBS préguerre, tenant jusqu’à 10 diapositives dos à dos.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Le protocole a été initié en favorisant l’agrégation cellulaire à l’aide des bioréacteurs de 0,1 L (figure 1A). L’inoculation à cellule unique des iPSC a été effectuée, avec 250 000 cellules/mL ensemencées dans 60 mL de milieu avec une vitesse d’agitation de 27 tr/min. Cela a été défini comme le jour 0. Après 24 h, les cellules ont formé efficacement des agrégats en forme de sphéroïde (jour 1, figure 1B),et la morphologie a été bien entretenue jusqu’au jour 5, a...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
La nécessité d’un grand nombre de cellules ainsi que de conditions de culture définies pour générer des types de cellules spécifiques pour le dépistage des médicaments et les applications de médecine régénérative a été le moteur du développement de systèmes de culture évolutive. Ces dernières années, plusieurs groupes ont signalé la génération évolutive de progéniteurs neuronaux et de neurones fonctionnels32,33,34, fournissant d...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs YH et SJ sont employés de PBS Biotech. L’auteur BL est PDG et co-fondateur de PBS Biotech, Inc. Ces auteurs collaborateurs ont participé au développement des bioréacteurs utilisés dans le manuscrit. Cela ne modifie pas l’adhésion des auteurs à toutes les politiques de la revue sur le partage de données et de documents. Tous les autres auteurs ne déclarent aucun conflit d’intérêts.
Remerciements
Ce travail a été soutenu par Fundação para a Ciência e a Tecnologia (FCT), Portugal (UIDB/04565/2020 par l’intermédiaire de Programa Operacional Regional de Lisboa 2020, Projet N. 007317, PD/BD/105773/2014 à T.P.S et PD/BD/128376/2017 à D.E.S.N.), projets cofinancés par FEDER (POR Lisboa 2020—Programa Operacional Regional de Lisboa PORTUGAL 2020—Programa Operacional Regional de Lisboa PORTUGAL 2020) et FCT par le biais de la subvention PAC-PRECIS LISBOA-01-0145-FEDER-016394 et CEREBEX Génération d’Organoïdes cérébellaires pour la subvention de recherche sur l’ataxie LISBOA-0145-FEDER-029298. Le financement a également été reçu du Programme de recherche et d’innovation Horizon 2020 de l’Union européenne, dans le cadre de l’Accord de subvention 739572— The Discoveries Centre for Regenerative and Precision Medicine H2020-WIDESPREAD-01-2016-2017.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Papier 3MM | WHA3030861 | Merck | |
| Accutase | A6964 - 500mL | Milieu de détachement de cellules | Sigma |
| Anticorps anti-BARHL1 Anticorps | HPA004809 | Atlas | |
| Anti-Calbindin D-28k Anticorps | CB28 | Millipore | |
| Anti-MAP2 | Anticorps M4403 | Sigma | |
| Anti-N-Cadhérine Anticorps | 610921 | à transduction | |
| MAB1259-SP | R& D | ||
| Anticorps anti-OLIG2 | MABN50 | Millipore | |
| Anti-PAX6 Anticorps | PRB-278P | Covance | |
| Anti-SOX2 | MAB2018 | R& D | |
| Anticorps anti-TBR1 | AB2261 | Millipore | |
| Anti-TBR2 Anticorps | ab183991 | Abcam | |
| Anti-TUJ1 Anticorps | 801213 | Biolegend | |
| Apo-transferrine | T1147 | Sigma | |
| BrainPhys Neuronal Medium N2-A & SM1 Kit | 5793 - 500mL | Cellules souches Concentré de | |
| lipides chimiquement défini | 11905031 | ThermoFisher | |
| Coverslips 24x60mm | 631-1575 | VWR | |
| Purifié par cristallisation BSA | 5470 | Sigma | |
| DAPI | 10236276001 | Sigma | |
| Dibutyryl cAMP | SC- 201567B -500mg | Frilabo | |
| DMEM-F12 | 32500-035 | ThermoFisher | |
| Sérum fœtal bovin | A3840001 | ThermoFisher | |
| Gélatine de peau bovine | G9391 | Sigma | |
| Glass Copling Jar | E94 | ThermoFisher | |
| Glutamax I | 10566-016 | ThermoFisher | |
| Glycine | MB014001 | NZYtech | |
| Ham' s F12 | 21765029 | ThermoFisher | |
| Episomal Humain iPSC | Line A18945 | ThermoFisher | iPSC6.2 |
| IMDM | 12440046 | ThermoFisher | |
| Insuline | 91077C | Sigma | |
| iPS DF6-9-9T. B | WiCell | ||
| Iso-pentane | PHR1661-2ML | Sigma | |
| Acide L-ascorbique | A-92902 | Sigma | |
| Matrigel | 354230 | Matrice de membrane basale | Corning |
| Monothioglycérol | M6154 | Sigma | |
| Mowiol | 475904 | Milieu de montage | Millipore |
| mTeSR1 | 85850 -500ml | pour technologies | |
| 17502048 | ThermoFisher | ||
| Neurobasal | 12348017 | ThermoFisher | |
| Paraformaldéhyde | 158127 | Sigma | |
| PBS-0.1 Récipient à usage unique | SKU : IA-0.1-D-001 | PBS Biotech | |
| PBS-MINI MagDrive Unité de base | UGS : IA-UNI-B-501 | PBS Biotech | |
| Recombinant humain BDNF | 450-02 | Peprotech | |
| Recombinant humain bFGF/FGF2 | 100-18B | Peprotech | |
| Recombinant humain FGF19 | 100-32 | Peprotech | |
| Recombinant humain GDNF | 450-10 | Peprotech | |
| Recombinant humain SDF1 | 300-28A | Peprotech | |
| ROCK inhibiteur Y-27632 | 72302 | Technologies des | |
| SB431542 | S4317 | Sigma | |
| Sucrose | S7903 | Sigma | |
| SuperFrost Lames de microscope | 12372098 | ThermoFisher Lames de microscope à adhésion | |
| Tissue-Tek O.C.T. Compound | 25608-930 | VWR | |
| Tris-HCL 1M | T3038-1L | Sigma | |
| Triton X-100 | 9002-93-1 | Sigma | |
| Tween-20 | P1379 | Sigma | |
| UltraPure 0.5M EDTA, pH 8.0 | 15575020 | ThermoFisher |
Références
- Takahashi, K., et al. Induction of Pluripotent Stem Cells from Adult Human Fibroblasts by Defined Factors. Cell. 131 (5), 861-872 (2007).
- Thomson, J. A. Embryonic Stem Cell Lines Derived from Human Blastocysts. Science. 282 (5391), 1145-1147 (1998).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Ishida, Y., et al. Vulnerability of Purkinje Cells Generated from Spinocerebellar Ataxia Type 6 Patient-Derived iPSCs. Cell Reports. 17 (6), 1482-1490 (2016).
- Liu, Y., Zhang, S. C. Human stem cells as a model of motoneuron development and diseases. Annals of the New York Academy of Sciences. 1198, 192-200 (2010).
- Mariani, J., Coppola, G., Pelphrey, K. A., Howe, J. R., Vaccarino, F. M. FOXG1-Dependent Dysregulation of GABA/ Glutamate Neuron Differentiation in Autism Spectrum Disorders. Cell. 162 (2), 375-390 (2015).
- Muguruma, K., Nishiyama, A., Kawakami, H., Hashimoto, K., Sasai, Y. Self-Organization of Polarized Cerebellar Tissue in 3D Culture of Human Pluripotent Stem Cells. Cell Reports. 10 (4), 537-550 (2015).
- Qian, X., et al. Generation of human brain region-specific organoids using a miniaturized spinning bioreactor. Nature Protocols. 13 (3), 565-580 (2018).
- Aubry, L., et al. Striatal progenitors derived from human ES cells mature into DARPP32 neurons in vitro and in quinolinic acid-lesioned rats. Proceedings of the National Academy of Sciences. 105 (43), 16707-16712 (2008).
- Gunhanlar, N., et al. A simplified protocol for differentiation of electrophysiologically mature neuronal networks from human induced pluripotent stem cells. Molecular Psychiatry. 23 (5), 1336-1344 (2018).
- Hu, B. Y., Zhang, S. C. Differentiation of spinal motor neurons from pluripotent human stem cells. Nature Protocols. 4 (9), 1295-1304 (2009).
- Jo, J., et al. Midbrain-like Organoids from Human Pluripotent Stem Cells Contain Functional Dopaminergic and Neuromelanin-Producing Neurons. Cell Stem Cell. 19 (2), 248-257 (2016).
- Muguruma, K., et al. Ontogeny-recapitulating generation and tissue integration of ES cell-derived Purkinje cells. Nature Neurosciences. 13 (10), 1171-1180 (2010).
- Watson, L. M., Wong, M. M. K., Vowles, J., Cowley, S. A., Becker, E. B. E. A Simplified Method for Generating Purkinje Cells from Human-Induced Pluripotent Stem Cells. The Cerebellum. 17 (4), 419-427 (2018).
- Wang, S., et al. Differentiation of human induced pluripotent stem cells to mature functional Purkinje neurons. Science Reports. 5, 9232(2015).
- Tao, O., et al. Efficient generation of mature cerebellar Purkinje cells from mouse embryonic stem cells. Journal of Neuroscience Research. 88 (2), 234-247 (2010).
- Croughan, M. S., Giroux, D., Fang, D., Lee, B. Novel Single-Use Bioreactors for Scale-Up of Anchorage-Dependent Cell Manufacturing for Cell Therapies. Stem Cell Manufacturing. , 105-139 (2016).
- Simunovic, M., Brivanlou, A. H. Embryoids, organoids and gastruloids: new approaches to understanding embryogenesis. Development. 144 (6), 976-985 (2017).
- Lou, Y. R., Leung, A. W. Next generation organoids for biomedical research and applications. Biotechnology Advances. 36 (1), 132-149 (2018).
- Silva, T. P., et al. Design Principles for Pluripotent Stem Cell-Derived Organoid Engineering. Stem Cells International. 2019, 1-17 (2019).
- Silva, T. P., et al. Maturation of human pluripotent stem cell-derived cerebellar neurons in the absence of co-culture. Frontiers of Bioengineering and Biotechnology. , (2020).
- Burridge, P. W., et al. A universal system for highly efficient cardiac differentiation of human induced pluripotent stem cells that eliminates interline variability. PLoS One. 6 (4), 18293(2011).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nature Biotechnology. 25 (6), 681-686 (2007).
- Smith, J. R., et al. Inhibition of Activin/Nodal signaling promotes specification of human embryonic stem cells into neuroectoderm. Developmental Biology. 313 (1), 107-117 (2008).
- Yaguchi, Y., et al. Fibroblast growth factor (FGF) gene expression in the developing cerebellum suggests multiple roles for FGF signaling during cerebellar morphogenesis and development. Developmental Dynamics. 238 (8), 2058-2072 (2008).
- Fischer, T., et al. Fgf15-mediated control of neurogenic and proneural gene expression regulates dorsal midbrain neurogenesis. Developmental Biology. 350 (2), 496-510 (2011).
- Bagri, A., et al. The chemokine SDF1 regulates migration of dentate granule cells. Development. 129 (18), 4249-4260 (2002).
- Bardy, C., et al. Neuronal medium that supports basic synaptic functions and activity of human neurons in vitro. Proceedings of the National Academy of Sciences. 112 (20), 2725-2734 (2015).
- Bauwens, C. L., et al. Control of Human Embryonic Stem Cell Colony and Aggregate Size Heterogeneity Influences Differentiation Trajectories. Stem Cells. 26 (9), 2300-2310 (2008).
- Bratt-Leal, A. M., Carpenedo, R. L., McDevitt, T. C. Engineering the embryoid body microenvironment to direct embryonic stem cell differentiation. Biotechnology Progress. 25 (1), 43-51 (2009).
- Miranda, C. C., et al. Spatial and temporal control of cell aggregation efficiently directs human pluripotent stem cells towards neural commitment. Biotechnology Journal. 10 (10), 1612-1624 (2015).
- Miranda, C. C., Fernandes, T. G., Diogo, M. M., Cabral, J. M. S. Scaling up a chemically-defined aggregate-based suspension culture system for neural commitment of human pluripotent stem cells. Biotechnology Journal. 11 (12), 1628-1638 (2016).
- Bardy, J., et al. Microcarrier Suspension Cultures for High-Density Expansion and Differentiation of Human Pluripotent Stem Cells to Neural Progenitor Cells. Tissue Engineering Part C Methods. 19 (2), 166-180 (2013).
- Rigamonti, A., et al. Large-Scale Production of Mature Neurons from Human Pluripotent Stem Cells in a Three-Dimensional Suspension Culture System. Stem Cell Reports. 6 (6), 993-1008 (2016).
- Arora, N., et al. A process engineering approach to increase organoid yield. Development. 144 (6), 1128-1136 (2017).
- Gimeno, L., Martinez, S. Expression of chick Fgf19 and mouse Fgf15 orthologs is regulated in the developing brain by Fgf8 and Shh. Developmental Dynamics. 236 (8), 2285-2297 (2007).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
