L’activation de la kinase ser/Thr multifonctionnelle AURKA est caractérisée par son autophosphorylation sur Thr288. Les sondes fluorescentes s’appuyant sur FRET peuvent faire la distinction entre ses états inactif et activé. Ici, nous illustrons quelques stratégies pour l’ingénierie des sondes, ainsi qu’un protocole FRET rapide pour suivre l’activation des kinases tout au long de la mitose.
Article de méthode
Surveillance en temps réel de l’activation de l’aurora kinase A à l’aide de biocapteurs FRET conformationnels dans des cellules vivantes
Dans cet article
Résumé
Résumé
Les cancers épithéliaux sont souvent caractérisés par la surexpression de la kinase Ser/Thr Aurora A/AURKA. AURKA est une protéine multifonctionnelle qui s’active lors de son autophosphorylation sur Thr288. L’abondance d’AURKA culmine dans la mitose, où elle contrôle la stabilité et la fidélité du fuseau mitotique, et l’efficacité globale de la mitose. Bien que bien caractérisé au niveau structurel, un suivi cohérent de l’activation d’AURKA tout au long du cycle cellulaire fait défaut. Une solution possible consiste à utiliser des biocapteurs fret (Resonance Energy Transfer) de Förster génétiquement codés pour mieux comprendre l’autophosphorylation d’AURKA avec une résolution spatio-temporelle suffisante. Ici, nous décrivons un protocole pour concevoir des biocapteurs FRET détectant l’autophosphorylation Thr288, et comment suivre cette modification pendant la mitose. Tout d’abord, nous fournissons un aperçu des paires FRET donneur/accepteur possibles, et nous montrons les méthodes possibles de clonage et d’insertion des biocapteurs AURKA FRET dans les cellules de mammifères. Ensuite, nous fournissons une analyse étape par étape pour des mesures FRET rapides par microscopie d’imagerie à vie de fluorescence (FLIM) sur une configuration personnalisée. Cependant, ce protocole est également applicable aux solutions commerciales alternatives disponibles. Nous concluons en considérant les contrôles FRET les plus appropriés pour un biocapteur à base d’AURKA, et en soulignant les améliorations futures potentielles pour augmenter encore la sensibilité de cet outil.
Introduction
Aurora kinase A/AURKA est une sérine/thréonine kinase multifonctionnelle, active tout au long du cycle cellulaire et dans différents compartiments subcellulaires1. Comprendre son activation spatio-temporelle généralisée est particulièrement important dans le cancer, car AURKA est souvent surexprimé dans les tumeurs malignes épithéliales et hématologiques, les patients montrant une faible réactivité aux thérapies actuellement disponibles2.
Des études structurales ont révélé que l’AURKA subit deux étapes pour passer d’une kinase inactive à une kinase active. Tout d’abord, l’autophosphorylation de Thr288 modifie la conformation de la poche cinétique de la kinase et l’active3,4,5,6. Cette étape augmente l’activité catalytique d’AURKA dans les cellules humaines et chez Xenopus laevis3,6,7, amorçant la kinase pour une activité complète. Une fois activée, l’interaction d’AURKA avec la protéine de ciblage de Xklp2 (TPX2) induit un second changement conformationnel5. Cette modification supplémentaire permet à AURKA d’atteindre une activité enzymatique complète vers ses substrats dans la cellule5,8,9,10.
Pendant près de deux décennies, les connaissances sur l’activation et l’activité d’AURKA ont été obtenues principalement grâce à une combinaison d’approches biochimiques. Il s’agit notamment de la détection de Thr288 phosphorylé dans des cellules ou in vivo comme caractéristique de l’activation d’AURKA, d’analyses cristallographiques et de tests in vitro ou dans des tests de cellulo kinase pour sonder l’activité d’AURKA1. Cependant, la résolution spatio-temporelle de ces approches est faible ou absente, et de nouvelles solutions étaient nécessaires pour élargir les connaissances sur la dynamique de ces deux événements.
Le développement de sondes fluorescentes au cours des dernières années a facilité la surveillance d’AURKA dans les cellules vivantes, permettant le suivi de son activation avec une plus grande résolution spatio-temporelle. Les capteurs les plus spécifiques pour AURKA développés jusqu’à présent s’appuient sur le principe FRET (Förster’s Resonance Energy Transfer)11 pour faire la distinction entre AURKA inactif et actif. Le premier capteur développé était un biocapteur à base de substrat de l’activité de la kinase AURKA. Les biocapteurs à base de substrat sont constitués d’une courte séquence aminoacide ciblée par une kinase donnée pour la phosphorylation, et insérés dans une paire FRET donneur/accepteur et un domaine de liaison reconnaissant le résidu phosphorylé, ce qui aide au repliement du biocapteur pour un processus FRET efficace12. Dans le cas d’AURKA, un fragment de 14 acides aminés de KIF2C ciblé par phosphorylation a été inséré entre une paire donneur/accepteur CFP-YFP13. Cependant, ce capteur présente des inconvénients majeurs. Tout d’abord, la séquence KIF2C utilisée dans cette sonde peut être ciblée à la fois par AURKA et par la kinase étroitement apparentée AURKB, diminuant ainsi la spécificité de ce biocapteur. Deuxièmement, le capteur s’appuie sur la kinase endogène pour la phosphorylation. Par conséquent, l’efficacité fret peut être indétectable ou non significative si les quantités de kinase sont limitatives (par exemple, dans les compartiments subcellulaires ou les phases du cycle cellulaire). Pour surmonter ces limitations, une nouvelle classe de capteurs AURKA a été créée connue sous le nom de « capteurs conformationnels ». Dans ces sondes, la séquence complète d’AURKA a été insérée dans un fluorophore donneur à la terminaison N et un fluorophore accepteur à la terminaison C. AURKA inactif présente une conformation « ouverte », qui éloigne les termini N et C de la kinase l’un de l’autre. Avec une telle distance entre les deux termini (> 10 nm), la paire donneur/accepteur est dans une configuration non permissive pour FRET. Au contraire, l’AURKA autophosphorylé adopte une conformation « fermée », avec les deux protéines termini et les deux fluorophores à proximité. Il a été démontré que cela permettait le FRET entre le donneur et l’accepteur, qui peut être mesuré en utilisant les variations de la durée de vie du donneur14,15. De telles sondes présentent plusieurs avantages. Tout d’abord, ils sont génétiquement codés et peuvent être utilisés pour remplacer la kinase endogène dans la cellule. Deuxièmement, ils sauvent les phénotypes induits par l’élimination d’AURKA, indiquant qu’ils sont fonctionnels dans la cellule. Troisièmement, ils permettent de suivre l’activation de la kinase dans différents compartiments subcellulaires et tout au long du cycle cellulaire. Les sondes ont détecté l’activation d’AURKA à des endroits où la kinase est connue pour être activée (c’est-à-dire les centrosomes et le fuseau mitotique), et ont également participé à la découverte de l’activation d’AURKA au niveau des mitochondries16. Enfin, ces capteurs ont permis des criblages à haute teneur basés sur FRET/FLIM, où les changements conformationnels d’AURKA ont été utilisés pour identifier de nouveaux inhibiteurs pharmacologiques17.
Dans le présent travail, nous décrivons une procédure pour visualiser l’activation d’AURKA dans des cellules cultivées. Tout d’abord, nous allons faire un aperçu des paires de fluorophores potentielles pour FRET. Le choix de la paire donneur/accepteur la plus appropriée se fera en fonction de la configuration de microscope disponible, ou d’une application en aval particulière comme multiplex FRET18,19. Ensuite, nous proposons un pipeline pour explorer le comportement du ou des biocapteurs choisis dans une configuration de microscope FRET/FLIM rapide. Ce pipeline s’étendra des procédures de culture cellulaire et de synchronisation à l’acquisition FLIM et à l’analyse de données. Enfin, nous discuterons des avantages potentiels de ce protocole, car une stratégie analogue pour la conception de biocapteurs pourrait être appliquée à d’autres kinases, et elle pourrait également être utilisée avec d’autres systèmes d’imagerie basés sur FRET.
Protocole
REMARQUE: Les cellules U2OS utilisées dans ce protocole ont été achetées auprès de l’American Type Culture Collection (ATCC, HTB-96), et elles ont été testées exemptes de mycoplasmes. Les étapes 2.1 à 2.7 doivent être effectuées sous une hotte à écoulement laminaire pour garder les cellules et les réactifs stériles.
1. Choisir la paire FRET donneur/accepteur
- Reportez-vous à la littérature pour le choix des paires FRET donneur/accepteur les plus appropriées. Des exemples utiles peuvent être trouvés dans20,21,22,23,24, bien que le choix final doive être fait en fonction des caractéristiques de la configuration FRET/FLIM (lignes laser disponibles, filtres, etc.). Voici quelques considérations sur la façon de sélectionner une paire donneur/accepteur.
- Choix du donneur : se référer à la base FP (https://www.fpbase.org/) pour un ensemble complet d’informations sur les protéines fluorescentes disponibles. Cette base de données est constamment mise à jour avec tous les fluorophores nouvellement développés.
- Reportez-vous à la base de données des biocapteurs fluorescents (https://biosensordb.ucsd.edu/index.php) pour plus d’informations sur les biocapteurs déjà disponibles dans la littérature, ainsi que sur les protéines fluorescentes respectives utilisées.
- Comme point de départ général, choisissez un fluorophore donneur brillant. Les bons candidats sont les protéines fluorescentes cyan comme mTFP1 ou ECFP, ou les variantes GFP comme EGFP ou mEGFP.
- Les oligomères peuvent affecter la localisation et/ou la fonction des protéines25. Envisagez d’utiliser des mutants monomères de CFP comme mTurquoise226, ou Aquamarine27,28. Ces variantes ont également de bons coefficients de rendement quantique et d’extinction, ce qui en fait de bons candidats en tant que donneurs fret.
- Privilégiez les protéines fluorescentes (donneuses ou acceptatrices) insensibles aux changements environnementaux comme le pH23 intracellulaire, ou au photoblanchiment25, car l’efficacité fret peut être fortement affectée par ces paramètres29. De nos jours, les fluorophores comme mTurquoise2 ou mTFP1 sont largement utilisés comme donneurs, grâce à leur bonne photostabilité22,25,26.
- Choix de l’accepteur : les donneurs de cyan sont souvent associés à des variantes de la protéine fluorescente jaune (YFP), comme mVenus, Citrine et YPet20,21,22,30. Cependant, il convient de noter que ces protéines ont une sensibilité beaucoup plus grande au pH et présentent globalement une faible photostabilité.
- Envisagez d’utiliser des variantes jaunes nouvellement développées et insensibles au pH de YFP comme pH-Lemon31, des fluorophores verts comme mNeonGreen23 ou des fluorophores rouges comme mScarlet-I23,32 comme accepteurs fluorescents précédemment validés pour mTurquoise2.
- Alternativement, envisagez d’utiliser des dérivés non fluorescents / sombres de YFP comme ShadowG33 ou ShadowY34, qui se sont révélés se comporter comme de bons accepteurs pour les donneurs cyan-fluorescents dans les expériences FRET / FLIM.
- Si vous utilisez la MPEM comme donneur, envisagez d’utiliser des accepteurs rouges monomères comme mCherry.
- Vérifiez les propriétés spectrales de la paire donneur/accepteur choisie à l’aide des outils disponibles sur le site Web de la base FP. Voir la figure 1 pour un exemple de la paire mEGFP/mCherry.
- Sur le site Web de la base FP, sélectionnez le menu déroulant Outils et sélectionnez Visionneuse Spectra.
- Dans les menus déroulants, entrez le nom de la paire de fluorophores à visualiser (par exemple, mEGFP et mCherry).
- Simulez les propriétés de la paire donneur/accepteur avec une source de lumière spécifique en sélectionnant un laser donné dans le menu déroulant. Vous pouvez également entrer une longueur d’onde laser spécifique en sélectionnant Ajouter un laser. Cliquez sur l’option Normaliser l’émission à cette option pour ajuster les spectres de fluorophores à la longueur d’onde souhaitée. Ici, la longueur d’onde utilisée pour exciter la GFP est de 480 ± 10 nm.
- Clonez la paire donneur/accepteur sélectionnée en ajoutant un fluorophore à la terminaison N de la séquence complète d’AURKA et un à la terminaison C. Suivez les directives de la méthode de clonage préférée pour insérer cette construction dans un vecteur d’expression mammifère de choix.
2. Culture cellulaire, transfection et synchronisation
- JOUR 1. Préparer le milieu de culture pour les cellules U2OS: utilisez le milieu Eagle modifié (DMEM) de Dulbecco complété par 10% de sérum bovin fœtal (FBS), 1% de pénicilline-streptomycine et 1% de L-glutamine (à partir de là, milieu de croissance complet). Alternativement, DMEM avec L-Glutamine pré-supplémentée peut également être utilisé.
- Si les cellules sont congelées, décongeler un flacon au moins 8 jours avant les expériences (c.-à-d. à partir du point 2.5).
- Cultiver des cellules dans un incubateur dédié aux cultures de cellules de mammifères à 37 °C et avec 5% de CO2. Nettoyez et stérilisez l’incubateur régulièrement pour éviter les contaminations.
- Lorsque les cellules atteignent ~80% de confluence:
- Lavez-les brièvement avec une solution saline tampon phosphate (PBS) stérile 1x sans Ca2+ ni Mg2+.
- Trypsiniser les cellules avec 0,05% de trypsine-EDTA stérile selon le protocole du fabricant et en plaçant les cellules dans l’incubateur pendant 1-3 min.
- Inactiver la trypsine en ajoutant deux fois le volume de milieu de croissance complet; bien mélanger.
- Centrifuger la suspension de la cellule à 800 x g pendant 3-5 min.
- Comptez les cellules à l’aide d’un hémocytomètre et calculez la dilution appropriée pour qu’elles soient à ~ 70-80% de confluence dans les lames de chambre le lendemain. Alternativement, des supports similaires pour l’imagerie de cellules vivantes peuvent également être utilisés.
- Pipet le volume correspondant de cellules dans le support d’imagerie de cellules vivantes choisi, et replacez les cellules dans l’incubateur jusqu’au lendemain.
- JOUR 2. Procéder à la transfection. Suivez les directives de la ou des méthodes de transfection transitoire préférées pour obtenir une efficacité de transfection optimale (~50/80%). Aucune méthode de transfection spécifique n’est requise. Notez que l’efficacité de la transfection peut varier selon la lignée cellulaire utilisée. Incuber pendant 48 h.
REMARQUE: Produire des clones stables contenant chacun des trois vecteurs pour contourner le besoin de transfections transitoires. À ce stade, deux types de contrôles doivent être planifiés. Tout d’abord, un contrôle « uniquement donneur » est nécessaire pour vérifier que la présence d’AURKA pleine longueur ne perturbe pas la durée de vie de mTurquoise2 en soi. Deuxièmement, un biocapteur porteur d’une mutation morte de kinase doit être utilisé comme témoin négatif lorsque le FRET est aboli ou considérablement abaissé. Alternativement à un mutant mort de kinase, un inhibiteur chimique de l’activation d’AURKA comme l’analogue ATP MLN8237 peut être utilisé comme témoin négatif.- Planifiez à l’avance trois conditions de transfection, chacune d’entre elles dans un puits indépendant:
Le vecteur « donneur seulement » (p. ex. AURKA-mTurquoise2)
Le « biocapteur » (p. ex. superYFP-AURKA-mTurquoise2)
Un biocapteur mort de kinase/"K162M » (p. ex., superYFP-AURKA K162M-mTurquoise2) ou alternativement, un inhibiteur de l’activation d’AURKA (p. ex., MLN8237) - Effectuez trois conditions pour chaque paire donneur/accepteur indépendante à comparer.
- Envisagez de doubler le nombre de puits transfectés si vous comparez des cellules non synchronisées et des cellules synchronisées G2/M (voir l’étape 2.6).
- Planifiez à l’avance trois conditions de transfection, chacune d’entre elles dans un puits indépendant:
- JOUR 3. Synchroniser les cellules dans G2/M. Ajouter 100 ng/mL de nocodazole dissous dans le DMSO à chaque transfecté en évitant l’exposition à la lumière et incuber pendant 16 h (de préférence pendant la nuit). Si vous comparez des cellules non synchronisées et des cellules synchronisées G2/M, traitez chaque condition de transfection avec du nocodazole ou avec un volume égal de DMSO. Pour une meilleure efficacité de synchronisation, préparez des aliquotes de nocodazole à usage unique dans du DMSO, stockez-les à -20 °C et jetez-les après utilisation.
REMARQUE: L’efficacité de la synchronisation cellulaire peut varier d’une lignée cellulaire à l’autre. La concentration optimale de nocodazole et son temps d’incubation doivent être déterminés expérimentalement par des approches de cytométrie en flux avant les expériences FRET/FLIM. Pour les analyses FRET/FLIM statistiquement pertinentes, nous recommandons une efficacité de synchronisation en G2/M d’au moins 50 % de la population cellulaire globale. - JOUR 4. Lavage du nocodazole et imagerie FRET/FLIM sur des cellules mitotiques
- Retirez le milieu de culture à l’aide d’une pipette et remplacez-le par du PBS stérile préchauffé. Évitez l’exposition à la lumière si possible. Bercez doucement la plaque.
- Répétez la procédure de lavage, en évitant toujours l’exposition à la lumière.
- Retirez le deuxième lavage PBS et remplacez-le par un milieu Leibovitz L-15 préchauffé et stérile, complété par 20% de sérum fœtal bovin (FBS) et 1% de pénicilline-streptomycine (à partir de là, milieu d’imagerie).
REMARQUE : Les supports d’imagerie doivent être achetés sans indicateurs de pH (p. ex., rouge de phénol) et sans composants moyens comme la riboflavine. Ces substances sont une source d’autofluorescence qui pourrait perturber les valeurs de la durée de vie. - Passez à l’imagerie FRET/FLIM. Minimisez les changements rapides de température et passez à l’étape d’imagerie (étape 3) le plus rapidement possible. Envisagez de protéger l’échantillon de la lumière pendant qu’il est transporté vers la configuration du microscope (c.-à-d. en l’enveloppant dans une feuille d’aluminium ou en le plaçant dans une boîte).
3. Acquisitions de FRET/FLIM
REMARQUE : Les acquisitions FRET/FLIM dans ce protocole ont été effectuées sur une configuration sur mesure, décrite en 35 et équipée d’une solution de contrôle comme dans 15,17 (Figure 2). La configuration est maintenant commercialisée par Inscoper et elle est composée d’un microscope à disque rotatif avec un laser blanc pour l’excitation pulsée et un intensificateur à haut débit limité devant la caméra. Les portes temporelles de 2 ns dans une fenêtre temporelle de 10 ns sont utilisées séquentiellement pour obtenir une pile de cinq images temporelles. Ces images sont ensuite utilisées pour calculer la durée de vie moyenne de la fluorescence pixel par pixel selon l’équation suivante : τ = ΣΔti • Ιi/ΣΙi, où Δti correspond au temps de retard de la ième porte tandis que I indique l’image d’intensité temporelle pixel par pixel35,36 . Cette méthode garantit des mesures FLIM rapides : aucune étape d’ajustement ou de regroupement n’est requise, et la durée de vie peut être calculée en mode en ligne, avec un budget de photons minimal. Le système présente également une interface logicielle conviviale. Cependant, la même expérience peut être réalisée sous n’importe quelle autre configuration de microscope commercial équipée pour les mesures FLIM.
- Pour assurer une libération optimale des cellules du bloc G2/M dans la mitose, effectuez des expériences à 37 °C. Si possible, effectuez des expériences FRET/FLIM avec des configurations de microscope équipées d’une chambre thermostatique.
- Allumez la chambre thermostatique du microscope au moins 30 min à 1 h avant l’expérience.
- Allumez le laser, la caméra, la configuration du microscope et le logiciel d’imagerie (Figure 2).
- Sélectionnez les longueurs d’onde d’excitation et d’émission appropriées pour le fluorophore donneur. Les options de longueurs d’onde pratiques sont les suivantes : λex 440/10 nm et λem 483/35 nm pour mTurquoise2 (Figure 3A) ; λex 488/10 nm et λem 525/50 nm pour GFP) (Figure 3B).
- Réglez le temps d’exposition, généralement entre 30 et 100 ms (Figure 3). Méfiez-vous qu’une puissance laser excessive peut entraîner des effets phototoxiques induits comme le photoblanchiment, ce qui pourrait à son tour modifier la durée de vie de la fluorescence37. Sur la configuration, validez l’absence d’événements de photoblanchiment en surveillant l’intensité de fluorescence de la première porte lors des acquisitions time-lapse. Si des variations de l’intensité de fluorescence sont observables, jetez l’acquisition et ajustez la puissance du laser.
REMARQUE: Dans la configuration ici, sélectionnez un temps d’exposition permettant au moins 3000 niveaux de gris dans la première porte; sinon, le logiciel ne calculera pas la durée de vie du donneur. Cette valeur de niveau de gris correspond au budget minimal de photons nécessaire pour obtenir des valeurs de durée de vie pertinentes. - Avant de lancer les acquisitions FRET/FLIM, assurez-vous que les cellules sont entrées dans la mitose en attendant l’apparition du fuseau bipolaire (~20/30 min dans les cellules U2OS). Étant donné que l’AURKA mitotique se localise principalement à cette structure, vérifiez la progression mitotique en criblant la formation du fuseau dans les cellules directement au microscope, avec une source de lumière externe (Figure 1). Notez que le temps nécessaire à la progression mitotique peut varier selon la lignée cellulaire utilisée.
- Si un traitement par MLN8237 est prévu, placez les cellules sous le microscope et laissez-les atteindre la métaphase (environ 20 minutes après le lavage du nocodazole). Ajouter 250 nM MLN8237 dissous dans le DMSO à la fois aux cellules exprimant la construction du donneur uniquement et aux cellules exprimant le biocapteur.
- Contrôlez cette condition sur les cellules transfectées comme ci-dessus et incubez avec un volume égal de DMSO. Pour une meilleure inhibition de l’AURKA, préparez des aliquotes à usage unique de MLN8237 dans du DMSO, conservez-les à -80 °C. Décongelez-les en plaçant les aliquotes sur la glace et jetez-les après utilisation.
- Incuber pendant 10 min. Après cette période, le fuseau mitotique rétrécira et il ne restera plus qu’un seul point intense. Un phénotype similaire est observé lorsque des mutants K162M sont utilisés.
- Pour une meilleure résolution du fuseau mitotique, utilisez au moins un objectif 63x (Figure 3).
- Une fois qu’une cellule est trouvée en métaphase (voir la figure 4 comme exemple de cellule en métaphase), ajustez les coordonnées xyz pour la placer au centre du champ de vision.
- Pour des images plus rapides, sélectionnez un seul plan z . Choisissez le plan où le fuseau mitotique est le plus visible ou le plus intense.
- Démarrez l’enregistrement. Le temps d’acquisition peut varier en fonction de la configuration FLIM utilisée (de quelques secondes à min). La majorité des configurations commerciales disponibles sur le marché élaboreront à la fois la micrographie de fluorescence et la carte de durée de vie pixel par pixel. Enregistrez les deux images.
- Acquérir au moins 10 images indépendantes de chaque condition de transfection et/ou de traitement.
4. Calcul de ΔLifetime et comparaison des valeurs FLIM entre paires donneur/accepteur
- Extrayez les valeurs de durée de vie de l’ensemble de la carte de durée de vie pixel par pixel (c’est-à-dire l’ensemble du fuseau mitotique) ou sélectionnez des régions d’intérêt correspondant à des sous-régions spécifiques.
REMARQUE: Selon la configuration FRET/FLIM utilisée, les calculs de durée de vie peuvent être effectués directement sur le logiciel d’acquisition ou extraits avec des solutions génériques de traitement d’images (par exemple, Fidji/ImageJ: https://fiji.sc/). Les logiciels calculant directement les valeurs de durée de vie (également connus sous le nom de mode en ligne) offrent une solution plus conviviale, qui convient aux débutants et aux utilisateurs de microscopie qui ne sont pas entièrement familiarisés avec FRET/FLIM. Au contraire, l’extraction des valeurs à vie après l’acquisition nécessite souvent une procédure d’ajustement. Cette option est moins accessible aux débutants, car des connaissances préalables sur les modèles mathématiques d’ajustement sont nécessaires. - Une fois visualisées ou extraites, calculer la durée de vie moyenne des cellules exprimant le vecteur « donneur uniquement » (par exemple, AURKA-mTurquoise2), c’est-à-dire la durée de vie du donneur.
- Soustrayez chaque valeur à vie indépendante calculée à l’étape 4.1 de la durée de vie moyenne du donneur. Répéter cette étape pour toutes les cellules dans toutes les conditions analysées donnera le ΔLifetime pour chaque condition.
- Comparez les valeurs ΔLifetime pour les conditions « donneur uniquement », « biocapteur » et « K162M », ou les conditions DMSO et MLN8237.
NOTE: Pour la condition « donneur uniquement », ΔLifetime devrait donner des valeurs proches de zéro et correspondant aux fluctuations expérimentales des valeurs de durée de vie. Pour la condition « biocapteur », les valeurs ΔLifetime doivent indiquer la différence nette entre les deux constructions (voir la figure 4 pour un exemple illustré). - Comparez les valeurs ΔLifetime entre différentes paires donneur/accepteur.
- Comparez les conditions du « biocapteur » : présentent-elles des ΔLifetime similaires ?
- Les conditions « K162M » ou MLN8237 montrent-elles des conditions ΔLifetime similaires parmi elles? Leur ΔLifetime est-il similaire à la condition « donneur seulement »?
Résultats
Nous avons suivi la procédure décrite ci-dessus pour enregistrer l’autophosphorylation d’AURKA sur Thr288 à l’aide de deux biocapteurs aux propriétés spectrales différentes. Nous avons comparé la sonde GFP-AURKa-mCherry initiale14 avec deux biocapteurs aux propriétés spectrales différentes. Ces deux sondes s’appuient sur le donneur fluorescent mTurquoise2 et sur un accepteur non fluorescent (ShadowG) dans un cas, ou un accepteur jaune (superYFP) dans un second cas. Nous avons ensuite inséré la séquence complète d’AURKA dans chaque paire donneur/accepteur. Pour avoir un contrôle négatif de l’activation d’AURKA, deux stratégies peuvent être poursuivies. Tout d’abord, l’utilisation d’un petit analogue de l’ATP (MLN8237) interfère avec la liaison de l’ATP dans la poche cinétique de la kinase et empêche son activation38. Deuxièmement, la mutation de Lys162 en Met (K162M), crée une version morte de kinase de chaque biocapteur incapable de s’activer14,15,39. Cette mutation induit la perturbation d’un pont salin normalement établi entre Lys162 et Glu181, ce qui se traduit par une ouverture stable de la poche cinétique de la kinase et déclenche son inactivation globale40. Comme contrôle négatif pour FRET, nous avons utilisé une construction dépourvue d’accepteur (GFP-AURKA ou AURKA-mTurquoise2).
Après avoir synchronisé les cellules dans G2/M et les avoir libérées dans la mitose, nous avons mesuré la durée de vie de toutes les constructions transfectées au fuseau mitotique (Figure 4). Il convient de noter que cette structure a été considérée dans son ensemble et qu’aucun retour sur investissement à l’intérieur de la broche n’a été analysé. Nous avons ensuite calculé ΔLifetime pour toutes les conditions. Comme prévu, la durée de vie de GFP-AURKA ou AURKA-mTurquoise2 (les conditions « donneur seulement ») était proche de 0, ce qui indique que les valeurs mesurées pour ces constructions fluctuaient autour de la valeur moyenne (Figure 4A,4B). Inversement, les valeurs ΔLifetime pour GFP-AURKA-mCherry étaient statistiquement différentes de la condition du donneur uniquement, avec une augmentation de ΔLifetime d’environ 130 ps (Figure 4A). Des observations similaires ont été faites pour shadowG-AURKA-mTurquoise2 et pour superYFP-AURKA-mTurquoise2, avec une augmentation de ΔLifetime de ~150 et ~220 ps par rapport à la condition du donneur uniquement, respectivement (Figure 4B,4C). Ces données peuvent être facilement visualisées dans des cellules individuelles avec une table de choix (LUT) pseudocolore. Dans ce cas, les valeurs de ΔLifetime autour de 0 sont pseudocolores en jaune, tandis que les différences plus significatives sont pseudocolores rouge/violet. En effet, la LUT pixel par pixel était plus proche du jaune dans les cellules exprimant les constructions du donneur uniquement, tandis qu’elle était plus dans le spectre rouge/violet dans les cellules exprimant l’un ou l’autre biocapteur (Figure 4A,4B). Ceci a également été observé lorsque le biocapteur GFP-AURKA-mCherry a été traité avec l’inhibiteur pharmacologique MLN8237.
Nous avons ensuite analysé le ΔLifetime des biocapteurs morts de kinases. Ces constructions ont montré des valeurs ΔLifetime intermédiaires : ΔLifetime était significativement plus élevé par rapport à la condition du donneur uniquement (Figure 4B,4C), mais il était également significativement inférieur à leurs homologues normaux (Figure 4B,4D). Les comparaisons avec des cellules traitées avec MLN8237 ou exprimant des biocapteurs morts de kinases sont nécessaires pour estimer si les variations de ΔLifetime pour chaque paire donneur/accepteur sont uniquement liées à l’activation d’AURKA. Dans le cas de GFP-AURKA-mCherry, les variations ΔLifetime sont supprimées lorsqu’un inhibiteur spécifique d’AURKA est utilisé. Inversement, les variations de ΔLifetime sont principalement, mais pas exclusivement, liées à l’activation d’AURKA dans le cas de shadowG-AURKA-mTurquoise2 et de superYFP-AURKA-mTurquoise2.
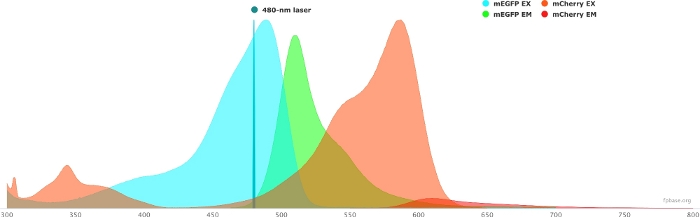
Figure 1 : Spectres d’excitation et d’émission GFP (donneur) et mCherry (accepteur).
Les spectres ont été obtenus et adaptés à partir du site Web de base FP (https://www.fpbase.org/), et ajustés à une excitation laser de 480 nm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
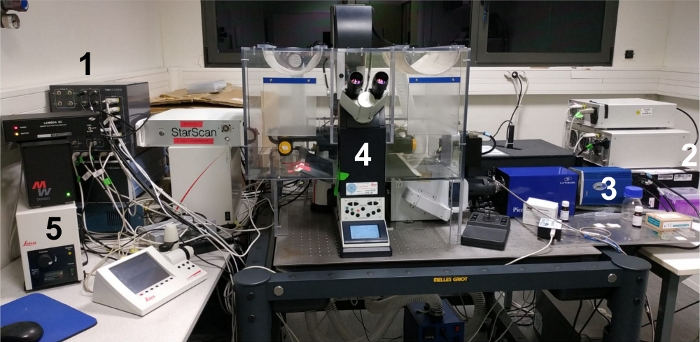
Figure 2 : Image de l’espace de travail expérimental.
(1) La solution de contrôle; (2) source laser blanche; (3) caméra CCD; 4° la configuration du microscope; 5° source lumineuse externe/lampe pour le criblage oculaire de l’échantillon. Veuillez cliquer ici pour voir une version agrandie de cette figure.
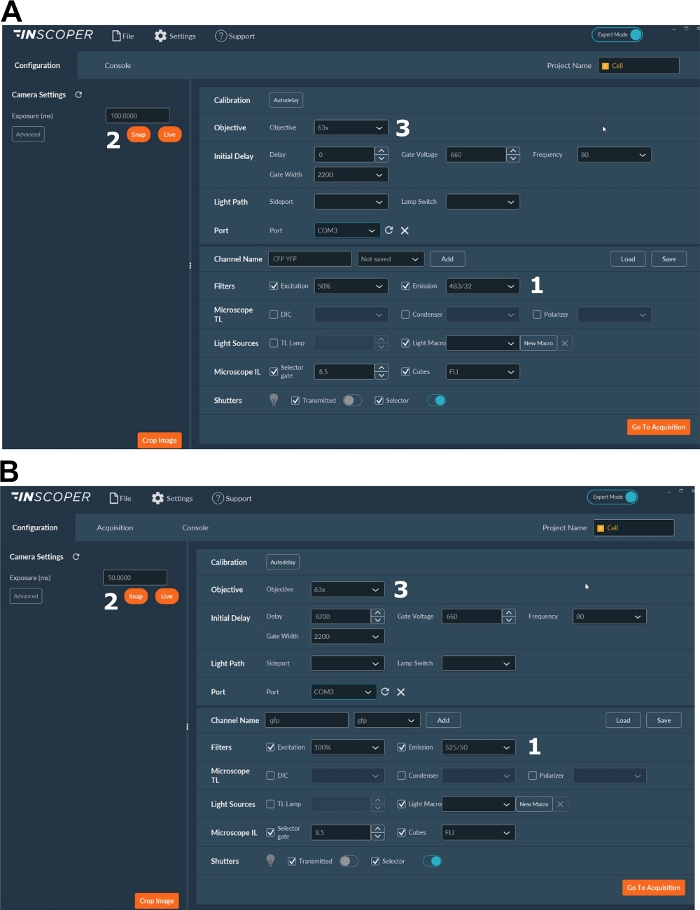
Figure 3 : Images représentatives du logiciel pour l’acquisition de FLIM.
(A, B) (1) paramètres d’excitation et d’émission pour le donneur (CFP en A, ou GFP en B); 2° le temps d’exposition; 3° la sélection de l’objectif. Veuillez cliquer ici pour voir une version agrandie de cette figure.
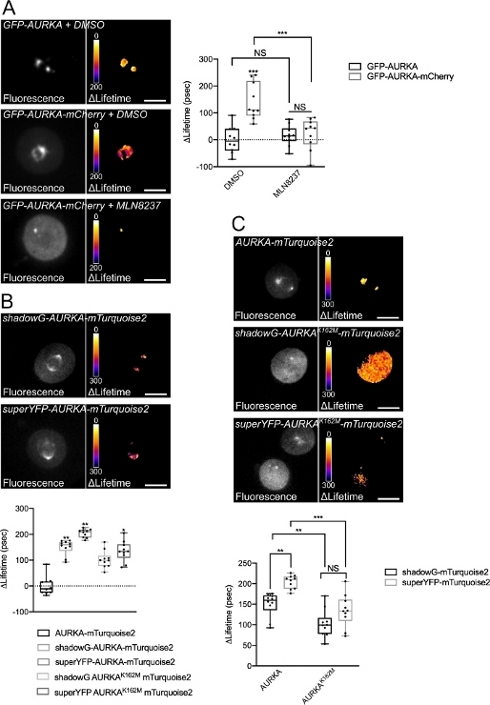
Figure 4 : Images représentatives des biocapteurs AURKA FRET et de leurs témoins négatifs.
(A) (Micrographies) Fluorescence (canal vert) et ΔLifetime correspondant pixel par pixel (donneur uniquement – biocapteur) des cellules U2OS exprimant GFP-AURKA ou GFP-AURKA-mCherry, synchronisées à G2/M, libérées jusqu’à ce que le fuseau bipolaire soit visible puis traitées avec du DMSO ou avec MLN8237. ΔLifetime est illustré par une échelle de pseudocolores (table de choix « Fire »). (Graphique) Quantification correspondante et analyse ANOVA bidirectionnelle pour les conditions indiquées. (B) (Micrographies) Fluorescence (canal cyan) et pixel par pixel correspondant ΔLifetime (donneur uniquement – biocapteur) des cellules U2OS exprimant shadowG-AURKA-mTurquoise2 (panneau supérieur) ou superYFP-AURKA-mTurquoise2 (panneau inférieur), synchronisées à G2/M et libérées jusqu’à ce que le fuseau bipolaire soit visible. ΔLifetime est illustré par une échelle de pseudocolores (table de choix « Fire »). (Graphique) Quantification correspondante et analyse ANOVA unidirectionnelle des conditions représentées dans les micrographies ci-dessus. (C) (Micrographies) Images de AURKA-mTurquoise2 (panneau supérieur), shadowG-AURKA K162M-mTurquoise2 (panneau central) et superYFP-AURKA K162M-mTurquoise2 acquises et représentées comme dans les micrographies. (Graphique) Analyse ANOVA bidirectionnelle pour les conditions de transfection indiquées. La barre dans boxplots représente la médiane ; les moustaches s’étendent du min au max. n = 10 cellules par condition d’une expérience représentative (sur trois). Les valeurs individuelles sont représentées sous forme de points. Barre d’échelle : 10 μm. *P < 0,05, **P < 0,01, ***P < 0,001 par rapport à chaque condition indiquée dans (A) la condition « AURKA-mTurquoise2 » dans (B), et contre chaque condition indiquée dans (C). NS : pas significatif. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Les biocapteurs FRET génétiquement codés sont des outils fiables pour mesurer l’activation de protéines uniques ou de voies de signalisation entières41. En particulier, le biocapteur AURKA FRET constitue un moyen préférentiel d’explorer l’activation de la kinase dans le temps et l’espace. Cependant, certains éléments méritent une attention particulière lors de la conception ou de l’optimisation d’un biocapteur FRET, non seulement en termes généraux, mais plus spécifiquement pour AURKA.
Tout d’abord, la nature et la position relative de la paire FRET donneur/accepteur peuvent être adaptées à des fonctions spécifiques de cette kinase. AURKA est grandement enrichi au fuseau mitotique pendant la mitose, mais il est présent tout au long du cycle cellulaire et à différents endroits subcellulaires (par exemple, les centrosomes, le noyau et les mitochondries)1,2. Si le biocapteur doit être utilisé dans des compartiments spécifiques comme les mitochondries, qui peuvent atteindre un pH acide, le choix d’une paire FRET donneur-accepteur insensible au pH comme mTurquoise2/shadowG doit être fait. De plus, placer le donneur FRET au terminus C pourrait permettre une meilleure visualisation du biocapteur dans ce compartiment subcellulaire, et potentiellement même optimiser la détection FRET étant donné qu’il a été démontré que AURKA N-terminus se clivait partiellement au niveau des mitochondries16,42.
Deuxièmement, une façon encore inexplorée d’optimiser le biocapteur AURKA FRET nécessiterait une conception plus minutieuse des liants entre AURKA pleine longueur et la paire donneur/accepteur. Non seulement la distance entre la paire fluorescente, mais aussi les propriétés de l’agent de liaison lui-même se sont révélées être des facteurs clés pour améliorer l’efficacité FRET43,44,45,46. Dans cette optique, l’augmentation de la rigidité ou de la flexibilité de l’éditeur de liaison pourrait soit nuire à l’efficacité fret, soit l’améliorer davantage.
Troisièmement, on sait que la surexpression d’AURKA induit des anomalies du fuseau mitotique dans une proportion importante de cellules2. Il serait intéressant de comparer ΔLifetime obtenu en exprimant la même construction FRET sous un promoteur fort comme le cytomégalovirus (CMV) – l’un des promoteurs les plus courants trouvés dans les vecteurs d’expression des mammifères – ou sous la séquence de promoteur minimal AURKA (CTTCCGG)14,47. Il a déjà été démontré que ce promoteur sauve les fuseaux monopolaires ou multipolaires survenant après l’élimination de la kinase, et son utilisation n’a pas induit de perturbations du cycle cellulaire en soi14,47. Bien que FLIM soit insensible aux niveaux d’expression des protéines et aux concentrations relatives dans la cellule11, bénéficier d’une comparaison approfondie des deux promoteurs sur la même configuration de biocapteurs élargirait la compréhension du pool d’AURKA activé à un endroit donné. En outre, il fournirait de nouvelles informations sur la façon dont l’activation d’AURKA peut changer lors de la surexpression, ce qui est pertinent pour les paradigmes du cancer épithélial et hématologique.
Enfin, l’application FRET en aval doit également être prise en compte. Une perspective future dans le domaine de l’AURKA serait de cumuler le biocapteur conformationnel kinase avec un biocapteur à base de substrat. L’analyse du comportement FRET de deux biocapteurs simultanément – un processus connu sous le nom de MULTIPLEX FRET – nécessite un accepteur sombre sur le premier biocapteur pour éviter le saignement spectral dans le deuxième canal donneur. Dans le contexte d’AURKA, cela ouvrirait la nouvelle perspective passionnante de détecter l’activation de la kinase avec le premier biocapteur, et son activité enzymatique vers un substrat donné avec le second. Les développements récents du multiplexage permettent désormais de cumuler jusqu’à trois biocapteurs à la fois48. L’application d’une méthode similaire dans le contexte d’AURKA pourrait représenter une stratégie très prometteuse non seulement pour tester l’interaction activation-activité de la kinase, mais aussi pour explorer les cascades de signalisation AURKA avec une résolution spatio-temporelle sans précédent.
En conclusion, FRET/FLIM est un moyen pratique d’approfondir les connaissances sur l’activité des protéines. D’une part, il permet de visualiser la localisation d’une protéine donnée dans des cellules vivantes, grâce à au moins une fraction fluorescente. D’autre part, il peut démêler les changements conformationnels des protéines, ce qui pourrait être informatif sur l’activation et / ou l’activité des protéines. Par conséquent, fret/FLIM et les biocapteurs fret conformationnels ont le potentiel de devenir des méthodes répandues pour suivre les voies de signalisation dans les cellules vivantes, et avec une résolution spatio-temporelle exquise.
Déclarations de divulgation
G.B. a effectué les expériences, a écrit et révisé le manuscrit, et a fourni le financement, M.T. a examiné le manuscrit et a fourni un soutien. M.T. est conseiller scientifique et actionnaire de la société Inscoper (France), qui produit les solutions de mesures FLIM rapides présentées dans ce manuscrit. Inscoper a partiellement soutenu la publication en libre accès du manuscrit. Inscoper n’a pas participé à la conception expérimentale, au traitement des données, ni à la rédaction du manuscrit.
Remerciements
Nous remercions les ingénieurs du Centre d’Imagerie Microscopie-Rennes (MRic, BIOSIT, Rennes, France) pour leurs conseils et leur aide, et en particulier X. Pinson pour la lecture critique du manuscrit. MRic est membre de l’infrastructure nationale France-BioImagerie soutenue par l’Agence nationale de la recherche Français (ANR-10-INBS-04). Ces travaux ont été soutenus par le Centre National de la Recherche Scientifique (CNRS), la Ligue Contre le Cancer Comités d’Ille et Vilaine, des Côtes d’Armor et du Finistère, et l’Association pour la Recherche Contre le Cancer (ARC) à G.B.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Alisertib (MLN8237) | SelleckChem | S1133 | Utilisation à une dilution finale de 250 nM |
| Dulbecco’s Modified Eagle Medium (DMEM) | ThermoFischer Scientific Brand : Gibco | 41966052 | High glucose + L-glutamine + Sodium pyruvate |
| Fetal Bovin Serum (FBS) | ThermoFischer Scientific Brand : Gibco | ||
| L15 | ThermoFischer Scientific Marque : Gibco | 21083027 | Leibovitz’s L15 medium + L-glutamine, sans rouge de phénol |
| LabTek | Nunc | 2515380 | |
| Nocodazole | Merck Brand : Sigma-Aldrich | M1404 | Utilisation à une dilution finale de 100 ng/mL |
| Pénicilline/Streptomycine | ThermoFischer Scientific Marque : Gibco | 15140122 | Pénicilline-Streptomycine 10 000 U/mL (100x) |
| Tampon phosphate salin (PBS) | ThermoFischer Scientific Brand : Gibco | 14190169 | DPBS, sans calcium, sans magnésium |
| Trypsine/EDTA | ThermoFischer Scientific Marque : Gibco | 25300096 | Trypsine-EDTA 0,05 %, Rouge de phénol (1x) |
Références
- Bertolin, G., Tramier, M. Insights into the non-mitotic functions of Aurora kinase A: more than just cell division. Cellular and Molecular Life Sciences. , (2019).
- Nikonova, A. S., Astsaturov, I., Serebriiskii, I. G., Dunbrack, R. L., Golemis, E. A. Aurora A kinase (AURKA) in normal and pathological cell division. Cellular and Molecular Life Sciences. 70 (4), 661-687 (2013).
- Walter, A. O., Seghezzi, W., Korver, W., Sheung, J., Lees, E. The mitotic serine/threonine kinase Aurora2/AIK is regulated by phosphorylation and degradation. Oncogene. 19 (42), 4906-4916 (2000).
- Cheetham, G. M. T. Crystal Structure of Aurora-2, an Oncogenic Serine/Threonine Kinase. Journal of Biological Chemistry. 277 (45), 42419-42422 (2002).
- Bayliss, R., Sardon, T., Vernos, I., Conti, E. Structural basis of Aurora-A activation by TPX2 at the mitotic spindle. Molecular Cell. 12 (4), 851-862 (2003).
- Zhang, Y., et al. Identification of the auto-inhibitory domains of Aurora-A kinase. Biochemical and Biophysical Research Communications. 357 (2), 347-352 (2007).
- Littlepage, L. E., Wu, H., Andresson, T., Deanehan, J. K., Amundadottir, L. T., Ruderman, J. V. Identification of phosphorylated residues that affect the activity of the mitotic kinase Aurora-A. Proceedings of the National Academy of Sciences of the United States of America. 99 (24), 15440-15445 (2002).
- Kufer, T. A., et al. Human TPX2 is required for targeting Aurora-A kinase to the spindle. The Journal of Cell Biology. 158 (4), 617-623 (2002).
- Eyers, P. A., Erikson, E., Chen, L. G., Maller, J. L. A novel mechanism for activation of the protein kinase Aurora A. Current Biology. 13 (8), 691-697 (2003).
- Brunet, S., et al. Characterization of the TPX2 Domains Involved in Microtubule Nucleation and Spindle Assembly in Xenopus Egg Extracts. Molecular Biology of the Cell. 15 (12), 5318-5328 (2004).
- Padilla-Parra, S., Tramier, M. FRET microscopy in the living cell: Different approaches, strengths and weaknesses. BioEssays. 34 (5), 369-376 (2012).
- Aoki, K., Kamioka, Y., Matsuda, M. Fluorescence resonance energy transfer imaging of cell signaling from in vitro to in vivo: Basis of biosensor construction, live imaging, and image processing. Development, Growth & Differentiation. 55 (4), 515-522 (2013).
- Fuller, B. G., et al. Midzone activation of aurora B in anaphase produces an intracellular phosphorylation gradient. Nature. 453 (7198), 1132-1136 (2008).
- Bertolin, G., et al. A FRET biosensor reveals spatiotemporal activation and functions of aurora kinase A in living cells. Nature Communications. 7, 12674(2016).
- Bertolin, G., et al. Optimized FRET Pairs and Quantification Approaches To Detect the Activation of Aurora Kinase A at Mitosis. ACS Sensors. 4 (8), 2018-2027 (2019).
- Bertolin, G., et al. Aurora kinase A localises to mitochondria to control organelle dynamics and energy production. eLife. 7, (2018).
- Sizaire, F., Le Marchand, G., Pécréaux, J., Bouchareb, O., Tramier, M. Automated screening of AURKA activity based on a genetically encoded FRET biosensor using fluorescence lifetime imaging microscopy. Methods and Applications in Fluorescence. 8 (2), 024006(2020).
- Demeautis, C., et al. Multiplexing PKA and ERK1&2 kinases FRET biosensors in living cells using single excitation wavelength dual colour FLIM. Scientific Reports. 7, 41026(2017).
- Ringer, P., et al. Multiplexing molecular tension sensors reveals piconewton force gradient across talin-1. Nature Methods. 14 (11), 1090-1096 (2017).
- Nagai, T., Yamada, S., Tominaga, T., Ichikawa, M., Miyawaki, A. Expanded dynamic range of fluorescent indicators for Ca(2+) by circularly permuted yellow fluorescent proteins. Proceedings of the National Academy of Sciences of the United States of America. 101 (29), 10554-10559 (2004).
- Klarenbeek, J., Goedhart, J., van Batenburg, A., Groenewald, D., Jalink, K. Fourth-Generation Epac-Based FRET Sensors for cAMP Feature Exceptional Brightness, Photostability and Dynamic Range: Characterization of Dedicated Sensors for FLIM, for Ratiometry and with High Affinity. PLOS ONE. 10 (4), 0122513(2015).
- Fritz, R. D., et al. A Versatile Toolkit to Produce Sensitive FRET Biosensors to Visualize Signaling in Time and Space. Science Signaling. 6 (285), (2013).
- Mastop, M., et al. Characterization of a spectrally diverse set of fluorescent proteins as FRET acceptors for mTurquoise2. Scientific Reports. 7 (1), 11999(2017).
- vander Krogt, G. N. M., Ogink, J., Ponsioen, B., Jalink, K. A Comparison of Donor-Acceptor Pairs for Genetically Encoded FRET Sensors: Application to the Epac cAMP Sensor as an Example. PLoS ONE. 3 (4), 1916(2008).
- Cranfill, P. J., et al. Quantitative assessment of fluorescent proteins. Nature Methods. 13 (7), 557-562 (2016).
- Goedhart, J., et al. Structure-guided evolution of cyan fluorescent proteins towards a quantum yield of 93. Nature Communications. 3 (1), (2012).
- Mérola, F., et al. Newly engineered cyan fluorescent proteins with enhanced performances for live cell FRET imaging. Biotechnology Journal. 9 (2), 180-191 (2014).
- Erard, M., et al. Minimum set of mutations needed to optimize cyan fluorescent proteins for live cell imaging. Molecular BioSystems. 9 (2), 258-267 (2013).
- Tramier, M., Zahid, M., Mevel, J. C., Masse, M. J., Coppey-Moisan, M. Sensitivity of CFP/YFP and GFP/mCherry pairs to donor photobleaching on FRET determination by fluorescence lifetime imaging microscopy in living cells. Microscopy Research and Technique. 69 (11), 933-939 (2006).
- Padilla-Parra, S., et al. Quantitative Comparison of Different Fluorescent Protein Couples for Fast FRET-FLIM Acquisition. Biophysical Journal. 97 (8), 2368-2376 (2009).
- Burgstaller, S., et al. pH-Lemon, a Fluorescent Protein-Based pH Reporter for Acidic Compartments. ACS Sensors. , (2019).
- Bindels, D. S., et al. mScarlet: a bright monomeric red fluorescent protein for cellular imaging. Nature Methods. 14 (1), 53-56 (2016).
- Murakoshi, H., Shibata, A. C. E., Nakahata, Y., Nabekura, J. A dark green fluorescent protein as an acceptor for measurement of Förster resonance energy transfer. Scientific Reports. 5, 15334(2015).
- Murakoshi, H., Shibata, A. C. E. ShadowY: a dark yellow fluorescent protein for FLIM-based FRET measurement. Scientific Reports. 7 (1), 6791(2017).
- Leray, A., Padilla-Parra, S., Roul, J., Héliot, L., Tramier, M. Spatio-Temporal Quantification of FRET in living cells by fast time-domain FLIM: a comparative study of non-fitting methods [corrected]. PloS One. 8 (7), 69335(2013).
- Padilla-Parra, S., Audugé, N., Coppey-Moisan, M., Tramier, M. Quantitative FRET analysis by fast acquisition time domain FLIM at high spatial resolution in living cells. Biophysical Journal. 95 (6), 2976-2988 (2008).
- Song, L., Hennink, E. J., Young, I. T., Tanke, H. J. Photobleaching kinetics of fluorescein in quantitative fluorescence microscopy. Biophysical Journal. 68 (6), 2588-2600 (1995).
- Manfredi, M. G., et al. Characterization of Alisertib (MLN8237), an investigational small-molecule inhibitor of aurora A kinase using novel in vivo pharmacodynamic assays. Clinical Cancer Research: An Official Journal of the American Association for Cancer Research. 17 (24), 7614-7624 (2011).
- Katayama, H., et al. Phosphorylation by aurora kinase A induces Mdm2-mediated destabilization and inhibition of p53. Nature Genetics. 36 (1), 55-62 (2004).
- Nowakowski, J., et al. Structures of the Cancer-Related Aurora-A, FAK, and EphA2 Protein Kinases from Nanovolume Crystallography. Structure. 10 (12), 1659-1667 (2002).
- Palmer, A. E., Qin, Y., Park, J. G., McCombs, J. E. Design and application of genetically encoded biosensors. Trends in Biotechnology. 29 (3), 144-152 (2011).
- Grant, R., et al. Constitutive regulation of mitochondrial morphology by Aurora A kinase depends on a predicted cryptic targeting sequence at the N-terminus. Open Biology. 8 (6), 170272(2018).
- Shimozono, S., Miyawaki, A. Engineering FRET Constructs Using CFP and YFP. Methods in Cell Biology. 85, 381-393 (2008).
- Komatsu, N., et al. Development of an optimized backbone of FRET biosensors for kinases and GTPases. Molecular Biology of the Cell. 22 (23), 4647-4656 (2011).
- Schifferer, M., Griesbeck, O. A Dynamic FRET Reporter of Gene Expression Improved by Functional Screening. Journal of the American Chemical Society. 134 (37), 15185-15188 (2012).
- Peroza, E. A., Boumezbeur, A. H., Zamboni, N. Rapid, randomized development of genetically encoded FRET sensors for small molecules. Analyst. 140 (13), 4540-4548 (2015).
- Reboutier, D., et al. Aurora A is involved in central spindle assembly through phosphorylation of Ser 19 in P150Glued. The Journal of Cell Biology. 201 (1), 65-79 (2013).
- Mo, G. C. H., Posner, C., Rodriguez, E. A., Sun, T., Zhang, J. A rationally enhanced red fluorescent protein expands the utility of FRET biosensors. Nature Communications. 11 (1), 1848(2020).
Réimpressions et autorisations
