Nous présentons un modèle de migration 3D du glioblastome utilisant des gliomasphères magnétiques dérivées du patient générées à partir de tumeurs nouvellement diagnostiquées et récurrentes. Cette plateforme permet de visualiser la dynamique migratoire spécifique au patient et d’évaluer l’efficacité thérapeutique. Le test peut être multiplexé après migration afin d’évaluer la localisation et les schémas d’expression des protéines.
Article de méthode
Essai de migration du glioblastome 3D reproductible avec localisation sphéroïde médiée par nanoparticules magnétiques dans des conditions hypoxiques
Dans cet article
Résumé
Résumé
Nous décrivons un test de migration 3D reproductible pour modéliser le potentiel migratoire et invasif des gliomasphères de glioblastome dérivées du patient à partir de tumeurs nouvellement diagnostiquées et récurrentes dans des conditions hypoxiques cliniquement pertinentes. Des gliomasphères de taille uniforme sont transférées sur une fine couche de matrice extracellulaire et co-cultivées avec des nanoparticules magnétiques d’oxyde de fer, ce qui permet leur localisation centralisée dans les puits de culture via le placement sur un support de plaque magnétique. L’inclusion de nanoparticules magnétiques d’oxyde de fer lors de l’ensemencement facilite une imagerie précise et localisée des gliomasphères individuelles issues d’un patient grâce à une force magnétique douce et optimise les pipelines automatisés de traitement des images en réduisant la variabilité positionnelle. Cet essai soutient une étude détaillée du comportement migratoire du glioblastome dans un microenvironnement physiologiquement pertinent et permet une comparaison directe du potentiel invasif et du comportement migratoire entre les gliomasphères nouvellement diagnostiquées et récidives dérivées de patients. La méthode est compatible avec l’imagerie à cellules vivantes et l’analyse multiplexée, offrant une plateforme évolutive pour l’investigation préclinique de la migration du glioblastome, du potentiel invasif et de la réponse thérapeutique.
Introduction
Le glioblastome reste l’un des défis les plus importants en neurooncologie. Cette maladie est provoquée par une hétérogénéité étendue entre et intra-patients, une forte évitement de la réponse aux soins standards, une résistance à l’induction apoptotique et une plasticité remarquable en réponse aux conditionsenvironnementales 1. Plus récemment, la complexité du microenvironnement tumoral (TME) a suscité une attention considérable, en particulier la nature dynamique des cellules souches similaires au gliome (GSC), qui peuvent changer de phénotype et d’état cellulaire en réponse aux changements microenvironnementaux 2,3. Cette plasticité phénotypique favorise la progression tumorale et contribue à une récidive inévitable malgré un traitement agressif de première ligne. La résection chirurgicale reste l’intervention la plus efficace pour améliorer le pronostic du patient, cependant, en raison de la nature très infiltrative et microscopique invasive du glioblastome, l’ablation complète de la tumeur n’est pasréalisable 4. Modéliser la dynamique invasive des échantillons de patients à travers différents stades pathologiques et dans des conditions tumorales spécifiques facilitera une compréhension plus approfondie de la capacité dynamique et plastique de la migration des glioblastomes et aidera donc à identifier des approches thérapeutiques innovanteset efficaces 5. Par conséquent, développer des modèles physiologiquement pertinents qui capturent les dynamiques d’invasion et de migration spécifiques aux patients est essentiel pour renforcer la recherche préclinique et faire progresser ces objectifs. De plus, de tels modèles sont essentiels pour évaluer l’efficacité de nouvelles thérapies antitumorales, qui pourraient en théorie être développées pour être utilisées en combinaison avec la chirurgie afin de prévenir l’invasion microscopique résiduelle et, en fin de compte, de réduire le risque de récidive. La complexité du glioblastome justifie le besoin de modèles précliniques complexes avancés capables de reproduire des caractéristiques architecturales tumorales clés. Les modèles tridimensionnels dérivés par le patient ont attiré davantage l’attention pour leur capacité à préserver les interactions cellulaires, à maintenir des gradients de nutriments, d’oxygène et d’agents thérapeutiques, et à répliquer l’intégrité structurelle des tumeursnatives 6,7. Cependant, la visualisation de ces modèles 3D présente des défis techniques, notamment le positionnement des sphéroïdes, la variabilité de l’imagerie et la reproductibilité des essais.
Ici, nous décrivons un modèle de migration du glioblastome 3D spécifique au patient, réalisé dans des conditions hypoxiques, permettant d’étudier la dynamique migratoire entre des échantillons dérivés de divers sous-types de tumeurs et stades de la maladie, y compris des échantillons de tumeurs naïves et récidivantes de traitement. Cette plateforme permet d’évaluer les réponses différentielles aux agents thérapeutiques et soutient l’analyse multiplex post-migration via segmentation d’image, permettant une évaluation quantitative de la dynamique de la migration, de la croissance des sphéroïdes et de l’expression des protéines. L’incorporation de nanoparticules magnétiques d’oxyde de fer permet une centralisation cohérente des sphéroïdes dans chaque puits en appliquant une force magnétiquedouce 8. Les sphéroïdes cultivés dans des plaques multipuits standard présentent souvent une tendance à dériver vers les bords du puits, un comportement que l’on pense être influencé par la formation de ménisques liquides et l’évaporation périphérique, notamment dans les puits situés au périmètre 9,10,11. Ces phénomènes introduisent des artefacts d’imagerie et du bruit de fond, en particulier lors de la microscopie à lumière transmise, ce qui peut compliquer l’imagerie en lapsus temporels des dynamiques d’invasion. Contrairement aux cultures monocouches 2D, où des régions de densité cellulaire uniforme peuvent être sélectionnées pour l’imagerie, les tests d’invasion sphéroïde unique nécessitent un positionnement précis et cohérent de l’ensemble de la zone sphéroïde et de migration dans le champ d’imagerie. Cela ajoute un défi supplémentaire, car la dérive ou un positionnement irrégulier dans le puits peuvent compromettre la qualité et la reproductibilité des données. Ainsi, centraliser systématiquement les sphéroïdes au sein des plaques multipuits minimise ces défis et améliore non seulement la qualité de l’imagerie, mais aussi la cohérence expérimentale, les pipelines de traitement d’image et les analyses post-migration. De plus, l’initiation des cultures sphéroïdes à des densités cellulaires uniformes dans ces plaques spécialisées favorise la formation de sphéroïdes reproductibles, réduisant la variabilité de morphologie, de taux de croissance et d’intégritéstructurelle 10,11. En termes pratiques, les gliomasphères typiques utilisées dans ces tests varient de 150 à 300 μm de diamètre, se formant de manière reproductible sous densités cellulaires standardisées. Les cultures sont maintenues dans des conditions hypoxiques (1 % à 2 %O2).
La plateforme décrite ici prend en charge des formats de débit modéré à élevé, tels que des plaques à 96 puits, permettant plusieurs réplications par échantillon de patient, et est évolutive pour le dépistage de drogues ou des testsmulti-conditions 12 . L’optimisation du positionnement des sphéroïdes et des conditions de culture est donc essentielle pour renforcer la robustesse et la pertinence clinique des modèles précliniques 3D utilisés pour étudier le potentiel invasif du gliome et d’autres processus cellulaires dynamiques.
Protocole
Les cellules de glioblastome issues des patients ont été fournies par Erasmus MC, Rotterdam, Pays-Bas, et l’Hospital for Sick Children (Toronto, Canada). Les échantillons primaires de ces lignées ont été obtenus lors de résections de routine auprès de patients sous leur consentement éclairé (numéros d’approbation éthique, MEC-2013-090, 0020010404).
1. Préparation des gliomasphères magnétiques issues du patient (Figure 1)
- Au moins 30 minutes avant la dissociation de la gliomasphère, il suffit de décoller la cellule pour le milieu enzymatique et le milieu de la gliomasphère pour l’expérience (typiquement 1 mL par flasque T75 confluent) et d’amener les deux à température ambiante.
- Dans des conditions stériles, prélever les gliomaspheres dans la fiole de culture par aspiration douce à l’aide d’une pipette sérologique de 10 mL et une pipette aidante, puis transférez-les dans un tube conique de 15 mL. Centrifugez à 300 x g pendant 3 minutes. Jetez soigneusement le surnageant sans déranger la pastille cellulaire.
- Reposez le pellet dans 1 mL de milieu enzymatique de décollement cellulaire à température ambiante et incubez pendant 10 à 15 minutes, en agitant doucement toutes les 2 à 3 minutes en pipettant avec une pipette P1000 pour faciliter la dissociation en suspension unicellulaire.
- Ajoutez un volume égal de milieu de gliomasphère pour désactiver l’enzyme. Centrifugez la suspension monocellulaire à 300 x g pendant 3 minutes à 37 °C, puis resuspendez doucement la pellete cellulaire dans 3 à 5 mL de milieu complet de gliomasphère, selon la taille de la pellete, en notant le volume exact utilisé pour le comptage cellulaire ultérieur.
REMARQUE : Le temps d’incubation du milieu enzymatique dépendra en grande partie de la taille des gliomasphères en culture, il faut toujours inspecter visuellement avant l’utilisation et adopter en conséquence. - Prenez une aliquote représentative de 10 μL de la suspension monocellulaire et mélangez-la doucement avec 10 μL de bleu de Trypan dans un tube microcentrifuge de 1,5 mL. Chargez 10 μL de ce mélange dans un hémocytomètre ou un compteur cellulaire automatisé pour déterminer les cellules viables.
- Semez 500 cellules de glioblastome simple par puits dans une microplaque sphéroïde à 96 puits d’attachement ultra-faible. La densité optimale d’ensemencement peut varier selon les échantillons de patients.
- Ajoutez 1 μg/mL d’iodure de propidium (PI) et 0,05 μL de nanoparticules d’oxyde de fer par puits (par exemple, utilisez 1,5 μL de nanoparticules magnétiques pour 20 sphéroïdes, correspondant à environ 10 000 cellules individuelles). Assurez-vous que les nanoparticules d’oxyde de fer sont homogénéisées avant l’ajout en pipettant vers le haut et vers le bas avec un P100 réglé à 100 μL.
REMARQUE : Le volume de nanoparticules d’oxyde de fer utilisées peut être optimisé selon la lignée cellulaire utilisée, cependant, dans ce cas, 1,5 μL pour 10 000 cellules suffisait à localiser centralement les sphéroïdes. Cette configuration assure une taille sphéroïde cohérente à travers les échantillons de patients, facilitant la comparaison directe des dynamiques d’invasion et de croissance lors de l’analyse d’invasion. - Incuber les plaques pendant 48 h dans un incubateur de cultures cellulaires humidifiées à 37 °C, 5 % deCO2 et 21 %d’O2 pour permettre la formation de la gliomasphère.
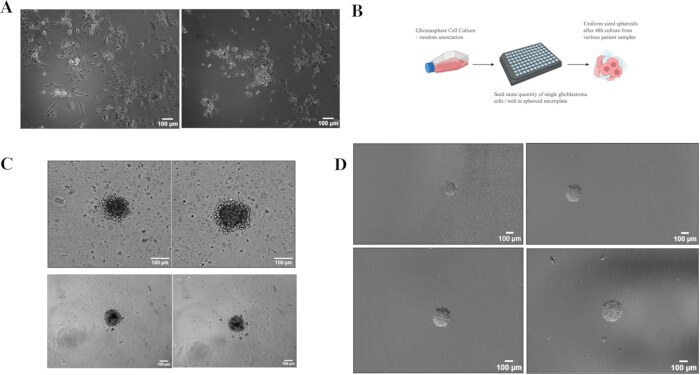
Figure 1 : Gliomasphères de taille uniforme et localisation, co-cultivées avec des nanoparticules d’oxyde de fer. (A) Les gliomasphères issues de tumeurs de patients nouvellement diagnostiquées et récurrentes présentent des phénotypes doubles et des associations aléatoires de cellule à cellule. (B) Représentation schématique de la formation des sphéroïdes de taille uniforme dans les 48 h suivant le semis. (C) Images à lumière transmise de gliomasphères cultivées pendant 48 heures dans une microplaque sphéroïde à fond rond sans (panneau supérieur) et avec (panneau inférieur) de nanoparticules d’oxyde de fer. Notez l’apparence sombre et tachetée de gliomasphères contenant des nanoparticules d’oxyde de fer. (D) Positionnement de la gliomasphère montrant une localisation aléatoire des gliomasphères cultivées sans nanoparticules (haut) par rapport à une localisation centrale constante de celles cultivées avec des nanoparticules (bas), ce qui réduit le bruit de fond et améliore la qualité de l’image. Barre-échelle = 100 μm. Schéma réalisé avec Biorender.com. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
2. Préparation de plaques multi-puits revêtues de matrice extracellulaire (ECM) (1 h avant l’essai de migration)
- Veuillez déposer l’ECM selon les instructions du fabricant. Décongelez une aliquote de 1 mL d’ECM (dilution 1:10) lentement sur glace pendant la nuit à 4 °C. Immédiatement avant le placage, préparez une solution de travail finale à 1:100 (v/v) en effectuant une dilution supplémentaire à 1:10 du fond 1:10 dans un milieu complet de neurosphère glacé. Gardez l’ECM dilué sur la glace en permanence pour éviter une polymérisation prématurée. Gardez toujours cette dilution sur de la glace car l’ECM polymérisera rapidement à température ambiante.
- Distribuez 50 μL de la solution de travail ECM 1:100 dans chaque puits d’une plaque claire, à fond plat ou μClear à 96 puits. Incubez la plaque à 37 °C pendant au moins 1 h afin de permettre à l’ECM de se fixer et de former une fine matrice dans chaque puits.
- Après l’incubation, retirez soigneusement 30 μL de chaque puits, laissant 20 μL de ECM polymérisé (concentration finale 1:100 v/v) recouvrir le fond de chaque puits. L’ECM doit être maintenu aussi froid que possible pendant cette période, car il polymérise rapidement à température ambiante. La plaque d’imagerie peut également être pré-refroidie et stockée sur glace pendant ce processus.
3. Installation de plaques d’imagerie et imagerie des cellules vivantes
- Le jour du test (48 h après l’ensemencement de la gliomasphère), placez la microplaque revêtue d’ECM sur un entraînement magnétique à 96 puits, comme montré à la Figure 2B,C. Stériliser la plaque magnétique en pulvérisant à 70 % d’éthanol et en essuyant à sec, ne pas faire tremper.
- Inspectez visuellement les sphéroïdes pour en vérifier leur qualité et leur uniformité. À l’aide d’une pipette, transférez 80 μL de milieu contenant la gliomasphère unique de chaque puits et pipettez doucement sur la plaque avec la surface de la MEC.
REMARQUE : Pour les sphéroïdes particulièrement grands, veillez à minimiser les contraintes de cisaillement lors du transfert ; cela peut être obtenu en coupant 1 à 2 mm de la pointe d’une pointe de pipette P100 avec des ciseaux pour élargir l’ouverture et réduire les dommages mécaniques. Assurez-vous que les ciseaux ont été stérilisés sous UV avant utilisation. Le plus important est de minimiser l’ajout de bulles d’air, car cela a un impact important sur l’imagerie. - Traiter les sphéroïdes selon le plan expérimental. Préparez les solutions de traitement aux concentrations souhaitées en volumes de 20 μL, puis ajoutez ces 20 μL à chaque puits contenant les sphéroïdes pour atteindre un volume final de 100 μL.
REMARQUE : Traiter les gliomasphères de cette manière réduit la pipetage et minimise le risque d’extraction des sphéroïdes du puits. - Transférez la plaque, tout en restant sur le lecteur magnétique, vers le système d’imagerie pour l’imagerie en direct. Soyez prudent lorsque vous retirez la plaque du support magnétique et gardez-le aussi droit que possible pour minimiser le mouvement des sphéroïdes depuis le centre du puits.
- Réalisez des images en temps réel à l’aide d’un microscope à cellules réelles inversées programmable équipé d’un objectif Plan-Apochromat 5x/0,35 NA, d’un objectif tubulaire 0,5x, d’une caméra Axiocam 506 (binning = 2) et en utilisant le logiciel Zen 3.1 (Blue Edition). La calibration des pixel au micron est intégrée au système d’imagerie et est gérée automatiquement par le logiciel, donc aucune calibration manuelle n’est requise. Dans ce cas, effectuer l’imagerie à un grossissement de 2,5x (objectif 5x avec un objectif à tube de 0,5x), avec l’appareil intégré à 2 x 2, ce qui donne un calibrage de 1 pixel = 3,645 μm.
- Ajustez les contrôles environnementaux pour qu’il y ait 1 % d’oxygène et 5 % deCO2 avec un débit d’air très lent provenant du mélangeur à gaz. Cela aide à prévenir l’évaporation indésirable lorsque l’air entrant passe à travers une bouteille humidificante.
- Pour prévenir le déplacement de la gliomasphère durant la période d’imagerie initiale, réduisez l’accélération et la vitesse de l’étage du microscope à 10 %, minimisant ainsi le mouvement sur la surface de la MCE avant l’adhésion sphéroïde.
- Chargez doucement la plaque multipuits sans entraînement magnétique dans le microscope. Le cas échéant, assurez-vous que le matériau de la plaque est sélectionné dans le logiciel afin que l’optique soit ajustée pour correspondre.
- Utilisez un grossissement approprié qui englobe tout le champ de vision invasif. Par exemple, sur Cell Discoverer 7, l’objectif 5x et l’objectif tube 0,5x ont été sélectionnés pour obtenir un grossissement de 2,5x.
- Localiser chaque gliomasphère, focaliser et assigner une position incluant les coordonnées x-y-z. L’autofocus matériel, si disponible, doit être utilisé pour assurer une imagerie cohérente du même plan focal tout au long de l’expérience.
- Vérifiez à la fois le contraste du gradient de phase (lumière transmise) et les canaux de fluorescence, et ajustez le temps d’exposition et l’intensité lumineuse pour vous assurer qu’il n’y a pas de surexposition. Excitez l’iodure de propidium (coloration des cellules mortes) avec une LED de 590 nm. Collecter l’émission à l’aide d’un filtre passe-bande quadruple, captant la bande de longueurs d’onde de 618 à 756 nm. Cela peut varier selon d’autres microscopes, selon les filtres et la source lumineuse présente.
- Configurez pour prendre des images toutes les heures pendant le nombre de jours souhaité.
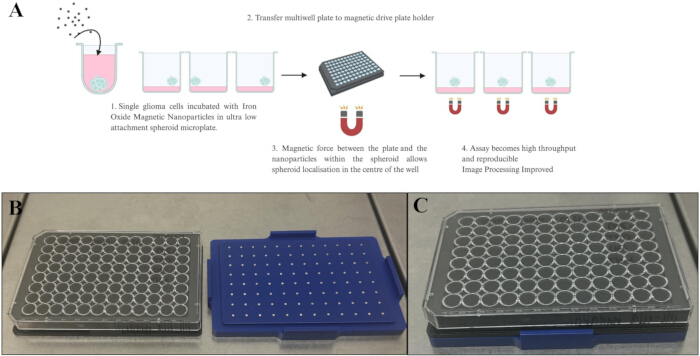
Figure 2 : Description de la configuration de la plaque d’imagerie. (A) Schéma représentant le protocole décrit. (B) Image de la plaque multipuits adjacente à l’entraînement de la plaque magnétique et simple montage de la plaque multipuits au-dessus d’un propulseur magnétique, chaque aimant individuel étant localisé au centre de chaque puits, facilitant la localisation de la gliomasphère. Schéma réalisé avec Biorender.com. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
4. Fixation des sphéroïdes après un test d’invasion pour l’analyse multiplexée des protéines (Figure 3)
- Après avoir terminé le test d’invasion, laver chaque puits avec 100 μL de PBS. Cela portera le volume à 200 μL/puits. Répétez cette étape en retirant ensuite 100 μL de PBS et en remplaçant par 100 μL supplémentaires de PBS.
- Retirez soigneusement 200 μL de milieu, puis ajoutez 100 μL de paraformodéhyde (PFA) à 4 % dans chaque puits et incubez pendant 10 minutes à température ambiante sous une hotte à fumée.
ATTENTION : Le paraformaldéhyde est un produit chimique toxique, et il faut faire preuve de prudence pour minimiser le risque ou l’exposition. - Après fixation, retirez le PFA de chaque puits et lavez 3 fois avec du PBS en retirant le PFA et en ajoutant 100 mL de PBS à chaque fois.
- Ajoutez des taches immunitaires selon les instructions du fabricant. Sinon, pour un stockage à long terme, ajoutez de l’azide de sodium (0,02 %) au PBS pour maintenir la stérilité et scellez la plaque avec un film transparent. Conserver à 4 °C jusqu’à ce que cela soit nécessaire.
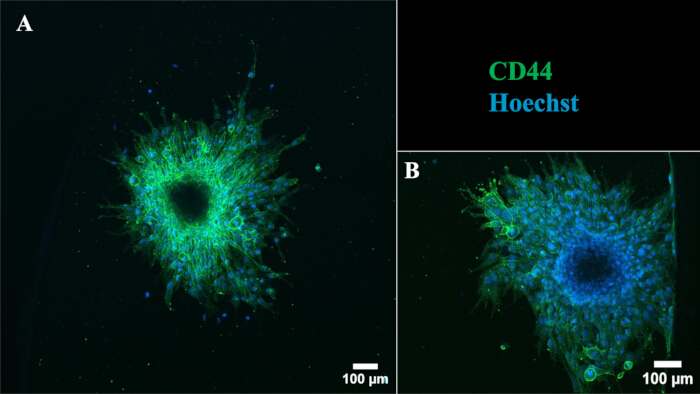
Figure 3 : Analyse représentative des protéines après l’essai de migration des gliomasphères situées au centre par rapport au bord du puits. Microscopie confocale à balayage laser de gliomasphères récurrentes immunocolorées par un anticorps ciblant le marqueur de cellules souches Glioblastome CD44 après l’analyse de migration. CD44-FITC (vert) et Hoechst (noyaux, bleu). Barre-échelle = 100 μm. Les pointes de flèche indiquent le bord du puits. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
5. Pipeline de traitement d’image de la dynamique de migration dérivée du patient
REMARQUE : D’après notre expérience avec notre jeu de données, nous recommandons que l’ordinateur de traitement dispose d’un processeur multicœur avec une fréquence de base élevée et une quantité importante de mémoire, car le traitement WEKA convient parfaitement à un nombre élevé de cœurs et utilisera la mémoire disponible selon la taille du jeu de données. Spécifications d’occasion et recommandées telles que listées ci-dessous. Notez que le traitement GPU n’est pas utilisé par ce flux de travail.
CPU : >= 6 cœurs | >= 2 GHz (recommandé) ; 32 cœurs | 2,1 GHz (utilisé)
Mémoire : > 32 Go (recommandé) ; 192 Go (d’occasion)
- Open Fiji13 [actuellement, l’exécutable ImageJ-win64.exe inclus est utilisé pour l’analyse]. Ouvrir l’image en naviguant vers – Fichier > Ouvrir Sélectionner le fichier image en time-lapse multi-canaux et multi-scènes (.czi) s’ouvre sur l’interface Fiji (si vous utilisez le script, il s’agit du fichier supplémentaire 1).
- Sélectionnez les images requises dans l’interface graphique. Il est plus efficace si les gliomasphères les plus invasives de l’expérience entraînent initialement le classificateur (c’est-à-dire le puits de contrôle – DMSO), car cette image fournit des détails sur chaque segment de l’image, c’est-à-dire l’apparence des cellules envahissantes/migrantes, sphéroïde et arrière-plan.
- Ensuite, naviguez dans Image > Couleur > Canal Divisé – cela sépare l’image en deux canaux – l’un dans ce cas avec une coloration au propidium iodure et l’autre avec la lumière transmise.
- Sélectionnez le canal de segmentation – dans ce cas, le canal de lumière transmis qui représente la dynamique de migration. Naviguez vers Plugins > segmentation > segmentation WEKA entraînable14.
- Renommer les deux classes par défaut en : Classe 1 : Gliomasphère ; Classe 2 : Invasion/Migration. Ajoutez une troisième classe nommée Background (optionnelle mais recommandée) en naviguant dans Paramètres > Nouvelle classe > Background.
- En utilisant l’outil Freeline, annotez les régions d’entraînement au sein de chaque pile d’images et classe en puisant sur les régions représentatives, c’est-à-dire dessiner un tourbillon dans le sphéroïde et cliquer sur Ajouter au sphéroïde , répétez cela pour la zone d’invasion et l’arrière-plan jusqu’à ce que toutes les régions soient représentées dans chaque classe. Entraînez le classificateur en cliquant sur Classificateur de train. Des images supplémentaires peuvent être annotées pour entraîner davantage le classificateur à améliorer la précision si nécessaire.
- Une fois satisfait, sauvegardez le modèle de classificateur entraîné en utilisant un nom de fichier comme CellLine_Treatment_Classifier.model. Fermez la fenêtre de segmentation une fois terminée.
- Pour les nouvelles images utilisant ce classificateur sauvegardé, consultez Plugins > Segmentation > Trainable WEKA segmentation >Load Clasificifier> Open Saved Classifier CellLine_Treatment_Classifier (cela enregistre un fichier .model . Il est une exigence pour le Fichier Supplémentaire 2 d’avoir ce fichier préparé avant l’exécution du script. Lorsque le script est lancé, le fichier d’exemple approprié doit être sélectionné).
- Naviguer pour obtenir la probabilité sur l’interface de segmentation WEKA entraînable - Cela produit des cartes de probabilité pour chaque classe sélectionnée, c’est-à-dire Gliomasphère, Invasion/Migration, Arrière-plan, indiquant la probabilité que chaque valeur de pixel attribuée à l’image appartienne à la classe ou à la région spécifique de l’image. Cela générera un fichier de 3 images distinctes de cartes de probabilité (Gliomasphere, Invasion, Background) avec une plage dynamique de 32 bits pour chaque image.
- Sélectionnez la carte de probabilité correspondant à Invasion/Migration. Naviguez jusqu’à Image > Hyperstacks > réduire la dimensionnalité. Sélectionner Conserver la source.
- Désactivez les canaux mais gardez les images – cela réduit la carte à un seul canal au fil du temps – dans ce cas, la carte de probabilité d’invasion. Sélectionnez l’application de probabilité correspondant à la gliomasphère.
- Répétez les étapes 5.10-5.11. Il y aura désormais deux cartes de probabilité correspondant à l’image lumineuse en laps temporel transmise originale pour une scène de la migration et de la zone sphéroïde. Sauvegardez les deux avec la convention suivante de noms de fichiers : ImageName_Scene_Gliomasphere_ProbabilityMap et ImageName_Scene_Invasion_Probability Map dans un dossier correspondant à l’expérience sélectionnée, c’est-à-dire CellLine_Treatment.
- Définir un seuil pour créer un masque binaire : Aller dans Image > ajuster > Seuil. Choisissez une méthode seuil (par exemple, Yen, Otsu). Garde la méthode sélectionnée identique sur toutes les images traitées.
- Naviguez pour analyser > définir des mesures. Sélectionnez les mesures souhaitées ; Zone de coche, densité intégrée et moyenne puis appuyez sur Ok. Naviguer pour analyser > analyser les particules. Pour l’invasion/migration, taille de l’ensemble : 0 – infini ; circularité : 0,00 – 1,00. Pour les gliomasphères, taille de l’ensemble : typiquement, 1500 – Infini (ajuster selon la taille des sphéroïdes dans la lignée cellulaire/traitement – les sphères de contrôle vont naturellement grandir) ; circularité : 0,05 – 1,00. Sélectionnez des unités de pixels pour toutes.
- Naviguer pour Analyser>Analyser les pixels> Afficher : Sélectionner les masques. Après la génération des masques, vérifiez la zone segmentée d’intérêt sur toute la pile en accéléré afin d’assurer un suivi précis. Appliquer des opérations binaires via Process > Binary > ... (par exemple, sélectionner Remplissage des trous lors de l’affinage du masque sphéroïde), puis naviguer dans Analyser > Analyser les particules > Afficher > Ne rien sélectionner et sélectionner Résumé. Cela fournira une fenêtre de résumé des mesures sélectionnées.
- Enregistrez les résultats en cliquant sur Fichier > Enregistrer sous > Résultats. Sauvegarder en fichier .csv. Ouvrez-vous dans un tableur ou un autre logiciel d’analyse.
- Répétez le seuil et l’analyse des particules pour toutes les classes segmentées (par exemple, gliomasphères, invasion) afin d’extraire les mesures respectives au fil du temps. La .csv de sortie fournit de la surface (en pixels ou microns selon l’étalonnage) au fil du temps.
- Sélectionnez le canal de fluorescence représentant la coloration PI (par exemple, canal 2). Appliquez le seuil et l’analyse des particules comme ci-dessus pour identifier les cellules mortes. Utilisez le plugin Calculator Plus pour multiplier les masques de cellules PI-positives avec le masque de gliomasphère et séparément avec les masques d’invasion afin de quantifier les cellules mortes pour les régions spécifiques.
- Exportez les masques, cartes de probabilité et tables résumées sous forme de fichiers TIFF et CSV avec des noms de fichiers clairs et descriptifs pour la documentation et l’analyse en aval. Lors de l’utilisation du script fourni dans le supplément, on trouve la convention de nommage suivante : par exemple FileName_Scene#_(PI-)Invasion_Summary.csv (données pour les objets dans le temps), FileName_Scene#_(PI-)Invasion.zip (régions définies avec analyser des particules).
REMARQUE : Le fichier supplémentaire 1 générera des fichiers tif uniques avec des images en accéléré pour chaque scène. Le Fichier Supplémentaire 2 exécutera la classification des pixels WEKA basée sur un fichier modèle de classification prédéfini sur toutes les scènes et toutes les images de chaque timelapse, fournissant des cartes de probabilité pour la gliomasphère ainsi que pour les cellules envahissantes. Le Fichier Supplémentaire 3 segmentera toutes les images en gliomasphères et cellules envahissantes et quantifiera les zones couvertes ainsi que la partition des zones couvertes par les cellules mortes (PI-positives). Le fichier supplémentaire 4 à exécuter suppose une méthode de seuil spécifique et aussi une région spécifique à analyser, tandis que le fichier supplémentaire 3 permet à l’utilisateur de définir le seuil et d’ajuster la région pour chaque scène. Le seuil ne doit pas être modifié en méthodes différentes pour chaque scène, mais peut être défini pour différentes méthodes pour chaque objet.
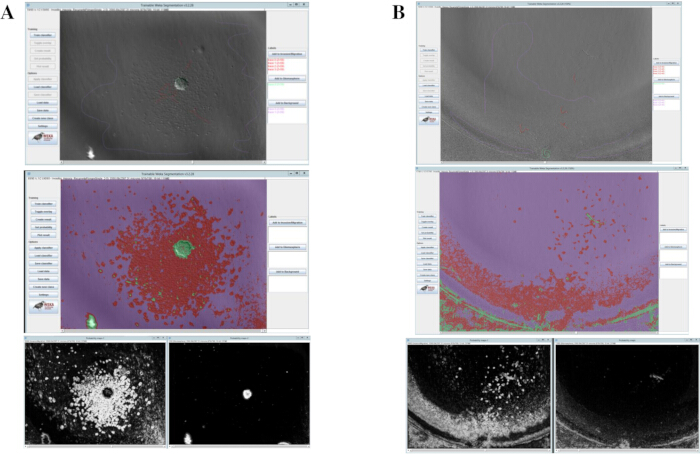
Figure 4 : Difficulté du traitement d’image reproductible dû à une mauvaise segmentation de la gliomasphère. Un pipeline de traitement d’image utilisant le plugin de segmentation WEKA entraînable sur Fidji montrant (A) la gliomasphère centralement localisée avec une plus grande segmentation de la zone de migration par rapport au fond versus la gliomasphère (B) localisée au bord entraîne une mauvaise segmentation de l’image et une réplication inutilisable. En assurant la cohérence dans la localisation de la gliomasphère, le traitement d’image entre les réplications biologiques apparaît comme montré dans (A), améliorant considérablement la reproductibilité et l’automatisation des essais. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
Résultats
À l’aide du test de migration 3D décrit dans des conditions hypoxiques, les gliomasphères issues de tumeurs récurrentes ont été traitées soit avec un véhicule, soit avec le Médicament X, et la dynamique d’invasion a été surveillée toutes les heures pendant 72 heures. La Figure 5 décrit l’analyse de segmentation WEKA de la dynamique d’invasion, révélant que le Médicament X réduit significativement le potentiel invasif des gliomasphères récurrentes par rapport aux témoins des véhicules dans des conditions hypoxiques cliniquement pertinentes.
Pour évaluer davantage l’impact du Médicament X sur les caractéristiques des cellules souches après la migration, les gliomasphères ont été fixées et immunocolorées pour l’expression et la localisation du marqueur cellulaire souche CD44 du glioblastome, comme montré à la Figure 6. Cette analyse multiplexée facilite la visualisation de la dynamique de migration et de l’expression des marqueurs des cellules souches, fournissant des informations sur la manière dont le Médicament X module à la fois le potentiel invasif et les propriétés tiges des modèles récurrents de glioblastome dans des conditions hypoxiques cliniquement pertinentes.
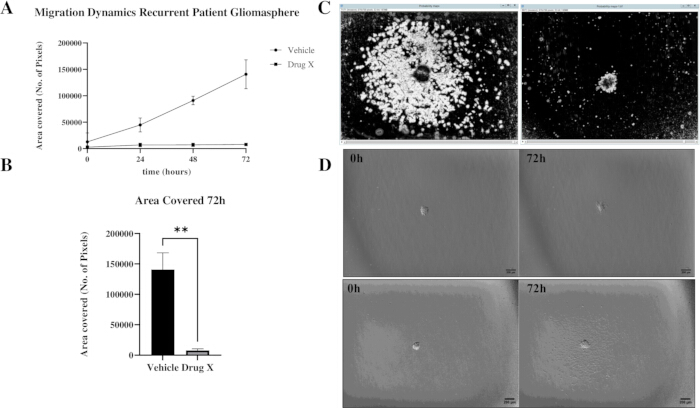
Figure 5 : Un test de migration optimisé met en lumière l’efficacité du nouveau médicament X pour prévenir la migration récurrente de la gliomasphère. Le patient a développé des gliomasphères récurrentes traitées avec un véhicule ou le médicament X pendant 72 heures dans des conditions hypoxiques. La dynamique d’invasion a été capturée toutes les h pendant 72 h. (A) Images lumineuses représentatives transmises de la dynamique d’invasion à 0 h et 72 h dans le panneau supérieur - Véhicule traité et panneau inférieur - Médicament X traité. (B) Cartes de probabilité représentatives de la zone d’invasion utilisées dans l’analyse de segmentation. (C) Les gliomasphères récurrentes traitées avec le médicament X présentaient un potentiel invasif nettement moins important que celles traitées par véhicule. La quantification de la zone invasive à 72 heures a révélé une diminution significative de l’invasion dans les gliomasphères traitées au Médicament X, représentée comme la surface totale couverte au moment de la fixation. Les données représentent la zone d’invasion dans le temps à partir de n=3 réplications indépendantes. La signification statistique a été évaluée à l’aide d’un test t non apparié ; p < 0,005 est indiqué par **. Veuillez cliquer ici pour voir une version agrandie de cette figurine.
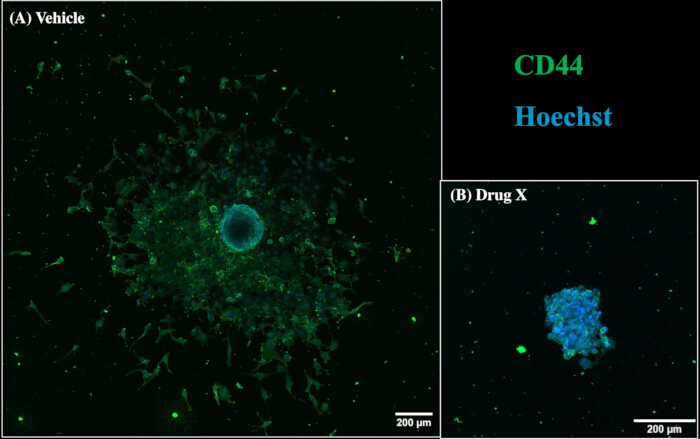
Figure 6 : Migration et expression des marqueurs des cellules souches après le traitement. Les gliomasphères décrites à la Figure 5 ont été fixées après migration et immunocolorées à l’aide d’un anticorps ciblant le marqueur des cellules souches du glioblastome, CD44, après traitement avec véhicule ou Drug X. Cette figure illustre le type d’analyse multiplexée post-migration qui peut être réalisée en utilisant des techniques standard d’immunocoloration. Les images montrent CD44-FITC (vert) et Hoechst (noyaux, bleu). Barre d’échelle = 200 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Fichier supplémentaire 1 : Réenregistrement des fichiers CZI multiscènes depuis le microscope en une seule scène sous forme de fichiers TIF.Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 2 : Génération de cartes de probabilité à l’aide d’un modèle Weka.Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 3 : Analyse de segmentation sans seuil. Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 4 : Analyse de segmentation avec seuil. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Modéliser la dynamique invasive de tumeurs très agressives telles que le glioblastome est essentiel pour améliorer notre compréhension des processus pathologiques et identifier des stratégies de traitement plus efficaces. La nature complexe, adaptative et plastique de la migration des cellules du glioblastome nécessite des modèles précliniques capables de capturer avec précision les comportements dynamiques des cellules gliomes individuelles lors de leur migration depuis la masse tumorale centrale. Il est important de modéliser ces processus à travers des échantillons issus de différents stades de la maladie permettant aux chercheurs de mieux relever le défi de l’hétérogénéité tumorale et d’identifier tout changement spécifique à un stade dans la dynamique de l’invasion.
Compte tenu de cette complexité, il est raisonnable de supposer que les modèles précliniques devraient posséder un niveau de sophistication équivalent. Ici, nous décrivons une méthode affinée pour générer des gliomasphères dérivées de patients de taille uniforme, co-cultivées avec des nanoparticules d’oxyde de fer. Cette approche permet une localisation contrôlée des gliomasphères au centre de chaque puits, permettant l’imagerie automatisée des cellules vivantes de la dynamique d’invasion. Plusieurs études ont mis en lumière une variabilité significative de la taille, de la forme et de la cinétique de croissance des sphéroïdes en utilisant des méthodes conventionnelles de culture 3D ; Sayde et ses collègues ont démontré que les sphéroïdes peuvent présenter une large répartition du diamètre entre ceux issus de populations de cellules souches cancéreuses non triées et triées, reflétant une variabilité inhérente à la formation dessphéroïdes 15,16. Cette hétérogénéité a également été identifiée comme une source majeure de problèmes de reproductibilité dans les tests de dépistage de drogues basés sur les sphéroïdes, soulignant ainsi l’importance de générer des populations sphéroïdeshomogènes 12. Ces résultats soulignent la nécessité de standardiser les conditions de formation des sphéroïdes avant de réaliser des analyses fonctionnelles, défis que cette méthode aborde directement. En standardisant à la fois la taille et la position des sphéroïdes, cette méthode améliore significativement la reproductibilité et minimise la variabilité généralement associée aux systèmes de culture cellulaire 3D, où la formation inégale des sphéroïdes peut affecter l’analyse en aval.
Lors du développement initial de cet essai, nous avons observé une variabilité importante dans la localisation des sphéroïdes entre les réplications, nécessitant l’utilisation d’un grand nombre de puits par expérience mais aussi de nombreuses réplications biologiques pour obtenir des résultats statistiquement significatifs. Cela augmentait non seulement considérablement la charge de travail, mais générait aussi une quantité significative de données inutilisables, réduisant l’efficacité et la reproductibilité des tests. La variabilité résultante reflétait donc la perte de données quantifiables plutôt que des différences dans le comportement d’invasion. En centralisant les gliomasphères dans chaque puits, la localisation magnétique garantit que les images de toutes les réplications peuvent être segmentées et analysées de manière cohérente, même lorsque des différences biologiques dans la dynamique d’invasion sont observées entre les échantillons.
L’incorporation de nanoparticules d’oxyde de fer introduit une force magnétique douce qui centralise systématiquement les gliomasphères sur tous les puits, améliorant considérablement les performances du pipeline de traitement d’images, du traitement des données et des analyses post-migration, sans affecter la biologie ou la viabilité de lagliomasphère 8. Un avantage clé de ce système est sa compatibilité avec l’analyse multiplexée post-migration ; par exemple, la figure 6 représente l’analyse de la visualisation du marqueur de cellules souches du glioblastome CD44, ce qui permet d’évaluer l’expression des cellules souches après migration et traitement entre échantillons de patients. Cette capacité met en lumière le potentiel de la plateforme pour des études intégratives reliant les phénotypes invasifs à des caractéristiques moléculaires, une considération importante compte tenu de la plasticité phénotypique des cellules souches du glioblastome en réponse aux signaux microenvironnementaux et de leur capacité à échapper au traitement, favorisant une récidive tumorale inévitable.
Bien que ce test améliore considérablement la reproductibilité de la visualisation de la dynamique d’invasion d’un seul sphéroïde, il subsiste certaines limites critiques à prendre en compte pour une optimisation future du test. Le matrigel est un modèle largement utilisé de membrane basale, cependant il s’agit d’un substitut complexe et indéfini de la matrice extracellulaire (ECM) dérivé des sarcomes murins, qui ne récapitule pas entièrement le microenvironnement cérébralhumain 17. L’optimisation future du test pourrait intégrer des modèles ECM spécifiques au cerveau pour mieux imiter le microenvironnement tumoral cérébral, ce que nous considérons comme une étape d’optimisation impérative des modèles d’invasion cérébrale invitro 18,19. Bien que Matrigel reste un modèle largement adopté de la MCE, il représente une matrice extracellulaire non spécifique au cerveau dérivée d’un sarcome murin. En tant que tel, il ne reproduit pas entièrement les propriétés biochimiques et mécaniques du microenvironnement du cerveau humain. Il est important de noter que la stratégie de localisation magnétique décrite ici est indépendante de la matrice et pourrait être facilement adaptée aux systèmes ECM spécifiques au cerveau dans de futures études afin d’accroître davantage sa pertinence physiologique.
D’autres considérations liées à l’essai concernent les exigences potentielles d’entraînement d’un nouveau modèle de segmentation WEKA pour chaque lignée cellulaire, en raison de l’hétérogénéité de l’échantillon et de la variabilité de la morphologie de l’invasion. De plus, la densité de mise en semencement et la concentration de nanoparticules doivent être optimisées pour chaque lignée cellulaire et type de sphéroïde afin de maintenir uniformité et viabilité avant d’effectuer des tests de migration à haut débit. Malgré ces limitations, cette plateforme offre un cadre évolutif et adaptable pour étudier l’invasion spécifique des glioblastomes et la réponse au traitement. Sa compatibilité avec l’imagerie cellulaire vivante, les pipelines automatisés de segmentation et l’analyse multiplexée post-essai ouvre des opportunités pour un criblage à haut contenu de nouveaux traitements, des thérapies combinées et des études mécanistes d’invasion à partir d’échantillons hautement hétérogènes de tumeurs de patients. De plus, étendre ce test aux systèmes de coculture, tels que les cellules cérébrales résidentes telles que les astrocytes, les neurones et la microglie, ou les modèles d’interactions hémato-encéphalique de la barrière, permet d’obtenir des informations supplémentaires sur les interactions tumeur-stroma qui favorisent la progression et la récidive du glioblastome.
Plusieurs étapes techniques ont été identifiées lors du développement du test comme déterminants critiques de la reproductibilité et de la performance globale du test. La standardisation de la densité de semis des lignées cellulaires avant l’essai garantit la cohérence initiale de la gliomasphère, ce qui permet de comparer la dynamique de croissance des sphéroïdes entre les lignées cellulaires, traitements et conditions. Sans cette étape de standardisation, les tailles initiales des sphéroïdes ajouteront un niveau significatif de variabilité, qui pourrait alors refléter les réponses variables des gliomaspheres aux conditions expérimentales. La localisation centrale précise des gliomasphères dans chaque puits est une exigence clé pour une acquisition d’images automatisée précise et une segmentation en aval. Des sphéroïdes décentrés entraînaient un bruit d’imagerie important et empêchaient l’utilisation de la segmentation WEKA comme moyen de segmenter les images en régions clairement définies. En s’assurant que toutes les gliomasphères sont localisées au centre, le même classificateur WEKA peut être utilisé plusieurs fois, car le bruit est considérablement réduit et la qualité d’image s’améliore considérablement. Une représentation de cela est présentée à la Figure 1. L’incorporation de nanoparticules magnétiques d’oxyde de fer est donc une méthode permettant d’assurer la localisation centrale des gliomasphères, de minimiser la variabilité positionnelle et d’améliorer substantiellement le traitement et la comparabilité de l’image entre les réplications. Enfin, l’entraînement au modèle de segmentation au sein du pipeline WEKA représente une étape critique supplémentaire de standardisation. En raison de l’hétérogénéité inter-patients et des différences dans la morphologie de l’invasion, un modèle de segmentation unique peut ne pas se généraliser à tous les échantillons. Le réentraînement ou le raffinement des paramètres de classification pour chaque lignée cellulaire garantit des cartes de probabilité précises des zones invasives et évite les erreurs de quantification.
Dans l’ensemble, ce test offre une plateforme reproductible et évolutive pour étudier en temps réel les comportements dynamiques invasifs des échantillons de gliome dérivés des patients. Sa compatibilité avec l’imagerie multiplexée et les analyses moléculaires en aval en fait un outil puissant et polyvalent pour la recherche sur le gliome de base et translationnelle, ce qui renforcera considérablement la pertinence translationnelle des modèles précliniques de glioblastome.
Déclarations de divulgation
Rien à divulguer
Remerciements
Ce travail a été soutenu par Research Ireland (Science Foundation Ireland) sous le code de subvention 20391A01 et le Health Research Board sous le code ERA-TRANSCAN-2022-002. Des cellules ont été généreusement fournies par nos collaborateurs du Dirks Lab, SickKids à Toronto et du Erasmus Medical Center (EMC) de Rotterdam.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| KIT DE BIOIMPRESSION À 96 PUITS, TRANSPARENT | Greiner | 655840 | |
| Accutase | Invitrogen | 00-4555-56 | N/D |
| Supplément B-27 (50X), sérum ; Gratuit sans vitamine A | Gibco | 12587010 | 10% |
| Facteur de croissance des fibroblastes de base, humain & nbsp ; (bFGF) | PeproTech | 100-18B | 20 ; ng/ml |
| Celldiscoverer ; 7 | Zeiss | - | |
| Microplaques sphéroïdes de Corning | Corning | CLS4515 | |
| Matrice de Matrigel de Corning | Corning | 354234 | dilution finale 1:100 |
| Compteur automatisé de cellules Countess | Invitrogen | - | |
| DMEM-F12 ; (500 ml) | Thermofischer | 11320-074 | N/D |
| Facteur de croissance épidermique humain (EGF) | PeproTech | AF-100-15 | 20 ; ng/ml |
| FITC Souris Anti-Humain CD44 | BD Pharmingen | 555478 | 1:100 |
| Microplaques de culture cellulaire en polystyrène à 96 puits Greiner CELLSTAR avec fond en F/puits de cheminée, et micro ; Claire, noire, TC, stérile, avec couvercle | Greiner | 655090 | |
| Héparine | Thermofischer | A16198 | 5µ ; G/ml |
| Hoechst 33258 | ; Sigma Aldrich (Merck) | 861405 | 1 & micro ; G/ml |
| NanoShuttle-PL | Greiner | 657841 | 1,5 ; & micro ; 1/10 000 cellules |
| Pénicilline - Streptomycine | Merck | P4333 | 1% |
Références
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
Réimpressions et autorisations
