Somitogenesis הוא תהליך התפתחותי קצבי שמרחבית דפוסי ציר הגוף של עוברי החולייתנים. בעבר, פיתחנו קווי דג הזברה מהונדסים המשתמשים בכתבי ניאון להתבונן גנים מחזוריים המניע את התהליך הזה. כאן, אנו תרבות מפוזרת תאים משורות אלה ותמונת התנודות שלהם לאורך זמן במבחנה.
מאמר שיטה
דור של תרביות תאים המפוזרים Presomitic המזודרם להדמיה של דג הזברה פילוח השעון בתאים בודדים
במאמר זה
סיכום
תקציר
פילוח הוא תהליך morphogenetic תקופתי ורציף בבעלי חוליות. היווצרות קצבית זה של בלוקים של רקמה הנקראים somites לאורך ציר הגוף היא עדות למתנד גנטי דפוסי העובר המתפתח. בדג הזברה, פילוח שעון תאיים נהיגה מורכב מבני המשפחה גורם שעתוקה / הס מאורגנים בלולאות משוב שליליות. יש לנו לאחרונה שנוצרו קווי כתב ניאון מהונדסים לher1 הגן המחזורי כי לשחזר את דפוס המרחב ובזמן של תנודות בהמזודרם presomitic (PSM). שימוש בקווים אלה, פיתחנו מערכת תרבות במבחנה המאפשרת ניתוח של תנודות שעון פילוח בזמן אמת בתוך תאים בודדים, מבודדים PSM. על ידי הסרת רקמת PSM מעוברים מהונדסים ולאחר מכן פיזור תאים מנדנוד אזורים על גבי זכוכית תחתונה מנות, אנחנו שנוצרנו תרבויות מתאימות לזמן לשגות הדמיה של אות הקרינה מןתאי שעון בודדים. גישה זו מספקת מסגרת רעיונית ואת ניסיון המניפולציה ישירה של שעון הפילוח עם רזולוציה תא בודד חסרת תקדים, המאפשרת תכונות התאים אוטונומיים ורמת הרקמה שלה כדי להיות מכובדים וגזורות.
מבוא
היווצרות התקופתית של מגזרים לאורך ציר חוליות גוף, או somitogenesis, היא עדות למתנד מרחב ובזמן בעובר המתפתח. המנגנון המועדף השליטה somitogenesis מתואר מושגית על ידי מודל "שעון וחזית גל" 1, שבו "השעון" בהיקף של מתנדים סלולריים, עכשיו חשב להיות מונע intracellularly ידי הביטוי הקצבי של סט של גנים מחזוריים 2, מתקתק את היווצרות של somites מהמזודרם presomitic (PSM). כעובר מתפתח, "חזית גל" התבגרות בPSM נעה בתיאום עם רקמת רגרסיה לכיוון האחורי, להאט ולעצור מתנדים סלולריים כשהוא עובר 3. יחד, מערכת spatiotemporally הדינמית הזה נקראת שעון הפילוח. גישות הנוכחיות כדי ללמוד את תוחלת שעון פילוח שלוש רמות גוברת של ארגון ממתנד הגנטי בתאים בודדים לה צימוד המקומיתבמתרחש בין תאים ולבסוף לרגולציה הגלובלית של מידע positional ברקמת PSM הקיבוצית 4.
מחקרים קודמים מצביעים על מתנד פילוח התאים אוטונומיים בדג זברה מורכב של גנים ומוצרי חלבון משעתוקה / הס factorfamily, אשר נחשבים ליצירת לולאת משוב שלילית באמצעות דיכוי תעתיק 5-7. מסלול איתות דלתא / Notch מסנכרן תנודות בין תאים השכנים ומסדיר את התקופה הקולקטיבית של האוכלוסייה 8-10. מולקולות FGF איתות מיוצרות בtailbud מופיעות לבנות שיפוע פני PSM דג הזברה, וכך שיערו לתרום להאטה ועצר את תאי נדנוד בקדמי 11. עד עכשיו, את התפקידים תפקודיים של כל אחת מהמולקולות האלה בsomitogenesis נחקרו על ידי מוטציה גנטית, הזרקת morpholino, חום הלם, וגיד יריב תרופה על ביטויtment של רכיבי שעון ואיתות בין תאי 5,7,10,12. שימוש בהפרעות אלה, פונקצית שעון פילוח כבר להסיק מתיאורים ברמת רקמה של פגמים somite והאובדן של תנודות אחידות בביטוי של גנים מחזוריים כמו her1, her7, ודלתא ג עם זאת, כמעט כל הנתונים האלה הם מעוברים קבועים ומצליחין ללכוד במדויק את שינויים שנובעים מעצם התפקוד הדינמי של שעון הפילוח. לאחרונה, זמן לשגות הדמיה מרובה עובר חשפה את מוטציות הראשונות עם תקופת מתנד השתנתה, אך תצפיות אלה נעשו גם ב7,13 רמת רקמות. לפיכך, התנהגות של מתנד התאים אוטונומיים שיערו במהלך somitogenesis לא נצפתה.
תמונות סטטיות של somitogenesis נותנים תמונה חלקית כי, מטבעו, התהליך הוא מונע על ידי מערכת תנודתית. העבודה קודמת בתאי עכבר והחומוס הראתה כי רמות של תמלילועליית חלבון ונפילה, אבל דגימת תנודה כ 2 שעות בכל דקות 30 או 45 בהכרח מגביל את הנתונים שנאספו, ולכן מסקנות שניתן להסיק 14,15. מחקר של מתנדים ביולוגיים אחרים, בעיקר, שעונים ביולוגיים, התרחק ממדידות מבוימות של גנים וביטוי חלבונים לניטור בזמן אמת באמצעות ניאון וכתבי bioluminescent 16,17. כלים אלה הם חיוניים להוכחת תכונות שעון של תאים בודדים 18. כתב bioluminescent של הגן המחזורי Hes1 פותח ובקצרה מאופיין בתאי PSM עכבר אחת 19. תקופה והשונות הממוצעת חושבו עבור מספר קטן של תאים, מראים כי תנודות להימשך מספר מחזורים במבחנה. עם זאת, מחקרים אלו לא כמותית להתייחס ליציבות והחוסן של תדר מתנד ומשרעת, אם תאים באופן ספונטני יכולים להיכנס או תנודות יציאה,וכיצד התאים לשמור על היחסים בשלב שלהם. בנוסף, ההשפעות של מולקולות איתות שנמצאו בעובר על שעון התאים אוטונומיים לא נבדקו באופן ישיר. כתוצאה מכך, מאפייני יסוד אלה של מתנד התא הבודד אינם ידועים לחלוטין.
יש לנו לאחרונה פיתחו קווי דג מהונדסים באמצעות recombineering BAC 20 לנהוג כתבי הקרינה ונוס (YFP) ביטוי her1 30. קווים כאלה לנצל את רמזי הרגולציה של הלוקוס כרומוזומליות השלמה שבו הם משובצים, ולשחזר את הדינמיקה הזמנית ודפוס המרחבי של her1. פריצת דרך זו מאפשרת ניטור בזמן אמת של ביטוי גנים בעובר דג הזברה מתפתח בגוף חי. כדי לחקור את התכונות הבסיסיות של תנודות תאים אוטונומיים וכיצד ביטוי כגון מוסדר לאורך זמן, לאחרונה פיתחו שיטה אמינה לבודד ולהקליט מתאי PSM במבחנה. פרוטו זהcol מתאר כיצד יש לנו מנוצלים קווי הכתב המהונדס שלנו כדי ליצור תרביות תאים מפוזרות, שממנו אנחנו יכולים לאפיין את התנודות של שעון פילוח דג הזברה בתאים בודדים. אנחנו יכולים להתמודד עם שאלות ובכך מצטיינים בתחום שלא היו נגישים לניתוח סטטי או ברמת רקמה, כמו גם ישירות לתפעל את שעון הפילוח ברמת התא הבודד עם מולקולות ומעכבי איתות.
פרוטוקול
1. לפני Dissection
- ביום שלפני לנתיחה, לקבל עוברים מincross של זוגות דג הזברה הטרוזיגוטיים עבור האלל המהונדס.
- להעלות את העוברים במדיום E3 ללא מתילן כחול ב28 C o עד שלב מגן (6 שעות לאחר הפריה).
- העברה עובר במדיום E3 ללא מתילן כחול ל20 o CO / נ ב20 C o, עוברים יהוו somite 1 לכל שעה ברגע שהם מגיעים לשלב tailbud. אחרי 17-20 O שעה / N ב20 o C, עוברים צריכים להיות ב5 עד 8 somite לביים למחרת בבוקר בתחילת הפרוטוקול לנתיחה.
- להרכיב כלים וחומרים כימיים נחוצים לנתיחה.
- פיפטה זכוכית אש המלוטשת להעברת עוברים ורקמות
- זוג מלקחיים בסדר להסרת chorions מעוברים
- מנה מצופה Sylgard 35 מ"מ לנתיחה - יוצקים פולימר Sylgard לתוך צלחת 35 מ"מ ולרפא O / N ב° C. 37 הפוך לנתיחה גם באמצעותקצה מחט כדי להסיר נפח קטן של פולימר נרפא. המנה ניתן לנקות ולאחר מכן לעשות שימוש חוזר.
- חידדו, כלי חוט טונגסטן שיטחו למניפולציה רקמת PSM
- מיקרו אזמל לחיתוך חתיכות של PSM רצויים לתרבות
- צלחת פלסטיק 35 מ"מ לדגירת טריפסין
- מדיום L15 מכיל 10% בסרום שור עוברי
- 0.25% פתרון טריפסין / EDTA
- טיפים ג'ל טעינת Sigmacoted לפיזור
- צלחות פטרי פלסטיק המכילות בינוני E3 ללא מתילן כחול.
- כסה צלחת הדמיה זכוכית תחתונה עם מצע Fibronectin1 (10 מיליליטר מיקרוגרם / PBS). עזוב את הצלחת על ספסל למעייל במהלך לנתיחה.
- השתמש stereoscope עם מסנני הקרינה מתאימים כדי לזהות ועוברי סוג חיוביים מהונדסים (שלב 5 עד 8 somite).
- לזהות עוברים מהונדסים על ידי בחינת המזודרם presomitic (PSM) לביטוי YFP תחת ערוץ פלואורסצנטי (איור 1 א). sho הקרינהULD להיות גלוי באזור מsomite נוצרה האחרונה לtailbud. בחר עובר עם אות הבהירה; 25% מצאצאים צריכים להיות עוברים הומוזיגוטים נושאים 2 עותקים של transgene. מספר העוברים שזוהו צורך משתנה על בסיס הניסוי. חתיכת tailbud גזור אחד תניב 1,000 תאים, בממוצע. בדרך כלל, כמה עוברים חיוביים נוספים הם שימושיים במקרה שגיאות שנעשו במהלך הנתיחה.
- משתמש באור להעברה כהתייחסות positional להבחין כל autofluorescence, במיוחד בתא החלמון, מאות.
- העבר את העוברים חיוביים לצלחת פטרי פלסטיק נפרדת המכילה בינוני E3 ללא מתילן כחול.
2. PSM Dissection ופיזור
- הכן את העוברים לנתיחה.
- תחת מיקרוסקופ לנתיחה, באמצעות מלקחיים בסדר, להסיר בזהירות את סיסית מכל עובר במדיום E3. הקפד שלא לפגוע בעובר או לשבש את תא החלמון.
- מלא Sylgard מצופה צלחת לנתח עם מדיום L15 עם סרום. בעזרת מלקחיים או עוד כלי שטוח, להסיר כל בועות אוויר מפני שטח של Sylgard.
- העבר את עוברי dechorionated באמצעות פיפטה אש הזכוכית מלוטשת לצלחת לנתיחה.
- שימוש בכלי התיל, להעביר את כל העוברים בצד אחד של הצלחת לנתח.
- לנתח PSM מעובר אחד.
- אוריינט עובר יחיד בצד לרוחב שלה בקטן עשויים היטב בשכבת Sylgard בתוך הצלחת לנתח (איור 1).
- שימוש במייקרו האזמל, פרוסה דרך את העובר ותא חלמון רק קדמי למוח האחורי ודרך קוטב הגחון של העובר (איור 1 ב, מנוקד קו אדום).
- הסר את פיסה הקדמית של העובר מהבאר, שיזיז אותו משם לצד השני של הצלחת, ולאחר מכן להשתמש בכלי התיל כדי לגרד ממנו גרגרי תא חלמון שנותרו מהמדור האחורי כולל PSM.
- ברגע שהחלמון כבר גרד משם, לשטח ולהתמצא PSM עם הקצה הקדמי פונה אל הנסיין ואחורי והצביע לעבר הנסיין (תרשים 1C).
- אם השכבה דקה של האאקטודרם לא הוריד בנקודה זו, השתמש בכלי התיל כדי לקלף אותו מהחלק העליון של רקמת PSM.
- שימוש במייקרו האזמל לחתוך tailbud, הקצה האחורי ביותר של PSM עבר סוף notochord, הרחק משאר הרקמות (איור 1 ג, מנוקד קו אדום). הערה: חלקים אחרים של רקמה מPSM, לדוגמא PSM הקדמי קרוב יותר לsomite נוצרה האחרונה, יכול גם לקחת בתרבות, בהתאם לשאלת הניסוי.
- הזז את פיסת tailbud לפינה אחת של הצלחת הרחק מהאזור לנתח. השתמש בכלי התיל כדי לנקות את כל פסולת ורקמות עובר לא רצויות מהתחום לנתח.
- חזור עם העובר הבא.
- חתיכות tailbud בריכה מדואר מרובהmbryos, תלוי כמה תאים יידרש לצורך הניסוי. בממוצע, פיסת רקמת tailbud אחת תשואות 1,000 תאים.
- מלא צלחת פלסטיק 35 מ"מ ריק עם נפח קטן של טריפסין-EDTA.
- באמצעות פיפטה אש הזכוכית מלוטשת, להעביר פיסות tailbud מצלחת לנתח לצלחת המכילה טריפסין / EDTA. דגירה חתיכות tailbud בטריפסין / EDTA עבור 20 דקות ב RT.
- בעוד הרקמות מתבצעות מודגרות בטריפסין, להסיר את פתרון Fibronectin1 מצלחת ההדמיה עם רצפת הזכוכית.
- שטוף את הפתרון מזכוכית 3 פעמים עם מים MilliQ. השתמש ביניקה כדי להסיר כל שטיפה ולהבטיח את הצלחת יבשה לחלוטין.
- לפזר חתיכות tailbud במדיום להדמיה.
- פיפטה של מדיום L15 100 μl עם סרום לתוך צלחת הדמיה.
- באמצעות קצה הג'ל מצופה, להסיר את חתיכות tailbud מטריפסין / EDTA בקטן כמו נפח ככל האפשר.
- פיפטה חתיכות tailbud לתוך המדיום בצלחת הדמיה. פיפטה החתיכות מעלה ומטה מספר פעמים כדי לפרק אותם ולהשעות את התאים במדיום. היזהר שלא להכניס בועות אוויר. הגעה לגושי תא מתחת למיקרוסקופ ולפזר יותר לפי צורך.
- אפשר תאים מפוזרים בהשעיה להתיישב על משטח הזכוכית המצופה Fibronectin1 ל20 דקות ב RT.
- הוספת נפח קטן של מדיום L15 נוסף עם סרום לתאים לפני תחילת הדמיה. השתמש טיפול לא לשבש תאים מיושב.
- בהתחשב בשאלה הניסיונית, להוסיף כל משלים או טיפולים תרופתיים לתרבות.
3. הדמיה של תאים המפוזרים PSM
- הגדרת מנה הדמיה בתא טמפרטורה על המיקרוסקופ ההדמיה הזמן לשגות. הגדרת תא וורנר לטמפרטורה רצויה לצורך הניסוי. לאפשר מנה לאזן לפחות 30 דקות לפני תחילת רכישת תמונה. טמפרטורה להצליב עדויות עם בדיקה טמפרטורה חיצונית ממוקמת לתוך צלחת, אם נדרש. הערה: בשלהקשר בין הטמפרטורה וקצב somitogenesis 21 בקרת טמפרטורה יציבה הוא חיוני למדידות מדויקות של התקופה בתאי PSM אחת.
- לרכוש תמונות בדיקה בערוץ הקרינה כדי לבדוק שזמן החשיפה ורווח לספק טווח דינמי גדול של עוצמות ללא הרוויה כדי להבטיח איתות טובה לרמות רעש. תמונת הקרינה אופיינית שנרכשה מהתאים מפוזרים שנוצרו מהקווים שלנו תוך שימוש בפרוטוקול זה דורשת 400 אלפיות שני ו40 אלפית שני לתמונת אור המועבר עם מצלמה EMCCD הפועלת ברווח EM 85. בנוסף, רווח לפני מגבר ומהירות קריאת נתונים מצלמה גם הן חיונית על מנת למקסם את האות על רעש.
- באמצעות ערוץ האור המסור, לבחור שדות של תאים לרכישת הזמן לשגות.
- הפעל פרוטוקול רכישת הזמן לשגות לאורך רצוי של זמן.
- תרכוש אור אחד משודר ותמונת הקרינה אחד לכל תחום. הערה: הגדרת מרווח זמן בין ro הרכישהunds כי תהיה ללכוד את הדינמיקה זמנית ללא צילום הלבנה פני הדמיה מורחבת או רעילות וישכנע בתאים. פרוטוקול זה משתמש מרווח 2 דקות.
- בדוק הגדרת הזמן לשגות מדי פעם במהלך הקלטה כדי להבטיח שתאים נשארים בפוקוס, אין שגיאות בתוכנה או בחומרה, וכו '
4. עיבוד תמונה של הזמן לשגות סרטים הנרכשים
- פתח קובץ סרט לשדה שנרכש בתוכנת עיבוד תמונה. הערה: פיג'י שימשה לכל העיבוד בפרוטוקול זה.
- פיצול מועבר מסגרות אור וקרינה משדה אחד ליצירה 2 ערימות של תמונות.
- עקוב אחר תא בודד בערוץ האור המועבר.
- הנח את ההחזר על ההשקעה עגולה (אזור של עניין) מסביב לתא שנבחר במסגרת הראשונה בערוץ האור המועבר. הערה:.. רק תאים ש1 בריא בסוף ההקלטה, 2 לא זזים מחוץ לתחום, ו3 לא באים במגע עם הספירה אחרת.LLS מתבצע מעקב.
- להציל את ההחזר על ההשקעה בכל כמה מסגרות למנהל את ההחזר על ההשקעה. עקוב אחר תא עד הפריים האחרון.
- מודד את עוצמת באמצעות ROIs הצילה בערוץ פלואורסצנטי.
- בחר את מחסנית הקרינה ועם ROIs הצילה, השתמש במעגל המותאם אישית משרבב התוספת ומאקרו כדי למדוד את עוצמתו של התא במעקב לאורך זמן.
- בדקו את עקבות הפלט מהמאקרו. אם שמץ איכותי לוכד תכונות של הזמן לשגות הקרינה, לייצא את הערכים לגיליון העבודה של Excel.
- שמור את רשימת ההחזר על ההשקעה עבור התא.
- חזור על מעקב בערוץ משודר ומדידה בערוץ הקרינה לתאים אחרים בתחום.
- חזור על כל הצעדים לתחומים נוספים מהניסוי.
תוצאות
פרוטוקול זה מייצר תרביות של תאי קיימא, מפוזרים, אחת PSM לזמן לשגות הדמיה של אות הקרינה (איור 2). transgene יוצר כתב מחזורו של ייצור והשפלה מתרחש עם דינמיקה דומה לגני אנדוגניים והחלבון בעובר, בסדר הגודל של חצי שעה. בשל התחלופה מהירה שלה, אות YFP בתאים בודדים צריכה להיות מזוהה במהירות כדי למזער הלבנת ועם רזולוציה גבוהה זמנית כדי ללכוד את תכונותיו של כל מחזור תנודתית. כמו כן, בהתחשב באפלולית היחסית של האות, תנאי תרבות והרכישה היו מכוון בקפידה כדי להבטיח תוצאות רגישות וחזקה. אנחנו צריכים למצוא את הגורמים הבאים להיות חשובים ביצירת תרביות תאי PSM אופטימליות להדמיה: 1. מצע ECM משמש לציפוי מנות תרבות הזכוכית התחתונה. 2. תוספת של סרום לנתיחה ובינוני הדמיה. 3. Dissection של PSM מעוברים מזוהים שנלקחו לאחר hete ההזדווגותזוגות rozygous, צאצאיו פוטנציאל לשאת 2 עותקים של transgene. 4. רכישת תמונה בטווח הגדלה אופטימלי, באמצעות מטרת NA גבוהה יותר כדי להבטיח לכידה יעילה של אותות הקרינה. 5. תאורה עם מקור אור מצב מוצק כדי למזער את התנודות בעוצמה שיכול לתרום לרעשי רקע. 6. גילוי אותות עם מצלמה EM-CCD רגיש מאוד למקסם את תצוגת אותות.
תרבויות תת אופטימליות יכילו תאים שלא נשארים מעוגל ובריא לאורך כל ההקלטה. חוקרים שערנו כי מצע ECM שלנו, שבר של fibronectin1 דג הזברה שומר תאים במדינה כמו PSM מובחן, בהשוואה למצעים נפוצים אחרים כמו פולי-ליזין או laminin. מצעים אחרים שבדקנו שנגרמו לתאים לשטח על הזכוכית ואובדן אות ניאון נדנוד במהלך ההקלטה. כמו כן מצאנו כי התוספת של סרום למדיום במהלך נתיחה, פיזור,וההקלטה לא הייתה חשובה רק כדי להרוות את טריפסין משמש לניתוק, אלא גם הגדילה את עוצמת הקרינה על פני רקע, ככל הנראה בשל כדאיות תא משופרות. כדי להבטיח לכידת אות אופטימלית מהתאים בודדים היינו מטרת 40X שתוכננה במיוחד דימות פלואורסצנטי (סדרת NeoFluor תכנית Zeiss) עבור עם NA גבוה. מצאנו גם כי מקור אור מצב מוצק סיפק תאורה יציבה יותר ממנורות כספית מסורתיות, שהוא קריטי כדי למזער את תנודות רקע שתורמים לתמונות רועשות. שינויים אלה חשובים כדי להבטיח תוצאות חזקות.
שימוש בפרוטוקול זה אנו מצפים תרבויות שברוב התאים בתחום מסוים הם פלורסנט בשלב כלשהו במהלך ההקלטה. אנו מוצאים כי תאי ניאון בדרך כלל נשארים מעוגלים ולעתים די ניעתי במהלך הקלטות. כמה תאים, כוללים תאי ניאון, עלולים להפוך אפופטוטיים במהלך ההקלטה. תאים אלה אינם נכללים בשוםnalysis. גם אנו לא כוללים תאים שבאים במגע עם תאים אחרים או להעביר מחוץ לשדה הראייה. בממוצע, אנו רואים ירידת 12% בתא מספר לכל שדה עד סוף הקלטת שעות 10 כפי שהיא נמדדת על ידי ספירת מספר התאים בריאים בערוץ האור המועבר. הפסד זה כולל גם מוות של תאים ותאים שעברו מחוץ לתחום. בהתחשב באזהרות הללו אנו יכולים, בממוצע, במסלול 5 תאים ניאון לשדה שנשארים קיימא ונראה לעין, ובדרך כלל להקליט 6 שדות לכל מצב. לדוגמא, ניסוי עם 4 תנאים יהיה 24 שדות הכולל שנרכשו ובדרך כלל כ 30 תאים במעקב לכל מצב. בתנאי הדמיה סטנדרטיים עם מדיום L15 מכיל 10% בסרום שור עוברי, אנו מוצאים כי תאי PSM (n = 101 תאים מ4 משכפל ניסיוני) יכולים לייצר בין 2 ל -7 פסגות, עם הממוצע וסטיית תקן של 3 ± 1 פסגות (2 מחזורים -3). חציון מספר השיא, כמו גם את אחוזון 25%, הוא 2 פסגות ואני אחוזון 75%זה 3 פסגות. באמצעות המעקב והניתוח חצי אוטומטיים שלנו, אנחנו יכולים ליצור במהירות עוצמת הקרינה על עקבות זמן לתאי PSM בודדים, עם עקבות תא נציג שמוצגים באיור 2 ג. עקבות גלם אלה לאחר מכן ניתן להשתמש כדי לבצע מדידות כמותיות של מאפיינים של תאי PSM נדנוד, כגון תדירות, משרעת, מספר המחזורים, ועיתוי של פסגות.
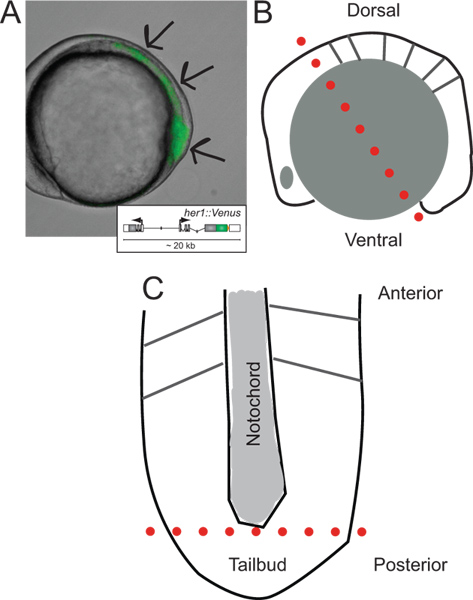
איור 1. זיהוי של עוברים ושרטוטים מהונדסים של הנתיחה שלהם. () תצוגה לרוחב של עובר דג הזברה מהונדס מבטא הקרינה YFP בשלב 5-somite ~. תמונה היא כיסוי של אור מועבר וערוץ פלואורסצנטי. חצים מצביעים על אזורים של אות מתחילים בקצה של tailbud, לאורך PSM, לקראת l AST נוצר somite. הבלעה מראה סכמטי של transgene הכתב (למידע נוסף על הפיתוח שלה ובהתנהגות vivo מתייחס לSoroldoni et al. 30. (B) סכמטי של תצוגה לרוחב של עובר לפני לחתוך ראשון במהלך לנתיחה. קו אדום מקווקו מציין את החתך הראשון עשה מעבר למוח האחורי, אם כי תא החלמון ממש מאחורי tailbud בתצוגה סכמטית. (C) של PSM השטוח לאחר פינוי גרגרי חלמון ושכבת האפידרמיס, שכיוונה לאורך הציר הקדמי, אחורי שלה. קו אדום מקווקו מציין את החתך השני כדי להסיר את הקצה של tailbud לפיזור ותרבות. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
07fig2.jpg "/>
איור 2. נציג תמונות ועקבות מתא בודד בתרבות PSM התפזרה. () מונטאז' של תמונות משודרות אור תא PSM בודד בהקלטת הזמן לשגות 6 שעות. שים לב שהתא נשאר מעוגל ובריא לאורך כל מהלך ההקלטה. (ב ') מקבילים מונטאז' של תמונות הקרינה מסלולרית PSM אחת. פסגות בעוצמה של התא ממוספרות במהלך ההקלטה. (ג) בעצימות ממוצעת לאורך הזמן נמדדו מהחזר על השקעה שהונחה על תא זה. ערכי לקוחים מכל מסגרת מסרט עם קצב פריימים של אחד לכל 2 דקות באמצעות משרבב עיגול התוספת ומאקרו המותאם אישית נכתב בפיג'י. פסגות בעוצמת ממוספרות שוב לאורך כל העקבות. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
דיון
ללמוד תהליך תאי המתרחש במהלך התפתחות עוברית, ביולוגים בדרך כלל לנצל את הגישה בהקשר של כל העובר. עם זאת, כדי להבין איך תא בודד מתנהג בתוך מסגרת זמן התפתחותי, שיטה לבחינה ולהפריע תאים בודדים בבידוד היא גם מאוד מועילה. על ידי יצירת תרביות תאי PSM פוזרו באמצעות עוברי דג הזברה מהונדסים עכשיו יש לנו כלי ללמוד ישירות את האופי האוטונומי התא של תנודות גנטיות בשעון פילוח בצורה כמותית. אפשר למדוד את הדינמיקה של התנודות בכתב הניאון שלנו במאות תאים תחת מגוון רחב של תנאים.
התקופה נצפתה של תאים בודדים בתרבות היא ארוכה יותר מתקופת somitogenesis בעובר ללא פגע. אנו צופים כי explant PSM ללא פגע בתרבות גם תערוכות תנודות איטיות יותר מהעובר ללא פגע (מידע לא מוצג), המצביעות על thaלא תקופה ארוכה יותר שנצפתה בתאים מבודדים היא לא רק בשל נזק מפיזור. תקופה ומשרעת משתנה הוא ציין ברוב סדרת הזמן מהתא הבודד שלנו. המקור של השתנות זו אינה ידוע, אך צריך לחשוף פרטים חשובים על מעגלי קבלת קצב של שעון הפילוח.
בשיטה זו אנו יכולים ללמוד את המרכיבים הגנטיים של פילוח ברמה התאית, ושאלות כתובת שמאתגרים לבחון בכל העובר. לדוגמא, על ידי תוספת מבוקרת של מולקולות איתות ידועות שנמצאו בעובר המתפתח לתרבויות שלנו, אנו יכולים לבחון את ההשפעות שלהם על מתנד הסלולרי PSM הבודד בassay חזק והשחזור. מערכת תרבות PSM שלנו פותחת את הדלת להערכה קפדני של מה הגורם, לבד, או בשילוב לקדם את התנודות בתאים אלה, מה גורמים מעכבות תנודות אלה, ולבחון את יחסי הגומלין בין מולקולות כאלה. בעזרת כלים אלה ביד, אנו שואפיםלהעריך מודלים קיימים של somitogenesis המבוססים על נתונים שפורסמו ברמת רקמה, כמו גם תוצאות שימוש בתאים בודדים ליצירת חיזויים שניתן לבדוק בכל העובר.
למיטב ידיעתנו, זהו פרוטוקול תרבית תאים עיקרי דג הזברה הראשון להקלטת הזמן לשגות אקוטית של הקרינה בתאים בודדים; פיתוח וחידוד נוסף של פרוטוקול זה הוא ללא ספק אפשרי. פרוטוקולים אחרים לעתים קרובות להשתמש בעוברי דג הזברה כדי להפיק שורות תאי יציבות שניתן transfected עם כתבים ומשמשים להדמיה לטווח ארוך 27-29. בעוד קווים יציבים שימושיים להדמית תהליך שאינו קשור לעיתוי פיתוח, כגון שעון הביולוגי, השאלה של פילוח עוברי מחייבת הדמיה מיידית בזמן שתאים עדיין בתנודתית, מדינת אביהם. ברגע שהתאים להפסיק נדנוד, הם מניחים גורל תא מובחן, וכאשר ברקמות, יהיה שולב somite. זה פוssible שעם הגורם או גורמים הנמצאים במבחנה הנכון אנחנו יכולים ליצור קווי תרבית תאי דג הזברה כמו PSM שיישאר תנודתית, המאפשרים באופן משמעותי תצפיות לטווח ארוך, הפרעות רציפים מרובות, או הקרנת תפוקה גבוהה.
אנו מצפים כי שיטה זו של הכנת תרבויות עיקריות של תאים התפזרו לזמן לשגות הדמיה היא מתאימה היטב ללימוד כל תהליך תאי המתרחש בתוך מסגרת זמן ההתפתחותי שאינה נגיש באמצעות שורות תאי דג הזברה יציבה. הבידוד של תאים מסוגים שונים בשלבי התפתחות שונים מקווי הכתב מהונדסים המתאימים, בין אם באמצעות נתיחה או באמצעות FACS לאחר ניתוק עוברי, יכול לספק את התאים שמתחילים. אופטימיזציה של חלק מתנאי התרבות, מודרכים על ידי המקור העוברי של התאים, ייתכן שתידרש. על ידי שילוב של פרוטוקול גמיש ורגיש זה עם האוסף גדל במהירות של דג הזברה מהונדסקווים, אנו מקווים להקל במבחנה התפתחותית גישת ביולוגיה כי הוא משלים לשיטות גנטיות ועובריות קלאסיות.
גילויים
מחבר תרומות:
ABW פיתח ושכלל פיזור, תרבות, הדמיה, ופרוטוקולי מעקב סלולרי. DS שנוצר הקווים מהונדסים ופקח על העיצוב של מיקרוסקופ פלואורסצנטי הזמן לשגות בשימוש בפרוטוקול זה. AO חלוץ ניסויי הוכחה של עיקרון ראשוניים לנתק ותאי PSM הדימוי בתרבות. JS כתב כלי תוסף משרבב המעגל בפיג'י משמש למדידת עוצמת הקרינה מהזמן לשגות סרטים. ABW וACO כתבו את כתב היד.
תודות
עבודה זו נתמכה על ידי מלגה לטווח ארוך EMBO (ABW), קרן מדע בינלאומית מחקר הבתר האחווה לאומית (ABW), Gesellschaft מקס פלאנק (ABW, DS, JS, ACO), מלגת חפירות-BB (AO), והמועצה האירופית למחקר באירופה קהילות תכנית המסגרת השביעית STG-207,634 (DS, ACO). אנו מודים לראווי דסאי על הערות מועילות על כתב היד. כמו כן, אנו רוצים להודות למתקן ביטוי חלבון MPI-CBG לייצור בר Fibronectin1 דג הזברה, צוות מתקן דגי MPI-CBG לטיפול ותחזוקה של קווי הדגים שלנו ואת המתקן במיקרוסקופ אור MPI-CBG לתמיכת הדמיה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מיקרוסקופ אפיפלואורסצנטי | אולימפוס | דגם: SZX16 | |
| מיקרוסקופ אפיפלואורסצנטי | X-cite סדרת תאורה | : 120Q | |
| מיקרוסקופ דיסקציה | אולימפוס | דגם: SZX12 | |
| מלקחיים עדינים מס' 55 | כלי מדע עדינים | 11295-51 | |
| פיפטות העברת זכוכית | מסייעות | 567/2 | |
| צלחות פטרי פלסטיק 35 מ"מ | גריינר | 627102 | |
| 60 מ"מ צלחות פטרי מפלסטיק | גריינר | 628102 | |
| פולימר סילגארד | SASCO | 266727 | |
| כלי מניפולציה | תוצרת הבית | לתיאור כלי מניפולציה Ref. 22 | |
| סכין מיקרוכירורגית | World Precision Instruments | 500249 | |
| L15 בינוני | Invitrogen | 57322 | |
| פניצילין/סטרפטומיוצין | PAA | P11-010 | |
| סרום בקר עוברי | Invitrogen | 257322 | |
| 0.05% טריפסין / 0.02% EDTA | PAA | L11-004 | |
| טיפים לטעינת ג'ל | פישר סיינטיפיק | 253188 | |
| סיגמקוט | סיגמא אולדריץ' | 254589 | |
| סט מיקרופיפטה | Gilson International | F167300 | |
| Zebrafish Fibronectin1 70 kD מתקן | חלבון MPI-CBG | שנוצר בבית מבנייה על סמך עבודה שפורסמה בעבר Ref. 23-25 | |
| צלחות הדמיה תחתונות זכוכית | מטק (באר יחידה) | P35G-1.5-14-C | |
| צלחות הדמיה תחתונות זכוכית | גריינר (CellView -multi-well)262502 | ||
| מדיום E3 ללא כחול מתילן | מיוצר בבית | מתוך ספר דג הזברה, מהדורה חמישית Ref. 26 | |
| פיפטות העברת פלסטיק | Ratiolab | 260011 | |
| תא חימום/קירור של וורנר | וורנר אינסטרומנטס | TC-324B/344B | |
| EM-CCD מצלמת | אנדור | דגם: iXOn 888 | |
| מיקרוסקופ פלואורסצנטי רחב שדה עם סט | מסנני ונוסדגם Zeiss | : Axiovert 200M | |
| מיקרוסקופ פלואורסצנטי בשדה רחב עם סט | NeoFluor 40x, NA 0.75 | ||
| מיקרוסקופ פלואורסצנטי בשדה רחב עם סט מסנני ונוס | מנוע אור לומנקור | : Spectra X | |
| מיקרוסקופ פלואורסצנטי בשדה רחב עם סט מסנני ונוס | BrightLine HC 575/15 | F39-575 |
מקורות
- Cooke, J., Zeeman, E. C. A clock and wavefront model for control of the number of repeated structures during animal morphogenesis. J Theor Biol. 58, 455-476 (1976).
- Oates, A. C., Morelli, L. G., Ares, S. Patterning embryos with oscillations: structure, function and dynamics of the vertebrate segmentation clock. Development. 139, 625-639 (2012).
- Dequeant, M. L., Pourquie, O. Segmental patterning of the vertebrate embryonic axis. Nat Rev Genet. 9, 370-382 (2008).
- Oates, A. C., Gorfinkiel, N., Gonzalez-Gaitan, M., Heisenberg, C. P. Quantitative approaches in developmental biology. Nat Rev Genet. 10, 517-530 (2009).
- Oates, A. C., Ho, R. K. Hairy/E(spl)-related (Her) genes are central components of the segmentation oscillator and display redundancy with the Delta/Notch signaling pathway in the formation of anterior segmental boundaries in the zebrafish. Development. 129, 2929-2946 (2002).
- Lewis, J. Autoinhibition with transcriptional delay: a simple mechanism for the zebrafish somitogenesis oscillator. Curr Biol. 13, 1398-1408 (2003).
- Schroter, C., Oates, A. C. Segment Number and Axial Identity in a Segmentation Clock Period Mutant. Curr Biol. 20, 1254-1258 (2010).
- Riedel-Kruse, I. H., Muller, C., Oates, A. C. Synchrony dynamics during initiation, failure, and rescue of the segmentation clock. Science. 317, 1911-1915 (2007).
- Ozbudak, E. M., Lewis, J. Notch signalling synchronizes the zebrafish segmentation clock but is not needed to create somite boundaries. PLoS Genet. 4, e15(2008).
- Herrgen, L., et al. Intercellular Coupling Regulates the Period of the Segmentation Clock. Curr Biol. 20, 1244-1253 (2010).
- Sawada, A., et al. Fgf/MAPK signalling is a crucial positional cue in somite boundary formation. Development. 128, 4873-4880 (2001).
- Giudicelli, F., Ozbudak, E. M., Wright, G. J., Lewis, J. Setting the tempo in development: an investigation of the zebrafish somite clock mechanism. PLoS Biol. 5, e150(2007).
- Herrgen, L., Schroter, C., Bajard, L., Oates, A. C. Multiple embryo time-lapse imaging of zebrafish development. Methods Mol Biol. 546, 243-254 (2009).
- Hirata, H., et al. Oscillatory expression of the bHLH factor Hes1 regulated by a negative feedback loop. Science. 298, 840-843 (2002).
- Maroto, M., Dale, J. K., Dequeant, M. L., Petit, A. C., Pourquie, O. Synchronised cycling gene oscillations in presomitic mesoderm cells require cell-cell contact. Int J Dev Biol. 49, 309-315 (2005).
- Reppert, S. M., Weaver, D. R. Coordination of circadian timing in mammals. Nature. 418, 935-941 (2002).
- Welsh, D. K., Imaizumi, T., Kay, S. A. Real-time reporting of circadian-regulated gene expression by luciferase imaging in plants and mammalian cells. Methods Enzymol. 393, 269-288 (2005).
- Soroldoni, D., Oates, A. C. Live transgenic reporters of the vertebrate embryo's Segmentation Clock. Curr Opin Genet Dev. 21, 600-605 (2011).
- Masamizu, Y., et al. Real-time imaging of the somite segmentation clock: revelation of unstable oscillators in the individual presomitic mesoderm cells. Proc Natl Acad Sci USA. 103, 1313-1318 (2006).
- Soroldoni, D., Hogan, B. M., Oates, A. C. Simple and efficient transgenesis with meganuclease constructs in zebrafish. Methods in molecular biology. 546, 117-130 (2009).
- Schroter, C., et al. Dynamics of zebrafish somitogenesis. Dev Dyn. 237, 545-553 (2008).
- Picker, A., Roellig, D., Pourquie, O., Oates, A. C., Brand, M. Tissue micromanipulation in zebrafish embryos. Methods in molecular biology. 546, 153-172 (2009).
- Mould, A. P., et al. Identification of multiple integrin beta1 homologs in zebrafish (Danio rerio). BMC Cell Biol. 7, 24(2006).
- Mould, A. P., Koper, E. J., Byron, A., Zahn, G., Humphries, M. J. Mapping the ligand-binding pocket of integrin alpha5beta1 using a gain-of-function approach. Biochem J. 424, 179-189 (2009).
- Zhao, Q., Liu, X., Collodi, P. Identification and characterization of a novel fibronectin in zebrafish. Exp Cell Res. 268, 211-219 (2001).
- Westerfield, M. In The zebrafish book : a guide for the laboratory use of zebrafish (Brachydanio rerio). , (1993).
- Vallone, D., Santoriello, C., Gondi, S. B., Foulkes, N. S. Basic protocols for zebrafish cell lines: maintenance and transfection. Methods Mol Biol. 362, 429-441 (2007).
- Carr, A. J., Whitmore, D. Imaging of single light-responsive clock cells reveals fluctuating free-running periods. Nat Cell Biol. 7, 319-321 (2005).
- Whitmore, D., Foulkes, N. S., Sassone-Corsi, P. Light acts directly on organs and cells in culture to set the vertebrate circadian clock. Nature. 404, 87-91 (2000).
- Soroldoni, D., et al. A Doppler effect in embryonic pattern formation. Science. 345, DOI. 222-225 (1126).
הדפסות חוזרות והרשאות
