סחר בממברנה כרוך בהובלה של חלבונים מקרום הפלזמה לפנים התא (כלומר אנדוציטוזיס) ואחריו סחר לליזוזומים לפירוק או לקרום הפלזמה למיחזור. השיטות המתוארות במאמר זה נועדו לחקור אנדוציטוזיס ומיחזור של חלבוני ממברנת פלזמה.
מאמר שיטה
מבחני הגנת L-גלוטתיון מבוססי תאים לחקר אנדוציטוזיס ומיחזור של חלבוני ממברנת פלזמה
במאמר זה
סיכום
תקציר
סחר בממברנה כרוך בהובלה של חלבונים מקרום הפלזמה לפנים התא (כלומר אנדוציטוזיס) ואחריו סחר לליזוזומים לפירוק או לקרום הפלזמה למיחזור. ניתן להשתמש במבחני ההגנה של L-גלוטתיון מבוססי תאים כדי לחקור אנדוציטוזיס ומיחזור של קולטני חלבון, תעלות, טרנספורטרים ומולקולות הידבקות הממוקמות על פני התא. הבדיקה האנדוציטית דורשת תיוג של חלבוני פני התא עם ביוטין אטום לקרום התא המכיל קשר דיסולפיד ואסטר N-hydroxysuccinimide (NHS) בטמפרטורה של 4 מעלות צלזיוס - טמפרטורה בה לא מתרחש סחר בקרום. אנדוציטוזיס של חלבוני קרום פלזמה ביוטיניליים נגרמת על ידי דגירה בטמפרטורה של 37 מעלות צלזיוס. לאחר מכן, הטמפרטורה יורדת שוב ל -4 מעלות צלזיוס כדי לעצור את הסחר האנדוציטי, והקשר הדיסולפיד בביוטין המחובר קוולנטית לחלבונים שנותרו בקרום הפלזמה מצטמצם עם L-גלוטתיון. בשלב זה, רק חלבונים שעברו אנדוציטוזציה נשארים מוגנים מפני L-גלוטתיון ולכן נשארים ביוטיניליים. לאחר ליזיס תאים, חלבונים ביוטיניליים מבודדים עם סטרפטווידין אגרוז, נפלטים מאגרוז, והחלבון הביוטיניל המעניין מזוהה על ידי כתמים מערביים. במהלך בדיקת המיחזור, לאחר הדגירה של תאי ביוטינילציה בטמפרטורה של 37 מעלות צלזיוס כדי להעמיס שלפוחיות אנדוציטיות עם חלבונים ביוטיניים והקשר הדיסולפיד בביוטין המחובר קוולנטית לחלבונים שנותרו בקרום הפלזמה מצטמצם עם L-גלוטתיון בטמפרטורה של 4 מעלות צלזיוס כמו בבדיקה האנדוציטית. לאחר מכן, תאים מודגרים שוב ב-37 מעלות צלזיוס כדי לאפשר לחלבונים ביוטיניים משלפוחיות אנדוציטיות למחזר לקרום הפלזמה. לאחר מכן מודגרים התאים בטמפרטורה של 4 מעלות צלזיוס, והקשר הדיסולפיד בביוטין המחובר לחלבונים הממוחזרים לממברנות הפלזמה מצטמצם עם L-גלוטתיון. החלבונים הביוטיניליים המוגנים מפני L-גלוטתיון הם אלה שלא מיחזרו לקרום הפלזמה.
מבוא
כל התאים החיים מעבדים מידע על ידי הברחת מטענים, כגון ליגנדים חוץ-תאיים, מיקרואורגניזמים, חומרים מזינים, חלבונים טרנסממברניים ושומנים מקרום הפלזמה לשלפוחיות אנדוציטיות (כלומר אנדוציטוזיס). תהליך הדדי הנקרא מיחזור מאזן אנדוציטוזיס ומחזיר חלק גדול מהממברנה והמטען המופנמים לפני התא. האיזון בין אנדוציטוזיס למיחזור שולט בהרכב קרום הפלזמה ומספק לתאים מידע שנפתר בזמן ובמרחב. אנדוציטוזיס ומיחזור הם מווסתים ראשיים של פונקציות תאיות מגוונות כגון ספיגת חומרים מזינים וחילוף חומרים, התפתחות, התפשטות, התמיינות וקוטביות, תכנות מחדש, נדידה, הידבקות ונדידה של תאים, ציטוקינזיס והעברה עצבית1-3. מסלולים אנדוציטיים ומיחזור הם מאוד דינמיים ומתואמים מאוד ומאפשרים לתאים להפוך את המקבילה לכל קרום הפלזמה פי 1-5 לשעה.
מבחני ההגנה L-glutahione מבוססי התאים שימושיים לחקר אנדוציטוזיס ומיחזור של חלבונים טרנסממברניים כולל קולטנים, תעלות, טרנספורטרים ומולקולות הידבקות בתאי אפיתל ולא אפיתל4-8. חקרנו בעבר אנדוציטוזיס ומיחזור של מווסת המוליכות הטרנסממברנית של סיסטיק פיברוזיס (CFTR) בתאי אפיתל של דרכי הנשימה האנושיות ותאי HEK2939-15. הבדיקות המבוססות על ביוטינילציה המתוארות בכתב היד מותאמות לבחינת אנדוציטוזיס ומיחזור בתאי אפיתל שגודלו בתנאי קיטוב על תומכי גדילה חדירים למחצה. ניתן לשנות פרוטוקולים אלה כדי לחקור אנדוציטוזיס ומיחזור של חלבונים בתאי אפיתל שגודלו בצלחות תרבית רקמות פלסטיות או בתאים שאינם אפיתל. איורים 1 ו-2 מכילים דוגמאות לבדיקות אנדוציטיות ומיחזור בתאי אפיתל ולא אפיתל.
בדיקות אנדוציטיות מבוצעות כמתואר קודם לכן9-15. תאים מגודלים על תומכי צמיחה חדירים למחצה מצופים קולגן11,14. לחלופין, ניתן לתרבית תאים בתרבית רקמה פלסטית מצופה קולגן10,15. התאים מקוררים במהירות ל-4 מעלות צלזיוס כדי לעצור את סחר הממברנה וחלבוני קרום הפלזמה מסומנים ב-4 מעלות צלזיוס עם ביוטין אטום לקרום התא. ביוטין מגיב עם ε-אמין של שאריות ליזין והקשר הדיסולפיד ניתן לניתוק תיול. לאחר הדגירה של תאים ביוטינילציה בטמפרטורה של 37 מעלות צלזיוס כדי לגרום לסחר בחלבונים ולהעמיס שלפוחיות אנדוציטיות למשך 2.5, 5.0, 7.5 או 10 דקות. לאחר מכן, התאים מקוררים ל-4 מעלות צלזיוס והקשר הדיסולפיד בביוטין המחובר קוולנטית לחלבוני קרום הפלזמה מצטמצם עם L-גלוטתיון (GSH). בשלב זה בפרוטוקול, רק חלבונים שעברו אנדוציטוזציה מקרום הפלזמה מוגנים מפני GSH ובכך נשארים ביוטיניליים. תאים שנשארים ב-4 מעלות צלזיוס לאחר ביוטינילציה ללא דגירה ב-37 מעלות צלזיוס או טיפול ב-GSH ישמשו לקביעת כמות ה-CFTR ביוטינילציה בזמן אפס. תאים שנשארים ב-4 מעלות צלזיוס לאחר ביוטינילציה ללא דגירה ב-37 מעלות צלזיוס אך עם טיפול ב-GSH ישמשו לקביעת היעילות של הפחתת קשרי הדיסולפיד. בעקבות הטיפולים שתוארו לעיל, התאים עוברים ליזה, חלבונים ביוטיניליים מבודדים על ידי סטרפטווידין אגרוז, נפלטים למאגר דגימת SDS ומופרדים על ידי SDS-PAGE. החלבון המעניין מזוהה בדגימות הביוטינילציה על ידי כתמים מערביים. כמות החלבון הביוטיניל בטמפרטורה של 4 מעלות צלזיוס בזמן אפס (ללא התחממות של 37 מעלות צלזיוס) נחשבת ל 100%. כמות החלבון שנותרה ביוטינילציה לאחר טיפול GSH ב-4 מעלות צלזיוס נחשבת לרקע ומופחתת מכמות החלבון שנותרה ביוטינילציה לאחר ההתחממות ל-37 מעלות צלזיוס בנקודות זמן שונות. אנדוציטוזיס חלבון מחושב לאחר הפחתת הרקע ומתבטא כאחוז החלבון הביוטיני בכל נקודת זמן לאחר התחממות ל -37 מעלות צלזיוס בהשוואה לכמות החלבון הביוטיניל הקיים בזמן אפס.
בדיקות מיחזור מבוצעות כמתואר קודם לכן11,16. תאים מתורבתים על תומכי צמיחה חדירים למחצה מצופים קולגן11. לחלופין, ניתן לתרבית תאים על כלי תרבית רקמה פלסטיים מצופים קולגן13. תאים מחוממים ל-37 מעלות צלזיוס לאחר ביוטינילציה כדי להעמיס שלפוחיות אנדוציטיות עם חלבונים ביוטיניליים. זמן הדגירה הראשונה ב -37 מעלות צלזיוס נקבע על ידי הזמן בו אנדוציטוזיס של החלבון המעניין מגיע למקסימום במהלך העלייה הליניארית של האות האנדוציטי. הזמן הוא ספציפי לחלבון ועשוי להיות תלוי בסוג התא ובתנאי תרבית התאים. מניסיוננו, אנדוציטוזיס CFTR הגיע למקסימום ב-5.0 או 7.5 דקות13,14 (איורים 1 ו-2). לאחר מכן, התאים מקוררים מיד ל-4 מעלות צלזיוס והקשר הדיסולפיד בביוטין המחובר לחלבוני קרום הפלזמה מצטמצם עם GSH. לאחר מכן, התאים עוברים ליזה כדי לקבוע את כמות החלבון האנדוציטוזי המעניין או מחוממים שוב ל-37 מעלות צלזיוס לפרקי זמן שונים כדי לאפשר לחלבון ביוטיניל אנדוציטוזי מעניין למחזר לקרום הפלזמה. לאחר מכן התאים מקוררים שוב ל-4 מעלות צלזיוס, והקשר הדיסולפיד על ביוטין המחובר לחלבונים הממוחזרים לממברנות הפלזמה מצטמצם עם GSH. מיחזור החלבון המעניין נקבע מההפרש בין כמות החלבון הביוטיניל לאחר הטיפול הראשון והשני ב-GSH.
היתכנות הבדיקות האנדוציטיות והמיחזור תלויה במספר גורמים. ראשית, היווצרות חד-שכבות של תאים היא תנאי מוקדם ותאים שאינם יוצרים חד-שכבתי או גדלים כרב שכבות אינם מתאימים לבדיקות המתוארות בכתב יד זה. שנית, שפע החלבון המעניין על פני התא ונוכחות נוגדן לזיהוי החלבון על ידי כתמים מערביים הם קריטיים. אנו ממליצים ששפע המצב היציב של החלבון ייקבע תחילה בליזאטים של תאים שלמים (WCL). שלישית, יש לבדוק את היכולת לביוטינילציה של חלבון פני התא הספציפי. ביוטין נצמד לשאריות ליזין. לפיכך, יעילות הביוטינילציה תלויה בחלקה במספר שאריות הליזין בתחום החוץ-תאי של החלבון. בהתאם לכך, אנו ממליצים לסנן את רצף החלבון כדי לקבוע אם שאריות ליזין קיימות בתחום/ים החוץ-תאיים. לא כל שאריות הליזין בתחום החוץ-תאי עשויות להיות נגישות באותה מידה לביוטין עקב קיפול חלבון. לפיכך, יש לבצע ביוטינילציה של חלבון במצב יציב ואחריו כתמים מערביים כדי לקבוע לא רק את שפע המצב היציב של החלבון על פני התא אלא גם כדי לבחון את היתכנות הבדיקות המבוססות על ביוטינילציה עבור החלבון המבוקש.
פרוטוקול זה מותאם לבחינת אנדוציטוזיס ומיחזור של CFTR מסוג בר בתאי אפיתל של דרכי הנשימה האנושיות CFBE41o- מתורבת על תומכי גידול חדירים למחצה של 24 מ"מ בממשק אוויר-נוזל9,10,13-15. CFTR מקטב לתחום הממברנה האפיקלית; לפיכך, הפרוטוקול מתאר ביוטינילציה של תחום הממברנה האפיקלית. ביוטינילציה של תחום הממברנה הבסיסית תידרש כדי לחקור אנדוציטוזיס ומיחזור של חלבונים המקטבים לקרום הבסיסי. לפרוטוקול הבדיקה האנדוציטית המתואר בכתב יד זה יש 6 תנאים: ביוטינילציה בלבד (BT = זמן אפס; דגימה a); בקרת GSH (GSH; מדגם ב); ונקודות הזמן האנדוציטיות של 2.5, 5.0, 7.5 או 10 דקות (דגימות C; טבלה 1). ניתן לשנות את מספר ו/או אורך נקודות הזמן האנדוציטיות בפרוטוקול לפי הצורך.
בדיקת המיחזור מתבצעת לאחר קביעת נקודת הזמן שבה האנדוציטוזיס של החלבון המעניין מגיעה למקסימום במהלך העלייה הליניארית של האות האנדוציטי. נקודת זמן זו תשמש להעמסת שלפוחיות אנדוציטיות בחלבון המעניין לפני גרימת המיחזור. הזמן תלוי בחלבון ועשוי להשתנות בין סוגי התאים ותנאי התרבית15. קבענו בעבר כי אנדוציטוזיס CFTR הגיע למישור בנקודת הזמן של 7.5 דקות בתאי אפיתל של דרכי הנשימה האנושיות CFBE41o- המבטא ביציבות CFTR15. לעומת זאת, אנדוציטוזיס CFTR הגיע למישור בנקודת הזמן של 5.0 דקות בתאי HEK293 המבטאים ביציבות CFTR13. לפרוטוקול בדיקת המיחזור המתואר בכתב יד זה יש 5 תנאים: ביוטינילציה בלבד (BT = זמן אפס; דגימה a); בקרת GSH (GSH; מדגם ב); אנדוציטוזיס של 5.0 דקות (אנדו; דגימה c), אנדוציטוזיס של 5.0 דקות ואחריו נקודות זמן מיחזור של 2.5 או 5.0 דקות (Rec; דגימות d; טבלה 2). ניתן לשנות את מספר ו/או אורך נקודות זמן המיחזור בפרוטוקול לפי הצורך.
פרוטוקול
1. זריעת תאים
- יש לטפל במסנני 24 מ"מ עם 10% קולגן I (להכין 10% קולגן I במדיום חיוני מינימלי (MEM), לכסות את כל שטח המסנן בתמיסת הקולגן, לדגור תחת אור ה-UV בטמפרטורת החדר למשך 30 דקות, ובאינקובטור תרבית תאים בטמפרטורה של 37 מעלות צלזיוס למשך שעה, לשאוב את עודפי הקולגן לאחר הדגירה).
- הכן מדיום תרבית תאים (MEM בגז עם CO2 למשך 20 דקות, 10% סרום בקר עוברי (FBS), 50 U/ml פניצילין, 50 U/ml סטרפטומיצין, 2 מ"מ L-גלוטמין, 0.5 מיקרוגרם/מ"ל פורומיצין)
- זרע CFBE41o- תאי על שישה מסננים של 24 מ"מ לאנדוציטוזיס ומיחזור, בהתאמה, ב-1 x 10⁶/מסנן.
- הסר את המדיום האפיקלי יום לאחר הזריעה והאכיל מדי יום מהצד הבסיסי בלבד.
- האכילו במדיום אנטיביוטי שלילי 24 שעות לפני הניסוי. בצע ניסוי בתאי CFBE41o 6-10 ימים לאחר הזריעה.
2. תכשירים לפני הניסוי (בדומה לבדיקת אנדוציטוזיס ומיחזור)
- הקימו מקום ספסל בחדר הקירור. יש לבצע בדיקות אנדוציטיות ומיחזור בחדר הקירור למעט הדגירה ב-37 מעלות צלזיוס. יש להניח צלחות המכילות את מסנני ה-24 מ"מ ישירות על הספסל בחדר הקירור.
- הפעל את החממה של 37 מעלות צלזיוס.
- הכינו 500 מ"ל PBS++, pH 8.2 (תמיסת מלח פוספט בופר (PBS) של Dulbecco, 1 מ"מ מגנזיום כלוריד ו-0.1 מ"מ סידן כלורי, pH 8.2) ושמרו 250 מ"ל ב-37 מעלות צלזיוס בחממה ו-250 מ"ל ב-4 מעלות צלזיוס בחדר הקירור.
- מלאו בארות בצלחת 6 בארות עם PBS++, pH 8.2, 37 מעלות צלזיוס ושמרו בחממה בטמפרטורה של 37 מעלות צלזיוס.
- ממלאים בארות בצלחת נוספת של 6 בארות עם PBS++, pH 8.2, 4 מעלות צלזיוס ושומרים בחדר הקירור בטמפרטורה של 4 מעלות צלזיוס.
- מכינים 100 מ"ל PBS++, pH 8.6 ב-4 מעלות צלזיוס ושומרים בחדר הקירור.
- הכן ביוטין המכיל את קשר הדיסולפיד ואסטר NHS בריכוז של 0.8 מ"ג/מ"ל ב-PBS++, pH 8.2, 4 מעלות צלזיוס תוך 30 דקות משלב הביוטינילציה (נפח מאגר הביוטין צריך לכסות לחלוטין את כל שטח המסנן); אנו ממליצים על מסנן 1.5 מ"ל/24 מ"מ.
- הכינו 100 מ"ל של מאגר GSH במים, pH 8.6 ומצננים ל-4 מעלות צלזיוס (75 מ"מ נתרן כלורי, 1 מ"מ מגנזיום כלוריד ו-0.1 מ"מ סידן כלורי, 50 מ"מ GSH, 80 מ"מ נתרן הידרוקסיד ו-10% FBS). יש להוסיף GSH ונתרן הידרוקסיד ממש לפני הניסוי. בדוק את ה-pH והתאם ל-8.6; נתרן הידרוקסיד מנטרל את קבוצות הקרבוקסיל ומפרק מחצית משאריות הציסטאין בגלוטתיון. הוא חצץ חזק ב-pKa של ציסטאין זה, שהוא 8.64. (הכן את אותו נפח של מאגר GSH לבדיקת המיחזור).
- הכן 50 מ"ל של מאגר ליזה, pH 8.2 ושמור בטמפרטורה של 4 מעלות צלזיוס (25 מ"מ HEPES, pH 8.2, 1% (v/v) Triton X-100, 10% (v/v) גליצרול); הוסף קוקטייל מעכב פרוטאז מלא לכל 50 מ"ל של מאגר ליזה וקרר ל-4 מעלות צלזיוס; בדוק את ה-pH לאחר הוספת Complete מכיוון שעלולה להתרחש ירידה ב-pH.
- הכן Laemli sample buffer עם 100 מ"מ DTT.
- הכן מאגר ריצה 1x (100 מ"ל של 10x מאגר ריצה, 900 מ"ל מים).
- הכן 1x מאגר העברה ומצנן ל -4 מעלות צלזיוס (100 מ"ל של מאגר העברה 10x ללא נתרן דודציל סולפט (SDS), 200 מ"ל מתנול, 700 מ"ל מים).
3. בדיקה אנדוציטית
CFTR מקטב לתחום הממברנה האפיקלית; לפיכך, הפרוטוקול מתאר ביוטינילציה של תחום הממברנה האפיקלית. ביוטינילציה של תחום הממברנה הבסיסית תידרש כדי לחקור אנדוציטוזיס של חלבונים המקטבים לקרום הבסיסי.
זרימת עבודה: ביוטינילציה של חלבוני פני התא בטמפרטורה של 4 מעלות צלזיוס → התחממות ל -37 מעלות צלזיוס להעמסת שלפוחיות אנדוציטיות בחלבונים ביוטיניים → קירור ל -4 מעלות צלזיוס לעצירת סחר אנדוציטי → הפחתת הקשר הדיסולפיד בביוטין המחובר לחלבונים שנותרו על פני התא → → ליזה של תאים בידוד של ביוטינילציה (כלומר אנדוציטוז) עם סטרפטווידין אגרוז → סילוק חלבונים ביוטיניליים מסטרפטווידין אגרוז → אלקטרופורזה של חלבון וכתמים מערביים.
- הביאו את הצלחת המכילה שישה מסננים של 24 מ"מ (טבלה 1: דגימות a-c) מאינקובטור תרבית התאים והעבירו במהירות לצלחת מלאה בקור (4 מעלות צלזיוס) PBS++, pH 8.2 על קרח.
- תן ל-PBS++ לעלות על פני השטח האפיקלי כדי לכסות במהירות את כל המשטח. הביאו את הצלחת על קרח לחדר הקירור והניחו על הספסל.
- הסר את PBS++ במהירות על ידי הפיכת הצלחת הפוכה והחזקת המסננים במקומם כדי למנוע נפילה. הוסף ~2 מ"ל של PBS++ לצד האפיקלי והבסיסי.
- שטפו מסננים עם ~2 מ"ל PBS++ קר, pH 8.2 3x למשך 2 דקות. שאבו את הכביסה מצד אחד בכל פעם, אפיקלי או בסיסי והוסיפו PBS++ טרי, pH 8.2 לצד אחד בכל פעם.
- שאבו את הכביסה האחרונה והוסיפו 1 מ"ל PBS++, pH 8.2 לצד הבסיסי. מוסיפים 1.5 מ"ל ממאגר הביוטין לצד האפיקלי ודוגרים בחושך למשך 30 דקות. הימנע משפיכת חוצצים לצד הנגדי.
- שאבו את מאגר הביוטין מהצד האפיקלי ושטפו עם PBS++, pH 8.2 3x למשך 2 דקות.
- הניחו בצד בצלחת אחרת שני פילטרים (טבלה 1: דגימות a ו-b), הוסיפו ~2 מ"ל של PBS++, pH 8.2 לצד האפיקלי והבסיסי ושמרו בחדר הקירור. שמור את 4 המסננים הנותרים בצלחת אחת (טבלה 1: דוגמאות ג) והוסף ~2 מ"ל של PBS++ pH 8.2 בצד האפיקלי והבסיסי של כל מסנן. מניחים את הצלחת על קרח ומביאים לראש הספסל ליד החממה של 37 מעלות צלזיוס.
- העבירו במהירות מסננים מקרח לצלחת בחממה של 37 מעלות צלזיוס מלאה ב-PBS++ pH 8.2 מחומם מראש ודגרו מסנן אחד כל אחד בדיוק למשך 2.5, 5.0, 7.5 או 10 דקות המכסה את כל פני השטח של כל מסנן עם PBS++ pH חם 8.2.
- במהלך הדגירה מלאו לחלוטין ארבע בארות בצלחת על קרח בקור (4 מעלות צלזיוס) PBS++ pH 8.2.
- לאחר זמן הדגירה המצוין, הפוך כל פילטר הפוך כדי לנקז את ה- PBS החם (37 מעלות צלזיוס), pH 8.2 ולהעביר לצלחת על קרח. הוסף PBS++ קר, pH 8.2 כדי להציף את הצד האפיקלי ולכסות את כל פני השטח של כל מסנן במהירות.
- לאחר העברת פילטרים לקרח הביאו את הצלחת לחדר הקירור והניחו אותה על הספסל.
- יש לשאוב את PBS++ משני הצדדים בכל המסננים (דוגמאות a-c) ולמלא את הצד הבסיסי ב-1 מ"ל של PBS++ pH 8.6. הוסף 1.5 מ"ל של PBS++, pH 8.6 לצד האפיקלי של המסנן a (טבלה 1: דוגמה א).
- צמצם את קשר הדיסולפיד בביוטין המחובר לחלבוני הממברנה האפיקלית עם מאגר ה-GSH (pH 8.6) במסננים b ו-c (טבלה 1: דגימה b ו-c).
- מוסיפים 1.5 מ"ל ממאגר ה-GSH לצד האפיקלי, מדגרים למשך 15 דקות וחוזרים על הפעולה שש פעמים.
- שמור 1 מ"ל של PBS++ pH 8.6 בצד הבסיסי. הימנע משפיכת המאגר לצד הבסיסי.
- לאחר השלמת ההליך 3.15, שטפו את כל המסננים (טבלה 1: דוגמאות a, b ו-c) בקצרה עם PBS++ pH 8.2 2x, שאבו את הכביסה מהצד האפיקלי והבסיסי והניחו את הצלחת עם מסננים בזווית של 45° כדי לנקז שוב את כל הכביסה והיניקה.
- הנח את הצלחת שטוחה על החלק העליון של הספסל והוסף 500 מיקרוליטר של מאגר ליזה לצד האפיקלי של כל מסנן ודגר בחדר הקירור תוך רעידות למשך 15 דקות.
- מגרדים תאים עם שוטר גומי ואוספים בשפופרת אפנדורף 1.5 מ"ל.
- סובב ב-14,000 x גרם למשך 10 דקות ב-4 מעלות צלזיוס.
- העבירו את הסופרנטנטים לצינורות טריים של 1.5 מ"ל והשליכו את הכדורים. הסופרנטנטים נקראים כיום ליזאטים של תאים שלמים (WCL).
- הוסף 100 מיקרוליטר של מאגר דגימת Laemli עם DTT ל-50 מיקרוליטר של WCL (10% מכלל ה-WCL) ודגירה ב-37 מעלות צלזיוס למשך 30 דקות (דגימות WCL).
- הכן 200 מיקרוליטר של 50% סטרפטווידין אגרוז והסר את כל מאגר הכביסה עם מחט 27 גרם המחוברת ליניקה: שטוף 2x עם 1 מ"ל PBS, חרוזי גלולה עם סיבוב דופק בין השטיפות; שטוף פעם אחת עם 1 מ"ל של מאגר ליזה כדי לאזן לפני הוספת WCL; לשאוב את האגרוז לפני הוספת WCL.
- דגרו את ה-WCL הנותר עם סטרפטווידין אגרוז שטוף (הביאו את הנפח עד 1.2 מ"ל עם מאגר ליזה וסובבו בחושך למשך שעתיים לפחות או O/N בחדר הקירור).
- שטפו את קומפלקסי החלבון האסטרפטווידין אגרוז-ביוטיניל שלוש פעמים עם 1 מ"ל של מאגר ליזה (מאגר הליזיס אינו צריך להכיל Complete במהלך הכביסה), סובב את הדופק של האגרוז בין הכביסה וייבש את היניקה לאחר הכביסה האחרונה.
- דגרו את קומפלקסי החלבון האסטרפטווידין אגרוז-ביוטיניל עם מאגר דגימת Laemli של 65 מיקרוליטר עם DTT בטמפרטורה של 85 מעלות צלזיוס למשך 5 דקות.
- סובב דופק ואסוף את קומפלקסי החלבון הביוטיניליים המנופחים.
- טען 7.5% ג'לים עם 40 מיקרוליטר מדגימות WCL וכל נפח הדגימות הביוטיניל (BT) לבאר.
- הפעל ג'לים ב-120 וולט ב-SDS המכיל מאגר פועל.
- העבירו חלבונים לקרום PVDF ב-90-95 וולט למשך 1.5 שעות (עד <400 A) במאגר העברה ללא SDS.
- חסום חלב דל שומן 5% ב-TBS-T 0.1% O/N. כתם את שתי הממברנות עם נוגדן חד שבטי לעכבר נגד CFTR CFF596 ונוגדנים משניים מצומדים נגד עכברים HRP.
- בצע כימילומינסנציה. כתם מחדש את שתי הממברנות עם נוגדן אנטי אזרין או אנטי אקטין.
4. בדיקת מיחזור
זרימת עבודה: ביוטינילציה של חלבוני פני התא ב-4 מעלות צלזיוס → התחממות ל-37 מעלות צלזיוס להעמסת שלפוחיות אנדוציטיות עם חלבונים ביוטיניים → קירור ל-4 מעלות צלזיוס כדי לעצור את הסחר האנדוציטי → הפחתת הקשר הדיסולפיד בביוטין המחובר לחלבונים שנותרו על פני התא → התחממות ל-37 מעלות צלזיוס כדי לאפשר לחלבונים ביוטיניים משלפוחיות אנדוציטיות למחזר למשטח התא → קירור ל-4 מעלות צלזיוס לעצירת סחר אנדוציטי → הפחתת הקשר הדיסולפיד בביוטין המחובר לחלבונים שחזרו לפני התא → → ליזה של תאים בידוד של חלבונים ביוטיניליים (כלומר כאלה שלא ממוחזרו) עם סטרפטווידין אגרוז → סילוק חלבונים ביוטיניים מסטרפטווידין אגרוז → אלקטרופורזה של חלבונים וכתמים מערביים.
- ביוטינילציה של חלבוני פני השטח האפיקליים בחמישה מסננים של 24 מ"מ (טבלה 2: דגימות a-d) בהתאם להליך המתואר בבדיקה האנדוציטית (סעיף 3.1-3.6).
- בחדר הקירור, הניחו בצלחת חדשה שני פילטרים (טבלה 2: דגימות a ו-b), הוסיפו ~2 מ"ל של PBS++, pH 8.2 לצד האפיקלי והבסיסי ושמרו בחדר הקירור.
- שמור את 3 המסננים הנותרים בצלחת אחת (טבלה 2: דגימות c ו-d) עם ~2 מ"ל של PBS++ pH 8.2 בצד האפיקלי והבסיסי של כל מסנן. הניחו את הצלחת עם פילטרים c ו- d על קרח והביאו לספסל מחוץ לחממה של 37 מעלות צלזיוס.
- העבירו מסננים במהירות מהצלחת על הקרח לצלחת המלאה ב-PBS++ pH 8.2 מחומם מראש בחממה ושמרו למשך 5.0 דקות.
- במהלך הדגירה מלאו 3 בארות של הצלחת על קרח בקור (4 מעלות צלזיוס) PBS++ pH 8.2.
- העבירו מסננים לאחר הדגירה של 5.0 דקות בטמפרטורה של 37 מעלות צלזיוס לצלחת על קרח. תן ל-PBS++ pH 8.2 הקר לעלות על גדותיו של הצד האפיקלי ולכסות את כל פני השטח של כל מסנן במהירות.
- הביאו את הצלחת על קרח לחדר הקירור והניחו על הספסל.
- שאבו את PBS++ pH 8.2 משני צידי המסננים a, b, c ו-d והוסיפו 1 מ"ל של PBS++ pH 8.6 לצד הבסיסי.
- שמור על מסננים a ו-b בנפרד מהמסננים c ו-d. הוסף 1 מ"ל של PBS++ pH 8.6 לצד האפיקלי של המסננים a ו-b.
- צמצם את הקשר הדיסולפיד בביוטין שנותר על פני התא במסננים b, c ו-d בעקבות ההליך המתואר בבדיקה האנדוציטית (שלבים 3.13-3.15).
- שטפו את המסננים b, c ו-d לזמן קצר עם PBS++ pH 8.2 2x והחליפו ב-PBS++ טרי, pH 8.2. הניחו פילטרים d בצלחת חדשה והביאו קרח למשטח הספסל מחוץ לחממה של 37 מעלות צלזיוס.
- העבירו במהירות מסננים מהצלחת על הקרח לצלחת בחממה המלאה ב-PBS++ pH 8.2 מחומם מראש ודגרו מסנן אחד כל אחד בדיוק למשך 2.5 או 5.0 דקות כמתואר לעיל בשלבים 4.4-4.9.
- צמצם את קשר הדיסולפיד בביוטין המחובר לחלבוני הממברנה האפיקלית עם מאגר ה-GSH לאחר הדגירה השנייה ב-37 מעלות צלזיוס במסננים d כמתואר ב-4.4, למעט שרק שלוש דגירות של 15 דקות עם מאגר ה-GSH יבוצעו במהלך שלב זה. שמור את המסננים a, b ו-c ב-PBS++ pH 8.6 בצד האפיקלי והבסיסי במהלך שלב זה.
- עבור ליזיס התאים, וכתמים מערביים, עקוב אחר ההליכים המתוארים בבדיקה האנדוציטית (שלבים 3.16-3.31).
תוצאות
אנדוציטוזה של CFTR נחקרה בתאי CFBE41o- שגודלו על מסננים מצופים בקולגן (איור 1). CFTR ביוטינילי נדגם באמצעות western blotting עם נוגדן מונוקלונלי לעכבר, clone 596, ונוגדן anti-mouse horseradish peroxidase באמצעות מערכת גילוי של western blotting ולאחריה כימילומינצנציה. כימות של CFTR ביוטינילי בוצע באמצעות דנסיטומטריה תוך שימוש בחשיפות בתוך הטווח הדינמי הליניארי של הסרט. אנדוציטוזה של CFTR חושבה לאחר הפחתת הרקע והובעה כאחוז ה-CFTR הביוטינילי בכל נקודת זמן לאחר חימום ל-37 ºC בהשוואה לכמות ה-CFTR הביוטינילי שנמצא בזמן אפס (איורים 1A ו- 1B). אנדוציטוזה של CFTR הייתה ליניארית בין 0-7.5 דקות. ניסויים שבהם רקע ה-CFTR היה >10% נפסלו בשל טיפול לא יעיל ב-GSH (איור 1D).
מיחזור של CFTR נלמד בתאי HEK293 שגודלו בצלחות תרבית רקמה מצופות קולגן (איור 2). אנדוציטוזה של CFTR הייתה ליניארית בין 0.0-5.0 דקות והגיעה לשיא בנקודת הזמן של 5.0 דקות (איור 2A), ולכן התאים דגרו בטמפרטורה של 37 ºC למשך 5.0 דקות כדי להעמיס חלבונים בביוטין, כולל CFTR, לתוך וסיקולות אנדוציטיות (איורים 2B ו- 2C). מיחזור של CFTR שעבר אנדוציטוזה חושב כהפרש בין כמות ה-CFTR המסומן בביוטין לאחר הטיפול הראשון והשני ב-GSH.
טבלה 1. בדיקות אנדוציטוזה.
| אנדוציטוזה | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| דגימה | a | b | ג2.5 | ג5.0 | ג'7.5 | נראה כי השארת רק את האות "c". אנא ספק את הטקסט המלא באנגלית שברצונך לתרגם, ואשמח לבצע עבורך את התרגום המקצועי לעברית בהתאם להנחיות.10.0 |
| ביוטין | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 דקות | 5.0 דקות | 7.5 דקות | 10 דקות |
| GSH | (-) | + | + | + | + | + |
טבלה 2. בדיקת מיחזור.
| מיחזור | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| דגימה | a | b | ג | ד2.5 | ד5.0 |
| ביוטין | + | + | + | + | + |
| 37 ºC ראשון | (-) | (-) | 5 דקות | 5 דקות | 5 דקות |
| GSH ראשון | (-) | (-) | + | + | + |
| 37 ºC שניים | (-) | (-) | + | + | + |
| GSH שני | (-) | (-) | (-) | 2.5 דק׳ | 5 דקות |
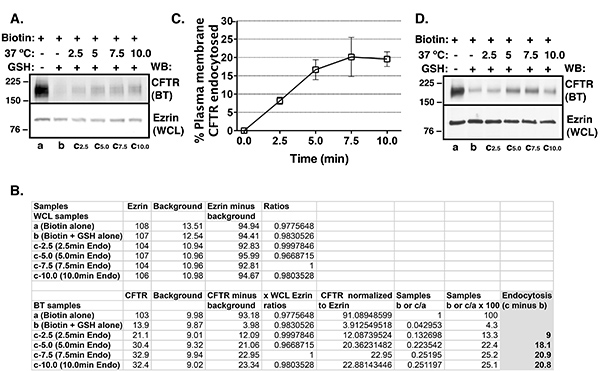
איור 1. סיכום של בדיקות אנדוציטוזה שבוצעו כדי לקבוע אנדוציטוזה של CFTR בתאי CFBE41o- . התאים תורגדו על מסננים מצופים בקולגן. Western blots מייצגים (A), ערכי דנסیتומטריה מייצגים (B) וסיכום ניסויים (C) המדגימים אנדוציטוזה של CFTR כפונקציה של זמן. ביוטינילציה סלקטיבית של פני השטח של התא ו-Western blotting שימשו לקביעת השפעות של CFTR בממברנה הפלזמית. שפעות החלבון כוונטה על ידי דנסیتומטריה באמצעות חשיפות בתוך הטווח הדינמי הליניארי של הסרט. בזמן אפס, כמות ה-CFTR הביוטינילי (BT) נחשבה ל-100% (Table 1: דגימה a). בזמן אפס, כמות ה-BT CFTR שנותרה לאחר טיפול ב-GSH נחשבה לרקע של CFTR (דגימה b; שימו לב שזהו רקע שונה מזה שהופחת מכל הדגימות כפי שמוצג ב-Figure 1B). רקע ה-CFTR היה 6.7 ± 0.9% (ממוצע ± S.E.M.) בניסויים שנכללו בניתוח. רקע ה-CFTR הופחת מה-BT CFTR לאחר חימום של 2.5, 5.0, 7.5 או 10 min ב-37 ºC (דגימות c פחות דגימה b). אנדוציטוזה של CFTR בוטאה כאחוז ה-CFTR שנותר ביוטינילי בנקודות הזמן 2.5, 5.0, 7.5 או 10 min לאחר הפחתת רקע ה-CFTR. אנדוציטוזה של CFTR הייתה ליניארית בין אפס ל-7.5 min. שפעות של Ezrin בליסאט של תא שלם (WCL) שימשה כבקרת טעינה. 4 ניסויים/קבוצה. ניסויים שבהם רקע ה-CFTR היה >10% הוצאו מהניתוח עקב טיפול לא יעיל ב-GSH (D). כמות ה-CFTR הביוטינילי בבקרת ה-GSH (דגימה b) בניסוי שהוצא הייתה 14.5%.
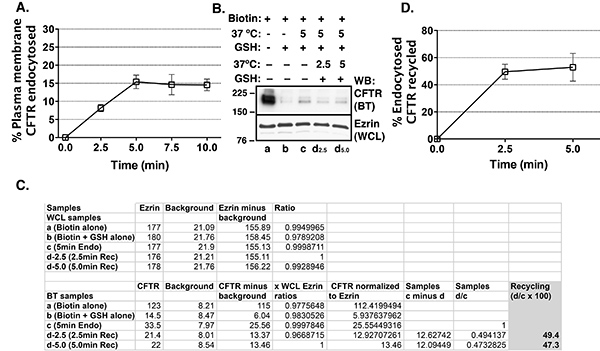
איור 2. סיכום של בדיקות אנדוציטוזה ומיחזור שבוצעו בתאי HEK293 המבטאים CFTR באופן יציב. תאים תורבדו בצלחות תרבית רקמה מצופות קולגן. סיכום נתונים המדגים כי האנדוציטוזה של CFTR הייתה ליניארית בין 0-5 דקות (A). לפיכך, בבדיקות המיחזור, שלפוֹליקוטיב אנדוציטוטיות נטענו בחלבוני ביוטין (BT), כולל CFTR, על ידי חימום ל-37 ºC למשך 5 דקות. שפע החלבון נמדד בדנסיטומטריה באמצעות חשיפות בטווח הדינמי הליניארי של הסרט. וסטרן בלוט מייצג (B), ערכי דנסיטומטריה מייצגים (C), וסיכום ניסויים (D) המדגימים את מיחזור CFTR כפונקציה של זמן. בזמן אפס, כמות ה-BT CFTR נחשבה כ-100% (טבלה 2: דגימה a). בזמן אפס, כמות ה-BT CFTR שנותרה לאחר טיפול ב-GSH נחשבה כרקע של CFTR (דגימה b; שימו לב כי זהו רקע שונה מזה שהופחת מכל הדגימות כפי שמוצג ב-C). ניסויים שבהם רקע ה-CFTR היה >10% נפסלו בשל טיפול GSH לא יעיל. שלפוֹליקוטיב אנדוציטוטיות נטענו בחלבוני BT, כולל CFTR, על ידי אינקובציה ב-37 ºC למשך 5 דקות, ואחריה טיפול ב-GSH כדי לנתק את הביוטין מחלבונים שנותרו בממברנת הפלזמה (דגימות c ו-d). כמות ה-BT CFTR לאחר חימום של 5 דקות ב-37 ºC ולאחריו טיפול ב-GSH מייצגת CFTR שעבר אנדוציטוזה (דגימה c). בעקבות חימום של 5 דקות ב-37 ºC והטיפול הראשון ב-GSH, התאים חוממו שוב ב-37 ºC למשך 2.5 או 5.0 דקות כדי לאפשר לחלבונים שעברו אנדוציטוזה לעבור מיחזור לממברנת הפלזמה, והביוטין על CFTR שמוחזר הופחת על ידי הטיפול השני ב-GSH (דגימות d). בנקודה זו, רק ה-CFTR שלא עבר מיחזור מאנדוזומים לממברנת הפלזמה נותר מביוטין (דגימות d). מיחזור CFTR חושב כהפרש בין BT CFTR לאחר הטיפול הראשון ב-GSH (דגימה c) לבין הטיפול השני ב-GSH ב-2.5 ו-5.0 דקות (דגימות d), והובע כאחוז מה-CFTR שעבר אנדוציטוזה. מיחזור CFTR היה מהיר והגיע למקסימום עד 2.5 דקות. שפע של Ezrin בליזאט של התא השלם (WCL) שימש כביקורת טעינה. 3 ניסויים לקבוצה.
דיון
ההצלחה של בדיקות אנדוציטיות ומיחזור תלויה בביוטינילציה יעילה של CFTR בקרום הפלזמה. יש להכין ביוטין מיד לפני השימוש מכיוון שחלק האסטר של NHS עובר הידרוליזה בקלות והופך ללא תגובתי. יתר על כן, שלב הביוטינילציה דורש בקרת טמפרטורה קפדנית בטמפרטורה של 4 מעלות צלזיוס כדי לעצור את הסחר בחלבון. אם הטמפרטורה עולה במהלך שלב הביוטינילציה מעל 4 מעלות צלזיוס, עלול להתרחש סחר חלבון וכתוצאה מכך ביוטינילציה של כמויות משתנות של CFTR.
הצלחת הבדיקות האנדוציטיות והמיחזור תלויה גם בהפחתה יעילה של קשר הדיסולפיד ב-CFTR הביוטיניל שנותר בקרום הפלזמה. כמות ה-CFTR שנותרה ביוטינילציה לאחר הטיפול ב-GSH צריכה להיות <10% מסך ה-CFTR הביוטיני בזמן אפס. יש לשלול ניסויים שבהם כמות ה-CFTR הביוטיניל היא >10% בדגימת הביקורת של GSH. איור 1D מדגים ניסוי "כושל" שבו כמות ה-CFTR הביוטיניל בביקורת ה-GSH הייתה 14.5%. הפחתה לא מספקת של קשר הדיסולפיד ב-CFTR הביוטיניל עשויה להיות משנית לשליטה לקויה בטמפרטורה במהלך הניסוי. אם הטמפרטורה עולה במהלך הטיפול ב-GSH מעל 4 מעלות צלזיוס, עלולה להתרחש סחר חלבון וה-CFTR הביוטינילטיבי האנדוציטוזי כתוצאה מהעלייה הלא מכוונת בטמפרטורה יגדיל את ה-CFTR ברקע. לחלופין, הפחתה לא מספקת של קשר הדיסולפיד ב-CFTR הביוטיניל עלולה לנבוע מירידה במחצית החיים של GSH בתמיסה מימית הנגרמת על ידי חמצון באוויר או מ-pH לא מתאים. כפי שנקבע בעבר, GSH נשאר חזק ב-pH 8.64. מניסיוננו, שישה טיפולים של 15 דקות עם מאגר GSH הפחיתו את קשר הדיסולפיד ביותר מ-90%, ביעילות רבה יותר מטיפול אחד של 90 דקות.
תרבית התאים דורשת תשומת לב מיוחדת. ביוטין צריך להגיע לתחום קרום הפלזמה בתאים שלמים שבהם מתבטא החלבון המבוקש. השתמשנו במבחנים אנדוציטיים ומיחזור מבוססי ביוטינילציה כדי לחקור אנדוציטוזיס ומיחזור של CFTR המתבטא בתחום הממברנה האפיקלית. בדיקות אלה עשויות לשמש גם לחקר סחר אנדוציטי של חלבונים הממוקמים בתחום הממברנה הבסיסית בתאים שגודלו על תומכי גדילה חדירים למחצה. תאי אפיתל היוצרים רב-שכבות אינם מתאימים לבדיקות אלה מכיוון שמאגרי ביוטין ו-GSH יגיעו רק לשכבה העליונה של התאים כדי לזהות את חלבוני הממברנה האפיקלית או לשכבה התחתונה כדי לזהות את חלבוני הממברנה הבסיסית. תאי אפיתל שגודלו על פלסטיק עשויים להיות מועדים יותר להישטף במהלך הבדיקות. אובדן אקראי של תאים במהלך הניסוי יפגע בתוצאות. אנו ממליצים על בדיקה תקופתית של שלמות החד-שכבתית תחת מיקרוסקופ בניסויים בהם מגדלים תאים בכלי תרבית רקמה פלסטיים. ציפוי כלי תרבית רקמה בקולגן עשוי להגביר את היצמדות התאים.
יש לבדוק באופן שגרתי את דגימות החלבון הביוטיניות לאיתור זיהום בחלבונים תוך-תאיים. זיהוי חלבונים תוך-תאיים בדגימות החלבון הביוטיניל עשוי להצביע על שטיפה לא מספקת של קומפלקסי החלבון סטרפטווידין אגרוז-ביוטינילציה לאחר הדגירה עם WCL. לפיכך, הצעד הראשון הוא להגביר את יעילות הכביסה. יתר על כן, נוכחות של תאים עם שלמות קרום פלזמה שנפגעה תאפשר גישה של ביוטין לחלבונים תוך-תאיים. ניתן להשתמש בכתמים מערביים לחלבון המתבטא אך ורק בתא תוך-תאי כגון הרטיקולום האנדופלזמי כדי לזהות ביוטינילציה של חלבונים תוך-תאיים. לחלופין, ניתן להשתמש בחלבוני שלד ציטו כגון אקטין או אזרין לבדיקת זיהום של דגימות החלבון הביוטיניל בחלבונים תוך-תאיים. חלבוני שלד תא עשויים ליצור קומפלקסים עם חלבונים טרנסממברניים וכמויות קטנות של חלבוני השלד הציטו עשויות להתגלות בדגימות החלבון הביוטיניליות. עם זאת, מניסיוננו, היחס בין אזרין ביוטיניל/WCL או אקטין הוא <1:1,000 ולכן חלבונים אלה מתאימים לקביעת שלמות קרום התא במבחנים מבוססי ביוטינילציה.
ניתן להרוות את תגובת הביוטינילציה עם גליצין או טריס כדי להסיר מגיב ביוטינילציה שאינו מגיב כפי שדווח בעבר17. יתר על כן, ניתן להרוות GSH עם יודואצטמיד6. מניסיוננו, ניתן להסיר ביעילות את המגיב הביוטינילציה וה-GSH על ידי שטיפה עדינה עם PBS++ ללא שימוש בריאגנטים מרווה.
הבחירה בסטרפטווידין לעומת ניוטרווידין אגרוז לבידוד קומפלקסי החלבון הביוטיניל צריכה להיקבע על בסיס כל מקרה לגופו. מניסיוננו, סטרפטווידין אגרוז מספק בידוד יעיל של קומפלקסי החלבון הביוטיניים עם קשירה מינימלית של חלבונים שאינם ביוטיניליים, בניגוד לאגרוז הנויטרווידין שבו הקישור הלא ספציפי מתרחש ברמות המפריעות לתוצאות הבדיקה (תצפית שלא פורסמה).
גילויים
המחברים מצהירים שאין להם אינטרסים פיננסיים מתחרים.
תודות
מחקר זה נתמך על ידי מענקי המכונים הלאומיים לבריאות של ארה"ב (NIH) R01HL090767, R01HL090767-02S1, P30 DK06010, ומענק הכיוון החדש של קרן NepCure (ל-A.S.-U).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| CFBE41o- התייחסות לתאי | 10,11,13,14,15 | ||
| >HEK293 התייחסות | 13 | ||
| מדיום חיוני מינימלי (MEM) | Gibco | 11095 | |
| L-גלוטמין | Cellgro | 25-005-CL | |
| פניצילין | סיגמא | P0781 | |
| סטרפטומיצין | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol קולגן בקר פתרון ריאגנטים | |||
| s פוספט בופר מלח (PBS) | Gibco | 14190 | |
| סידן כלורי | Sigma | C3306 | |
| מגנזיום כלוריד | Sigma | M2670 | |
| נתרן כלורי | Sigma | S3014 | |
| EZLink סולפו-NHS-SS-ביוטין | פירס | 21331 | |
| L-גלוטתיון מופחת (GSH) | Sigma | G6529 | |
| שרף סטרפטווידין-אגרוז | תרמו פישר | 20353 | |
| נתרן הידרוקסיד | סיגמא | 224165 | |
| סרום בקר עוברי | Gemini Bioscience | 100-106 | |
| Milli-Q מים | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| גליצרול | FisherScientific | G33 | |
| Laemli מאגר דגימה | BioRad | 161-0737 | |
| דיתיותרייטול (DTT) | סיגמא | 646563 | |
| פרוטאז מלא קוקטייל מעכב | רוש | 1697498 | |
| חרוזי סטרפטווידין | תרמו מדעי | 20353 | |
| כימילומינסנציה | פרקין אלמר | NEL104001EA | |
| ריאגנטים | |||
| חלב יבש ללא שומן | ציפורן | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Tris-buffered מלח (TBS) | BioRad | 170-6435 | |
| אלבומין סרום בקר (BSA) | Gibco | 15120 | |
| ראשוני ומשני | |||
| נוגדנים ל-Western Blotting | |||
| Mouse מונוקלונלי אנטי-CFTR 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin | |||
| מאגר הפעלה 10x | BioRad | 161-0772 | |
| מאגר העברה 10x ( ללא SDS) | BioRad | 161-0771 | |
| מתנול | פישר | A4129 | |
| מונה קולטר | בקמן קולטר | Z1Coulter מונה | |
| תא סטנדרטי ציוד | |||
| קולט אדים לתרבית תאים עם אור | |||
| צלוחיות מלאי | |||
| מסנני Transwell-24 מ"מ | קורנינג | 3412 | |
| 4 ס"מ כלי | |||
| מד | |||
| 15 מ"ל ו-50 מ"ל צינורות חרוטיים | |||
| 1.5 מ"ל צינורות | |||
| גומי | |||
| חדר | |||
| דליי קרח וקרח | |||
| 27 גרם מחטים | |||
| 37 º C אינקובטור | |||
| מדחום | |||
| צנטריפוגה | |||
| מקוררת | |||
| אלקטרופורזה | |||
| סרט | מפתח | ||
| תוכנת Millipore | IPVH00010 | ||
| ImageJ | NIH |
מקורות
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
הדפסות חוזרות והרשאות
