מטרת פרוטוקול זה היא להשתמש בטיטרציות חמצון חיזור המנוטרות על ידי תהודה פרמגנטית אלקטרונית (EPR) כדי לזהות קופקטורים שונים של Saccharomyces cerevisiae Nar1. טיטרציות חמצון חיזור מציעות דרך חזקה מאוד להשיג פוטנציאל נקודת אמצע של קופקטורים פעילים שונים של חמצון חיזור באנזימים וחלבונים.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
במאמר זה
סיכום
תקציר
אלקטרונים פאראמגנטיים תהודה (EPR) במעקב titrations חיזור הוא שיטה רבת עוצמה כדי לקבוע את פוטנציאל נקודת האמצע של קו-פקטורים בחלבונים ולזהות ולכמת את הקו-הפקטורים במדינת חיזור לזיהוי.
הטכניקה היא משלימה לאלקטרוכימיה הישירה (voltammetry) מתקרבת, כפי שהוא אינו מציע מידע על קצב העברת אלקטרון, אבל אין להקים את מדינת הזהות וחיזור של הקו-הפקטורים בחלבון הנחקר. הטכניקה היא נרחב החלים על כל חלבון המכיל קו-פקטור תהודה מגנטי אלקטרונית (EPR) לזיהוי.
טיטרציה טיפוסית דורשת 2 מיליליטר חלבון עם ריכוז קו-פקטור בטווח של 1-100 מיקרומטר. החלבון הוא טיטרציה עם reductant כימי (dithionite נתרן) או חמצון (ferricyanide אשלגן) על מנת לשמור על שווי משקל המדגם בפוטנציאל מסוים. חוט פלטינה ואלקטרודה התייחסות Ag / AgCl מחוברים לוולטמטר כדי למדוד את הפוטנציאל של פתרון החלבון. סט של 13 מתווכי חיזור שונים משמש לאזן בין הקו-פקטורי חיזור של החלבון ואת האלקטרודות. מדגם הוצא בפוטנציאלים שונים וספקטרום אלקטרונים פאראמגנטיים תהודה, אופייניים לקו-פקטורי חיזור השונים בחלבון, נמדדים. העלילה של עוצמת האות לעומת פוטנציאל המדגם מנותחת באמצעות משוואת נרנסט על מנת לקבוע את פוטנציאל נקודת האמצע של הקו-הפקטור.
מבוא
מה שמדהים הוא התהליכים הכימיים הבסיסיים ביותר לקיום חיים על פני כדור הארץ, פוטוסינתזה, קיבעון ונשימה חנקן זה, הם זרזו ידי קומפלקסי חלבונים גדולים המכילים מגוון רחב של קו-פקטורי חיזור אורגניים ואי-אורגני. הערכה הוא כי כ -30% מכלל החלבונים מכילים קו-פקטורי מתכת אחד או יותר. 1,2 זיהוי ואפיון ניתן להקים הקו-פקטורי חיזור באמצעות אלקטרוכימיה הישירה (למשל, voltammetry סרט חלבון) או titrations חיזור. שתי הטכניקות הן משלימה בטבע ותחולתם. Voltammetry מציע נחישות מהירה של פוטנציאלי אמצע וקינטיקה העברת אלקטרונים של קו-פקטורים שיכולים להגיב עם משטח אלקטרודה. 3,4 בדרך כלל זה עובד היטב עבור חלבוני העברת אלקטרונים, כגון ציטוכרום C או ferredoxin. וזה לפעמים עובד לחלבונים מורכבים יותר, כי כבר משותקים למשטח אלקטרודה. ידע מפורט שלטבעו של קו-פקטורים בחלבון צריך להיות זמין, כvoltammogram לא נותן שום מידע ישיר על זהותו של הקו-הפקטור. titrations חיזור יותר מייגע לבצע ודורש כמויות מ"ג של חלבון. עם זאת, הם מציעים מידע על פוטנציאל נקודת האמצע ואת זהותו של הקו-הפקטור. 5 כמו כן בטיטרציה אחד יכול להיות במעקב קו-פקטורים מרובים בחלבון.
העיקרון של טיטרציה חיזור הוא שהחלבון הפעיל חיזור או האנזים מופחת או חמצון כימי. על מנת לוודא כי הקו-הפקטורים להגיב עם מתווכי חיזור reductant או חמצון משמשים. מתווכי חיזור אלה גם להגיב עם אלקטרודה, כך שהפוטנציאל של הפתרון ניתן למדוד. המתווכים לחצוץ חיזור ולאזן בין הקו-הפקטורים בחלבון ואת האלקטרודה. לאחר כימי poising הפוטנציאל לערך הרצוי, מדגם נמשך ובמהירות קפואה בחנקן נוזלי לAWAIT ניתוח נוסף עם טכניקות ספקטרוסקופיות. ספקטרוסקופיה EPR היא שימושית במיוחד בהקשר זה כפי שהוא יכול לשמש למדידת כמותית מרכזי מתכת פאראמגנטיים או רדיקלים אורגניים.
טיטרציה חיזור יכולה להתבצע בשני כיוונים: מגבוה לנמוכה או גבוה מפוטנציאל של נקודת אמצע נמוך. הבחירה תלויה ביציבות של הקו-הפקטורים במחקר. לעתים קרובות זה חכם להתחיל בפוטנציאל נמוך ולהוסיף חמצון לשלבים להגדיל את הפוטנציאל. זה נקרא טיטרציה חמצוני, והוא מתואר כאן. כאן אנו מראים טיטרציה חיזור של אשכול ברזל-גופרית המכיל חלבון Nar1 מSaccharomyces cerevisiae. חלבון זה מעורב, ככל הנראה כחלבון פיגום, במכונות biosynthetic אשכול ברזל-גופרית cytosolic (מסלול CIA). 6,7
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
1. הכנת תוכנית ההתקנה ופתרונות
- הכן פתרון מאגר המכיל 100 מ"מ טריס, גליצרול 250 מ"מ NaCl ו- 10% ב- pH 8.5. Deaerate החיץ על ידי שטיפה עם ארגון. להציג את החיץ לתא אנאירובי.
- מחלקים את החיץ בשתי מנות. לחלק אחד (חיץ) להוסיף 1 מ"מ DL-dithiothreitol (DTT, M r 154.25 g / mol) ו- L-ציסטאין 1 מ"מ. החלק האחר (חיץ B) אינו מכיל צמצום סוכנים.
- הכן פתרונות חמצון וreductant. הפוך את פתרונות 1 מיליליטר של 2, 20, ו -200 ferricyanide אשלגן מ"מ (FIC, M r 329.26 g / mol) ושל dithionite נתרן (SD, M r 174.11 g / mol) בB. חיץ אנאירובי
- הכן תערובת מתווך כדלקמן:
- להוסיף 160 מיקרומטר של כל אחד ממתווכי חיזור הבאים ו -50 מ"מ NaCl למאגר ב ': N, N, N', N '-p-phenylendediamine -tetramethyl (TMPD, M r 237.17 g / mol, 0 0.276 V "E) , Indophenol 2,6-dichlorophenol(DCIP, M r 290.08 g / mol, E '0 0.217 V), ethosulphate phenazine (PES, M r 334.4 g / mol, E' 0 0.055 V), מתילן כחול (r M 319.85 g / mol, E ' 0 0.011 V), Resorufin (235.17 g / mol, E r M '0 -.051 V), Indigodisulphonate (466.35 g / mol, r M E' 0 -.125 V), 2-1,4-naphtaquinone הידרוקסי ( r M 174.15 g / mol, '0 -.145 V), anthraquinone-2-sulfonate (r M 328.28 g / mol, E' E 0 -.225 V), Phenosafranin (r 322.8 g / mol M, E '0 -.252 V), Safranin O (r M 350.84 g / mol, E '0 -.280 V), אדום ניטראלי (r M 288.8 g / mol, E' 0 -.340 V), viologen נזיל (r 409.4 g / mol M, E '0 -.350 V), וviologen מתיל (M r 257.16 g / mol, E' 0 -.440 V).
- לעטוף את הבקבוק בנייר אלומיניום כדי להגן המתווךים מהאור.
- הכינו 10 מ"ג / מיליליטר S. חלבון cerevisiae מתויג סטרפטוקוקוס Nar1 (181 מיקרומטר, M r 55.2 KDA) בא חיץ Express S. cerevisiae Nar1 בE. coli כחלבון מתויג סטרפטוקוקוס באמצעות וקטור ביטוי pET24A. לטהר את החלבון בתא אנאירובי באמצעות מדיה כרומטוגרפיה דלקת-tactin (רשות השידור) ולטהר באמצעות מערכת טיהור חלבון כמו מטהר תקטע (GE Healthcare).
- הכן את התקנת טיטרציה חיזור בתא אנאירובי כדלקמן:
- חבר אלקטרודה התייחסות Ag / AgCl ואלקטרודה חוט פלטינה לכלי שיט טיטרציה. חבר את שני אלקטרודות למד מתח שיכול למדוד מmV עד V.
- הכנס בר ערבוב קטן.
- הנח את כלי טיטרציה מעל stirrer מגנטי.
- מלא את כלי טיטרציה עם הצפת B, פתרון תערובת מתווך ופתרון חלבון לעד 2 מיליליטר, כלומר לריכוזים סופיים של חלבון 72 מיקרומטר ו -38 מיקרומטר של כלמתווך. הערה: תלוי בריכוז החלבון והמתווך נדרש ריכוזי הסכומים של שלושה הפתרונות צריכים להיות מותאם.
- מערבבים למשך 30 דקות ולעבור על מד המתח.
- הכן 10 צינורות EPR זכוכית קוורץ נקיים. להציג את הצינורות בתא אנאירובי.
- מלא דיואר חנקן נוזלי קטן (בסביבות 200 מיליליטר) עם חנקן נוזלי.
.2 בצע החיזור טיטרציה
- חכה עד שהפוטנציאל של הפתרון הוא יציב. הערה: בפועל זה אומר שהפוטנציאל נסחפים mV פחות מ 1 לדקה.
- רשום את הפוטנציאל שניתן על ידי מד המתח.
- צייר את הדוגמא הראשונה של 200 μl ולהזריק לתוך צינור EPR.
- שווי הצינור עם פקק גומי ולהסיר את הצינור מחדר אנאירובי.
- להקפיא את הצינור בחנקן נוזלי באופן הבא: שים לב! זה צריך להיעשות לאט, אחרת הצינור ישבור.
- ראשון להכניס את tip של הצינור בחנקן הנוזלי.
- חכה עד שניתן לשמוע קול שריקה. הערה: הפעולה זו עשויה להימשך עד 10 שניות.
- לאט לאט להכניס את שאר הצינורית כך שחלק המדגם הוא שקוע באופן מלא.
- הוסף aliquot 1-2 μl קטן של פתרון 2 מ"מ SD לפתרון בכלי טיטרציה להנמיך את הפוטנציאל של הפתרון ל-0.6 V.
הערה: אם יותר מ -10 μl יש להוסיף, לעבור לפתרון מ"מ 20. כפי שקשה מאוד לשמור על שווי משקל לערך פוטנציאלי ספציפי, הערכים בפועל נרשמו על מד המתח כתובים למטה ומשמשים לבניית עקומת טיטרציה. - צייר מדגם כמתואר בשלב 2.3-2.5.
- רשום את הפוטנציאל האמיתי שניתן על ידי מד המתח.
- להוסיף חמצון עד פוטנציאלי גדל בסביבות 50 mV. התחל על ידי הוספת aliquot 1-2 μl קטן של פתרון 2 מ"מ FIC. אם יותר מ -10 μl יש להוסיף, לעבור לפתרון מ"מ 20.
- רשום הוw הרבה של הפתרונות נוספו לו. הערה: זה הכרחי כדי לתקן את דילול מדגם במהלך טיטרציה.
- צייר מדגם כפי שמתואר ב2.3-2.5 הצעדים.
- רשום את הפוטנציאל האמיתי שניתן על ידי מד המתח.
- חזור על שלבים 2.9 ועד 2.12 הטווח הפוטנציאלי מ-0.6 V ל0.2 V כבר מכוסה וכל 10 צינורות EPR מלאים כל אחד עם 200 μl.
הערה: כנפח עם כל נסיגה מצטמצם המיצוב של אלקטרודות עשוי צריך להיות מותאם במגע טוב עם הפתרון ללא התערבות של ערבוב. זה עלול להיות קשה למדוד את הפוטנציאל לאחר נסיגה של המדגם האחרון ולכן הפוטנציאל של מדגם שעשוי להיות פחות מדויק. - לחלופין, לאחסן דגימות EPR קפואות בחנקן נוזלי עד מדידות EPR יכולות להתקיים.
3. דוגמאות כותרות למדוד בעזרת EPR ספקטרוסקופיה וניתוח נתונים
- שיא EPR ספקטרום של שונהדגימות טיטרציה כדלקמן:
- השתמש במשאבת ואקום גבוה לפנות cryostat קוורץ ל< 10 -5 בר.
- לעבור על קירור המים של מגנט EPR. פתח את הזרימה של אוויר היבש דרך חלל EPR.
- הפעל את אספקת החשמל למגנט והמחשב של EPR.
- להפעיל תכנית כיול. הגדר את הפרמטרים המדידה EPR. חבר את cryostat לדיואר הליום הנוזלי. לקרר את החלל ל9-16 ק
- להציג מדגם EPR בחלל. רשום את ספקטרום EPR.
- לזהות את מין EPR שונה ולהשתמש בספקטרום הטוב ביותר לכמת את האותות. להשיג כימות EPR על ידי שילוב כפול של הספקטרום והשוואה עם הספקטרום של נחושת חיצונית פתרון סטנדרטי 10 מ"מ CuSO 4/10 מ"מ HCl / 2 M 4 NaClO. 8
- הפוך את עקומת טיטרציה כדלקמן:
- עלילה משרעת אות EPR בg-ערך שאופייני לסעיףמינים מגנטיים של עניין נגד את הפוטנציאל.
- לשנות את קנה המידה משרעת אות EPR לספינים / קנה מידה מולקולה באמצעות כימות EPR מהשלב 3.2.
- תקן את משרעת האות של כל דגימה לדילול שחל עקב התוספות של חמצון או צמצום סוכן.
- תקן את פוטנציאל פוטנציאל נקודת האמצע של האלקטרודה התייחסות Ag / AgCl.
הערה: אלקטרודת Ag / AgCl ההתייחסות (עם KCl הרווי) יש פוטנציאל נקודת אמצע של 0.194 V לעומת אלקטרודה המימן רגילה (היא) של 25 מעלות צלזיוס. לכן, אם האפשרי על מד המתח קורא בסביבות -0.6 V, הפוטנציאל תוך התייחסות להוא -0.4 V.
- התאם את האות למשוואת נרנסט כדלקמן:
למינים שהם פאראמגנטיים במדינה המופחתת: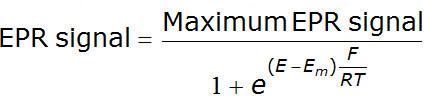
למינים שהם פאראמגנטיים בoמדינת xidized: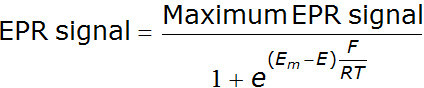
למינים שהם פאראמגנטיים במצב ביניים: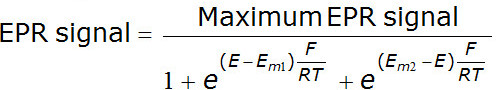
משוואות אלה תקפות לתגובות חמצון-חיזור שבו אלקטרון אחד מועבר, כך n = 1.
E = פוטנציאל בוולט
מ 'E = פוטנציאל נקודת אמצע בוולט
F = פאראדיי קבוע = 96480 C · mol -1
R = הקבוע = 8.314 J גז · K -1 · mol -1
T = הטמפרטורה בקלווין
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
טיטרציה חיזור של אשכול ברזל-גופרית המכיל חלבון Nar1 מSaccharomyces cerevisiae גרמה לזיהויו של קו-פקטורים שונים שלוש: Nar1: אשכול [3Fe-4S], אשכול [4Fe-4S] ומרכז Fe mononuclear (איור 1) . אותות EPR מאופיינים על ידי g-הערכים שלהם: ל[ 3Fe-4S] + g z 2.01, 2.00 גר 'מוצלב (איור 1); ל[ 4Fe-4S] +, z g 2.02 y g 1.93, g x 1.82 (איור ג), ועבור mononuclea...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
הסדרה של 13 מתווכי חיזור מאפשרת שיווי משקל חיזור בפתרון בטווח של -.45 ל0.3 V לעומת SHE (טבלה 1 ואיור 3). ובכן מעל ומתחת פוטנציאלים אלה כל המתווכים הם גם צמצמו לחלוטין או מתחמצנים לחלוטין ולכן אין איזון נוסף עם המרכזים הפעילים חיזור של החלבון יכול להתרחש. זה רעיון חשוב, כמו בספרות titrations לפעמים חיזור מבוצע עם רק שתיים או שלושה מתווכים, המאפשר רק טווח צר שיש למדוד 11. titrations חיזור כזה יהיה רק לתת תוצאות אמינות אם cofactor חיזור יש פוטנציאל נקודת א...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
יש לי המחברים אין לחשוף.
תודות
עבודה זו נתמכה כלכלית על ידי מענק מחקר מהשילוב הלאומי בית ספר מחקר ההולנדי, קטליזה בשליטה כימית עיצוב (NRSC-קטליזה). ד"ר HY Steensma וד"ר GPH ואן Heusden מאוניברסיטת ליידן, מקבלים הכרה על תמיכתם בביטוי רקומביננטי של ס ' cerevisiae Nar1.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אלקטרודה ייחוס (Ag/AgCl) | רדיומטר | ||
| כימיקלים | ספקטרומטר סיגמא-אולדריץ' | ||
| EPR | Bruker | ||
| N,N,N',N' -tetramethyl-p-phenylendediamine (TMPD) · (HCl)2 | 637-01-4 | ||
| 2,6-דיכלורופנול אינדופנול (DCIP), מלח | 620-45-1 | ||
| פנאזין אתוסולפט (PES) | 10510-77-7 | ||
| מתילן כחול | 122965-43-9 | ||
| רסורופין, מלח | 34994-50-8 | ||
| אינדיגודיסולפונאט (אינדיגו קרמין) | 860-22-0 | ||
| 2-הידרוקסי-1,4-נפטקינון | 83-72-7 | ||
| אנתרקינון-2-סולפונאט Na+ H2O | 153277-35-1 | ||
| פנוספרנין | 81-93-6 | ||
| ספרנין O | 477-73-6 | ||
| אדום | 553-24-2 | ||
| בנזיל ויולוג'ן | 1102-19-8 | ||
| מתיל ויולוג'ן | 1910-42-5 |
מקורות
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
