מטרת פרוטוקול זה היא לחשוף מודלים תלת-ממדיים של רקמות הסימפונות והאף האורגנוטיפיים האנושיים לעשן סיגריות מיינסטרים (CS) בממשק אוויר-נוזל. לאחר מכן נחקרת ההשפעה של CS על הרקמות באמצעות בדיקת פעילות ציטוכרום P450, מדידת פעימות ריסים וגישה של ביולוגיה מערכתית.
מאמר שיטה
הערכת השפעה של חשיפה חוזרת ונשנית של דוגמניות תרבות רקמות Organotypic 3D הסימפונות ובאף לעשן סיגריות שלמות
במאמר זה
סיכום
תקציר
לעשן סיגריות יש השפעה רבה על הביולוגיה של הריאות ועלול לגרום להתפתחות מחלות ריאה כגון מחלת ריאות חסימתית כרונית או סרטן ריאות. כדי להבין את המנגנונים הבסיסיים של התפתחות המחלה, חשוב לבחון את ההשפעה של חשיפה לניתוח קיסרי ישירות על רקמות הריאה. עם זאת, גישה זו קשה ליישום במחקרים אפידמיולוגיים מכיוון שדגימת רקמת ריאה היא מורכבת ופולשנית. לחלופין, מודלים של תרביות רקמות יכולים להקל על הערכת השפעות החשיפה על רקמת הריאה. תרביות תאים דו-ממדיות שקועות, כגון תרביות תאי אפיתל סימפונות אנושיות רגילות (NHBE), שימשו באופן מסורתי למטרה זו. עם זאת, לא ניתן לחשוף אותם ישירות לעשן באופן דומה למצב החשיפה in vivo. מודלים של תרביות רקמות תלת מימדיות שפותחו לאחרונה משקפים טוב יותר את המצב in vivo מכיוון שניתן לתרבית אותם בממשק אוויר-נוזל (ALI). הצדדים הבסיסיים שלהם שקועים במדיום התרבותי; ואילו הצדדים הקודקודיים שלהם חשופים לאוויר. יתר על כן, תרביות רקמה אורגנוטיפיות המכילות סוגים שונים של תאים, מייצגות טוב יותר את הפיזיולוגיה של הרקמה in vivo. בעבודה זו, מודגם השימוש במערכת חשיפה חוץ גופית לחשיפת מודלים של רקמות סימפונות ואף אורגנוטיפיים אנושיים לניתוח קיסרי מיינסטרים. תדירות פעימות הריסים והפעילות של ציטוכרום P450s (CYP) 1A1/1B1 נמדדו כדי להעריך את ההשפעות התפקודיות של CS על הרקמות. יתר על כן, כדי לבחון שינויים הנגרמים על ידי CS ברמה המולקולרית, נוצרו פרופילי ביטוי גנים מהרקמות לאחר החשיפה. עלייה קלה בפעילות CYP1A1/1B1 נצפתה ברקמות חשופות ל-CS בהשוואה לרקמות חשופות לאוויר. גישה של ביולוגיה מערכתית מבוססת רשת וטרנסקריפטומיקה הייתה חזקה מספיק כדי להדגים שינויים הנגרמים על ידי CS במטבוליזם קסנוביוטי שהיו דומים לאלה שנצפו בתאי האפיתל של הסימפונות והאף שהתקבלו ממעשנים.
מבוא
הריאות חשופות באופן ישיר וקבוע לאוויר הנשאף שעלול להכיל חומרים רעילים מגוונים כגון מזהמים ומרכיבי עשן סיגריות (CS). חקר ההשפעה של חשיפה לחומרים רעילים אלה על רקמות הנשימה הוא אינפורמטיבי ביותר כאשר הוא נעשה באופן הדומה לחשיפה in vivo. בהשוואה לתרביות תאים דו-ממדיות קלאסיות (למשל, תאי אפיתל סימפונות אנושיים רגילים (NHBE)), מודלים של רקמות אורגנוטיפיות תלת מימדיות מסכמות טוב יותר את ההיבטים המורפולוגיים, הפיזיולוגיים והמולקולריים של אפיתל דרכי הנשימה האנושיות in vivo1,2: מודלי הרקמה התלת מימדיים מכילים את מגוון סוגי התאים שנצפו in vivoכולל תאי אפיתל מובחנים, תאים ריסניים ולא ריסניים, תאי גביע ותאי בסיס., יש להם צמתים הדוקים פונקציונליים ומציגים פנוטיפ רירי 1-3. יתר על כן, ניתן לגדל את התרביות על קרום נקבובי חדיר, בממשק אוויר-נוזל, המאפשר חשיפה ישירה לתרסיס בצד האפיקלי (בעוד שהצד הבסיסי שקוע במדיום תרבית) 3-5. דבוז'ק ועמיתיו דיווחו כי פרופילי ביטוי גנים של מודלים של רקמות סימפונות היו דומים לאלה שהתקבלו מצחצוח סימפונות אנושי 3. בנוסף, מאטיס ועמיתיו הראו כי התגובות של מודלים אלה של רקמות לניתוח קיסרי היו דומות להבדלים שנצפו בין תאי אפיתל סימפונות שהתקבלו ממעשנים לבין תאים שהתקבלו מאנשים שאינם מעשנים 6. לבסוף, מכיוון שניתן היה לתרבת את מודלי רקמת הסימפונות עד מספר חודשים 4,5, הם יכולים לשמש לבחינת ההשפעות של חשיפה ארוכת טווח של פריטי בדיקה.
הערכות ציטוטוקסיות הן פרמטרים נפוצים הנמדדים בעקבות עלבונות כימיים או כדי להעריך את הרעילות של תרכובות או תערובות ספציפיות. לדוגמה, ניתן למדוד את שלמות הממברנה על ידי בדיקה זוהרת ומאפשרת מדידה של השפעה ציטוטוקסית תלוית מינון על תרבית התא 7. עם זאת, כדי להעריך את ההשפעות הפתופיזיולוגיות של תרכובות בריכוזים תת-רעילים, יש למדוד פרמטרים אחרים. לדוגמה, שלמות הרקמות שנקבעה באמצעות בדיקת ההתנגדות החשמלית הטרנס-אפיתליאלית (TEER) מבטיחה את הפונקציונליות של צמתים הדוקים ומנטרת את השיבוש של שכבת האפיתל 8,9. תדירות פעימות הריסים מאפשרת גם מדידה של השפעות הקשורות לניתוח קיסרי על רקמות הנשימה. תדירות פעימות תקינה של רירית הריסים הגובלת בדרכי הנשימה העליונות והתחתונות חשובה להגנה מפני זיהומים בדרכי הנשימה 10. לכל אחד מתאי האפיתל העמודיים הריסים של אפיתל הנשימה יש 200-300 ריסים הפועמים בתדירות מסוימת כדי לחסל גורמים זיהומיים או חומר חלקיקי שנשאף הכלוא בריר המשתחרר על ידי תאי גביע משובצים 11. CS מכיל כימיקלים שעלולים לעכב פעימות ריסניות 12, מה שמוביל להגנה מופחתת על דרכי הנשימה. עבודה זו מראה כי ניתן למדוד פעימות ריסניות במודלים של רקמות אורגנוטיפיות. גישה זו מאפשרת להעריך האם תאי אפיתל מציגים את תפקודם התקין בתרבית הרקמה האורגנוטיפית. CS גם מפעיל תגובות מטבוליזם קסנוביוטיות בדרכי הנשימה כדי לבצע חילוף חומרים של מרכיבי עשן טבק 13. ניתן למדוד את הפעילות של אנזימי חילוף החומרים הקסנוביוטי שלב I, CYP1A1 ו-CYP1B1, של מודלי הרקמות. בנוסף, כפי שדווח בעבר, ניתן למדוד את ביטוי הגנים הגלובלי במודלים של רקמת הסימפונות האורגנוטיפית 6,14,15. גישה של נתונים טרנסקריפטומיים וביולוגיה מערכתית מבוססת רשת ממונפת כדי להעריך את ההשפעה של CS על חילוף החומרים של קסנוביוטיקה 15.
המתודולוגיות המשמשות לחשיפת מודלים אורגנוטיפיים של רקמות סימפונות ואף תלת מימדיות ל-CS מיינסטרים באמצעות מערכת חשיפה חוץ גופית ולמדידת תגובות הרקמה לחשיפה זו בהשוואה לחשיפה לאוויר צח (בקרה) מפורטות כאן.
פרוטוקול
1. תרבות של דגם הסימפונות תרבות רקמות Organotypic
הערה: דגמי רקמה כששבו לנרכשו כמוסיף כי הם מוכנים לשימוש. לחלופין, ניתן לפתח התרבות מהתאים ראשוניים כפי שתוארה לדוגמא על ידי קרפ ועמיתים 16. לאחר קבלת רקמות באריזה סטרילית, תמיד לטפל ברקמות organotypic האנושיות בתנאים סטריליים.
- להוסיף 0.7 מיליליטר של (37 ° C) בינוני assay טרום חימם היטב בכל צלחת 24 גם סטרילי חדש מתחת למכסת המנוע.
- הסר את האריזה של הרקמות מתחת למכסה המנוע, ולהעביר את התרבות מוסיף רקמה לצלחת החדשה שהוכנה על 24 גם (כמתואר בשלב 1.1. לעיל).
- לשמור ותרבות הרקמות בחממה ב 37 ° C (5% CO 2, לחות 90%).
- החלף את המדיום כל 2 ימים.
- במהלך שינוי בינוני, לבחון את הרקמות תחת מיקרוסקופ אור כדי להבטיח שהם הם contaminatiעל-חופשיים וכי אין דליפה של מדיום.
2. עשן סיגריות חשיפה (CS) באמצעות מערכת חשיפה חוץ גופייה ב
- שלושה ימים לפני ניסויי חשיפה, לשטוף את צד הפסגה של תרבית הרקמה עם 200 μl של מדיום התרבות.
- ביום של חשיפה, אם המדידה של מכות הריסים מתוכננת לפני החשיפה, להתמודד עם הרקמות למדידת מכות הריסים כאמור בסעיף 3.
- טרום לחמם את חדר האקלים של במבחנה מערכת חשיפה ואת מודול בסיס טיפוח עד 37 מעלות צלזיוס. מלא את מודול בסיס טיפוח עם 17.5 מיליליטר של מדיום בכל שורה.
- הסר את הרקמות מן החממה ולמקם אותם מתחת למכסה המנוע להעביר מוסיף תרבית רקמה מצלחת התרבות למודול בסיס טיפוח במבחנה מערכת החשיפה. בנוסף, לכסות את מודול בסיס טיפוח עם מכסה זכוכית.
- העבר את הרקמות בתא האקלים של במבחנה התוכנה לחשיפהמ 'לחשיפה לCS הזרם המרכזי.
- אם במבחנה מערכת החשיפה מצוידת בmicrobalance, הגדרת microbalance גביש קוורץ לפני הפעלת החשיפה למדידת חלקיקים בתצהיר בזמן אמת של העשן בגביש קוורץ באמצעות תוכנת microbalance.
- החלף את הגבישים במודולים microbalance מחוברים לכל שורה של מערכת דילול / הפצה.
- חבר את מודול microbalance לתוכנת microbalance. הגדר את קנה המידה של המדידה לאפס בתוכנה.
- לחשוף את הרקמות בהתאם להליך ניסיוני (למשל., כמו באיור 1)
הערה: לפני חשיפה, סיגריות התייחסות (3R4F) מותנות בין 7 ל 21 ימים בתנאים מבוקרים בC ° 22 ± 1 ולחות היחסית של 60 ± 3% לפי תקן ISO 3402 17.- צור עשן סיגריות (לדוגמא., מ3R4F סיגריות) באמצעות מאך עישון קרוסלה 30-portine פי המשטר אינטנסיבי הבריאות בקנדה: מעשן את הסיגריות לאורך קת סטנדרטית, כלומר, כ -35 מ"מ בנשיפת 55 מיליליטר מעל 2 שניות, פעמיים בדקה, וזמן פליטת משאבת 8 שניות.
הערה: במידת צורך, לדלל את CS הזרם המרכזי, כך שהמינון הוא לא רעיל מדי. בתוצאות שדווחו כאן, עשן היה מדולל ל -16% (כרך / כרך). - השתמש 60% humidified-אוויר לדגימות השליטה (חשוף אוויר).
- לחשוף את הרקמות למשך 6-7 דקות (כלומר., סיגריה 1 או חשוף אוויר) במבחנת מערכת החשיפה
- שים את הרקמות בחזרה בחממה ב 37 ° C (5% CO 2, לחות 90%) במשך שעה 1.
- חזור על שלבים 2.7.3 ו2.7.4 שלוש פעמים נוספות.
- צור עשן סיגריות (לדוגמא., מ3R4F סיגריות) באמצעות מאך עישון קרוסלה 30-portine פי המשטר אינטנסיבי הבריאות בקנדה: מעשן את הסיגריות לאורך קת סטנדרטית, כלומר, כ -35 מ"מ בנשיפת 55 מיליליטר מעל 2 שניות, פעמיים בדקה, וזמן פליטת משאבת 8 שניות.
- בסופו של ניסוי החשיפה, לעצור את תוכנת microbalance. התוכנה תיצור קובץ המכיל את כל המדידות יחד עם ייצוג גרפי של תצהיר החלקיקים.
- העבר את גב הרקמות מטיפוח bמודול ASE לצלחת התרבות. הנח את הרקמות בחזרה בחממה ב 37 ° C (5% CO 2, 90% לחות) עד המדידות לנקודתי הקצה השונות בנקודתי הזמן שלאחר החשיפה הספציפית.
3. מדידה של הכאת ריסי
הערה: כמו בכל תכנית ניסיונית (איור 1), ריסי שיא להכות לפני החשיפה ומייד לאחר החשיפה.
- הסר את צלחות תרבית רקמה מן החממה ולהשאיר אותם מתחת למכסת המנוע בRT למשך 30 דקות כדי לייצב את מכות cilia.
- הנח את הרקמות תחת מיקרוסקופ האור מחוברת לתוכנת CiliaMetrix.
- רשום את הסרט והתדירות (בהרץ) של מכות הריסים. מדוד את התדירות כל 3 שניות לדקה 1.
- להחזיר את הרקמות בחזרה לחממה ב 37 ° C (5% CO 2, לחות 90%).
4. Transepithelial חשמל התנגדות מדידה (Teer)
הערה: המדידה של Teer מתבצעת 3 ימים לפני ואחרי 48 שעות חשיפה מתחת למכסת המנוע בתנאים סטריליים באמצעות מקל אלקטרודה (STX-2) מחוברת לvoltohmmeter.
- הוסף 200 μl של תקשורת בתרבות למשטח הפסגה של רקמות הסימפונות אדם.
- הפעל את המכונה EVOMX; לשטוף את האלקטרודה בתמיסת אתנול 70%.
- שטוף את האלקטרודה עם מדיום התרבות.
- מדוד את ההתנגדות (Ω) על ידי החדרת אלקטרודה לתוך המדיום בצד הפסגה של תרבית הרקמה בלי לגעת ברקמה.
- 4.4 חמש פעמים חזור על השלב להשיג מדידות חמישה העתקים.
- לאחר המדידות, בעדינות להסיר את המדיום מן צד הפסגה של תרביות הרקמה באמצעות aspirator.
- להחזיר את תרביות רקמה לחממה בב 37 ° C (5% CO 2, לחות 90%) לculturing.
5. ציטוכרום P450 (CYP) 1A1 / 1B1 פעילויותיוty
- לפני תחילת המחקר, להכין מגיב זיהוי luciferin ידי העברת כל התוכן של הבקבוק של חיץ הכינון מחדש המתאים לבקבוק המכיל הענבר מגיב זיהוי luciferin (על פי הוראות יצרן). חנות aliquots של 2 מיליליטר ב -20 ° C עד למקסימום של 1 חודש.
- בפעם לאחר החשיפה 48 שעות, דגירה הרקמות במשך 48 שעות לאחר חשיפת CS על 37 מעלות צלזיוס.
- לחמם מגיב זיהוי Luciferin לRT.
- דגירה מוסיף רקמה למשך 3 שעות או O / N עם מצע Luciferin-CEE (בדילול בשעת 1:50) במדיום התרבות הבסיסי.
- העברת 50 μl של מדיום תרבות מכל רקמה להכניס לצלחת luminometer לבנה 96-היטב אטומה בRT.
- הוסף 50 μl של מגיב זיהוי luciferin היטב כל אחד ליזום תגובה זורח.
- דגירה את הצלחת על RT במשך 20 דקות.
- קראו את הארה באמצעות luminometer.
הערה:luminometer, להשתמש זמן אינטגרציה של .25-1 שניות לכל גם כקו מנחה.
6. הפקת RNA.
- לפני האיסוף מוסיף רקמת organotypic 3D, להכין 1) קופסא עם קרח יבש, 2) כמות מספקת של להבים (אחד לכל כנס 3D), 3) ללא כלוריד כלוריד סידן ומגנזיום, 4) pipet זכוכית הקר PBS מיליליטר אחד 25, ו -5 מחטים) סטרילי זכוכית לשאיפה.
- צינורות תווית מלאים בחרוזי קרמיקה למאחד דגימות סלולריות מוצקות ולהוסיף 700 μl של Qiazol.
- הפעל מכונה שאיפה.
- לאסוף את הצלחת של מוסיף רקמת organotypic 3D מהחממה.
- לשטוף להכניס כל אחד על הצלחת 3 פעמים עם PBS הקר. בין הכביסות, לשאוב PBS עם מחט הזכוכית. לאחר לשטוף השלישי, לשאוב עם PBS וכיסוי צלחת כדי למנוע התייבשות של הכנס.
- ללהכניס כל אחד מהצלחת, לחתוך את קרום הכנס (שבו להכניס את רקמת 3D מתגורר) עד membrAne מונח ישר על הלהב.
- העברת הרקמה (יחד עם הקרום להוסיף) מהלהב לצינור homogenizing שכותרתו כראוי ולהבריג את המכסה על הצינור, לנער אותו ומערבולת זה.
- להקפיא את המדגם בקרח וחנות יבשים ב -80 ° C או להמשיך לחלץ RNA.
הערה: לפני החילוץ של RNA, לתייג כל הצינורות ועמודות על פי התכנון האקראי (אם קיימים). הכן את כל חומרים כימיים על פי המלצות יצרן ולהוציא דגימות ממקפיא -80 מעלות צלזיוס ולהפשיר אותם על קרח עד שהם הפשירו לגמרי.
- הומוגניזציה
- דגימות Grind עם מאחד מכשיר על 6000 הרץ למשך 45 שניות. חזור אם הדגימות אינן הומוגני כראוי ולהשאיר דגימות במשך 5 דקות על RT.
- להוסיף כלורופורם 140 μl למדגם והמערבולת במשך 10-15 שניות.
- מעביר את supernatant מצינור homogenizing לצינור נעילת שלב ולנער עלthermoshaker למשך 2 דקות ב 1400 סל"ד ו RT.
- בהמשך דגירה דגימות למשך 2 דקות על RT ודגימות צנטריפוגות ב XG 12,000 במשך 15 דקות ב 4 ° C.
- ממטרים RNA, לשטוף, השעיה וטיהור בQIAcube.
- מעביר את השלב מימי העליון בצינור 2 מיליליטר חדש.
- לטעון את כל חומרים כימיים ההכרחיים ברובוט החילוץ על פי גיליון פרוטוקול היצרן, בחר בפרוטוקול המתאים, להגדיר את elution הנפח (30 μl) ולהפעיל את רובוט החילוץ.
- כשהוא סיים הריצה, להסיר את מתאמי הרוטור ולשמור צינורות elution מייד על 4 מעלות צלזיוס לצורך ניתוח נוסף או ב -80 ° C לאחסון ארוך טווח.
- בקרת איכות של RNA הבודד
- לקבוע את כמות RNA המבודד באמצעות קורא UV על פי הוראות יצרן.
- בדוק את האיכות של RNA ושלמות RNA באמצעות microfluidic-ג'ל מבוסס מעבדה על שבב וקורא UV, accOrding להוראות היצרן.
7. Microarray Workflow
הערה: התהליך המתואר להלן יתמקד בשיטה לערכת Affymetrix GeneChip הגבוה תפוקת 3'IVT Express, המשמשת לסינתזת יעד להכלאה על מחסניות ביטוי גנים 'Affymetrix 3 החל מההכנה של RNA לשימוש במתחם מערכת טיפול נוזלית (למשל., פיפטה, דילול, מחלק, או שילוב).
- הכנה
- באקראי דגימות כדי למנוע תופעות אצווה. מספר דגימות מעובד על ידי קבוצות הוא 1-96, כולל (RNA המסחרי אנושי אוניברסלי הפניה) אחד חיובי ושלילי אחת (מים חופשיים RNase) שליטה לכל אצווה.
- התחל סינתזת היעד באמצעות של רנ"א הכל 100 ng ב 3 μl מים RNase חינם. לשל רנ"א הכל 100 ng, משתמש בזמן דגירה 16 שעות.
- RNA הגברה
- הכן את POly-ספייק-בפתרון שליטה על ידי דילול סדרתי של פולי-Stock RNA עם פולי-בקרת דילול מאגר RNA:
- לדילול 1, להכין 2 μl מניות שליטה פולה ב -36 חיץ דילול μl.
- לדילול 2, להכין 2 μl של דילול 1 ב 98 μl של חיץ דילול.
- לדילול 3, להכין 4 μl של דילול 2 ב196 μl של חיץ דילול.
- לדילול 4, להכין 20 μl של דילול 3 ב -180 μl של חיץ דילול.
- לדלל את RNA במים חופשיים RNAse כדי לקבל ריכוז של 33.3 ng / μl.
- הוסף 2 μl של פתרון השליטה הפולה לμl 3 בסך הכל מדגם RNA ישירות בצלחת גם 96. שלב זה מתבצע על ידי מערכת הטיפול הנוזלית.
- הכן את מערכת הטיפול הנוזלית וסינתזת היעד. מקם את הצלחות על הרובוט. מניחים את כל החומרים כימיים הנדרשים ומעבדתי על הסיפון. הרובוט יתחיל את ההליך על ידי הכנת appropriatmastermixes דואר דגירה הדגימות בבלוק האוטומטי PCR נשלט מרחוק.
- ראשית בקרת איכות בדיקה: שליטה על תהליך ההגברה
- אם האיכות של ארנה מקובלת, לבצע את צעד הפיצול על ידי הוספת מדגם זה 8 μl של חיץ 5X פיצול (שלב זה מתבצע על ידי מערכת הטיפול הנוזלית). אחרת, בצע את השלב הקודם מתחיל שוב מRNA. השתמש ארנה מקוטעת מייד או לאחסן ארנה חי ומקוטעת ב -20 ° C (או -70 ° C לאחסון לטווח ארוך).
- לבצע ניתוח בקרת האיכות שנייה על ידי להרים באופן אקראי 12 דגימות בצלחת וμl העברת 1 על המערכת מבוססת ג'ל מיקרופלואידיקה כדי לבדוק את היעילות של הפיצול.
- הכן את POly-ספייק-בפתרון שליטה על ידי דילול סדרתי של פולי-Stock RNA עם פולי-בקרת דילול מאגר RNA:
- הליך הכלאה
- לסרוק ברקודים השבב ולרשום כל דגימה בתוכנה של היצרן בהתאם להוראות.
- מכין את תערובת ההכלאה כלהלן לתגובה אחת ולהוסיף אותו ל -33 μl של ארנה המקוטעת ושכותרתו: 4.2 μl של B2 oligonucleotide השליטה (3nM), 12.5 μl של 20x בקרות הכלאה אוקריוטים, 25 μl של 100% DMSO, 125 μl של חיץ הכלאת 2x ו 50 μl של H 2 O עבור נפח סופי של 216.7 μl
הערה: להכליא, לשטוף ולסרוק בקרות חיוביות ושליליות לפני עיבוד הדגימות. - טרום להרטיב את המערך עם 200 μl של תערובת הכלאה מראש כלולה בערכת הכלאה לשטוף וכתם.
- מניחים את השבב בהכלאה להגדיר תנור על 45 מעלות צלזיוס ו -60 RPM במשך 10 דקות.
- בינתיים, לפגל את הצלחת (המכיל תערובת הכלאת הקוקטייל הסופית) בבלוק PCR ב -99 מעלות צלזיוס למשך 5 דקות ו -45 מעלות צלזיוס למשך 5 דקות.
- הסר את תערובת ההכלאה מראש מהמערך ולהחליף אותו עם 200 μl של יעד קוקטייל הכלאה (מדגם אחד לכל שבב).
- הנח את המערך לhybridization להגדיר תנור ב 45 מעלות צלזיוס למשך 16 שעות (O / N) עם מהירות סיבוב של 60 RPM.
- כביסה וצביעה
- הפעל "fluidics" משורת תפריטי תוכנה. בתיבת הדו-שיח fluidics, בחר במודול של עניין (1 - 4), לאחר מכן בחר את תכנית Prime_450 לכל המודולים. מניחים את צינורות להצפה לשטוף בבקבוק (400 מיליליטר) ולהצפה לשטוף B בבקבוק (200 מיליליטר), כמו גם לMilliQ מים בבקבוק (500 מיליליטר).
- בהמשך לכך, פעל בהתאם להוראות מסך LCD. הרם את המחטים ולמקם את קוקטייל 600 μl כתם 1 (SAPE פתרון Mix) וקוקטייל 600 μl כתם 2 (נוגדן הפתרון Mix) המכיל צינורות microcentrifuge בעמדות מס '1 ומס' 2, ו -900 מערך μl החזקת פתרון חיץ בעמדת המס '3.
- לאחר O / הדגירה N בתנור, לשאוב את הקוקטייל מהשבב ולמלא את microarray עם 250 א הצפת לשטוף μl הקצה את שבב זכות כל מודול, בחר את הפרוטוקול FS450-001 ולהפעיל כל מוDule, לפי הוראות שעל מסך. תהליך זה נמשך 90 דקות.
- ברגע שמסך LCD מציין הודעה "הוצא מחסנית", להסיר את השבב ולבדוק אם יש בועות. אם בועות נמצאות, למלא את המערך כולו עם חיץ מערך אחזקה. החל מדבקות על septa כדי למנוע דליפות בכל הסורק ולנקות את חלון microarray לפני הטעינה בסורק.
- סריקה.
- לחמם את הסורק. טען את השבב לautoloader של הסורק ולהתחיל בסריקה.
הערה: לאחר ~ 12 דקות לכל שבב, קובץ .CEL לכל שבב שנוצר. - בדוק את התמונה וליישר את הרשת (במידת צורך) למקום כדי לזהות את תאי הבדיקה.
הערה: בסיס הנתונים הוגש לArrayexpress (קוד הצטרפות = E-MTAB-1721).
- לחמם את הסורק. טען את השבב לautoloader של הסורק ולהתחיל בסריקה.
ניתוח ביולוגיה 8. מערכות מבוססות רשת להערכת השפעה
- עיבוד נתונים microarray.
הערה: עיבוד נתוניםשיטות ניקוד ד יושמו באמצעות גרסת הסביבה הסטטיסטית R 2.14.- פתח מושב R 18 ולטעון 19, gcrma, וחבילות affyPLM affy המותקנות על ידי הפעלת פקודות: הספרייה (affy)> ספרייה (gcrma)> ספרייה (affyPLM)
- לקרוא קבצי נתונים גולמיים הפעלת הפקודה: data.affybatch <-ReadAffy ("נתיב אל התיקייה שבה מאוחסן קבצי CEL")
- Substract תיקון הרקע ונורמל חמישון ליצור ערכי ביטוי סט הבדיקה שימוש בחבילת gcrma, על ידי הפעלת הפקודה: eset.norm <-gcrma (data.affybatch)
- בקרת איכות.
- צור חלקות השפלה RNA עם הפקודה: deg <-AffyRNAdeg (data.affybatch)
- לחלץ את המקדם של מדרון השפלה RNA הפעלת הפקודה: מדרון = מדרון $ deg
- העלילה מקדם מדרון ולזהות חריגים אפשרי.
- צור חלקות Nuse וRLE הרצת הפקודות הבאות: Pset <-RLE fitPLM (data.affybatch)> (Pset)> Nuse (Pset).
- לזהות אם חלק מboxplots שנוצר הוא חריגים: מערך נחשב חריג אם לפחות 2 מתוך 3 מדדי QC הגדרתו להלן חורג מהמערכים האחרים:
- מדרון מעלות $ הוא שונה ממדרון $ מעלות הממוצע
- עלילת Nuse: מערך נחשב חריג אם הרביעון העליון יורד מתחת 0.95 או אחוזון הנמוך מעל 1.05, כלומר, אם boxplot הוא לגמרי מעל 1.05 או 0.95 לחלוטין מתחת..
- עלילת RLE: מערך נחשב חריג אם החציון של התפלגות RLE הוא גדול יותר מאשר 0.1 או קטן יותר מאשר -0.1. - אם מערך מזוהה כבן סורר, ואז להשליך, ולהתחיל שוב מצעד 8.1.2.
- להתאים מודל ליניארי כללי לנתונים לניגודים הספציפיים של עניין (כלומר., ההשוואות של "טופל" ותנאים "שליטה") שהניבו ערכי P גלם עבור כל בדיקה שנקבעה על microarray, אשר יכול להיות furtהמותאם באמצעותה את הליך Benjamini-הוכברג של חבילת Limma. בחר probeset לגן כדי לשמור על כנציג של הגן לניתוח נוסף, כמתואר ב-20.
הערה: גורם חסימה (צלחת החשיפה) מעיצוב הניסוי טופל במודל לעיבוד נתונים.
- ניתוח מבוסס-רשת.
הערה: השיטה כפי שהיא מתבצעת כאן מתוארת בפירוט באל מרטין et. (בגרסה ביואינפורמטיקה BMC).- עבור כל השוואת pairwise של עניין, להתחיל מהממוחשב (log2-) לקפל שינויים (טיפול לעומת קבוצת ביקורת) עבור כל גן תחת הרשת (משלב 8.2).
- לחשב את מטריצת L חתם Laplacian של הרשת שהוגדרה על ידי L (i, j) = - הסימן (i ~ j) w (i, j) אם יש קצה משקל w (i, j) בין צומת i ו j, L (i, j) = deg (i) היא המידה המשוקללת של i וL (i, j) = 0 אחר. משקל w (i, j) שווה ל -1 אם אני וj נמצא בעמוד השדרה וw (i, j) = 1 / n אם אני הוא צומת עמוד השדרה וj הוא אחד neighb nORS בשכבת הפרוטוקול.
- לחשב את ניקוד עבור עמוד השדרה על ידי f = L3-1L2Tx בי L3 הוא תת-המטריצה של L לבלוטות עמוד השדרה וL2 הוא תת-המטריצה של L שורות שהמתאימות לצומת תעתיק השכבה ועמודה לבלוטות עמוד השדרה
- לחשב את Laplacian, Q חתם, של הרשת שהוגדרה על ידי רשת השדרה שבו כל סימני הקצה הפוכים.
- לחשב את ציון רשות הטבע וגני רשות הטבע וגנים על ידי = fTQf.
- לחשב את רווח הסמך, p-value תמורה קצה עמוד השדרה וp-value תמורה שכבת התמליל.
הערה: (. לדוגמא, הווריאציה הביולוגית בין דגימות בקבוצת ניסוי) בנוסף למרווחי הביטחון של רשות הטבע וגני הציונים, המהווים את השגיאה הניסיונית, סטטיסטיקת לוויה נגזרו לתאר את הספציפיות של רשות הטבע והגנים לציון הביולוגיה תיארה ברשת. משום רשות הטבע והגנים הוא צורה ריבועית של שינויי הקיפול, השונות שלה יכולות להיות מחושבות על בסיס v מתקפל אומדן השינויariances. רווח סמך לאחר מכן נגזר באמצעות משפט הגבול המרכזי. שתי בדיקות תמורה יושמו 21 לפיה ראשון, להערכה אם התוצאות היו ספציפיות לראיות הבסיסיות (כלומר., גן מתקפל שינויים) במודל, שהובילה לP-ערך תמורה (כונה על ידי * O בדמויות כאשר P -value <0.05). שנית, על מנת להעריך האם שכבת "סיבה וההשפעה" של הרשת תרמה באופן משמעותי למשרעת של ההפרעות רשת (כונה על ידי K * בדמויות כאשר P-ערך <0.05). - קחו למשל את הרשת כהושפעה מהטיפול אם רווח הסמך אינו מכיל אפס וp-ערכי שתי תמורה <0.05.
- לחשב את צמתים המובילים אשר מוגדרים כצומת המרכזיים בעמוד השדרה תורמת עד 80% מציון רשות הטבע והגנים.
תוצאות
בתוצאות שתתוארנה להלן, רקמות organotypic היו תאים ראשוניים אדם אפיתל מבודד מעישון בריא,, תורמי קווקזי והיו מחדש באמצעות fibroblasts 15.
הסימפונות 3D ודגמי רקמת האף
בסימפונות מבחנה ומודלי organotypic האף דומה ברמה התאית אפיתל בדרכי הנשימה האנושי (איור 2).
חשיפת CS
הסימפונות Organotypic ודגמי רקמת האף יכולים להיות חשופים שוב ושוב לCS הזרם המרכזי בממשק האוויר הנוזלי. ההליך הניסיון החשיפה לעישון משמש לתוצאות מאוירות כאן מתואר באיור 1.
הקלטה של מכות הריסים
מכות cilia נרשמו ברקמות חשופות האוויר כפי שמודגם בקטעי הווידאו. חשיפת CS הייתה קשורה בהפחתת תדירות מכות הריסים: השיא החזק שנצפה סביב4 הרץ בדמה החשוף ולפני החשיפה לא נצפה יותר לאחר חשיפת CS (איור 3). תדירות מופחתת זה תגרום cilia להכות פחות יעיל להסרת ריר וחומרים מזהמים 22.
מדידה של Teer וCYP1A1 / פעילות 1B1
Teer נמדד 48 שעות לאחר החשיפה האחרונה כדי להבטיח את הרקמה עדיין פונקציונלית. CYP1A1 / 1B1 פעילות גם נמדדה 48 שעות לאחר תום החשיפה כפי שמודגמת באיור 1. ערכי Teer ברקמות חשופות-CS לא היו שונים באופן משמעותי בהשוואה לרקמות חשופות אוויר המאשר כי אין השפעה רעילה לתאים גדולה של עשן בריכוז זה. שבלאחר החשיפה 48 שעות, CYP1A1 / 1B1 פעילות של הרקמות הייתה מעט מוגברת, המצביעה על עלייה צנועה של מנגנון הגנת רקמות בעקבות החשיפה (איור 4).
דו פרופילי ביטוי ומערכות מבוססי רשת גן גישת ology ללמוד את ההשפעה של חשיפת CS על השינוי של חילוף חומרים xenobiotic
רקמות נאספו בנקודות זמן לאחר חשיפה 48 שעות. בהמשך לכך, ניתוח microarray נערך כדי ליצור פרופילי ביטוי גנים של CS- ורקמות חשוף אוויר. השפעה של חשיפת CS על חילוף חומרים xenobiotic נחקרה תוך שימוש בגישה ביולוגיה מערכות מבוסס רשת ממונפת מפרופילי גן-ביטוי וכפי שדווח קודם לכן 15. שימוש בגישה ביולוגיה מערכות מבוסס רשת מראה כי השפעות חשיפת CS ברמה של צמתים עמוד השדרה במודל רשת מטבוליזם Xenobiotic היו בקורלציה יפה בין במבחנה ובמערכי נתוני vivo (איור 5). בניגוד לכך, ברמה של כל שינויים גנטיים-ביטוי אישי, מתאמים עניים נצפו בין במבחנה (CS-חשוף מול חשוף אוויר) וin vivo (מעשנים לעומת הלא מעשנים).
r.within-page = "תמיד"> 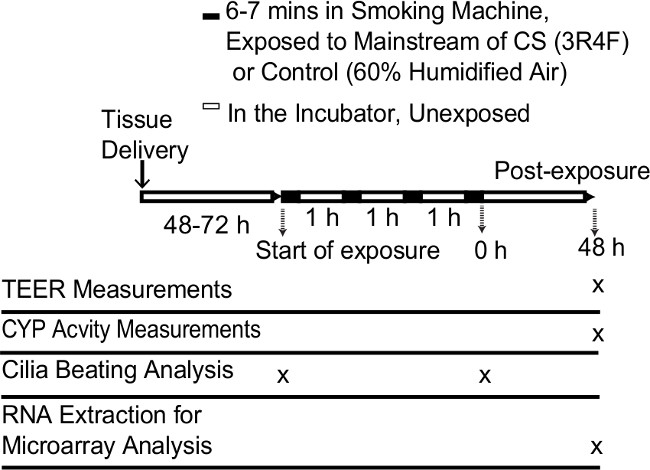
איור 1. הליך סכמטי של החשיפה החוזרת ונשנית של CS לדגמי רקמת הסימפונות organotypic קיצורים:. CYP, P450s ציטוכרום; CS, עשן סיגריות; Teer, התנגדות חשמלית transepithelial.
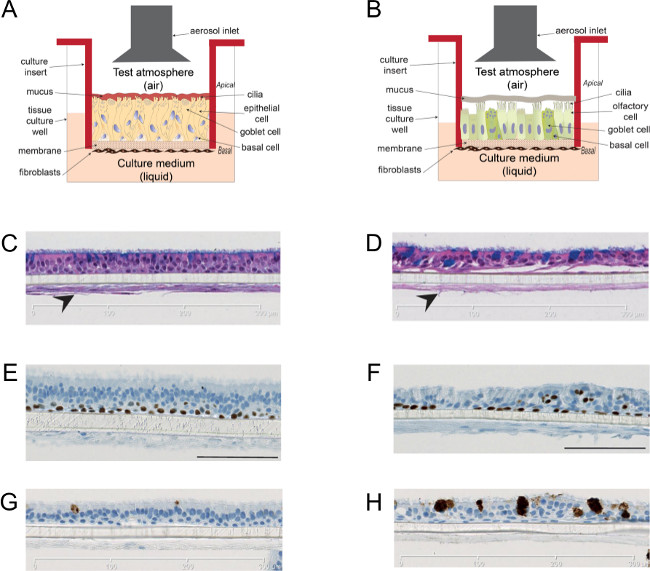
איור 2. Organotypic הסימפונות ודגמי תרבית רקמת האפיתל האף. Cartoon הממחיש את הסימפונות () ולהכניס את תרבות האף רקמה (B) בממשק האוויר נוזלי. המודלים במבחנה הכילו תאי ריסי שמוצגים בשכבת הפסגה של התאים המוכתמים Hematoxylin וEosin (C לסימפונות, D לאף) כפי שדווחו בעבר 15. הדגמים היו שיתוף תרבותי עם fibroblasts שחשוב לצמיחה וההתמיינות של תאי אפיתל (מסומן בחצים). הכתמה של סמני שושלת דרכי הנשימה: p63 (E לסימפונות, F לאף) וMuc5AC (G לסימפונות, H לאף) מוצג כפי שדווח בעבר 15. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
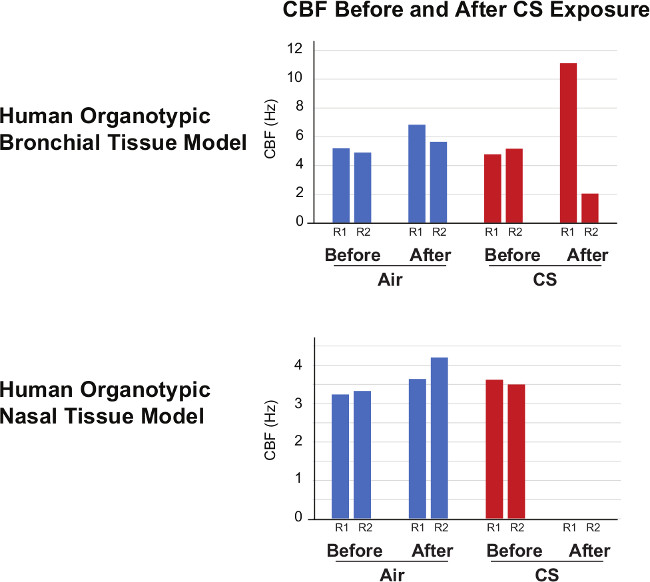
תדירות איור 3. צילה תדר מכות. צילה מכות (CBF) נמדדה בחשוף אוויר ובתרבות לפני ואחרי החשיפה. בירידה בCBF נתפס לאחר חשיפת CS (תוצאות נציג משני להכניס מוצגות כלשכפל 1 (R1) ולשכפל 2 (R2)).
מודעה / 52,325 / 52325fig4.jpg "/>
מדידת איור 4. CYP1A1 / פעילות CYP1B1 וTeer. Pannels השמאל מצביע על פעילות CYP1A1 / CYP1B1 בסימפונות () ודגמי רקמת האף (B). לוחות מימין מצביעים על מדידת Teer בסימפונות (C) ודגמי רקמת האף (D). אמצעי ± SD מוצג. קיצורים: CS, עשן סיגריות; CYP, ציטוכרום P450; Teer, התנגדות חשמלית transepithelial; RLU, יחידת luminescense היחסית.
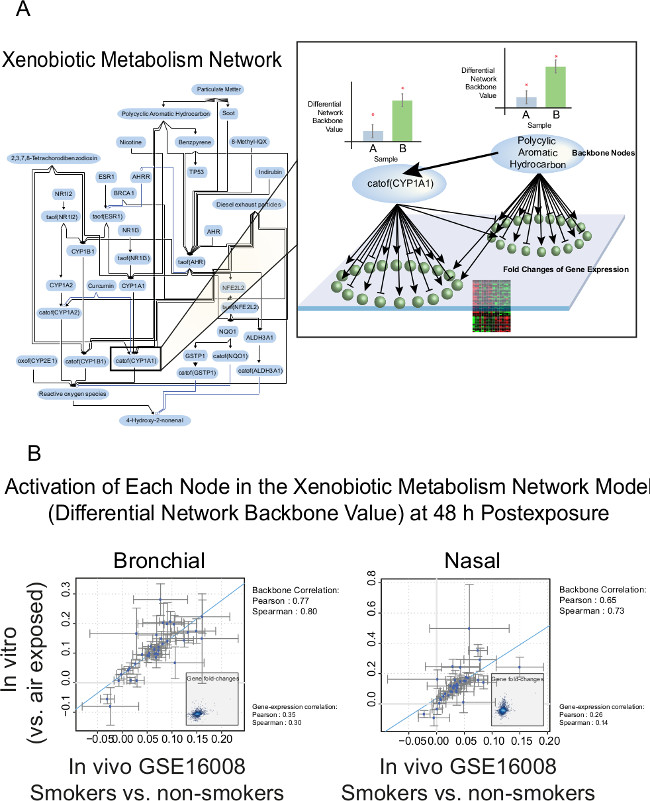
איור 5. גישת מערכות מבוססת רשת ביולוגיה להערכת ההשפעה של חשיפת CS בהקשר של חילוף חומרים xenobiotic. השינויים ברמות ביטוי הגן שמשו לחישוב ההפעלה של צומת עמוד השדרה של מודל רשת Xenobiotic מטבוליזם () strong> כפי שדווח בפרסום קודם 15. הדמות מהימין ממחישה את הרעיון של כימות של בלוטות עמוד השדרה, המכונות גם "ערך עמוד השדרה רשת ההפרש," בגישת רשות הטבע והגנים. האליפסות הכחולות מייצגות את הפעילות של בלוטות עמוד השדרה (כלומר., השכבה הפונקציונלית) והכדורים הירוקים מייצגים את הביטוי של גנים (כלומר., שכבת תעתיק). השפעות של חשיפת CS ברקמות הסימפונות organotypic (במבחנה, CS-חשופים מול חשוף אוויר) בשעות 48 של postexposure הושווה לאלה של עישון על אפיתל הסימפונות האנושי שנאסף על ידי אפיתל ברונכוסקופיה והאף על ידי burshing חלזוני הנחות (GSE16008 ) (In vivo, מעשנים לעומת הלא מעשנים) (B). ריבועים, מתאם של ביטוי גנים משתנים בין במבחנה ובמערכי נתוני vivo. קיצורים: CS, עשן סיגריות; רשות טבע וגנים, משרעת ההפרעות רשת."Target =" ove.com/files/ftp_upload/52325/52325fig5large.jpg _ blank "> לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
דיון
הנה, יש לנו הפגנו את תחולתו של הסימפונות organotypic אדם ודגמי רקמת האף על מנת להעריך את ההשפעה של חשיפה חוזרת ונשנית CS. כחלופה לניסויים בבעלי חיים, מספר מערכות חשיפה פותחו להערכות טוקסיקולוגית חשיפת תרסיס במבחנה (לדוגמא., Vitrocell, Cultex, אליס, וכו '). מודולים חשיפה אלה יכולים גם להיות מנוצלים להערכה טוקסיקולוגית של מזהמים באוויר, חלקיקים הנישאים באוויר, חלקיקים, וכו 'במחקר זה, השתמשנו במערכת Vitrocell שיכולים להכיל עד 48 מדגמים שונים בו זמנית, מה שמאפשר לניסויים בקנה מידה גדולים יותר והשתנות נמוכה יותר בין טיפולים. לכל חשיפת תרסיס במבחנה, את הסיכון של זיהום בתרבית הרקמה נשאר סיכון עיקרי להפחתת סיכון שדורש טיפול זהיר של תרביות רקמה בכל הניסויים.
מדידת חלקיקים בתצהיר בזמן אמת על microbalance במהלך הדוארניסוי xposure מאפשר לפקח שמינוני CS שנוצרו ממערכת החשיפה העומדים בציפיות. כדי להבטיח את הדיוק של החלקיקים נמדד בתצהיר, הקמה של מדידת האינטרנט בצורה נכונה לפני החשיפה הוא critial, למשל, הגדרת קנה המידה ל0. בנוסף, בגלל ההבדל בין תחומי microbalance (2 סנטימטר) ו הוספת תרבית רקמה (0.33 סנטימטר 2), ושינינו את החישוב הסופי לאזור של להכניס את התרבות: רק 33% מהתצהיר על microbalance משקפים את התצהיר בפועל בכנס התרבות.
מדידה של Teer לברר פונקציונלי מחסום הדוק צומת ולהעריך שיבוש שכבת האפיתל היא הליך קל יחסית ליישום, שבו אנו מדווחים כאן. עם זאת, מכיוון שמודלי רקמת הסימפונות ואף מכילים תאי גביע ובין מייצרי ריר, כביסה הפסגה צריכה להתבצע לפני שקילת משקל הג Teerurement. הכביסה הפסגה היא קריטית משום שהנוכחות של שכבת הריר וההשתנות של ההטיה פח עובי שלה המדידה של Teer, interferring עם ההשפעה של חשיפת CS. רעיון זה הוא בהסכם עם מה שדווח על ידי Hilgendorf ועמיתים, שבי החדירות של קאקו-2 תאים הושפעו משיתוף culturing עם שורת תאי גביע מייצרי ריר HT29 23. הריר צריך לשטוף לפני מדידת Teer, כי כביסה הפסגה ממש לפני החשיפה עלולה להפריע לתגובות הרקמות לCS. לכן, המדידה מתבצעת שלושה ימים לפני החשיפה, ולא ממש לפני החשיפה.
הראינו כי פעילות CYP1A1 / CYP1B1 ניתן הייתה למדוד מהמודלים תרבות organotypic בעקבות חשיפת CS למרות הפעילות מוגברת בצניעות רק על ידי CS. אות חלשה זה יכול להיות מוגבר על ידי דגירה ארוכה יותר של מצע CYP1A1 / 1B1 (כלומר., luciferin-CEE), למשל ל24 שעות (מידע לא מוצג). אחת המגבלות של מדידת פעילות CYP בעבודה הנוכחית הוא היעדר הנורמליזציה לרמת חלבון CYP או לספירת התאים, אשר יכול להילקח בחשבון למחקרים עתידיים כדי להבטיח שהשינוי בפעילות האנזים אינו מושפע על ידי השינוי של שתי רמת החלבון או ספירת התאים.
אנחנו דיווחו כי חשיפת CS בלמה את הריסים להכות בשני האף ודגמי רקמת הסימפונות. תצפיות דומות נעשו במודלים של יונקים ושאינם יונקים מגוונים 12. לריסים להכות מדידה, על מנת להבטיח כי רקמות מטופלות ומטופלים באופן דומה הוא קריטי, לדוגמא, אם שינוי בינוני מיושם, זה צריך להיות מיושם על כל הדגימות. Sutto ועמיתים דיווחו כי pH השפיע על ריסי היונקים להכות תדירות 24. לפיכך, בעת השוואה בין מכות תדרי תאים שטופלו בcompunds / תערובות שונות, pHהתאמה צריכה להיחשב כדי למזער את ההשתנות של מדידת מכות הריסים. יתר על כן, בטמפרטורה שבי המדידה מתבצעת היא קריטית גם כתדר של מכות ריסי טיפות עם ירידה בטמפרטורה. כדי למזער את השונות כתוצאה מהשינויים אלה, חממת במה עליונה, מצוידים בטמפרטורה, CO 2, ובקרת לחות שימש במחקר זה. למרות זאת, שמו לב שהריסים להכות תדרים ברקמות הסימפונות לאחר חשיפת CS היו משתנים מאוד (כלומר., להגדיל בעלון אחד ולהקטין בעלון האחר), טוענים כי מכות הריסים נכונה מופרעים מאוד לאחר חשיפה. בניגוד לכך, אנו נצפו היעדר תדרי מכות הריסים מדידים ברקמת האף לאחר חשיפת CS, המצביע על כך התגובה של רקמות האף היא יותר רגישה ועקבית. זה בהסכם עם פרסום קודם שהראה כי יש לו את רקמות האף קיבולת נמוכה כדי לטהר כלעומת הסמפונות 25.
לבסוף, הראינו כי ביטוי גני פרופיל מסימפונות organotypic ודגמי רקמת האף נחשפו לCS יכול להדגים השפעה של CS על חילוף חומרים xenobiotic. מעניין לציין, כי השינוי שנצפה בחילוף חומרי xenobiotic בסימפונות organotypic והאף במודלים חוץ גופית החשוף לCS דומה לזה של מצב in vivo במעשנים כפי שנדונו בפירוט רב יותר בפרסום קודם 15. לביטוי גני ניתוחים, שימוש במכשיר רובוטי עושה ניתוח תפוקה גבוהה אפשרי. יתר על כן, טיפול רובוטית אוטומטי מגדיל עוד יותר את העקביות ודיוק של תוצאות ביטוי גנים. עם זאת, אוסף מהיר של דגימות הרקמה היה קריטי כדי למנוע השפלה RNA במהלך הפקת RNA. עיבוד RNA וגישות transcriptomic המתואר כאן יכולים להיות מיושמים גם לדגימות רקמת in vivo.
גילויים
מחקר זה מומן על ידי פיליפ מוריס אינטרנשיונל.
תודות
המחברים מבקשים להודות למוריס סמית 'ומריה Talikka לעיונם של כתב היד.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| MucilAir-פיברובלסטים אנושיים-ברונכיה | Epithelix Sá rl, ז'נבה, שוויץ | http://www.epithelix.com/content/view/122/19/lang,en/ | |
| MucilAir Culture Medium | Epithelix Sá rl, ז'נבה, שוויץ | http://www.epithelix.com/content/view/84/16/lang,en/ | |
| VITROCELL | VITROCELL systems GmbH, Waldkirch, גרמניה | http://www.vitrocell.com/index.php?Nav_Nummer=2&R = | |
| 3R4F סיגריית ייחוס | אוניברסיטת קנטקי | http://www2.ca.uky.edu/refcig/ | |
| מכונת עישון קרוסלה 30 יציאות SM2000 | פיליפ מוריס, Int. | ||
| מצלמה ותוכנה של CiliaMetrix | La Haute É cole de Gestion (HESGE), ז'נבה, Switzlerland | ||
| Leica DMIL מיקרוסקופ | Leica, Heerbrugg, שוויץ | ||
| מקור אור LED | Titan Tool Supplies, באפלו, ניו יורק | ||
| אלקטרודה צ'ופסטיק STX-2 | מכשירי דיוק עולמיים | http://www.wpiinc.com/products/physiology/stx2-chopstick-electrode-set-for-evom2/ | |
| EVOMXTM Epithelial Voltohmmeter | World Precision Instruments | http://www.wpiinc.com/products/physiology/evom2-evom2-epithelial-voltohmmeter-for-teer/ | |
| מגיב לזיהוי לוציפרין | |||
| מכשיר MagNA Lyser | רוש | http://www.roche.com/products/product-details.htm?region=us&type=product&id=66 | |
| כלורופורם | סיגמא-אולדריץ' | http://www.sigmaaldrich.com/catalog/product/sial/288306?lang=en®ion= | |
| QIAcube | Qiagen | 9001882 | |
| NanoDrop | Thermo Scientific | http://www.nanodrop.com/ | |
| Agilent 2100 Bioanalyzer | Agilent | http://www.genomics.agilent.com/en/Bioanalyzer-System/2100-Bioanalyzer-Instruments/?cid=AG-PT-106 | |
| Affymetrix GeneChip תפוקה גבוהה 3' ערכת IVT Express | Affymetrix | http://www.affymetrix.com/catalog/prod370001/AFFY/High-Throughput-(HT)-Whole-Transcript-(WT)-Kit | |
| Scanner 3000 7G | Affymetrix | http://www.affymetrix.com/catalog/131503/AFFY/Scanner-3000-7G |
מקורות
- Pezzulo, A. A., et al. The air-liquid interface and use of primary cell cultures are important to recapitulate the transcriptional profile of in vivo airway epithelia. American Journal of Physiology - Lung Cellular and Molecular Physiolog. 300, L25-L31 (2011).
- Pampaloni, F., Reynaud, E. G., Stelzer, E. H. The third dimension bridges the gap between cell culture and live tissue. Nature reviews Molecular cell biolog. 8, 839-845 (2007).
- Dvorak, A., Tilley, A. E., Shaykhiev, R., Wang, R., Crystal, R. G. Do airway epithelium air–liquid cultures represent the in vivo airway epithelium transcriptome. American journal of respiratory cell and molecular biolog. 44, 465(2011).
- Wiszniewski, L., et al. Long-term cultures of polarized airway epithelial cells from patients with cystic fibrosis. American Journal of Respiratory Cell and Molecular Biolog. 34, 39-48 (2006).
- Balharry, D., Sexton, K., BéruBé, K. A. An in vitro approach to assess the toxicity of inhaled tobacco smoke components: nicotine, cadmium, formaldehyde and urethane. Toxicolog. 244, 66-76 (2008).
- Mathis, C., et al. Human bronchial epithelial cells exposed in vitro to cigarette smoke at the air-liquid interface resemble bronchial epithelium from human smokers. Am J Physiol Lung Cell Mol Physio. 304, L489-L503 (2013).
- Cho, M. -H., et al. A bioluminescent cytotoxicity assay for assessment of membrane integrity using a proteolytic biomarker. Toxicology in Vitr. 22, 1099-1106 (2008).
- Stewart, C. E., Torr, E. E., Mohd Jamili, N. H., Bosquillon, C., Sayers, I. Evaluation of Differentiated Human Bronchial Epithelial Cell Culture Systems for Asthma Research. Journal of Allerg. 2012, 11(2012).
- Blume, L. F., Denker, M., Gieseler, F., Kunze, T. Temperature corrected transepithelial electrical resistance (TEER) measurement to quantify rapid changes in paracellular permeability. Pharmazi. , 19-24 (2010).
- Chhin, B., et al. Ciliary beating recovery in deficient human airway epithelial cells after lentivirus ex vivo gene therapy. PLoS genetic. 5, e1000422(2009).
- Jiao, J., Meng, N., Wang, H., Zhang, L. Comparison of human nasal epithelial cells grown as explant outgrowth cultures or dissociated tissue cultures in vitro. Front Me. 7, 486-491 (2013).
- Talbot, P. In vitro assessment of reproductive toxicity of tobacco smoke and its constituents. Birth defects research. Part C, Embryo today : review. 84, 61-72 (2008).
- Port, J. L., et al. Tobacco smoke induces CYP1B1 in the aerodigestive tract. Carcinogenesi. 25, 2275-2281 (2004).
- Hoeng, J., et al. A network-based approach to quantifying the impact of biologically active substances. Drug Discov Toda. 17, 413-418 (2012).
- Iskandar, A. R., et al. Systems approaches evaluating the perturbation of xenobiotic metabolism in response to cigarette smoke exposure in nasal and bronchial tissues. Biomed Res In. 2013, 512086(2013).
- Karp, P. H., et al. An in vitro model of differentiated human airway epithelia. Methods for establishing primary cultures. Methods in molecular biolog. 188, 115-137 (2002).
- ISO 3402: Tobacco and tobacco products -- Atmosphere for conditioning and testing. , International Organization for Standardization. (1999).
- R: A Language and Environment for Statistical Computing. , The R Core Team. (2011).
- Gautier, L., Moller, M., Friis-Hansen, L., Knudsen, S. Alternative mapping of probes to genes for Affymetrix chips. BMC Bioinformatic. 5, 111(2004).
- Hermida, L., et al. Confero: an integrated contrast data and gene set platform for computational analysis and biological interpretation of omics data. BMC genomic. 14, 514(2013).
- Thomson, T. M., et al. Quantitative assessment of biological impact using transcriptomic data and mechanistic network models. Toxicology and applied pharmacolog. 272, 863-878 (2013).
- Teff, Z., Priel, Z., Gheber, L. A. The forces applied by cilia depend linearly on their frequency due to constant geometry of the effective stroke. Biophysical journa. 94, 298-305 (2008).
- Hilgendorf, C., et al. Caco-2 versus Caco-2/HT29-MTX co-cultured cell lines: permeabilities via diffusion, inside- and outside-directed carrier-mediated transport. J Pharm Sc. 89, 63-75 (2000).
- Sutto, Z., Conner, G. E., Salathe, M. Regulation of human airway ciliary beat frequency by intracellular pH. The Journal of physiolog. 560, 519-532 (2004).
- Zhang, X., et al. Similarities and differences between smoking-related gene expression in nasal and bronchial epithelium. Physiological genomic. 41, 1-8 (2010).
הדפסות חוזרות והרשאות
