אוליגומריזציה של קולטן הריאנודין, תעלת יונים הומו-טטרמרי המתווכת שחרור Ca2+ ממאגרים תוך-תאיים, היא קריטית להתכווצות שרירי השלד והלב. כאן, אנו מציגים שיטות משלימות in vivo ו-in vitro לאיתור אסוציאציה עצמית של חלבון וקביעת סטוכיומטריה של הומו-אוליגומר.
במאמר זה
סיכום
תקציר
אוליגומריזציה היא לעתים קרובות דרישה מבנית לחלבונים כדי לבצע את התפקוד התאי הספציפי שלהם. לדוגמה, טטרמריזציה של קולטן הריאנודין (RyR) נחוצה ליצירת נקבוביות תעלת שחרור Ca2+ פונקציונלית. כאן, אנו מתארים פרוטוקולים מפורטים להערכת הקשר העצמי של חלבונים, כולל שמרים דו-היברידיים (Y2H), קו-אימונו-משקעים (co-IP) ומבחני קישור צולבים כימיים. במערכת Y2H, אינטראקציה עצמית של חלבון מזוהה על ידי בדיקת β-galactosidase בפיתיון GAL4 המבטא שמרים והיתוך מטרה של חלבון הבדיקה. אינטראקציה עצמית של חלבון מוערכת עוד יותר על ידי co-IP באמצעות היתוך מתויג HA ו-cMyc של חלבון הבדיקה המתבטא בתאי HEK293 של יונקים. הסטוכיומטריה המדויקת של החלבון הומו-אוליגומר נבדקת על ידי קישור צולב וניתוח SDS-PAGE לאחר ביטוי בתאי HEK293. באמצעות טכניקות שונות אך משלימות אלה, צפינו בעקביות באסוציאציה העצמית של תחום ה-RyR N-terminal והדגמנו את יכולתו הפנימית ליצור טטרמרים. ניתן ליישם שיטות אלה על אינטראקציה בין חלבון לחלבון ומחקרי הומו-אוליגומריזציה של חלבוני ממברנה אינטגרליים אחרים של יונקים.
מבוא
התכווצות שרירי השלד ואת הלב מופעלת על ידי הרטיקולום sarcoplasmic Ca 2 + שחרור בתיווך RyR. ישנם שלושה isoforms RyR יונק עם הערוץ הפונקציונלי מורכב מארבעה תת יחידות זהות. כל למקטע RyR מורכב חלק N-terminal רגולטוריות ציטופלסמית גדול חלק C- מסוף קטן המכיל את התחומים הטרנסממברני יוצרים נקבוביים מוליכות גבוהות Ca 2+. תוך חריג ואינטראקציות-למקטע היתר בבסיס תפקוד ערוץ RyR ולגרום תוקפת והפרעות לב 1. זיהוי והאפיון של תחומים ספציפיים המעורבים במבנה RyR: יחסי פונקציה חשוב אם כן להבנת הפתופיזיולוגיה RyR.
טכניקות אינטראקציה בין חלבוני ביוכימיים מסורתיות דורשות כמויות ניכרות של חלבונים מטוהרים, לעתים קרובות מיוצרות חיידקים. זה לא ריאלי במקרה של RyR, עמ 'קרום גדול מאודrotein מורכב ~ 5000 חומצות אמינו, בעוד שברי רקומביננטי שלה לא מקובל בקלות ביטוי חיידקים וטיהור. לפיכך, מערכות ביטוי חלופיות שמקורם בתאי דם מארח איקריוטיים נדרשות עבור חלבונים בממברנה אינטגרליים יונקים. השתמשנו בעבר Y2H, שיתוף IP מבחני cross-linking להפגין באופן קולקטיבי כי tetramerization N- הסופית היא תכונה מבנית כי נשמרת על פני שלושה יונקים RyR isoforms 2,3. חשוב לציין, מצאנו כי מוטציה נקודתית אחת קשורה למחלות לב arrhythmogenic משבש N הסופית--שיוך עצמי ותוצאות ערוץ RyR מתפקדת 4. גם יש לנו ליישם טכניקות אלה ללימודי oligomerization של זנב C- מסוף ציטופלסמית RyR 5, כמו גם את N- הסופית של ערוץ הגירסות התאי Ca 2 + ההומולוגי, הקולטן אינוזיטול טריפוספט 1,4,5 2.
ב assay Y2H, את interactiעל בין שני חלבונים (X ו- Y) נמדדו על ידי הכינון מחדש של גורם שעתוק תפקודי (GAL4) ואת ההפעלה שהתפתחה של גני כתב 6-9. שני וקטורי שיבוט שונים משמשים ליצירת תערובות של שני החלבונים נבדקו עם שני להפרדה פיזית, התחומים העצמאיים של GAL4: DNA מחייבת דומיין (DNA-BD) / חלבון X היתוך (פיתיון) ושם תחום ההפעלה (AD) / חלבון Y היתוך (יעד). Y2H ניתן להשתמש כדי לבדוק אם חלבון אינטראקציה עם עצמו על ידי יצירת GAL4 DNA-BD ו התכה לספירה של אותו חלבון. מהונדסים גנטיים זני Y2H הם GAL4 ו GAL80 לקויים (חלבון GAL80 הוא מדכא של GAL4), כמו גם TRP1 ו LEU2 הלקוי (כדי לספק מבחר תזונתי עבור פלסמידים פיתיון טרף, בהתאמה). בגרעין השמרים, רקומביננטי פפטידים DNA-BD ו AD מובאים לתוך קרבה פיזית קרובה לייצר גורם שעתוק GAL4 היברידי רק דרך 'X בשילובים שלהם: int Yeraction. גישה זו מאפשרת סריקה גנטית מהירה לגילוי אינטראקציות בין חלבונים באמצעות הפעלת תעתיק המקבילה של prototrophic (קידוד HIS3 עבור אנזים הכרחי ביוסינתזה היסטידין) ו chromogenic (קידוד LacZ עבור β-galactosidase (β-גל)) גני כתב. היתרון העיקרי של Y2H הוא כי מדובר assay in vivo מאתר אפילו חלשות או חולפות אינטראקציות חלבון-חלבון. יתר על כן, זיהוי כרוך בשימוש הפשוט של מבחר צמיחה (ב היסטידין חסר מדיה) או של colorimetric (β-גל) assay ללא צורך טיהור של חלבוני פיתיון היעד או הדור של נוגדנים ספציפיים. בנוסף, Y2H יכול לשמש מסך אוסף של שיבוטים ידועים אקראיים (שיבוטי ספריית cDNA התמזגו לספירת GAL4) שותפי מחייב רומן של חלבון פיתיון, גם מתן גישה ישירה אל cDNA של חלבון הספרייה.
כדי להאריך את התצפיות Y2H, independיכולות להיות מועסקות טכניקות ביוכימיות אף אוזן גרון. Co-IP מבחני cross-linking בשילוב עם immunoblotting שיטות המשמשות לאיתור עמותות חלבון תערובות מדגם מורכבים, למשל., Lysates תא כולו 10. היתרון העיקרי שלהם הוא שהם לדווח על אינטראקציות בין חלבונים מרקמות ילידים, בניגוד לשיטות אחרות שדורשות שימוש חלבונים רקומביננטיים. חלבוני רקומביננטי יכולים לשמש גם, בדרך כלל לידי ביטוי קו תאים יונק, שם הם צפויים להיות שינויי קונפורמציה ופוסט translational הנכונים שלהם, כמו גם לוקליזציה subcellular. עם זאת, מאז שיתוף IP ו- cross-linking נמצאים מבחני חוץ גופית עושה שימוש בתאי הומוגני, יש צורך לאשר אם שני השותפים חלבון שותף מקומי בתא ללא פגע 11. אנו משתמשים באופן שגרתי transfection של HEK293 תאים יונקים להביע קרום נפרד יונקים זמני וחלבונים cytosolic בשיטת משקעים סידן פוספט 2-4,12-14, שתואר כאן בהרחבה. זוהי דרך זולה כדי לספק את ה- DNA פלסמיד ביעילות בתוך התאים אבל זה תלוי בקו תא מסוים בשימוש מפגש התא, כמו גם על טוהר פלסמיד דנ"א 11,15.
את assay שיתוף IP כרוך את בידודה של חלבון היליד או רקומביננטי של עניין מ lysates תא בתנאים שאינם denaturing המאפשרים שיתוף הטיהור של שותפי אינטראקציה משוערים 10,16. זה מחייב שימוש של שני נוגדנים עצמאיים, נוגדן immunoprecipitating לבידוד תרמי של החלבון X, ואת נוגדן immunoblotting לגילוי של י 'חלבון שותף זה יכול לשמש כדי לבדוק אם חלבון אינטראקציה עם עצמו על ידי יצירת שני בשילובים שונים עם שתי epitope שונה תגים (למשל., HA ו- cMyc). נוגדן immunoprecipitating מאוגד דרך אזור Fc שלה על-חלבון (או חלבון-G, בהתאם למין החיה, כאשר הנוגדן הועלה), אשרהוא מצומדות כדי agarose (או sepharose) שרף. X חלבון הוא זרז ידי הנוגדן: חלבון-שרף הבא דגירה עם lysate התא, כלומר השבר מסיס חומר הניקוי של תאים הומוגני. חיסוני קומפלקסי חלבונים הם eluted עם SDS המכיל חיץ ובהמשך ונותח על ידי SDS-PAGE ו immunoblotting באמצעות נוגדן כדי לזהות הנוכחות של חלבון Y 17. Co-IP צריך להתבצע עם חלבונים מסיסים חומר ניקוי כדי למנוע מחייב הלא ספציפית מוגזם. הבחירה של חומר ניקוי ריכוזו, כמו גם את המספר השוטף, צריכה להיות מותאם לכל X: זוג Y 10,16,18.
Cross-linking מועסק כדי לקבוע את stoichiometry של מתחם חלבון oligomeric. היא מבוססת על תגובה כימית כדי ליצור קשרים קוולנטיים בין protomers אינטראקציה הסמוך, ולכן, היא מאפשרת בשימור מצב oligomeric של החלבון במהלך הפרדת SDS-PAGE. ישנם cross-linking רב reagents באורכים וכימיה שונים מיקוד קבוצות תגובתי שונה על חלבונים, בדרך כלל אמינים ראשוניים, קרבוקסיליות או קבוצות תיאול. כאן, אנו מתארים את השימוש של glutaraldehyde (OHC (CH 2) 3 CHO), גידול הומו-דו-תפקודי צולב מקשר עם שתי קבוצות אלדהיד משני לשם כך להגיב עם קבוצות אמינו חופשיות נוכחות שאריות ליזין 19,20. Cross-linking הוא המיושמת באופן הריכוז או שהזמן גרמן וכתוצאה מכך היווצרות adduct. תגובת Glutaraldehyde מופסקת עם הידרזין (H 2 NNH 2) דגימות חלבון מנותחים מכן על ידי SDS-PAGE ו immunoblotting 17 להעריך מדינת oligomerization שלהם. נציין כי cross-linking לא לגרום oligomerization אלא רק יוצר גשרים יציבים בין קומפלקסי חלבונים קיימים. שיקולים חשובים בעת ביצוע ניסויים cross-linking כוללים את הבחירה של מקשר צלב, זמן הריכוז והתגובה שלה 19,20.
פרוטוקול
1. שמרים השני היברידי
- טרנספורמציה שמרים
- מכינים את התקשורת או מאגר הבאים:
- כן שמרים שמרים מלא תמצית-peptone דקסטרוז (YPD) בינוני על ידי ערבוב 20 גר '/ ל peptone, 10 גר' / ל תמצית שמרים, 2% w / גלוקוז נ (שנוסף לאחר מעוקר) ו -20 גר '/ ל אגר (צלחות בלבד) ; לעקר ידי מעוקר ולהשתמש טריים ביום של הניסוי.
- הכן מוגדר סינתטי שמרים מינימלי (SD) בינוני (חסר לאוצין ו טריפטופן לשמור על לחץ סלקטיבית משני פלסמידים הפיתיון היעד) על ידי ערבוב 6.7 גר '/ ל של בסיס חנקן שמרים, 1.6 גר' / תוספת L נשירה לאוצין חסר טריפטופן, 2% w גלוקוז נ / (שנוספו לאחר מעוקר) ו -20 גר '/ ל אגר (צלחות בלבד); לעקר ידי מעוקר ולהשתמש טריים ביום של הניסוי.
- כן 50% w / v PEG (פוליאתילן גליקול) 3350; לעקר דרך פילטר ולאחסן 0.2 מיקרומטר ב RT.
- הכן 100 מ"מ טריס / 10 EDTA מ"מ (10x TE), להתאיםאת ה- pH ל 7.5, לעקר דרך פילטר ולאחסן 0.2 מיקרומטר ב RT.
- כן 1 M יצטט ליתיום (10x LiAc); להתאים את ה- pH ל 7.5 עם CH 3 COOH, לעקר דרך פילטר ולאחסן 0.2 מיקרומטר ב RT.
- להחיות את זן Y2H (למשל, Y190) על ידי מפוספס על כמות קטנה של מניות גליצרול קפוא על צלחת YPD. לדגור על 30 מעלות צלזיוס עד מושבות שמרים להגיע ~ 2 מ"מ קוטר (בדרך כלל 3 - 5 ימים, בהתאם לזן שמרים).
- לחסן 0.5 מ"ל של YPD (בצינור 1.5 מ"ל) עם יחיד, גדול (2 - 3 מ"מ קוטר) המושבה. וורטקס במרץ עבור ~ 2 דקות כדי לפזר כל גושים.
- להעביר את ההשעיה התא לתוך בקבוק 500 מ"ל המכיל 50 מ"ל בינוני YPD. לדגור על 30 מעלות צלזיוס למשך 16 - 18 שעות עם רועד ב 250 סל"ד במשך שמרים להגיע בשלב נייח.
- העברת 4 - 5 מ"ל של תרבות הלילה לתוך 200 מ"ל של YPD (בבקבוק חרוטי 1 L) לייצר צפיפות אופטית ב 600 ננומטר (OD 600, נמדדבאמצעות ספקטרופוטומטר) של 0.2 - 0.3 (200 מ"ל יספיק 20 טרנספורמציות).
- לדגור על 30 מעלות צלזיוס עם רועד ב 250 סל"ד עד התאים נמצאים בשלב יומן אמצע, כלומר, OD 600 = 0.5 - 0.6 (בדרך כלל 2 - 3 שעות).
- שמרים קציר על ידי צנטריפוגה (ב 50 מ"ל צינורות) ב 1500 XG במשך 5 דקות ב RT. בטל supernatant, resuspend כל גלולה ב 5 מ"ל של H 2 O סטרילי ובריכת יחד.
- Re-צנטריפוגות ב 1500 XG במשך 5 דקות ב RT וזורקים supernatant. גלולה שמרים Resuspend ב 1 מ"ל של שהוכן זה עתה, 1x LiAc / TE סטרילי.
הערה: השתמש בתאי שמרים מתאימים תוך שעת 1 של הכנה. - הכינו דגימות פלסמיד (ב 1.5 מיליליטר צינורות) על ידי הוספת 200 ng של DNA פלסמיד עבור טרנספורמציות יחידה, או 0.5 - 1 מיקרוגרם של כל פלסמיד דנ"א עבור טרנספורמציות שיתוף, ו -100 מיקרוגרם של אשכי הרינג DNA המוביל (מבושל במשך 20 דקות ומקורר על קרח רק לפני השימוש).
הערה: כלול שליטה חיובית, למשל, שמרים.שיתוף הפך עם pVA3 (קידוד עבור היתוך GAL4 DNA-BD עם חלבון p53) ו pTD1 (קידוד עבור היתוך לספירה GAL4 עם אנטיגן T גדול SV40). - הוספת 100 μl של ההשעיה שמרים מוכן טרי, המוסמכת (שלב 1.1.8) ו -600 μl של פתרון 1x LiAc / PEG (8 מ"ל של המניה PEG 3350, 1 מ"ל של המניה TE, 1 מ"ל של המניה LiAc), מערבולת של ~ 30 שניות. לדגור על 30 מעלות צלזיוס במשך 30 דקות עם רועד ב 200 סל"ד.
- הוסף 80 μl של sulfoxide דימתיל (10% v / ריכוז סופי נ) ומערבבים היטב על ידי היפוך עדין. הלם חום במשך 15 דקות באמבט מים C ° 42 תוך ערבוב כל 2 - 3 דקות.
- צ'יל השעית תא על קרח למשך 2 דקות ו צנטריפוגות ב 14,000 XG במשך 15 שניות ב RT להתאושש שמרים.
- גלולה תא גלול ב 100 μl של 1x TE צלחת על צלחות בינוניות SD מזעריים ראויות לצמיחה סלקטיבית (בינוני חסרה לאוצין ו טריפטופן לשמור על לחץ סלקטיבית משני פלסמידים פיתיון היעד).
- דגירה צלחות למעלה בצד למטה ב 30° C עד מושבות הם ~ 2 מ"מ קוטר (בדרך כלל 4 - 5 ימים). ניתן לאחסן צלחות ב 4 מעלות צלזיוס למשך 2 - 3 שבועות; לאחסון כבר לא עושים מניות גליצרול ולאחסן ב -80 מעלות צלזיוס.
הערה: ודא כי חלבוני פיתיון היעד באים לידי הביטוי שמרים ידי immunoblotting 17, וכי אין להם הפעלת גן כתב אוטונומי כאשר בנפרד לידי ביטוי שמרים (על ידי assay β-הגל כמפורט בסעיף 1.3).
- מכינים את התקשורת או מאגר הבאים:
- נייר סינון המושבה מתיחת β-גל Assay
- הכן את החוצצים הבאים:
- הכן חיץ Z המכיל 100 מ"מ Na 2 HPO 4, 40 מ"מ לאא 2 4 PO, 10 מ"מ KCl, 1 מ"מ MgSO 4; להתאים את ה- pH ל 7.4. לעקר ידי מעוקר ולאחסן ב RT.
- הכן חיץ X-גל על ידי המסת 5-bromo-4-כלורו-3-indolyl-β-D-galactopyranoside ב 20 מ"ג / מ"ל ב N, N-dimethylformamide ולאחסן בחושך ב -20 ° C. כן פתרון חיץ / X-Gal Z. הפוך חיץלפני השימוש על ידי ערבוב X-Gal ב 0.33 מ"ג / מ"ל ו β-mercaptoethanol ב נ 0.27% v / חיץ Z. השתמש 2.5 מ"ל לדגימה.
- להוסיף 2.5 מיליליטר של תמיסה מוכנה טרי Z חיץ / X-גל צלחת נקיה 100 מ"מימ ומניחים בתוך נייר סינון תאי.
- מניחים נייר פילטר חדש על פני השטח של צלחת עם מושבות שמרים להיות assayed. לשפשף בעדינות את נייר הסינון לצלחת עם מלקחיים ולהשאיר למשך 5 דקות ~ עבור מושבות לצרף.
הערה: תהליך השליטה החיובית במקביל, כלומר, שמרים שיתוף הפך עם pVA3 ו pTD1.. - הרם את נייר הסינון לצלול זה (עם מלקחיים) לתוך ברכה של חנקן נוזלי במשך 30 שניות (חנקן נוזלי צריך להיות מטופל בזהירות; תמיד ללבוש כפפות עבות ומשקפים). בוא הפשרת נייר סינון קפואה ב RT במשך 2 דקות ~.
- הנח את הנייר מסנן (המושבה כלפי מעלה) על גבי נייר סינון מראש ספוג בתוך צלחת 100 מ"מ, ו לדגור על 30 מעלות צלזיוס.
- בדקו מעת לעת(כל ~ 30 דקות) להופעת מושבות כחולות. Y190 שמרים טרנספורמציה שיתוף עם פלסמידים בקרה חיובית (pVA3 + pTD1) יהפוך כחול תוך 60 דקות (תצפיות לא פורסם).
הערה: פיתיון חלש: אינטראקציות היעד עשויות להימשך מספר שעות כדי לייצר אות כחולה חיובית (למנוע דגירה ממושכת (> 8 שעות) שעשויה לתת תוצאות חיוביות כוזבות). לקבלת התוצאות הטובות ביותר, השתמש מושבות לשתף טרנספורמציה טרי, כלומר, גדל ב 30 מעלות צלזיוס למשך 4 -. 5 ימים, ~ 2 מ"מ קוטר.
- הכן את החוצצים הבאים:
- נוזלי תרבות β-גל Assay
- הכן את החוצצים הבאים:
- הכן חיץ Z המכיל 100 מ"מ Na 2 HPO 4, 40 מ"מ לאא 2 4 PO, 10 מ"מ KCl, 1 מ"מ MgSO 4; להתאים את ה- pH ל 7.4, לעקר על ידי מעוקר ולאחסן ב RT.
1 M Na 2 CO 3; לאחסן ב RT. - הכן חיץ / β-mercaptoethanol Z. הפוך חיץ לפני השימוש על ידי הוספת β-mercaptoethanol ב נ 0.27% /נ במאגר Z; להשתמש 700 μl לדגימה. הכן חיץ Z / פתרון ONPG. הפוך חיץ לפני השימוש על ידי ערבוב ONPG (o-nitrophenyl-β-D-galactopyranoside) בשעה 4 מ"ג / מ"ל ו β-mercaptoethanol ב 0.27% v / v במאגר Z; להשתמש 160 μl לדגימה.
- הכן חיץ Z המכיל 100 מ"מ Na 2 HPO 4, 40 מ"מ לאא 2 4 PO, 10 מ"מ KCl, 1 מ"מ MgSO 4; להתאים את ה- pH ל 7.4, לעקר על ידי מעוקר ולאחסן ב RT.
- השתמש מושבה אחת לחסן 5 מ"ל של מדיום SD מינימלי (לאוצין חסר טריפטופן לשמור על לחץ סלקטיבית משני פלסמידים הפיתיון היעד) לדגור על 30 מעלות צלזיוס למשך 16 - 18 שעות עם רועד ב 250 סל"ד.
הערה: Assay חמש מושבות נפרדות שיתוף טרנספורמציה עם אותו פלסמידים פיתיון היעד. - העבר מספיק של תרבות הלילה לתוך 10 מ"ל של מדיום SD טריים לייצר OD 600 = 0.2 - 0.3. לדגור על 30 מעלות צלזיוס עם רועד ב 250 סל"ד עד שהתאים נמצאים בשלב יומן אמצע (OD 600 = 0.5 - 0.6).
- העבר 0.5 מ"ל של תרבית שמרים לתוך צינור צנטריפוגות 1.5 מ"ל ב 14,000 XG במשך 2 דקות ב RT. רשום את OD המדויק 600 כאשר קצירת ceLLS. Resuspend גלולה ב 100μl של חיץ Z; זו תגרום גורם ריכוז פי 5.
- צינור מקום בחנקן נוזל דקות ~ 1 (חנקן נוזלי צריך להיות מטופל בזהירות; תמיד ללבוש כפפות ומשקפים עבים) ולאחר מכן באמבט מים 37 מעלות צלזיוס במשך 3 דקות כדי להפשיר. חזור על מחזור להקפיא להפשיר זה עוד פעמיים כדי להבטיח התאים נפערים.
- הגדרת צינור ריק עם 100 μl של חיץ Z.
- הוסף 700 μl של חיץ Z / β-mercaptoethanol ו -160 μl של חיץ Z / ONPG המדגם וצינורות ריק; להפעיל את הטיימר ומניחים C חממה 30 °.
- בדוק מעת לעת צבע צהוב לפתח. להוסיף 400 μl של 1 M Na 2 CO 3 לעצור התפתחות צבע ולהקליט הזמן שחלף בתוך דקות. Y190 שמרים טרנספורמציה שיתוף עם פלסמידים בקרה החיוביים (pVA3 + pTD1) יצהיב בתוך 60 דקות ..
הערה: פיתיון חלש: אינטראקציות יעד עשויות להימשך מספר שעות כדי לייצר אות צהובה חיובית מחדש הטובים ביותרsults, השתמש מושבות לשתף טרנספורמציה טרי, כלומר, גדל ב 30 מעלות צלזיוס למשך 4 -. 5 ימים, ~ 2 מ"מ קוטר. - צנטריפוגה ב 14,000 XG במשך 5 דקות ב RT עד גלולה פסולת התא ולהעביר את supernatant לתוך קובט נקי.
- באמצעות ספקטרופוטומטר, למדוד את הספיגה ב 420 ננומטר (א 420) של הדגימות יחסית הריקים (הערכים צריכים להיות בין 0.02 - 1.0).
- חישוב יחידות β-galactosidase, עם יחידה 1 מוגדר כסכום אשר הידרוליזה 1 μmol של ONPG כדי o-nitrophenol ו- D-גלקטוז לדקה לכל תא, על פי הנוסחה הבאה:
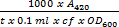 = Β-galactosidase יחידות
איפה: t: שחלף זמן הדגירה (בדקות); . cf: הגורם ריכוז משלב 1.4.8, כלומר, cf = 5; OD 600: כאשר התאים נקצרו.
- הכן את החוצצים הבאים:
2. ביטוי חלבון בקו תא יונק
- Transfection תא יונק
- מכינים את התקשורת או מאגר הבאים:
- כן בינוני צמיחה ידי ערבוב DMEM עם גלוקוז 4.5 גר '/ ל, 10% v / v בסרום שור עוברי 2 מ"מ L- גלוטמין; לעקר דרך פילטר ולאחסן 0.2 מיקרומטר על 4 מעלות צלזיוס.
- הכן מלוחים 2x Hepes בופר (2x HBS) על ידי ערבוב 280 מ"מ NaCl, 10 מ"מ KCl, 1.5 מ"מ Na 2 4 HPO, 12 גלוקוז מ"מ, 50 מ"מ Hepes; להתאים את ה- pH ל 7.05, לעקר דרך פילטר ולאחסן 0.2 מיקרומטר ב -20 ° C. כן 2.5 M CaCl 2. לעקר דרך 0.2 מיקרומטר מסנן ולאחסן ב -20 מעלות צלזיוס.
- יום אחד לפני transfection, זרע 1 - 2 x 10 6 HEK293 תאים בצלחת פטרי 100 מ"מ על מנת להיות ומחוברות% 60-70 למחרת. תרבות עבור 16 - 18 שעות ב 37 מעלות צלזיוס חממה humidified עם 5% CO 2.
- ביום transfection, להסיר את התאים בינוני האכלה הישנות עם 10 מיליליטר של מדיום גידול טרי.
הערה: אנטיביוטיקה מושמטת ממדיום התרבות במהלך transfection עלול להגביר מוות של תאים. - לדלל 24 מיקרוגרם של ה- DNA פלסמיד (עבור שיתוף transfections, יחס טוחן שווה של שני פלסמידים) ו -60 μl של 2.5 M CaCl 2 ב 600 μl נפח כולל (עשה עם H 2 O deionized סטרילית) בתוך צינור 1.5 מיליליטר; מערבולת לערבב.
הערה:. לקבלת יעילות transfection הגבוהה ביותר, ה- DNA פלסמיד צריך להיות של הטוהר הגבוה ביותר, כלומר, יש יחס Abs 260 / Abs 280 = ~ 1.8. - מוסיפים את הירידה פתרון פלסמיד דנ"א / סידן חכם לתוך צינור 50 מ"ל המכיל 600 μl של 2x HBS בעוד כל הזמן במרץ ערבוב ידי vortexing. דגירה במשך 20 דקות ב RT כדי לאפשר היווצרות של מתחמי DNA סידן פוספט / פלסמיד.
- לאחר בקצרה הדגירה 20 דקות, מערבולת ולהוסיף טיפת פתרון חכם על התאים כדי לכסות את שטח הפנים כולו של צלחת פטרי 100 מ"מ.
- דגירת התאים ב 37 מעלות צלזיוס ב 5% CO 2. לאחר ~ 6 שעות לשנות את מדיום הגידול ולמקם בחזרה בחממה.
- קציר שלאחר transfection 24 שעות התאים על ידי צנטריפוגה XG ב 1000 במשך 3 דקות ב RT וזורקים supernatant. כדורי תא ניתן לאחסן ב -80 ° C עד הצורך.
הערה: ביטוי בדרך כלל מגיע לשיאן 24 - 72 שעות-transfection פוסט.
- מכינים את התקשורת או מאגר הבאים:
- המגון הנייד
- הכן את החוצצים הבאים:
- הכן חיץ המגון Co-IP על ידי ערבוב 150 מ"מ NaCl, 20 מ"מ טריס; להתאים את ה- pH ל 7.4 ולאחסן על 4 מעלות צלזיוס.
- הכן חיץ המגון Cross-linking ידי ערבוב 5 מ"מ Hepes, 0.3 M סוכרוז; להתאים את ה- pH ל 7.4 ולאחסן ב 4 ° C (מסנן לפני השימוש כדי להסיר כל חלקיקים). מוסף עם מעכבי פרוטאז לפני השימוש.
- הוסף 250 μl של חרוזי זכוכית (425 - 600 מיקרון) בתוך צינור 1.5 מ"ל ולשטוף עם 500 μl של חיץ המגון. חרוזי זכוכית גלולה ידי צנטריפוגה קצרהדופק (1,000 XG במשך 5 שניות) ולהסיר את supernatant. חזור על שלב זה לשטוף פעם נוספת.
- גלולה תא הגלול (משלב 2.1.8) ב 500 μl של חיץ המגון קר כקרח ולהעביר את השעית התא לתוך צינור חרוזים המכיל זכוכית.
- Homogenize התאים על הקרח ב -20 קטעים באמצעות מחט דקה (23 G, 0.6 x 30 מ"מ) מצורף מזרק 1 מ"ל. עם כובע הצינור סגור, פירס דרך אותו עם המחט ולפזר השעית תא נמרץ באמצעות חרוזי הזכוכית.
- צנטריפוגה ב 1500 XG במשך 10 דקות ב 4 ° C כדי להסיר גרעינים ותאיים רצופים וזורקת את הכדור. שמור את supernatant המייצגים את השבר שלאחר הגרעין ולהמשיך ישירות לשתף IP או cross-linking פי הצורך.
- הכן את החוצצים הבאים:
3. In vitro שיטות ביוכימיות
- Co-immunoprecipitation
- הכן את החוצצים הבאים:
- הכן חיץ המגון Co-IP כמתואר בסעיףשיקוף 2.2.1.1. הכן חיץ IP על ידי ערבוב 20 מ"מ טריס, 150 מ"מ NaCl, 0.5% (w / v) בחורים, 2 מ"מ dithiothreitol (אופציונלי; dithiothreitol יכול להיכלל להפחית אגרגטים חלבון שאולי נוצרו עקב חמצון אוויר); להתאים את ה- pH ל 7.4 ולאחסן על 4 מעלות צלזיוס.
- כן 2% w / v בחורים במאגר המגון שיתוף IP; לאחסן ב 4 ° C..
- הכן חיץ טעינת-חלבון על ידי ערבוב 60 מ"מ טריס, 2% w / v SDS, 10% גליצרול V / V, 5 מ"מ EDTA, 0.01% w / v bromophenol כחול, 2% v / v β-mercaptoethanol (אופציונלי); להתאים את ה- pH ל 6.8 ולאחסן ב RT.
- Homogenize התאים מצלחת פטרי 100 מ"מ ומחוברות (~ 8 x 10 6 תאים אם HEK293, נספר עם השימוש של hemocytometer) כמפורט בסעיף 2.2.
- Solubilize שבר המשנה הסלולר שלאחר גרעין עם 0.5% בחורים (באמצעות מניות 2%) ו הדגירה של ≥2 שעות ב 4 ° C עם ערבוב מתמיד. צנטריפוגה ב 20,000 XG במשך 10 דקות ב 4 ° C עד גלולת materi המסיסאל וזורקים את הכדור. שמור את lysate תא כינה supernatant.
הערה: הכללת חומר ניקוי והסרה של חומר מסיס הוא הכרחי כדי למזער את הלא ספציפית מחייב. . דטרגנטים ביניים, למשל, בחורים או טריטון X-100, בריכוז של 0.2 - 1%, הם נפוצים ביותר. - הכן שני צינורות נפרדים 1.5 מ"ל ולהוסיף ~ 20 μl (בהתאם לקיבולת מחייב IgG) של 6 מ"ג / מ"ל חלבון-A או חלבון-G agarose (או sepharose) חרוזים. לשטוף עם 200 μl של חיץ IP.
הערה: בחר את איג-מחייב שרף המתאים בהתאם מינים של בעלי חיים אשר משמש לצורך גיוס הנוגדן immunoprecipitating. חלבון-G נקשר מגוון רחב של תת איג לעומת-חלבון. - שחזור חרוזים על ידי צנטריפוגה ב 1500 XG במשך 2 דקות ב 4 °. חזור על לשטוף פעם נוספת עם חיץ IP, ואז resuspend החרוזים 200 μl של חיץ IP.
- הוסף 1 מיקרוגרם (5 ng / μl) של נוגדן immunoprecipitating או IgG הלא החיסונית (כדילשרת שליטה שלילית) בשנתי הצינורות המכילים נפרד חלבון-A / G. דגירה של ≥2 שעות ב 4 ° C עם ערבוב מתמיד.
הערה: תמיד לעבד כביקורת שלילית עם השימוש של IgG הלא חיסוני וגדל אותו מין החיה כמו נוגדן immunoprecipitating. - שחזור חרוזים על ידי צנטריפוגה ב 1500 XG במשך 2 דקות ב 4 ° C ובזהירות וזורקים supernatant ידי pipetting.
- העבר 200 μl של lysate תא (משלב 3.1.3) לתוך כל אחד משני צינורות עם נוגדן וחרוזים חלבון-A / G. דגירה של ≥2 שעות ב 4 ° C עם ערבוב מתמיד כדי לאפשר מחייב נוגדן אנטיגן.
- שחזור חרוזים לשטוף עם 200 μl של חיץ IP; דגירה במשך 10 דקות ב 4 ° C עם ערבוב. השחזור חרוז לשטוף פעמים נוספות (להימנע שטיפות מרובות אשר תפחתנה הוא את הכריכה הספציפית שאינו ספציפית). בזהירות להתעלמות supernatant ידי pipetting.
- הוסף 30 μl של חיץ חלבון טעינה כדי elute immunoprecipitחלבוני גוונים. צנטריפוגה ב 1500 XG במשך 2 דקות ב 4 ° C, להשליך את החרוזים ולשמור את supernatant המכיל את המדגם שיתוף IP eluted.
- כדי לוודא ממטרי X החלבון מוצלחים, לטעון כמות קטנה (1/10 ה, 3 μl) של מדגם שיתוף IP על ג'ל SDS-PAGE להיות מנותחת על ידי immunoblotting 17 עם נוגדנים ספציפיים עבור X. חלבון כלול aliquot של lysate התא לאמת ביטוי חלבון X במדגם שלך.
- כדי לבדוק את הימצאותם של Y חלבון-זירז שיתוף, לטעון את השאר (9/10 ה, 27 μl) של המדגם שיתוף IP על ג'ל SDS-PAGE נפרד להיות מנותח על ידי immunoblotting 17 עם נוגדנים ספציפיים עבור י 'חלבון כלול aliquot של lysate התא לאמת ביטוי חלבון Y במדגם שלך.
- הכן את החוצצים הבאים:
- הכימיה Cross-linking
- הכן את החוצצים הבאים:
- Cross-linking חיץ המגון כמפורט בסעיף 2.2.1.1.
- כן p 5xrotein טעינה חיץ על ידי ערבוב 300 מ"מ טריס, 10% w / v SDS, 50% גליצרול V / V, 25 mM EDTA, 0.05% w / v bromophenol כחול, 10% v / v β-mercaptoethanol (אופציונלי); להתאים את ה- pH ל 6.8 ולאחסן ב RT; חם ב 50 מעלות לפני השימוש.
- Homogenize התאים מצלחת פטרי 100 מ"מ ומחוברות (~ 8 x 10 6 תאים אם HEK293, נספר עם השימוש של hemocytometer) כמפורט בסעיף 2.2.
הערה: סוכרוז (ב 0.3m) משמשת כדי ליצור חיץ האוסמוטי-ISO. מלח, למשל, 120 - 150 מ"מ NaCl או KCl יכול לשמש במקום, בהתאם מורכב החלבון oligomeric של עניין. - צנטריפוגה שבר הסלולר משנה שלאחר גרעיני 20,000 XG במשך 10 דקות ב 4 ° C עד גלולת אגרגטים חלבון ולשמור את supernatant. קח שמונה aliquots של 20 μl כל (בדרך כלל ~ 20 מיקרוגרם של חלבון) לתוך 0.5 מ"ל צינורות נפרדים.
- להוסיף 0.0025% v / v glutaraldehyde לכל דגימות להפעיל את הטיימר. תן לכל אחד משמונה הדגימות להגיב עם glutaraldehyde ב RT עבור: 0, 2, 5, 10, 15, 20, 30, 60 דקות.
יש Glutaraldehyde שתי קבוצות אלדהיד המגיבים אמינים חינם: הערה. הימנע משימוש מאגרי pH או חומרים אחרים עם קבוצות אמינו עיקריות כי הם להרוות את תגובת glutaraldehyde. - בקצות glutaraldehyde בזמן קצוב עם 2% הידרזין V / V ולהוסיף 5 μl של חיץ חלבון-טעינת 5x לפגל חלבונים.
- המשך SDS-PAGE ו immunoblotting 17.
- הכן את החוצצים הבאים:
תוצאות
במערכת Y2H, הפיתיון: האינטראקציה טרף נבחנת בתחילה על ידי בחירת צמיחת שמרים במדיום חסר (טריפטופן, לאוצין ו) היסטידין ובהמשך הוערך על ידי מבחני הפעילות האנזימטית β-גל (איור 1). שמרים בתרבית היסטידין בינוני חסר יש שיעור צמיחה איטי כי תלוי בחוזק של פיתיון: אינטראקצית חלבון טרף. את assay β-הגל מתבצע בשמרים (בתרבית בינונית חסרה רק טריפטופן לאוצין) או גובר על תמיכה מוצקה (צלחות אגרו) או בתרבות הנוזלת, עם תוצאות כמותיות המניבים האחרונות. השתמשנו בהצלחה את Y2H לזהות אינטראקציות תחום-תחום בתוך RyR2 כמו גם שותפי חלבון רומן 2-4,12,21,22. לדוגמא, אנחנו הקרנו סדרת חופפי בונה פורשת את אורכו של רצף הפפטיד RyR2 לאינטראקציה עם שבר N- מסוף (AD4L: שאריות RyR2 1 - 906 התמזג עם AD GAL4). 3 מבחני מושבה מתיח מסנן נייר β-גל פיק מושבות שמרים כחולים בצבע חד יחיד עבור BT4L: זוג AD4L (איור 2 א), מראים כי AD4L אינטראקציה עם עצמו, כלומר BT4L לבנות (שאריות RyR2 1 - 906 התמזגה עם GAL4 DNA-BD). מושבות כחולות לבנבן אותרו עבור BT8: זוג AD4L דבר המצביע על עמותה משנית חלשה עם התחום בטרמינל C-הקיצוני (BT8), בעוד שמרים שיתוף הפך עם כל מבנה אחר נשארו לבן ולכן שלילי עבור פיתיון: אינטראקצית חלבון טרף. תוצאות כמותיות, מתקבלות על ידי מבחני β-גל נוזלי (איור 2 ב), מצביעים BT4L החזק: שווה ערך אינטראקצית AD4L בחוזק להתאחדות הידועה בין חלבון p53 (pVA3) ו אנטיגן T הגדול SV40 (pTD1), ואילו BT8: אינטראקצית AD4L ניכר היה חלש (<10% לעומת קבוצת ביקורת).
אנו שגרתי לבצע ניסויים-IP שיתוף (איור 3) וollowing ביטוי חולף בקו תא יונק (HEK293), בתור שחקן assay ביוכימיים עצמאי לחזק את ממצאי Y2H 2-4,12-14,21-24. כדי לוודא RyR2 N הסופית- אינטראקציה עצמית, שני פלסמידים נפרדים קידוד עבור שאריות RyR2 1 - 906 מתויגים עם או את epitope הפפטיד cMyc או HA (BT4L ו AD4L, בהתאמה), היה שיתוף transfected בתאי HEK293 בשיטה משקע סידן פוספט 3. השבר שלאחר הגרעין של תאים הומוגני היה solubilized עם בחורים חומרי ניקוי, ואת החומר מסיס הוסר על ידי צנטריפוגה לייצר lysate התא. Lysate התא, שטופלו dithiothreitol סוכן צמצום, הודגר אז עם Ab HA וחלבון-A חרוזים sepharose כדי immunoprecipitate HA-tagged AD4L. דגימות Co-IP, eluted עם SDS המכילים חיץ, הועמסו על שני ג'לים SDS-PAGE נפרד (1/10 וה 9/10 פיצול ה) ונותחו על ידי immunoblotting עם Ab HA וא.ב. cMyc, respectively. IP הישיר המוצלח של AD4L (~ 100 KDA) על ידי Ab HA אומת על ידי immunoblotting, אך לא השליטה שהלילית באמצעות IgG ארנב הלא חיסוני (איור 4 א). חשוב לציין, cMyc מתויג BT4L (~ 100 KDA) נמצאה רק IP Ab HA, ולא בבקרה שלילית בהיעדר AD4L immunoprecipitated (איור 4B).
Y2H מבחני שיתוף IP ספקו הוכחות עקביות עבור RyR2 N הסופית- אינטראקציה עצמית, אבל הם לא הודיעו על מצב oligomerization של תחום N-terminal, כלומר אם הוא יוצר דימרים בלבד או מתחמים גבוהים. יצוין כי מתחמי יהיה לנתק ורק יחידות משנה המהווים יזוהו על ידי SDS-PAGE בגלל SDS- ו denaturation חלבון חום הנגרמת ביטול אינטראקציות חלבון-חלבון. כדי להתגבר על זה, אנו משתמשים cross-linking (איור 5) כי כימי ביציבות conjoins protei קייםoligomers n, מסה מולקולרית אשר יכול אז להיבדק על ידי הפרדה גודל SDS-PAGE 2-5. לדוגמא, homogenate תא HEK293 להביע cMyc-BT4L, שטופל dithiothreitol סוכן הצמצום, היה הגיב glutaraldehyde ונותח על ידי SDS-PAGE ו immunoblotting באמצעות Ab cMyc (איור 6). בנוסף מונומר (~ 100 KDA), להקת חלבון מסה מולקולרית גבוהה של ~ 400 kDa זוהתה באופן תלוי זמן, המציין היווצרות tetramer RyR2 N הסופית- 3. יש לציין, tetramer היה מינים oligomeric השולט, עם דימר מינימלי ולהקות trimer ציין. כדי לקבוע מסה מולקולרית לכאורה שלה, oligomer BT4L הופרד עד 4 - 15% שיפוע SDS-PAGE ג'לים 3. הפקנו עקומת סטנדרט מולקולרי מסה / ג'ל פיגור באמצעות סטנדרטים חלבון עם מגוון של 30 - 460 kDa, ו חישבנו את oligomer להיות 358 kDa 15 (n = 4). מסה מולקולרית לכאורה זו עולה בקנה אחד עם tetramer BT4L מסודרבצורה מעגלית סגורה ולא בצורה ליניארית, כצפוי מן הסידור של ארבע יחידות משנה בתוך ערוץ RyR2 ילידים.

איור 1. תרשים זרימה Y2H. שמרים, שיתוף הפך עם פלסמידים הפיתיון היעד, נבחרה לצמיחה במדיום חסר היסטידין ו / או assayed עבור β-גל הפעילות האנזימטית. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
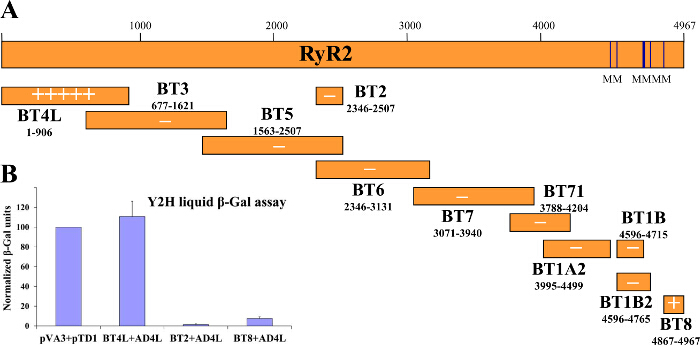
איור 2. Y2H ממליץ RyR2 N הסופית- דומיין עצמית אינטראקציה. (א) סכמטי המתאר את (הפיתיון) סדרת שברי חלבון חופפים האדם RyR2 נבדק במערכת Y2H עבור אינטראקציה עם מבנה RyR2 N-terminal AD4L (טרף). לתוצאות בדיקות איכותיות מתקבלות על ידי מבחני מושבה מתיח מסנן נייר β-גל מסומנות ב "+" בכפולות או "-" לאינטראקציה שלילית (ב) מבחני כמותי נוזלי β-גל מנורמל נגד הבקרה החיובית (pVA3 מקודד עבור GAL4 DNA-BD. היתוך עם חלבון p53; pTD1 מקודד עבור היתוך לספירה GAL4 עם אנטיגן T גדול SV40). שונה מ 3. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
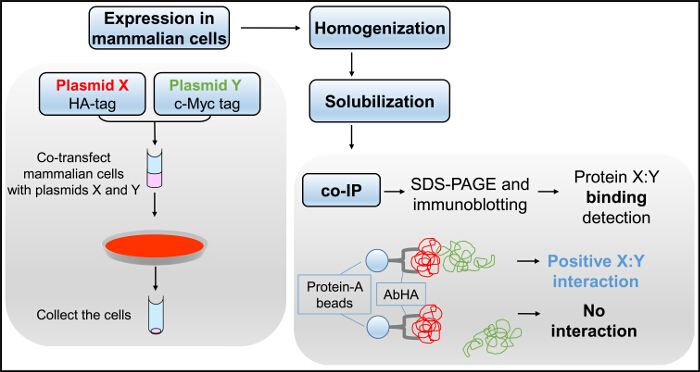
איור 3. Co-IP תרשים זרימה. בתאי יונקים, שיתוף transfected עם פלסמידים X ו- Y, הם הומוגני-solubilized דטרגנט לייצר lysate התא בשימוש assay שיתוף IP, ואחריו SDS-PAGE ו immunoblotting.f = "https://www.jove.com/files/ftp_upload/54271/54271fig3large.jpg" target = "_ blank"> לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
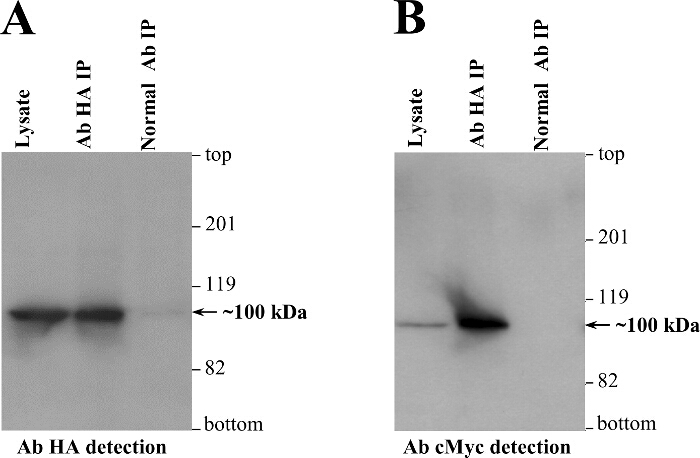
איור 4. Co-IP מציין RyR2 N הסופית- דומיין עצמית אינטראקציה בתאי יונקים. HEK293 התאים היו שיתוף transfected עבור שיתוף ביטוי חולף של cMyc מתויג (BT4L) ו HA-tagged (AD4L) RyR2 N הסופית- מושלם ( שאריות 1 - 906). AD4L היה immunoprecipitated עם Ab HA מ בחורים-solubilized ו lysate HEK293 שטופל dithiothreitol, ואילו שליטה שלילי, מבחנים-IP שיתוף בוצעו עם IgG הארנב הלא חיסוני. חלבוני immunoprecipitated חוממו על 85 מעלות צלזיוס למשך 5 דקות והחליטו על 20 מילים-אמפר עבור 3 שעות באמצעות ג'לים 6% SDS-PAGE נפרד עמוס 1/10 ה או 9/10 ה של דגימות ה- IP. העברת חלבון לאחר ב 80 V עבור שעה 2 על polyvinyקרום lidene difluoride, ניתוח immunoblotting בוצע באמצעות (1: 1,000 דילול) Ab HA (A) או Ab cMyc (B), בהתאמה, ואחריו IgG עכבר אנטי peroxidase מצומדות חזרת (1: 10,000 דילול) וזיהוי chemiluminescence משופרת (1 חשיפה דקה). Aliquot של lysate תא, 1/50 ה מנפח מעובד בדגימות IP, נכלל גם לשרת רגיל מסה מולקולרית כמו. שונה מ 3. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
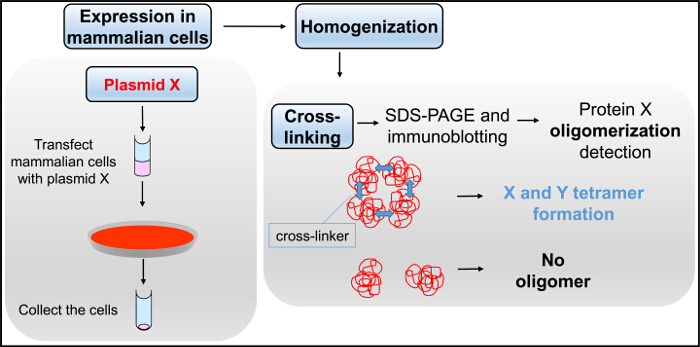
איור 5. Cross-linking תרשים זרימה. בתאי יונקים, טרנספקציה עם פלסמיד X, הם הומוגני נתון התגובה עם glutaraldehyde ב assay cross-linking, ואחריו SDS-PAGE ו immunoblotting. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
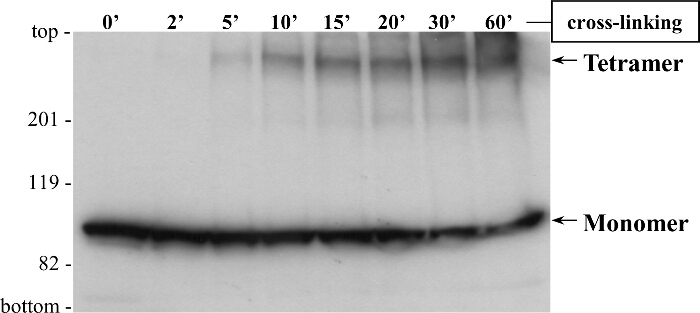
איור 6. Cross-linking מציין RyR2 N הסופית- דומיין tetramer גיבוש HEK293 התאים היו transfected עבור ביטוי חולף של מתויג cMyc (BT4L) RyR2 N הסופית- מושלם (שאריות 1 - 906).. homogenate הסלולרי, שטופל dithiothreitol סוכן הצמצום, הודגר עם glutaraldehyde עבור נקודות זמן המצוינות. דוגמאות היו מחוממות על 85 מעלות צלזיוס למשך 5 דקות והחליטו על ידי SDS-PAGE (6% ג'ל) ב 20 mA עבור 3 שעות. בעקבות העברת חלבון ב 80 V עבור שעה 2 על קרום difluoride polyvinylidene, ניתוח immunoblotting בוצע באמצעות (1: 1,000 דילול) Ab cMyc, ואחריו IgG עכבר אנטי peroxidase מצומדות חזרת (1:10,000 דילול) וזיהוי chemiluminescence משופרת (1 חשיפה דקה). Monomeric (M: ~ 100 KDA) ו tetrameric (T) צורות מסומנות על ידי החצים. שונה מ 3. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
דיון
ההיווצרות של הומו-oligomers חלבון היא תהליך ביולוגי בסיסי המסדיר את פעילותם של גורמי שעתוק, אנזימים, יון ערוצים קולטני 25,26. חשוב לציין, oligomerization חלבון יש גם השלכות פתולוגיות כולל ניוון מוחיים ומחלות לב arrhythmogenic 4,27. מתודולוגיות המתוארים במאמר זה משמשים לזיהוי אינטראקציות תחום-תחום בתיווך חלבון-שיוך עצמי oligomerization. להלן נבקש להצביע על שלבים קריטיים בתוך כל פרוטוקול, ואנחנו דנים שיקולים, מגבלות חשובות של פתרון בעיות.
המערכת Y2H יכול להיות מועסק הראשון למסך שותפים חלבון אינטראקציה פוטנציאל בגלל הקרנת תפוקה גבוהה יחסית, קלות שימוש ותוצאות לשחזור מאוד. נהלי Y2H מתבצעים במעבדה למיקרוביולוגיה עם תקן (צלחת או שתייקרו) חממות ומתקני בלימת חדר. שימוש freshly מוכן תאים מוסמכים (שלב 1.1.8) הם קריטי עבור טרנספורמציה שמרים יעילות גבוהה, ואילו עבור התוצאות הטובות ביותר ב מבחני β-גל, טרי גדלו מושבות שמרים (עד 5 ימים) אמור לשמש (שלב 1.2.3). מערכות מבוססות על גורמי שעתוק מלבד GAL4 ו / או נוספים / גני כתב תחליפיים זמינות, ולכן פיתיון פלסמידים טרף צריך להיות בהתאמה עם זן Y2H המתאים.
כמה זנים צריכים להיות תרבותיים בנוכחות 3-אמינו-1,2,4-triazole, מעכב תחרותי של חלבון HIS3, על מנת להרוות את כל ביטוי מכונן של גן כתב HIS3 7,8. ביטוי של חלבוני היתוך פיתיון היעד צריך להיות מאומת על ידי immunoblotting 17. במקרה פיתיון / חלבוני היתוך טרף רעילים שמרים, רמות חלבון נסבלות נמוך יכולות להיות מושגת על ידי שיבוט וקטורים שונים שבם פיתיון / ביטוי טרף הוא מונע על ידי אמרגן שונה. כמו כן, הוא חיוני כדי להבטיח tחלבוני כובע היתוך פיתיון / טרף אינם מציגי פעילות גן הכתב אוטונומי. הפעלת גן כתב אוטונומית יכולה להינצל על ידי שינוי המבנה להסיר באזור האחראי, או על ידי החלפת GAL4 DNA-BD ו התכה לספירה לשני החלבונים נבדקים. יתר על כן, תחומים הטרנסממברני מושמטים טובים יותר מן מבני פיתיון / טרף, כיוון שהם עלולים לגרום misfolding או mislocalization של חלבוני היתוך בתאי קרום תאיים. ואכן, החיסרון העיקרי של מערכת Y2H היא כי חלבונים הפיתיון היעד הם נקודתיים בגרעין שמרים הרחק מיקום subcellular פיזיולוגיים שלהם ואפשרות חסר שלאחר translational שינויים ספציפיים, וכתוצאה מכך אינטראקציות חיוביות שגויות או false-negative 6-9 .
מערכות ביטוי Heterologous יונק מתאימות יותר לחקר חלבונים בממברנה אינטגרלי יונקים מבחינת שינויי קונפורמציה, שלאחר translational ולוקליזציה subcellular.אחת השיטות transfection התא הנפוץ ביותר הוא משקעים סידן פוספט, בעיקר בגלל הציוד המינימלי ריאגנטים הנדרש 11,15. שיטות חלופיות, כלומר electroporation, ליפוזומים, שומנים ופולימרים קטיוני, עשויות להניב יעילות transfection גבוהה בהתאם לקו התא לבנות משומש. באופן כללי, הגורמים העיקריים המשפיעים יעיל transfection הם באיכות פלסמיד דנ"א כדאיויות תא בריאות /. התוצאות הטובות ביותר מושגות כאשר פלסמיד דנ"א של הטוהר הגבוה ביותר (יחס ספיגת 260nm / 280nm של ~ 1.8) התאים המתחלקים באופן פעיל משמש. תאים ולכן יש transfected על לא יותר מ 60 - 70% מפגש (שלב 2.1.2), כי את היכולת לקחת את דנ"א זר קשורה שטח הפנים של התא נחשף המדיום 11. בנוסף, הכללת האנטיביוטיקה במדיום התרבות במהלך transfection (שלב 2.1.3) לא מומלצת בשל מוות של תא מוגבר 15.
Fאו משקע סידן פוספט בהכנה מסוימת, זהירה וכוונון pH (כדי 7.05 בדיוק) של פתרון 2x HBS (שלב 2.1.1), היווצרות נכונה של DNA פלסמיד / סידן / מתחמי פוספט על ידי ערבוב נמרץ (שלב 2.1.5) הם שלבים קריטיים עבור transfection היעילות גבוהה. בדרך כלל, ביטוי החלבון על ידי פסגות transfection חולף בתוך 24 - 72 שעות.
לאחר תאים נקצרים, נהלים עקב חייבים להתבצע ב 4 ° C כדי למזער פעילות הפרוטאז, והוספת מעכבי פרוטאז מומלצת. המגון Cell צריך להיות מלווה צעד צנטריפוגה להסיר גרעינים כי כרומוזומליות DNA עשויה להגדיל את צמיגות פתרון ולשפר את הלא ספציפי מחייב. לפיכך, המגון באמצעים מכניים ב חיץ iso-האוסמוטי הוא העדיף, בדרך כלל (0.3 M) סוכרוז או (150 מ"מ) NaCl. באופן כללי, מאגרים מבוססים סוכרוז ידועים כדי לשפר את יציבות חלבון ולהקטין צבירת חלבון פוטנציאל שאינה ילידי ארץ, אך בשל pהידרציה קשרים על פני החלבון, אינטראקציות חלבון-חלבון אלקטרוסטטית הם העדיפו. לעומת זאת, מאגרים מבוססי מלח להשפיע על מטען נטו של קבוצות צד חומצת אמינו מחויבות על פני החלבון, ובכך שיש הטיה לכיוון יותר אינטראקציות הידרופוביות מבוסס 28.
Co-IP הוא assay ביוכימיים המועסק השכיח ביותר להערכת אינטראקציות חלבון-חלבון במיוחד מרקמות ילידים. החיסרון העיקרי שלה הוא הדרישה נוגדנים ספציפיים מאוד תוקף לשימוש IP ו immunoblotting 10,16,18. לפיכך, חלבונים רקומביננטיים לעתים קרובות מתויגים עם epitope הפפטיד, למשל., Hemagglutinin השפעת (YPYDVPDYA) או cMyc אדם (EQKLISEEDL), עבורו נוגדנים ספציפיים גבוהה זיקה זמינות מסחרי. אם תרצה, הנוגדן immunoprecipitating ניתן מצומדות כימית על חלבון-שרף להימנע elution וזיהוי שלה בשלב immunoblotting כי עלול לטשטש את שיתוף זירז protein 16; כדי להשיג זאת, השתמשנו 24 צולבות מקשר כימי בהצלחה 3,3'-dithiobis (sulfosuccinimidylpropionate). זה הכרחי כי חומר ניקוי מתאים כלול למאגר IP ואת החומר המסיס של תאי הומוגני הוסר על ידי צנטריפוגה כדי למזער מחייב ספציפי שאינו (שלב 3.1.3). הבחירה וריכוז חומר הניקוי הם שיקולים חשובים: דטרגנטים חזקים ו / או ריכוזים גבוהים יותר תפחית באופן משמעותי שאינו ספציפי מחייבים אך ייתכן גם לבטל X: אינטראקצית חלבון Y, בעוד ריכוזים נמוכים או דטרגנטים מתונים עשויות לאפשר אינטראקציה חלשה להיות שנצפתה אך רשאית לגרום מחייב מוגזם שאינו ספציפי. דטרגנטים כוח ביניים עדיפים, למשל, טריטון X-100 ב 0.5 -. ריכוז 1%. כדי לצמצם עוד יותר את הלא ספציפית מחייב, חלבון נייטרלי (למשל, אלבומין בסרום שור ב 100 מיקרוגרם / מ"ל) יכול להיכלל במאגר IP, ו / או lysate התא ניתן מראש cleareד עם הדגירה מראש עם שרף חלבון-A לבד. מספר השוטף צריך להיות מותאם עבור X: נבדק זוג Y, בדרך כלל שלושה שוטף של 10 דק 'עם חיץ IP (שלב 3.1.9). בכל מקרה, מדגם שיתוף IP עם IgG הלא חיסוני כמו נוגדן immunoprecipitating תמיד צריך להיות מעובד במקביל לשרת מלא שלילי (צעד 3.1.6).
היתרון העיקרי של cross-linking כימי הוא שזה מודיע על רכב stoichiometric של-oligomer הומו החלבון. Glutaraldehyde הוא מקשר צולב נפוץ כי זה לא דורש ציוד מיוחד שהוא מייצר תרמית וכימי צולבות קישורים יציבים בין חלבוני אינטראקצית 19,20. תרכובות עם קבוצות אמינו חופשיות להשמיטם מ מאגרי assay (שלב 3.2.1) כי הם להרוות את התגובה הכימית. ריכוז Glutaraldehyde ותגובה הזמן (שלב 3.2.4) צריך להיות מותאם מורכב החלבון oligomeric של עניין. החיסרון העיקרי של שיטה זו, especiברית כאשר היא מבוצעת על הכנות תא כולו, הוא-הסגולי אי התגובה הכימית שיכול להניב אגרגטים חלבון מלאכותיים חסרי משמעות ביולוגית.
אלטרנטיבי in vivo (למשל., תהודה העברת אנרגיה פלואורסצנטי, דו-מולקולרי פלואורסצנטי או השלמה הארה) ו בטכניקות חוץ גופית (למשל., כרומטוגרפיה הדרה גודל, ultracentrifugation אנליטית, calorimetry טיטרציה בידוד תרמי) זמינים לאפיון ההתאגדות עצמית חלבון והערכה של oligomerization והרכב 29,30. לכל שיטה יש יתרונות וחסרונות משלה, והוא עשוי להיות מתאים יותר ללימוד חלבון מסוים תלוי טיהור חלבונים / יציבות וזמינה ציוד / מגיב. שלוש השיטות משלימות שתואר כאן בהרחבה, כלומר Y2H, שיתוף IP ו- cross-linking, שימשו בשילוב לספק הוכחות משכנעות RyR2 הומו-oligomeהיווצרות r בבידוד בתוך תא חי.
גילויים
החוקרים אין להכריז.
תודות
עבודה זו נתמכה על ידי הבריטים Heart Foundation מלגות כדי SZ (FS / 08/063 ו FS / 15/30/31494).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| <חזק>חלק 1 חממת שמרים דו-היברידית | |||
| צלחת | Hereaus | B6120 | בשימוש ב-30 מעלות; C |
| חממת שייקר אורביטלית | ניו ברונסוויק סיינטיפיק | INNOVA 4300 | בשימוש ב-30 מעלות; C עם טלטול ב-230 - 250 סל"ד |
| ספקטרופוטומטר | Perkin Elmer | Lambda Bio+ | למדידת OD600 של תרבית שמרים; למדידת ספיגה ב-420 ננומטר בבדיקת b-Gal נוזלית |
| Matchmaker Two-Hybrid System 2 Takara | Clontech | K1604-1 | מכילה וקטור פיתיון pGBKT7, וקטור טרף pACT2 וזן שמרים Y190 |
| בסיס חנקן שמרים | סיגמא-אולדריץ' | Y0626 | להכנת מדיום גידול SD מינימלי |
| תוסף נשירה חסר לאוצין וטריפטופן | סיגמא-אולדריץ' | Y0750 | להכנת מדיום גידול SD מינימלי |
| תוסף נשירה חסר לאוצין, טריפטופן, היסטידין | סיגמא-אולדריץ' | Y2001 | להכנת מדיום גידול מינימלי SD |
| אשכי הרינג נשא DNA | Takara Clontech | 630440 | לטרנספורמציה של שמרים |
| נייר סינון Whatman כיתה 5 | Sigma-Aldrich | WHA1005070 | לשימוש בנייר סינון מושבה-הרמה b-Gal מבחן |
| X-Gal (5-bromo-4-chloro-3-indolyl-β-D-galactopyranoside) | Sigma-Aldrich | B4252 | לשימוש בנייר סינון מושבה-הרמה b-Gal מבחן |
| ONPG (o-nitrophenyl-β-D-galactopyranoside) | Sigma-Aldrich | N1127 | לשימוש בבדיקת |
| b-Gal נוזלית<חזק>חלק 2. ביטוי חלבון בקו תאים של יונקים | |||
| קו תאים HEK293 | ATCC | ATCC® CRL-1573 ומסחר; | |
| אינקובטור לח (5% CO2, 37 ° C) | SANYO | MCO-18AIC | לתרבית תאי יונקים |
| DMEM (מדיום הנשר השונה של Dulbecco) | Invitrogen (ThermoFisher) | 41966 | להכנת מצע גידול לתאי יונקים |
| סרום בקר עוברי | Invitrogen (ThermoFisher) | 10500 | להכנת מצע גידול לתאי יונקים |
| חרוזי זכוכית | Sigma-Aldrich | G8772 | להומוגניזציה של תאים |
| מחט 23 גרם (0.6 x 30 מ"מ) | BD Microlance | 300700 | להומוגניזציה של תאים |
| קוקטייל מעכב פרוטאז (שלם) | רוש | 11873508001 | למניעת פרוטאוליזה |
| <חזקה>חלק 3. שיטות ביוכימיות במבחנה | |||
| Mini-PROTEAN Tetra Cell (מערכת SDS-PAGE) | Bio-Rad | 1658000EDU | לאלקטרופורזה של ג'ל פוליאקרילאמיד |
| Trans-Blot SD (מערכת העברה חצי יבשה) | Bio-Rad | 1703940 | להעברה אלקטרופורטית |
| מעבד סרטי רנטגן קומפקטי | Xograph | X4 | לשימוש באימונובלוטינג |
| Glutaraldehyde | Sigma-Aldrich | G5882 | לשימוש בחרוזי ספרוז חלבון-A צולבים כימיים |
| GE Healthcare מדעי החיים | 17-5280-01 | לשימוש בבדיקת Co-IP | |
| Anti-HA (Y-11 ארנב פוליקלונלי IgG) | סנטה קרוז ביוטכנולוגיה | sc-805 | לשימוש בבדיקת co-IP ארנב |
| לא חיסוני IgG | סנטה קרוז ביוטכנולוגיה | sc-2027 | לשימוש בבדיקת co-IP |
| Anti-cMyc (9E10 עכבר חד שבטי IgG) | סנטה קרוז ביוטכנולוגיה | sc-40 | לשימוש באימונובלוטינג |
| אנטי-HA (16B12 עכבר חד-שבטי IgG) | Covance | MMS-101P | לשימוש באימונובלטינג |
| נגד עכבר IgG-HRP | סנטה קרוז ביוטכנולוגיה | sc-2005 | לשימוש באימונובלטינג |
| Hyperfilm ECL | GE Healthcare Life Sciences | 28906836 | לשימוש ב-immunoblotting |
| ECL Western Blotting Substrate | Pierce ( ThermoFisher) | 32106 | לשימוש ב-immunoblotting |
מקורות
- Seidel, M., Lai, F. A., Zissimopoulos, S. Structural and functional interactions within ryanodine receptor. Biochem Soc Trans. 43 (3), 377-383 (2015).
- Zissimopoulos, S., Marsh, J., Stannard, L., Seidel, M., Lai, F. A. Amino-terminus oligomerisation is conserved in intracellular calcium release channels. Biochem J. 459 (2), 265-273 (2014).
- Zissimopoulos, S., et al. N-terminus oligomerization regulates the function of cardiac ryanodine receptors. J Cell Sci. 126 (Pt 21), 5042-5051 (2013).
- Seidel, M., Thomas, N. L., Williams, A. J., Lai, F. A., Zissimopoulos, S. Dantrolene rescues aberrant N-terminus inter-subunit interactions in mutant pro-arrhythmic cardiac ryanodine receptors. Cardiovasc Res. 105 (1), 118-128 (2015).
- Stewart, R., Zissimopoulos, S., Lai, F. Oligomerization of the cardiac ryanodine receptor C-terminal tail. Biochem J. 376, 795-799 (2003).
- Deane, C. M., Salwinski, L., Xenarios, I., Eisenberg, D. Protein interactions: two methods for assessment of the reliability of high throughput observations. Mol Cell Proteomics. 1 (5), 349-356 (2002).
- Fashena, S. J., Serebriiskii, I., Golemis, E. A. The continued evolution of two-hybrid screening approaches in yeast: how to outwit different preys with different baits. Gene. 250 (1-2), 1-14 (2000).
- Stynen, B., Tournu, H., Tavernier, J., Van Dijck, P. Diversity in genetic in vivo methods for protein-protein interaction studies: from the yeast two-hybrid system to the mammalian split-luciferase system. Microbiol Mol Biol Rev. 76 (2), 331-382 (2012).
- Yang, M., Wu, Z., Fields, S. Protein-peptide interactions analyzed with the yeast two-hybrid system. Nucleic Acids Res. 23 (7), 1152-1156 (1995).
- Elion, E. A. Chapter 8, Detection of protein-protein interactions by coprecipitation. Curr Protoc Immunol. , (2007).
- Kingston, R. E., Chen, C. A., Rose, J. K. Chapter 9, Calcium phosphate transfection. Curr Protoc Mol Biol. , (2003).
- Lam, A. K., Galione, A., Lai, F. A., Zissimopoulos, S. Hax-1 identified as a two-pore channel (TPC)-binding protein. FEBS letters. , (2013).
- Zissimopoulos, S., Lai, F. Interaction of FKBP12.6 with the cardiac ryanodine receptor C-terminal domain. J Biol Chem. 280, 5475-5485 (2005).
- Zissimopoulos, S., Thomas, N. L., Jamaluddin, W. W., Lai, F. A. FKBP12.6 binding of ryanodine receptors carrying mutations associated with arrhythmogenic cardiac disease. Biochem J. 419 (2), 273-278 (2009).
- Jordan, M., Wurm, F. Transfection of adherent and suspended cells by calcium phosphate. Methods. 33 (2), 136-143 (2004).
- Kaboord, B., Perr, M. Isolation of proteins and protein complexes by immunoprecipitation. Methods Mol Biol. 424, 349-364 (2008).
- Sambrook, J., Fritsch, E. F., Maniatis, T. Molecular cloning: a laboratory manual. , 2nd, Cold Spring Harbor Laboratory Press. (1989).
- Yang, W., Steen, H., Freeman, M. R. Proteomic approaches to the analysis of multiprotein signaling complexes. Proteomics. 8 (4), 832-851 (2008).
- Migneault, I., Dartiguenave, C., Bertrand, M. J., Waldron, K. C. Glutaraldehyde: behavior in aqueous solution, reaction with proteins, and application to enzyme crosslinking. Biotechniques. 37 (5), 790-796 (2004).
- Wine, Y., Cohen-Hadar, N., Freeman, A., Frolow, F. Elucidation of the mechanism and end products of glutaraldehyde crosslinking reaction by X-ray structure analysis. Biotechnol Bioeng. 98 (3), 711-718 (2007).
- Zissimopoulos, S., Lai, F. Central domain of the human cardiac muscle ryanodine receptor does not mediate interaction with FKBP12.6. Cell Biochem Biophys. 43, 203-220 (2005).
- Zissimopoulos, S., West, D., Williams, A., Lai, F. Ryanodine receptor interaction with the SNARE-associated protein snapin. J Cell Sci. 119, 2386-2397 (2006).
- Zissimopoulos, S., Docrat, N., Lai, F. Redox sensitivity of the ryanodine receptor interaction with FK506-binding protein. J Biol Chem. 282, 6976-6983 (2007).
- Zissimopoulos, S., Seifan, S., Maxwell, C., Williams, A. J., Lai, F. A. Disparities in the association of the ryanodine receptor and the FK506-binding proteins in mammalian heart. J Cell Sci. 125. 125 (Pt 7), 1759-1769 (2012).
- Ali, M. H., Imperiali, B. Protein oligomerization: how and why. Bioorg Med Chem. 13 (17), 5013-5020 (2005).
- Hashimoto, K., Panchenko, A. R. Mechanisms of protein oligomerization, the critical role of insertions and deletions in maintaining different oligomeric states. Proc Natl Acad Sci U S A. 107 (47), 20352-20357 (2010).
- Haass, C., Selkoe, D. J. Soluble protein oligomers in neurodegeneration: lessons from the Alzheimer's amyloid beta-peptide. Nat Rev Mol Cell Biol. 8 (2), 101-112 (2007).
- Chi, E. Y., Krishnan, S., Randolph, T. W., Carpenter, J. F. Physical stability of proteins in aqueous solution: mechanism and driving forces in nonnative protein aggregation. Pharm Res. 20 (9), 1325-1336 (2003).
- Gell, D. A., Grant, R. P., Mackay, J. P. The detection and quantitation of protein oligomerization. Adv Exp Med Biol. 747, 19-41 (2012).
- Kaczor, A. A., Selent, J. Oligomerization of G protein-coupled receptors: biochemical and biophysical methods. Curr Med Chem. 18 (30), 4606-4634 (2011).
הדפסות חוזרות והרשאות
