אנו מציעים פרוטוקול לזיהוי חומצות שומן ללא צורך בטיהורן. הוא משלב מידע על זמני השמירה עם ספקטרום המסה של שלושה סוגים של נגזרות חומצות שומן: אסטרי מתיל של חומצות שומן (FAMEs), נגזרות 4,4-דימתיל אוקסזולין (DMOX) ואסטרי 3-פירידילקרביניל (פיקוליניל).
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
במאמר זה
סיכום
תקציר
מין Bacillus מכיל מסועף שרשרת חומצות שומן בלתי רוויות (FAS) עם עמדות מגוונות של הסניף מהתיל (iso או anteiso) ושל הקשר הכפול. שינויים בהרכב FA לשחק תפקיד מכריע ההסתגלות של חיידקים לסביבתם. שינויים אלה כרוכים בשינוי היחס של iso לעומת anteiso המסועף FAS, וב השיעור ביחס FAS בלתי רווי ל- FAS הרווי, עם קשרים כפולים נוצרו ב בתפקידים שונים. זיהוי מדויק של פרופיל FA יש צורך להבין את מנגנוני ההסתגלות של מיני Bacillus.
רבים מן FAS מ Bacillus אינם זמינים מסחרית. האסטרטגיה המוצעת במסמך מזהה FAS באמצעות שילוב אינפורמציה על זמן השמירה (לפי חישוב של אורך השרשרת שווה ערך (ECL)) עם ספקטרה המונית של שלושה סוגים של נגזרים FA: אסטרים מתיל חומצת שומן (fames), 4,4-דימתיל oxazoline נגזרים (DMOX), ו3-pyridylcarbinyl אסתר (picolinyl). שיטה זו יכולה לזהות את FAS ללא הצורך לטהר את FAS הידוע.
השוואת פרופילי chromatographic תהילה שהוכנה cereus Bacillus בתערובת מסחרית של תקנים מאפשרת זיהוי של ישר-שרשרת רווי FAS, החישוב של ECL, והשערות על זהותו של FAS האחר. Fames של הקנים רווי FAS, iso או anteiso, להציג תזוזה שלילית קבועה של ECL, לעומת FAS רווי ליניארי עם אותו מספר פחמנים. Fames של FAS בלתי רווי יכול להיות מזוהה על ידי המסה של היונים המולקולריים שלהם, ולגרום לשינוי חיובי ECL לעומת FAS הרווי המתאים.
עמדת ההסתעפות של FAS ועמדת הקשר הכפולה של FAS בלתי רווי ניתן לזהות על ידי ספקטרה המונית יינון אלקטרונים נגזרים picolinyl ו DMOX, בהתאמה. גישה זו מזהה את כל הענף הרווי הידועFAS ed, FAS ישר שרשרת בלתי רוויה ו- FAS המסועף בלתי רווי מתמצית cereus ב.
מבוא
שומן מתיל אסטר חומצה (FAME) גז כרומטוגרפיה (GC) היא שיטה חיונית לאפיון שומנים. הוא מפריד במהירות מכמת את חומצות שומן שונות (FAS) של מדגם אחרי צעד מיצוי קצר. נגזרים של אסטרים מתיל תנודתיות מאוד, יציבה אינרטי לעבר מוט chromatographic, ובכך למנוע פסגות עוקב. סולם ההזדהות שלהם היא די פשוט כאשר המדגם מורכב FAS הידוע משום פרופילי chromatographic או מתפרסמים או בהשוואה לסטנדרטים. בנוסף, ההזרקה החוזרת של סטנדרטי כיול כימות של שונות FAS אינה נדרשת, בהתחשב בתגובה המתמדת שלהם כמעט לגילוי יינון להבה (FID) 1.
בנוסף FID, ספקטרומטריית מסה (MS) זיהוי מספק ערכה משלימה של מידע כדי לאשר fames. עם זאת, כאשר fames נזקפת באמצעות יינון אלקטרון (EI), ספקטרה וכתוצאה מכך לא תמיד מאפשרת הזיהוי דואר של המבנה העדין האנגלי. למשל, הסתעפות עמדה (כלומר, קבוצה מהתיל מסועפת) קשה לנבא כי יוני האבחון קשים לזהות 1 ושינוי המאפיין בשפע יון היעד הוא מכונה תלוי, מניעת השימוש בספריות ספקטרה מונית 2. אתגר נוסף טמון בזיהוי מיקום הקשר הכפול בגלל EI גורם גירת קשר כפולה. לפיכך, איזומרים FA עם משתנה עמדות קשר כפולות לא יכולים להיות מובחנים על ידי ספקטרום המסה שלהם. למרבה המזל, בכלים אחרים פותחו לזיהוי FA. לדוגמה, הנוכחות ואת המיקום של הסתעפות או של קשרים כפולים FAS ניתן השערה על ידי חישוב אורך השרשרת שווה ערך (ECL) 3.
שיטות derivatization אחרות לגרום ספקטרה מסה שונה, תלוי במיקום של קשר כפול או קבוצה מתיל מסועפת. 4,4-דימתיל נגזר oxazoline (DMOX) 4 לאפשר EASזיהוי y של המיקום של קשרים כפולים חומצת שומן חד בלתי רוויה. 3-pyridylcarbinyl אסתר (אסתר picolinyl) נגזרים לאפשר זיהוי חד משמעי על המיקום של מתיל מסועף 5 FAS. שילוב שמירת chromatographic (ECL) ו ספקטרה ההמונית (DMOX ו picolinyl) מידע מאפשר זיהוי של רוב FAS ללא הצורך להשתמש בשיטות מורכבות של טיהור, כנדרש עבור ספקטרום תהודה מגנטית גרעינית (NMR), שיטת העוררין לאפיון מבני 1 .
חיידקים של Bacillus הסוג, הכוללים כמה פתוגנים בני אדם ובעלי חיים, מסוגלים ליישב נישות מגוונות מאוד ולכן מופצים באופן נרחב בסביבה 6. בין הסוג בצילוס, רכב FA מושפע הנישה האקולוגית של המין עם מודולציות בדפוסי FA להתאים למגוון רחב של שינויים סביבתיים (למשל, מדיום גידול, טמפרטורה,pH, וכו ') 7-9. בגלל ההומוגניות היחסית של דפוס FA בין זנים של Bacillus הסוג במהלך צמיחה בתנאים סטנדרטיים, קביעת רכב FA היא אחד הקריטריונים החיוניים המשמשים להגדרת מין Bacillus. מאפיין ייחודי של הסוג בצילוס הוא השפע של FAS מסועפת שרשרת המכילה 12-17 פחמנים 10-12 עם היחס בין ISO ו anteiso איזומרים להיות קובע מפתח של הסתגלות לתנאי סביבה. מיני Bacillus גם להסתגל לתנודות סביבה על ידי שינוי היחס של חומצות שומן בלתי רוויות. במינים מסוימים, כגון cereus Bacillus, שני desaturases חומצת שומן ליצור קשרים כפולים במיקומים שונים של שרשרת אלקיל 13 עם תפקידים שונים בעיבוד 9. הדוגמא של הסוג בצילוס ממחישה את החשיבות של זיהוי בדיוק עמדת הקשר הכפולה ו FA הסתעפות. לאסוףively, זיהוי דפוסי Bacillus FA יש כמה יישומים שימושיים. בזאת, אנו מציעים גישת GC-MS רומן לזיהוי דפוס Bacillus FA אשר מתגבר על המגבלות המובנות של ניתוח קלסי GC-MS.
גישה חדשנית זו יכולה לשמש באופן ישיר על חומר ביולוגי גלם, מורכבת משילוב של טכניקות קיימות: מידע על זמני שמירה (ECL) ו ספקטרה ההמונית של נגזרי FAS שונים (FAME, DMOX ו-אסתר picolinyl).
אנו משתמשים במינוח האנגלי הבא. אני, א, ו n מצביע iso, anteiso מתיל מסועף, וישר-שרשרת חומצת שומן, בהתאמה. FAS הרווי קבל את שמן C: ד כאשר C הוא מספר אטומי הפחמן חומצת השומן ו- D הוא מספר קשרים כפולים. Δ x מציין את המיקום של הקשר הכפול, שבו הקשר הכפול ממוקם על קשר פחמן-פחמן העשירי, לספור מסוף חומצה קרבוקסילית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
1. תרבויות חיידקים
- כן דשא של החיידקים (ATCC Bacillus cereus זן 14,579) על ידי הפצת 100 μl של תרבות לילה של המתח וטופח על 30 מעלות צלזיוס LB (בינוני לוריא- Bertani), על פני השטח של צלחת של מדיום אגר LB. דגירה את צלחת הלילה ב C 30 °.
2. ECL: אורך שרשרת Equivalent
- חישוב ECL כדלקמן:
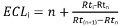 עם:
אני, מומס עניין;
n, מספר הפחמן של מתיל אסטר חומצת שומן רוויות ישר שרשרת משחררים לפני מומס לי;
n + 1, מספר הפחמן של מתיל אסטר חומצות שומן רווי שרשרת ישר משחררים לאחר המומס לי;
RTI, RTN, RT (n + 1) פעמים השמירה של פסגות FAME שתוארו לעיל.
הערה: קבל את זמני השמירה של אסטרים מתיל חומצות שומן רווי ישר שרשרת בזריקה מתערובת של סטנדרטים (BAME).
הכנת FAME 3. וניתוח
- על מנת לקבל חומצות שומן שומנים, תאים חיידקיים הקציר על ידי גירוד מושבות מהצלחת אגר ולהעביר 40 מ"ג (משקל טרי, שווה ערך ל -10 9 תאים קיימא) של חיידקים לתוך צינור זכוכית 10 מ"ל עם פקקי הברגה וחותמות PTFE.
- בצע transesterification הניתן בשיטת קישור אסתר 14,15 כמפורט להלן.
- הוסף 5 מ"ל של 0.2 M KOH מתנול אל תאים חיידקיים טרי לדגור על 37 מעלות צלזיוס במשך שעה 1. תגובה זו מורכבת methanolysis אלקליין, לשבור את הקישור אסתר ב השומנים והפקת אסטרים מתיל חומצות שומן.
- הוסף 1 מ"ל של 1 חומצה אצטית M כדי להוריד את ה- pH ל -7.0. בדוק את ה- pH עם רצועות מבחן ה- pH.
- הוסף 3 מ"ל של הקסאן לחלץ fames.
- העברת supernatant (שלב אורגני) לתוך צינורות נקיים להתרכז על ידי אידוי בטמפרטורת חדר תחת זרימה רציפה של חנקן לקבל כ 200 μlשל תמצית. מעבירים את המדגם לתוך בקבוקון GC עם הכנס.
- להזריק תמציות לתוך ספקטרומטריית כרומטוגרפיה-מסת גז מערכת (GC-MS).
4. GC / MS תנאים
- להזריק דגימות FAME לתוך מכשיר GC-MS מצויד נימי טור ZB-WAX (אורך, 30 מ '; קוטר, 0.25 מ"מ, עובי הסרט, 0.25 מיקרומטר).
- הגדר את פיית ההזרקה (במצב splitless) הטמפרטורה ל 250 מעלות צלזיוס. השתמש הליום כגז מוביל, עם מהירות הקווית של 37 סנטימטר / sec. החזק את טמפרטורת התנור ב -50 מעלות צלזיוס במשך 1 דקות, להגביר עד 190 ° C בשיעור של 20 ° C / min, ולהגדיל עוד יותר לטמפרטורה סופית של 230 מעלות צלזיוס בשיעור של 2 ° C / min.
- עבור MS, להקליט את ספקטרה ההמונית על ידי יינון אלקטרון (EI) בשעת 70 eV, ולהגדיר את הרכישה הנוכחית היון הכולל בין 50 ל 400 יחידות מסה אטומיות (האמו) (2 סריקות / sec).
- כאשר נדרש, להזריק נגזרים DMOX ו picolinyl באותם excep מצבt בתנור בטמפרטורה תוכנית כדלקמן:
DMOX: 50 ° C (1 דקות), 20 ° C / min עד 210 ° C ו -2 ° C / min עד 240 ° C (5 דק ');
Picolinyl: 6 ° C (1 דקות), 20 ° C / min עד 220 ° C ו -2 ° C / min עד 250 ° C (20 דק ').
5. Picolinyl אסתר הכינה מ FAME 16
- לאדות את תמצית FAME מסעיף 3 עם זרימת חנקן (לפחות חומר יבש 10 מ"ג) ו להתמוסס 1 מ"ל של dichloromethane יבש.
- כן פתרון 1.0 M של אשלגן ter T-butoxide ב tetrahydrofuran.
- מוסיפים את תמצית תהילה 0.2 מ"ל 3-pyridinemethanol 0.1 מ"ל של תמיסת עשה צעד 5.2.
- מחמם את הפתרון ב 40 מעלות צלזיוס במשך 30 דקות בתוך בקבוקון סגור.
- לאחר קירור לטמפרטורת החדר, להוסיף מים ללא יונים מטוהרים (2 מ"ל, ראה לוח חומרים) ו הקסאן (4 מ"ל). מערבבים עם מערבולת, לאפשר בשלב להיפרד, לאסוף את השלב האורגני.
- ד"רy אותו על ידי הוספת נתרן גופרתי נטול מים עד השלב האורגני ברור לחלוטין. העבר אותו לתוך צינור נקי. ונמוג 200 μl. מעבירים את המדגם לתוך בקבוקון GC עם הכנס.
6. הכנת DMOX מ FAME 17
- לאדות את תמצית FAME מסעיף 3 עם זרימת חנקן (לפחות חומר יבש 10 מ"ג).
- כדי לחלץ FAME יבש, להוסיף 250 מ"ג של 2-אמינו-2-מתיל-1-פרופנול. שטוף את הכלי עם חנקן, להוסיף פקק, ולמקם אותו בתוך גוש חימום לילה ב 190 מעלות צלזיוס.
- לאחר קירור לטמפרטורת החדר, להוסיף 3 מ"ל dichloromethane אל הצינור, ו -5 מ"ל מטוהרים מים ללא יונים (ראה לוח חומרים).
- Shake עבור הפרדת פאזות ולאחר מכן להסיר את השלב מהימי.
- שטפו את השלב האורגני במים מ"ל 5. Shake עבור הפרדת פאזות ולאחר מכן להסיר את השלב מהימי.
- ניקוי על ידי הוספת נתרן גופרתי נטול מים עד השלב האורגני הוא צלול לגמרילהעביר אותו לתוך צינור נקי. להתאדות תחת זרם של חנקן עד שמגיעים בהיקף של 200 μl. מעבירים את המדגם לתוך בקבוקון GC עם הכנס.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
האסטרטגיה של זיהוי FA מתאי חיידקים מוצג באיור 1. כל צעד מספק מידע ספקטרלי משלים או מידע אודות שימור chromatographic. שלב 1 מורכב של זיהוי ראשוני FA באמצעות פתרון סטנדרטי. שלב 2 מאפשר פרשנות FAME EI ספקטרה ECL שלהם, על מנת לזהות את המוצרים בהיסוס. שלב 3 מזהה את המיקום המדויק הסתעפות בשרשרת-FAS מסועף. לבסוף, בשלב 4 מזהה את המיקום המדויק של קשרים כפולים FAS בלתי רווי.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
פרופילי הכרומתוגרמה FAS שניתן לראות בטבלת 1 מתאים B. cereus ATCC 14,579 גדל על פני צלחת אגרה. פרופילים דומים התקבלו כאשר החיידק היה גדל בתקשורת נוזלת סודה באותה הטמפרטורה 8. במקרה של חיידקים גדלו בתקשורת נוזלית, ביומסה החיידקים נאספה על ידי צנטריפוגה של מדיום הצמיחה ניתן לכבס על פי פרוטוקולים שתוארו קודם לכן תלויים 8,19 תנאי גידול. זיהוי של FAS השונה המיוצר על ידי B. cereus מותר שינויים בסדר בשיעור של FAS להתגלות זני מוטציה ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים שאין להם אינטרסים פיננסיים מתחרים.
תודות
המחברים מודים תומאס מיסון לתמיכה הטכנית שלו, וכדי רחל קופק עבור תיקון כתב היד.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| GC/MS | Shimadzu | QP2010 | |
| עמוד נימי ZB WAX | Phenomenex | 7HG-G007-11 | 30 מ' x 0.25 מ"מ x 0.25 ומיקרו; m |
| מתנול Lichrosolv | VWR | 1.06018.2500 | |
| אשלגן הידרוקסיד | Aldrich | P1767 | |
| THF | Hipersolv Chromanorm | 28559.320 | |
| דיכלורומתאן | Hipersolv Chromanorm | 23373.320 | |
| הקסאן | Hipersolv Chromanorm | 24575.320 | |
| 3-פירידין-מתנול | אולדריץ' | P6-680-7 | |
| אשלגן טרטיובוטוקסיד | Aldrich | 156671 | |
| 2-אמינו-2-מתיל-1-פרופנול | A-9879 | ||
| MilliQ Academic | Millipore | ZMQS50001 | |
| תערובת חומצה חיידקית מתיל אסטר (BAME) | Sigma-Aldrich | 47080-U Supelco |
מקורות
- Christie, W. W., Han, X. Lipid Analysis 4th Edition. , Oily press. (2010).
- HÜbschmann, H. -J. Handbook of GC-MS: fundamental and application. Third edition. , Wiley-vch. (2015).
- Sasser, M. Identification of Bacteria by Gas Chromatography of Cellular Fatty Acids. MIDI Technical note. 101, 1-6 (1990).
- Spitzer, V. Structure analysis of fatty acids by gas chromatography - Low resolution electron impact mass spectrometry of their 4,4-dimethyloxazoline derivatives - A review. Prog Lipid Res. 35 (4), 387-408 (1996).
- Harvey, D. J. Advances in lipid methodology. Volume 1. Christie, W. W. , Oily press. Dundee. 19-80 (1992).
- Diomande, S. E., Nguyen-The, C., Guinebretière, M. -H., Broussolle, V., Brillard, J. Role of fatty acids in Bacillus environmental adaptation. Front Microbiol. 6, (2015).
- Brillard, J., et al. Identification of Bacillus cereus Genes Specifically Expressed during Growth at Low Temperatures. Appl Environ Microbiol. 76 (8), 2562-2573 (2010).
- de Sarrau, B., et al. Influence of Anaerobiosis and Low Temperature on Bacillus cereus Growth, Metabolism, and Membrane Properties. Appl Environ Microbiol. 78 (6), 1715-1723 (2012).
- Diomandé, S. E., et al. Involvement of the CasK/R two-component system in optimal unsaturation of the Bacillus cereus fatty acids during low-temperature growth. Int J Food Microbiol. 213, 110-117 (2015).
- Berkeley, R. C. W., Heyndrickx, M., Logan, N., De Vos, P. Applications and Systematics of Bacillus and Relatives. Berkeley, R. C. W. , Blackwell Science Publ. 1-7 (2002).
- Kämpfer, P. Limits and Possibilities of Total Fatty Acid Analysis for Classification and Identification of Bacillus Species. System. Appl. Microbiol. 17 (1), 86-98 (1994).
- Kaneda, T. Fatty-acids of genus bacillus - example of branched-chain preference. Bacteriol Rev. 41 (2), 391-418 (1977).
- Chazarreta Cifre, L., Alemany, M., de Mendoza, D., Altabe, S. Exploring the Biosynthesis of Unsaturated Fatty Acids in Bacillus cereus ATCC 14579 and Functional Characterization of Novel Acyl-Lipid Desaturases. Appl Environ Microbiol. 79 (20), 6271-6279 (2013).
- Sasser, M., et al. Identification of Bacillus anthracis from culture using gas chromatographic analysis of fatty acid methyl esters. J AOAC Int. 88 (1), 178-181 (2005).
- Schutter, M. E., Dick, R. P. Comparison of fatty acid methyl ester (FAME) methods for characterizing microbial communities. Soil Sci Soc Am J. 64 (5), 1659-1668 (2000).
- Destaillats, F., Angers, P. One-step methodology for the synthesis of FA picolinyl esters from intact lipids. J Am Oil Chem Soc. 79 (3), 253-256 (2002).
- Fay, L., Richli, U. Location of double-bonds in polyunsaturated fatty-acids by gas-chromatography mass-spectrometry after 4,4-dimethyloxazoline derivatization. J Chromatogr. 541 (1-2), 89-98 (1991).
- Zhang, J. Y., Yu, Q. T., Liu, B. N., Huang, Z. H. Chemical modification in mass spectrometry IV-2-alkenyl-4,4-dimethyloxazolines as derivatives for the double bond location of long-chain olefinic acids. Biol Mass Spect. 15 (1), 33-44 (1988).
- de Sarrau, B., et al. Unsaturated fatty acids from food and in the growth medium improve growth of Bacillus cereus under cold and anaerobic conditions. Food Microbiol. 36 (2), 113-122 (2013).
- Miwa, T. K., Mikolajczak, K. L., Earle, F. R., Wolff, I. A. Gas chromatographic characterization of fatty acids.Identification constants for mono- and dicarboxylic methyl esters. Anal Chem. 32 (13), 1739-1742 (1960).
- van Den Dool, H., Kratz, P. A generalization of the retention index system including linear temperature programmed gas-liquid partition chromatography. J Chromatogr A. 11, 463-471 (1963).
- Stransky, K., Jursik, T., Vitek, A. Standard equivalent chain length values of monoenic and polyenic (methylene interrupted) fatty acids. J High Res Chromatogr. 20 (3), 143-158 (1997).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
