חלבונים בדרך כלל מכילים מספר תחומים שיכולים להפעיל פונקציות סלולריות שונות. ג'ין לדפוק-outs (KO) לא מחשיב מגוון תפקודי זו. כאן, אנו מדווחים חילופי קלטת בתיווך רקומבינציה (RMCE) גישת מבנה-תפקוד מבוסס בתאי גזע עוברי KO המאפשרת דיסקציה המולקולרי של תחומים או הגירסות פונקציונליים השונים של חלבון.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
מחקרי מבנה-תפקוד תאי גזע עוברי עכבר שימוש recombinase בתיווך Exchange קסטה
במאמר זה
סיכום
תקציר
הנדסת גנים עוברים עכברים או תאי גזע עובריים (mESCs) מאפשרת לחקר הפונקציה של חלבון נתון. חלבונים הם סוסי העבודה של התא ולעתים קרובות כוללים תחומים פונקציונליים מרובים, אשר יכול להיות מושפע שינויים posttranslational. הדלדול של החלבון השלם עכברים מותנה או מכונן נוק-אאוט (KO) אינו לוקח בחשבון זה גיוון תקנה פונקציונלי. קו המסקלין במודל עכברי נגזר, שבו אתר עגינה עבור חילופי קלטת בתיווך רקומבינציה FLPe (RMCE) הוכנס בתוך הלוקוס ROSA26 (R26), דווחו בעבר. כאן, אנו מדווחים על גישת מבנה-תפקוד המאפשרת דיסקציה מולקולרי של הפונקציות השונות של חלבון multidomain. לשם כך, העכברים RMCE תואם חייב להיות חצה עם עכברים KO ואז mESCs RMCE תואם KO חייב להיות מבודד. הבא, פנל של מבני הצלה משוערים יכול להיות מוחדר לוקוס R26 באמצעות RMCE targeting. CDNAs הצלת המועמד ניתן להוסיף בקלות בין אתרי RMCE של וקטור המיקוד באמצעות שיבוט רקומבינציה. הבא, mESCs KO הם transfected עם וקטור מיקוד בשילוב עם פלסמיד ביטוי recombinase FLPe. RMCE reactivates גן neomycin-התנגדות פחות האמרגן של אתרי עגינת ROSA26 ומאפשר את הבחירה של אירוע הנכון למיקוד. בדרך זו, התייעלות מיקוד גבוה קרובה 100% מתקבלות, המאפשרת החדרה של מבני הצלה משוערים מרובים באופן תפוקה למחצה גבוה. לבסוף, מספר רב של מבני הצלת מונחת R26 יכול להיבדק על יכולת להציל את הפנוטיפ כי נצפה mESCs הורית KO. אנו מציגים מחקר הוכחה של עקרון מבנה-תפקוד ב קטנין P120 (p120ctn) mESCs KO באמצעות בידול endoderm ב גופים embryoid (EBS) כמו את ההודעה פנוטיפי. גישה זו מאפשרת זיהוי של תחומים חשובים, מסלולים במורד משוערים, ונקודת מחלה רלוונטיתמוטציות העומדים בבסיס פנוטיפים KO עבור חלבון נתון.
מבוא
הערכה היא כי הגנום יונק מכיל כ 20,000 גנים המקודדים לחלבונים. שחבור אלטרנטיבי ושינויי posttranslational להגביר עוד יותר את רפרטואר החלבון. יש חלבוני מבנה מודולרי 1 ולעתים קרובות מכילים תחומי אינטראקציה מרובים, המאפשרים הגיוס שלהם לתוך מתחמי חלבון שונים השתתפותם תהליכים תאיים רבים 2. דוגמה אחת היא חלבון רב תפקודי הנקרא p120ctn. p120ctn מקודד על ידי הגן Ctnnd1 ו מורכב מתחום חוזרים ארמדיל מרכזי גדול ולצידו ידי N-מסוף אזור הטרמינל-C. התחום ארמדיל של p120ctn נקשר לתחום juxtamembrane השמור ביותר של cadherins הקלסית, אשר מעורבים תאי תאי הידבקות, אבל זה גם נקשר מדכא תעתיק Kaiso. התחום מסוף-N של p120ctn אינטראקציה עם קינאזות שונות, phosphatases, RhoGTPases קטן, ו- p-מזוהה microtubuleroteins 3. מעניין, כתוצאה של שחבור חלופי, isoforms p120ctn ניתן להפיק ארבעה קודונים התחלה חלופה 4. 1A איזופורם p120ctn הוא הארוך ביותר, כפי שהוא מתורגם מן-5 ביותר להתחיל קודון ומכיל קטע באורך מלא N-terminal. בשנת p120ctn isoforms 3 ו 4, זה קטע N-terminal נמחק חלקית לחלוטין, בהתאמה. הבנת התפקיד המדויק של חלבונים (או isoforms חלבון) ועל התחומים שלהם פונקציות סלולריות שונות עדיין מהווה אתגר.
ג'ין מיקוד mESCs מאפשר הלימוד של הפונקציה של חלבון דרך המחיקה הגנטית של הגן המתאים ואת תרם רב לזיהוי גנים ושבילים התפתחותית חשובים ומחל-רלוונטיות. זו פריצת דרך גנטיקה הפוכה הייתה התוצאה של התקדמות בתחומי בידוד המסקלין ואת גן המיקוד בשל הומולוגי 5 . הומולוגיים הוא תהליך שבו שברי DNA הם החליפו בין שני moieties גרעין דומה או זהה לאחר הפסקות פעמיים גדילי דנ"א (DS). בדרך כלל, HR אינו יעיל משום הפסקות dsDNA הן נדירות. לאחרונה, את היעילות של גנים בבימויו הומולוגית מיקוד יכולה להיות מוגברת באמצעות nucleases ספציפי באתר 6, 7, אבל לצערי, אלה נוטים השפעות חוץ-יעד 8. טכניקה אמינה יותר כדי לאפשר גן המיקוד הוא RMCE, אשר מבוססת על מערכות רקומבינציה ספציפי באתר כגון Cre / loxP או FLPe / FRT. LoxP ורצף FRT נמצאים P1 בקטריופאג ו שמר האפייה, בהתאמה, וכוללת 34 נ"ב, כולל רצף BP אסימטרי 8 הקובע את הכיוון של האתר. מצד השני, את הכיוון של, למשל, שני אתרי loxP בתוך מתיחת DNA יקבעו אם הדנ"א floxed הופך ניכר או inversed על רקומבינציה 9 בתיווך Cre. יתר על כן, Cre יכול גם לגרום טרנסלוקציה אם שני האתרים נמצאים על כרומוזומים שונים. RMCE מנצל אתרי רקומבינציה heterospecific כי לא צולב להגיב וכי מוטבעי מוקד הגנומי. בנוכחות פלסמיד התורם המכיל קטע DNA מוקף באותם אתרים heterospecific, את recombinase יוסיף קטע DNA הזה לתוך לוקוס גנומית תואם RMCE בגלל טרנסלוקציה פעמיים סימולטני (איור 1). הנה, רק בצורה הנכונה RMCE במיקוד שיבוטים יכולים לעבד בזכות עמידות לתרופות אמרגן על הווקטור נכנס כי משחזר "לכודים" גני אמרגן-פחות התנגדות neomycin (ניאו R) הנוכחים בגנום R26 של תאי העגינה (איור 1) 10, 11. התוצאה היא יעילות מיקוד גבוהה מאוד, לעתים קרובות קרובה 100% 11, </ sup> 12. לסיכום, מיקוד מבוסס RMCE הוא יעיל ביותר וניתן להשתמש בו ללימודים-פונקציות מבנה; עם זאת, זה דורש מוקד הגנומי טרום מהונדס.
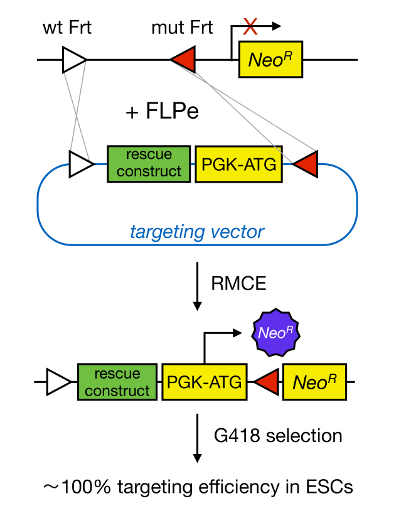
איור 1. ייצוג סכמטי של מיקוד בתיווך RMCE. RMCE מאפשר החלפת מקטעי דנ"א מתוך וקטור מיקוד הנכנסת מוקד הגנומי מוגדר אם הן נמל שני אתרי FRT heterospecific (מתואר על ידי משולשים לבנים ואדומים). בנוסף, לוקוס גנומי מהונדסים מכיל promoterless ו-התנגדות neomycin קטועה גן (ניאו R). על ידי מתן מקדם ולהתחיל קודון של קטע DNA נכנס, רק אירועי רקומבינציה נכונים לשחזר התנגדות neomycin, וכתוצאה מכך יעיל מיקוד גבוה. אנא לחץ כאן כדי להציג גרסה גדולה יותר של tהדמות שלו.
הנדסת הגנום ב mESCs מאפשרת לדור של עכברים תואמים RMCE. בשנת 1981, שתי הקבוצות הצליחו ללכוד תאים פלוריפוטנטיים ממסת התאים הפנימית (ICM) של blastocysts ובשמירה עליהם בתרבות 13, 14. mESCs מסוגל התחדשות עצמית והבחן לתוך כל סוגי תאים עובריים מבוגרים, כולל שושלת התא הניבט. לכן, גן מיקוד mESCs מאפשר לימודים הפוכים-גנטיים באמצעות הפיתוח של מכונן או מותנים (באמצעות מערכת Cre / LoxP) עכברי KO. עם זאת, הדרך הקלאסית לבודד תאי עכבר ES הוא מאוד לא יעיל. שיפורים מרכזיים הגדילו את שיעור ההצלחה מאוד עבור קווי המסקלין נובעים, כוללים השימוש בסרום-החלפה מוגדרת (SR) בינונית 15, לסירוגין בין מדיום המסקלין המכיל סרום שור SR ו עוברי (FBS) 16, ושימוש pharmacoתרכובות לוגיות כגון pluripotin או 2i 17. Pluripotin, מולקולה סינתטית קטנה, מאפשר התפשטות של mESCs במצב מובחן בהעדר גורם מעכבות לוקמיה (LIF) ו פיברובלסטים עובריים בעכבר (MEFs) 18. לבסוף, הוכח כי ניתן לבודד mESCs עם יעילות גבוהה מאוד (קרוב ל 100%), כאשר פרוטוקול ההתחלפות בינוני SR / FBS משולב עם LIF ו pluripotin 19, 20. פרוטוקולים אלה מאפשרים בידוד יעיל של mESCs RMCE תואם KO שיכולים לשמש בהמשך למחקרים מבנה-תפקוד.
מאמר זה מתאר שיטה המאפשרת אחד כדי לזהות את התחומים או שאריות המפתח בתוך חלבון כי הם אחראים על תהליכים תאיים ספציפיים. לשם כך, צנרת של טכנולוגיות מתקדמות המאפשרות בידוד המסקלין יעיל, הרכבת וקטור מיקוד, מיקוד המסקלין הייתה ליצורד. כמו לוחות כאלה, גדולים עם isoforms חלבון, מוטציות תחום ומפעילים במורד הזרם יכול להיות הציג mESCs KO וניתן להעריך את יכולתם להציל את הפנוטיפ KO חוץ גופית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל הניסויים על עכברים נערכו בהתאם לתקנות בעלי חיים מוסדיות, לאומיות, ואירופאיות.
1. בידוד של mESCs KO RMCE תואם
- גזע בעכברים KO הטרוזיגוטיים עם עכברים RMCE תואמת, כגון ROSALUC עכברים 10 או ROSA26-iPSC עכברים 21. שני עכברי RMCE תואם יוחזקו על רקע מעורב 129 / C57BL6 / שוויצרי.
הערה: חצייה עם עכברי KO הטרוזיגוטיים מומלץ להתגבר הקטלניות עובריות בעכברי KO הומוזיגוטיים. - השתמשו PCR כדי לבחור עכברים הטרוזיגוטיים KO המכיל קלטת RMCE ב לוקוס R26 12.
- גזע תואם-RMCE, עכברים KO הטרוזיגוטיים עם עכברים KO הטרוזיגוטיים ולבודד תואם-RMCE, blastocysts KO הומוזיגוטיים.
- הגדרת הזדווגויות זמן בערב ולבדוק הזדווגות מתחברת למחרת בבוקר.
הערה: תקעים נעשים הפרשות קורשים מהבלוטות והנקרשות שַׁלפּוּחִי של הזכר.תקעים אלו ממלאים את הנרתיק של הנקבה להתמיד עבור 8 - 24 שעות לאחר רבייה. נקבות פקוקות נחשבות נושאת 0.5 DPC (coitum פוסט ימים) עובר.- כדי לבדוק אם קיימים אטמים, להרים את הנקבה ידי בבסיס הזנב שלה ועל ידי בוחני פתיחת הנרתיק עבור מסה לבנבן. מורחים את שפתי הפות מעט עם החללית זוויתי כאשר תקע קשה לראות. נקבות מחוברות נפרדות מן הזכר שלהם.
- אסוף blastocysts ב 3.5 DPC.
- להרדים נשים בהריון על ידי השיטה אושרה (למשל, נקע בצוואר הרחם). ביצוע חתך midventral לנתח את הרחם ואת oviduct (עדיין מחוברים זה לזה) באמצעות מספריים ו מלקחיים בסדר.
- כופפו את מחט 26-מד לתוך זווית 45 °. צרף מזרק 1 מ"ל מלאים בינוני M2 עד מחט כפוף הזה ולהשתמש בו כדי לרוקן את blastocysts מהרחם לתוך המכסה של צלחת 10 ס"מ.
- הכנס את המחט לתוך סוף הרחם כי הוא קרוב ביותרהשחלה. החזק את המחט במקום עם מלקחיים עדינים תוך דחיפת הבוכנה; נפיחות של הרחם מציינת שטיפה מוצלחת.
- השתמש פיפטה בפה (בקוטר של 100 - 200 מיקרומטר) כדי לאסוף את כל העוברים ולשטוף אותם פעמי ירידה של מדיום M2 הטרי. מייד לאחר שנשטף, להעביר את blastocysts אל צלחות התרבות (ראה להלן).
הערה: דיסקציה וטיפול blastocysts של צריך להיעשות זרימת אוויר למינרית.
- הגדרת הזדווגויות זמן בערב ולבדוק הזדווגות מתחברת למחרת בבוקר.
- לבודד mESCs KO RMCE תואם
- כן צלחת 12-היטב עם mitomycin-C שטופל DR4 MEFs (ראה הטבלה של חומרים) יום אחד לפני הבידוד הבלסטוציסט.
הערה: אלה MEFs בודד Tg (DR4) 1Jae / J עכברים המכילים ארבעה גני תרופה הניתנת לבחירה ומעניקים התנגדות neomycin, puromycin, hygromycin, ו 6-thioguanine 22.- מעיל כל תרבות צלחות עם 0.1% ג'לטין. מוסיף 0.1% ג'לטיןאל צלחות תרבות, דגירה של 5 דקות ב 37 מעלות צלזיוס ב 5% CO 2, ו לשאוב את הפתרון ג'לטין. זרע אחד רבע בקבוקון של P2 MEFs בתוך צלחת 12 היטב לגדל אותם 2 מ"ל של מדיום MEF (ראה טבלה 1, טבלה של חומרים) כדי בשכבה ומחוברות 19.
- השבתת אותם עם mitomycin-C (10 מיקרוגרם / מ"ל) עבור 3 h לשטוף אותם פעמיים עם פוספט שנאגרו מלוחים (PBS) 19.
- בעזרת פיפטה בפה, צלחת blastocysts לצלחות 12-היטב gelatinized (1 היטב / העובר), עם MEFs שטופלו mitomycin-C במדיום הסלולרי SR-ES (2 מ"ל / גם) בתוספת או 2 מיקרומטר pluripotin או עם 2i (1 מיקרומטר ERK מעכב PD0325901 ו 3 מיקרומטר Gsk3 מעכב CHIR99021). לדגור על 37 מעלות צלזיוס ב 5% CO 2.
- רענן המדיום הסלולרי SR-ES (בתוספת pluripotin או 2i) כל 2 - 3 ימים.
- לבחון כל הבלסטוציסט תחת stereomicroהיקף בהגדלת 4.0x ולבדוק בקיעה לאדמת שכבת MEF.
הערה: כאשר blastocysts צוהר, הם מאבדים את המעטפת השקופה שעוטפת אותם. וולס עם blastocysts פנוי צריך להיות רענון באמצעות pipetting הפה. - פיק בצמחי ICM פרט (באמצעות סטראו) לאחר 10 - 12 ימים של התרבות באמצעות פיפטה P10 עם טיפים פנויים. העברת תולדה ב כ 10 μL של המדיום לצלחת בצורת V, 96-היטב המכיל 30 μL / היטב של PBS (בטמפרטורת החדר).
- להוסיף 50 μL של טריפסין 0.25% זה גם באמצעות פיפטה רבה דגירה במשך 3 דקות ב 37 מעלות צלזיוס ב 5% CO 2.
- הוספת 100 μL של FBS המכיל בינוני המסקלין; לנתק את בצמחים ICM לתוך תאים בודדים ידי pipetting 10-15 פעמים; ולהעביר את התאים ניתק mitomycin-C שטופלו, 96-גם צלחות MEF שהוכנו יום אחד לפני המושבות ICM נקטפים.
- משלב זה ואילך, אומים t pluripotin או 2i ממדיום המסקלין. ביום למחרת, לשנות את המדיום מן FBS- כדי SR-המכיל בינוני המסקלין (100 μL / טוב).
- להרחיב את השורות המסקלין הוקמה מתוך 96 לפורמט 24 היטב 19.
- שוטפים את התאים עם 200 μL של PBS, להוסיף 50 μL של טריפסין, דגירה במשך 5 דקות ב 37 מעלות צלזיוס ב CO 5% להוסיף 100 μL של המדיום המסקלין מבוססי FBS.; לנתק ידי pipetting 10 - פעמים 15 באמצעות פיפטה רבה; ולהעביר את התאים ניתק mitomycin-C שטופלו, 24-גם צלחות MEF.
- שנה עד בינוני SR-בסיס למחרת. הרחב את mESCs באופן דומה מן 24- לפורמט 6-היטב. הפוך 3 - 4 כוויות כפור מצלחת 6-היטב ומחוברת 19.
- זיהוי תואם-RMCE, mESCs KO הומוזיגוטיים באמצעות פריימרים PCR עבור לוקוס R26 23 ו KO אלל של בחירה (במקרה זה, p120ctn; PCRs עבור p120ctn בטלה אללים floxed תוארו לפנינַעֲרָה = "Xref"> 12).
- כן צלחת 12-היטב עם mitomycin-C שטופל DR4 MEFs (ראה הטבלה של חומרים) יום אחד לפני הבידוד הבלסטוציסט.
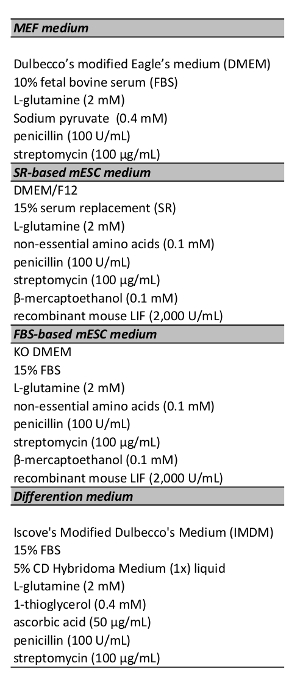
טבלה 1. מדיה ותרבות. כל התקשורת אוחסנה ב 4 ° C והתלהבה 37 ° C 30 דקות לפני השימוש.
דור 2. של וקטור כוונת RMCE תואם באמצעות שיבוט רקומבינציה
- Clone ההצלה בונה לתוך וקטורי רקומבינציה תואם באמצעות אנזים הגבלה (RE) המבוסס או מבוסס PCR 24 טכניקות שיבוט. ודא כי cDNAs מכיל קודון עצירה.
- עיצוב AttB-tagged פריימרים 24. ודא כי תחל קדימה מכיל את המרכיבים הבאים: קטע gggg, אתר AttB1, מקשר, רצף קוזאק, וכ 25 נוקלאוטידים של cDNA הצלה (החל ATG שלה). ודא כי פריימר ההפוכה יש הרכב דומה: קטע gggg, אתר AttB2, מקשר, וכ 25 nucleotides של cDNA הצלה (שלם הפוך).
- הגבר את cDNA הצל באמצעות PCR להשיג cDNA המוקפת AttB.
- בצעו תגובה 10-μL BP עם 100 ננוגרם של cDNA AttB מוקפות ו 150 ננוגרם של וקטור התורם תואם רקומבינציה, המכיל גן התנגדות-kanamycin.
- Transform 5 μL של תערובות BP בחום-הלם-המוסמכת coli MC1061 Escherichia (E. coli) חיידקים (דומים לאלה המתוארים בשלב 2.3).
- זיהוי מושבות המכילות את וקטורי cDNA המכיל הצלה הנכונה (דומות לאלה המתוארים בשלב 2.4)
- בצעו תגובה LR 10-μL באמצעות 100 ננוגרם של וקטור המכיל cDNA הצלה; 150 ננוגרם של Cre-נכרת pRMCE-DV1 וקטור 11 (LMBP 8195); ו 2 μL של תערובת recombinase, אשר מכילה אינטגראז הפאג-מקודדים ו excisionase וגורם מארח אינטגרצית חיידקים. דגירה של 2 שעות ב 25 מעלות צלזיוס.
הערה: תגובת LR היא רקומבינציה להגיביון שבו שיבוט כניסה המכיל אתרי attL וכן וקטור יעד הכוללות אתרי ATTR הוא שבגרעינון ידי תמהיל אנזים clonase LR. זו תוצאה של שיבוט ביטוי המכיל אתרי attB איגוף את הגן של עניין. - Transform 5 μL של תערובות LR בחום-הלם-המוסמכות חיידקי קולי MC1061 א.
- להוסיף 5 μL של LR תערובות על מצולעים, עקף, 2-מ"ל צינור בורג מכסה עם 40 μL של החיידק E. coli חום-הלם-המוסמכות דגירה במשך 20 דקות על הקרח. דגירה של 5 דקות ב 37 מעלות צלזיוס.
- להוסיף 1 מ"ל של מרק לוריא (LB) בינוני ו דגירה של 1 ש 'ב 37 מעלות צלזיוס. פלייט 50 μL על אמפיצילין (AMP; 100 מיקרוגרם / מ"ל) המכילים צלחות אגר ולגדול לילה בשעה 37 ° C.
- זהה את המושבות עם הווקטור הנכון למיקוד.
- פיק 5 מושבות אקראיות באמצעות קצה p200. העבר את הקצה אל מבחנת זכוכית המכילה 2 - 5 מיליליטר של מדיום LB ולגדול לילה בשעה 37 ° C.
- לְשֶׁעָבַרבדרכי ה- DNA פלסמיד מתרבויות החיידקים באמצעות ערכות זמינות מסחרי.
- לאמת אותם באמצעות רי מעכל וסדר. חותכים 0.5 - 2 מיקרוגרם של פלסמיד באמצעות 0.2 μL של רי (20 U / μL) ו 1 μL של חיץ 10x המקביל ב תגובה 10-μL. דגירה של 1 h לפחות 37 מעלות צלזיוס נפרד על ג'ל 1% agarose. בחר עבור מושבות עם הדפוס החזוי של שברי DNA.
- ניתוח וקטורים אישר (50 ng / μL) עם Tlox F (ATC ATG TCT GGA TCC CCA TC) ו IRES R פריימרים (GAA GGG מהפקולטה לרוקחות אוכלים TTC גת ATC AAG) (5 pmol / μL) באמצעות רצף סנגר.
3. בתיווך RMCE המסקלין הכוונת של הצלה בונה לוקוס R26
- התחל תרבות של mESCs KO-תואם RMCE ומעבר להם לפחות פעמיים על MEFs במדיום המסקלין מבוססי FBS. פיצול mESCs על צלחת 6-היטב gelatinized.
- ביום למחרת, לרענן את התאים, בסביבות 50% confluency, עם 1.5מ"ל של מדיום המסקלין מבוססי FBS ו transfect mESCs עם וקטור Cre-נכרת pRMCE-DV1 מיקוד המכיל cDNA הצלה.
- כן תערובת DNA. להוסיף 1 מיקרוגרם של מיקוד וקטור ו 1 מיקרוגרם של פלסמיד FLPe לביטוי 25 כדי 250 μL של המדיום DMEM טהור.
- כן תערובת lipofection. להוסיף 7 μL של מגיב transfection מבוססי lipofection (למשל, Lipofectamine 2000) ל 250 μL של המדיום DMEM טהור דגירה במשך 5 דקות בטמפרטורת החדר (RT).
הערה: RMCE הדומה מיקוד היעיל התקבלו באמצעות ריאגנטים lipofection מבוסס אחרים (למשל, Lipofectamine LTX ו Effectene). - מערבבים לתערובת DNA עם תמהיל lipofection דגירה במשך 20 דקות ב RT. פיפטה את התערובת transfection על mESCs רעננים. מערבולת בעדינות ולהשאיר למשך הלילה.
- יום אחד לאחר transfection, לפצל את כל mESCs מהצלחת 6-היטב צלחת תרבות 10 ס"מ עם שכבה ומחוברות של MEFs DR4 ו 10 מ"ל של FBS מבוססי מטרמדיום ESC.
- יומיים לאחר transfection, לבחור שיבוטים המסקלין עם חילופי קלטת נכון בתיווך FLPe ידי הוספת 0.2 מ"ג / מ"ל G418 (100x) למדיום.
הערה: הפוך עקום להרוג עבור כל אצווה של G418 לזהות את הריכוז הנמוך ביותר של G418 שהורג כל mESCs. - רענון mESCs יומי עם מדיום G418 המכיל המסקלין. מושבות אמורות להופיע לאחר 7 - 10 ימים, כך לקטוף ולהרחיב כמו אלה לכל צעד 1.4.
- אשר את השיבוטים הנכונים באמצעות PCR 11.
4. דיפרנציאציה של mESCs בגופים Embryoid (EBS)
- התחל תרבות של KO mESCs עם בונת הצלת מונחת R26 ומעבר להם לפחות פעמים על MEFs במדיום המסקלין מבוסס FBS. המסדרון, mESCs פעם על צלחות 6-היטב gelatinized כדי להיפטר MEFs.
- לשטוף עם PBS ו trypsinize התרבויות המסקלין כמעט-ומחוברות. פלייט ניתק mESCs ב דילולים שונים (1/20 ו 1/40) על לא חסיד, חיידקים-כיתת מחמד-מנות RI במדיום בידול.
- אפשר EBS להיווצר הכלים האלה עבור 30 ימים. רענן המדיום כל 2 - ימים 3 באמצעות ההליך הבא: להעביר את ההשעיה EB לצינור 50 מ"ל, ולתת EBS להתיישב על ידי כוח הכבידה, להסיר את supernatant, להוסיף בינוני טרי, ולהעביר את ההשעיה EB חזרה כיתה חיידקי צַלַחַת.
- ניתוח mESCs הממוקד EBS על ידי מיקרוסקופי אלקטרוני immunofluorescence והעביר באמצעות פרוטוקולים שתוארו קודם לכן 12.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
ההליך לבודד RMCE תואם קווי KO המסקלין מתואר באיור 2. שני דרגסטור רצופים נדרשים להשיג blastocysts KO-תואם RMCE. ראשית, עכברים KO הטרוזיגוטיים נחצים עם עכברים RMCE תואם להשיג תואם-RMCE, עכברים KO הטרוזיגוטיים. עכברים אלה משמשים לאחר מכן עבור הזדווגויות מתוזמן עם עכברים KO הטרוזיגוטיים אחרים כדי להשיג 3.5-DPC, RMCE תואם, blastocysts KO הומוזיגוטיים. הסיכוי של קבלה לעובר כזה הוא אחד מתוך שמונה, כפי שחוזה חוקי התורשה של מנדל. לכן, פרוטו...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
שיטת הבידוד המסקלין שלנו הוא ידידותי למשתמש ואינו דורש מיומנויות מתקדמות או ציוד, כגון מיקרו-של blastocysts. לפיכך, הטכנולוגיה הזו נגישה חלק גדול מהקהילה המדעית. כל מי שיש לו ניסיון תרבית תאים בסיסי יכול להפיץ בצמחי ICM ולהקים קווי mESCs. עם זאת, שטיפה וטיפול של blastocysts דורש קצת תרגול. פיפטה בפה משמש להעברת blastocysts והוא מורכב micropipette, לבעל micropipette, צינורות, וכן שופר aspirator 28. Micropipettes מחוייטת ידי ניתן חימום החלק הטוב ביותר של פיפט...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
החוקרים אין לחשוף.
תודות
אנו מודים Jinke D'Hont, פרדריק ואן Rockeghem, נטלי Farla, קלי Lemeire, ו Riet דה Rycke לקבלת תמיכה טכנית מעולה שלהם. אנו מודים גם Eef Parthoens, Evelien ואן Hamme, ואמנדה גונסאלביס ממתקן Core bioimaging של מרכז המחקר דלקת לסיוע המומחה שלהם. אנו מודים לחברי קבוצת המחקר שלנו לדיונים חשובים. עבודה זו נתמכה על ידי מדיניות המדע הבלגית (פולני אטרקציה הבינאוניברסיטאי Belspo - פרס IAP VII-07 DevRepair; https://devrepair.be), על ידי הקרן הרפואית המלכה אליזבת, בלגיה (GSKE 2008-2010; http: // www .fmre-gske.be), ועל ידי פעולות מחקר מתואמת (GOA 01G01908) של גנט האוניברסיטה, בלגיה (http://www.ugent.be/en/ghentuniv). SG הוא עמית פוסט של קרנות מחקר פלנדריה (FWO-V).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| עכברי ROSALUC | המיוצרים בבית | זרע קפוא זמין על פי בקשה | |
| עכברי R26-iPSC | המיוצרים בבית | זרע קפוא זמין על פי בקשה | |
| בדיקת כלי | Fine Science Tools | 10160-13 | כדי לבדוק אם יש פקקי הזדווגות |
| M2 בינוני | Sigma-Aldrich | M7167 | להכין אליקוטים ולאחסן ב-20 מעלות; C |
| מלקחיים עדינים (Dumont #5 מלקחיים סטנדרטיים לסטודנטים) | Fine Science | Tools 11251-10 | תרסיס עם 70% EtOH לפני השימוש (אין לבצע חיטוי) |
| 23 גרם מחטים | Fine-ject | 8697 | |
| 1 מ"ל מזרקים | רכים | 6680 | |
| 60 מ"מ בדרגת חיידקים (לשטיפה) | Gosselin | BB60-01 | |
| פיפטה פה | תוצרת הבית | ראה דיון | |
| פיברובלסטים עובריים של עכבר (MEFs, TgN (DR4)1 זן ג'ה) | ATTC | SCRC-1045 | |
| TgN (DR4)1 עכברי ג'ה | מעבדת ג'קסון | 3208 | |
| מיטומיצין C | Sigma-Aldrich | M0503 | |
| תמיסת מלח פוספט (PBS) ללא סידן או מגנזיום | עכברי Gibco | 14190-094 | |
| Tg(DR4)1Jae/J | JAX | 3208 | המכילים ארבעה גנים הניתנים לבחירת תרופות ו-DR4 MEFS מעניקים עמידות לניאו-מיצין, פורומיצין, היגרומיצין ו-6-תיוגונין |
| 0.1% ג'לטין | סיגמא-אולדריץ' | G1393 | ממיסים 0.5 גרם במים מזוקקים של 500 מ"ל, אוטוקלאב ומאחסנים בטמפרטורה של 4 מעלות צלזיוס. |
| טריפסין (0.25%) | גיבקו | 25200-056 | |
| 2 μ M פלוריפוטין | קיימן כימיקל | 10009557 | |
| אוסף pRMCE-DV1 | BCCM/LMBP | LMBP 08870 | זמין לציבור מקולקציית BCCM/LMBP (http://bccm.belspo.be) |
| pRMCE-DV1 | BCCM/LMBP | LMBP 08195 | זמין לציבור באוסף BCCM/LMBP (http://bccm.belspo.be) |
| pCAG-FlpE-IRES-Puro-pA | Addgene | 20733 | |
| הלם חום מוכשר DH5 & אלפא; חיידקים | תוצרת הבית | ||
| Gateway pDONR221 וקטור | Thermo Fisher | 12536-017 | מכיל גן עמידות לקנמיצין |
| BP קלונאז II mix | Thermo Fisher | 11789-020 | |
| LR קלונאז II תערובת | Thermo Fisher | 11791-020 | |
| מרק לוריא (LB) | |||
| אמפיצילין | |||
| Applied Biosystems 3730XL DNA Analyzer | Thermo Fisher | 3730XL | |
| G418 | Thermo Fisher | 11811-023 | |
| Lipofectamine 2000 מגיב טרנספקציה | Thermo Fisher | 11668027 | |
| Lipofectamine LTX מגיב טרנספקציה | Thermo Fisher | 15338100 | |
| מגיב | טרנספקציה אפקטןQiagen | 301425 | |
| GATEWAY pENTR 1A וקטור | תרמו פישר | A10462 | וקטורי תואם רקומבינציה מונוקלונלי |
| אנטי-p120ctn נוגדן | BD Transduction Laboratories | 610134 | |
| עכבר חד שבטי נוגדן נגד אקדרין | BD Transduction Laboratories | 610181 | |
| <חזק>ציוד כללי | |||
| חיתוך סטריליים | מספריים עדינים ומלקחיים לניתוח הרחם | ||
| פיפטות סטריליות: 5 מ"ל, 10 מ"ל ו-25 מ"ל | |||
| צינורות | |||
| צלחות תרבית 96 בארות תחתית בצורת V ותחתית שטוחה) | |||
| כלי תרבות: 24 בארות, 12 בארות ו-6 בארות | |||
| פיפטות רב-ערוציות (לפיפטה 30, 50, 100 ו-200 μ L) | |||
| מאגרים רב-ערוציים סטריליים | |||
| גישה לזרימת | |||
| גישה לחממה ב-37 מעלות; C עם 5% CO2 | |||
| גישה למיקרוסקופ | |||
| גישה לצנטריפוגה | |||
| גישה למיקרוסקופ סטריאו עם אור מועבר | |||
| <מדיה>תרבותית חזקה | |||
| <חזקה>MEF בינוני | מאוחסן ב-4 מעלות; C; חם 30 דקות ב-37 מעלות; C לפני השימוש | ||
| ב-Dulbecco' s שונה Eagle' s בינוני (DMEM) | Gibco | 41965-062 | |
| 10% סרום בקר עוברי (FBS) | סיגמא-אולדריץ' | F-7524 | |
| L-גלוטמין (2 מ"מ) | Gibco | 25030-024 | |
| נתרן פירובט (0.4 מ"מ) | ג'יבקו | 11360-039 | |
| פניצילין (100 יח'/מ"ל) | גיבקו | 15140-122 | |
| סטרפטומיצין (100 ומיקרו; גרם/מ"ל) | גיבקו | 15140-122 | |
| mESC מבוסס SR בינוני | מאוחסן ב-4 מעלות; C; חם 30 דקות ב-37 מעלות; C לפני השימוש | ||
| DMEM/F12 | Gibco | 31330-038 | מעורבב ביחס של 1:1 |
| 15% החלפת סרום נוק-אאוט (SR) | Gibco | 10828– 028 | |
| L-גלוטמין (2 מ"מ) | Gibco | 25030-024 | |
| 0.1 מ"מ חומצות אמינו לא חיוניות | גיבקו | 11140-050 | |
| פניצילין (100 יח'/מ"ל) | גיבקו | 15140-122 | |
| סטרפטומיצין (100 ומיקרו; גרם/מ"ל) | גיבקו | 15140-122 | |
| &בטא;-מרקפטואתנול (0.1 מ"מ) | סיגמא-אולדריץ' | מ 3148 | |
| 2,000 U/mL עכבר רקומביננטי LIF | (מתקן שירות חלבון IRC/VIB) | ||
| <מדיום mESC מבוסס חזק>FBS (בדומה למדיום mESC מבוסס SR) | מאוחסן ב-4° C; חם 30 דקות ב-37 מעלות; C לפני השימוש | ||
| נוקאאוט DMEM | Gibco | 10829-018 | |
| 15% FBS | Hyclone | SH30070.03E | |
| Differention Medium | מאוחסן ב-4° C; חם 30 דקות ב-37 מעלות; C לפני השימוש | ||
| במדיום של Iscove's Modified Dulbecco (IMDM) | Gibco | 21980-032 | |
| 15% FBS | Hyclone | SH30070.03E | |
| 5% CD Hybridoma Medium(1x) נוזלי | גיבקו | 11279-023 | |
| 2 מ"מ L-גלוטמין | גיבקו | 25030-024 | |
| 0.4 מ"מ 1-תיוגליצרול | סיגמא-אולדריץ' | M-6145 | |
| 50 μ גרם/מ"ל חומצה אסקורבית | סיגמא-אולדריץ' | A-4544 | |
| פניצילין (100 יח'/מ"ל) | גיבקו | 15140-122 | |
| סטרפטומיצין (100 ומיקרו; גרם/מ"ל) | גיבקו | 15140-122 | |
| 2i | |||
| 1 μ מעכב M Erk PD0325901 | Axon Medchem | Axon 1408 | |
| 3 μ מעכב M Gsk3 CHIR99021 | Axon Medchem | Axon 1386 |
מקורות
- Gul, I. S., Hulpiau, P., Saeys, Y., van Roy, F. Metazoan evolution of the armadillo repeat superfamily. Cell Mol Life Sci. , (2016).
- Valenta, T., Hausmann, G., Basler, K. The many faces and functions of beta-catenin. EMBO J. 31, 2714-2736 (2012).
- Pieters, T., van Hengel, J., van Roy, F. Functions of p120ctn in development and disease. Front Biosci. 17, 760-783 (2012).
- Keirsebilck, A., et al. Molecular cloning of the human p120ctn catenin gene (CTNND1): Expression of multiple alternatively spliced isoforms. Genomics. 50, 129-146 (1998).
- Capecchi, M. R. Gene targeting in mice: functional analysis of the mammalian genome for the twenty-first century. Nat Rev Genet. 6, 507-512 (2005).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153, 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154, 1370-1379 (2013).
- Fu, Y., et al. High-frequency off-target mutagenesis induced by CRISPR-Cas nucleases in human cells. Nat Biotechnol. 31, 822-826 (2013).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6, 7-28 (2004).
- Sandhu, U., et al. Strict control of transgene expression in a mouse model for sensitive biological applications based on RMCE compatible ES cells. Nucleic Acids Res. 39, 1(2010).
- Haenebalcke, L., et al. Efficient ROSA26-based conditional and/or inducible transgenesis using RMCE-compatible F1 hybrid mouse embryonic stem cells. Stem Cell Rev. 9, 774-785 (2013).
- Pieters, T., et al. p120 Catenin-Mediated Stabilization of E-Cadherin Is Essential for Primitive Endoderm Specification. PLoS Genet. 12, e1006243(2016).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292, 154-156 (1981).
- Martin, G. R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 78, 7634-7638 (1981).
- Cheng, J., Dutra, A., Takesono, A., Garrett-Beal, L., Schwartzberg, P. L. Improved generation of C57BL/6J mouse embryonic stem cells in a defined serum-free media. Genesis. 39, 100-104 (2004).
- Bryja, V., et al. An efficient method for the derivation of mouse embryonic stem cells. Stem Cells. 24, 844-849 (2006).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453, 519-523 (2008).
- Chen, S., et al. Self-renewal of embryonic stem cells by a small molecule. Proc Natl Acad Sci U S A. 103, 17266-17271 (2006).
- Pieters, T., et al. Efficient and User-Friendly Pluripotin-based Derivation of Mouse Embryonic Stem Cells. Stem Cell Rev. 8, (2012).
- Yang, W., et al. Pluripotin combined with leukemia inhibitory factor greatly promotes the derivation of embryonic stem cell lines from refractory strains. Stem Cells. 27, 383-389 (2009).
- Haenebalcke, L., et al. The ROSA26-iPSC Mouse: A Conditional, Inducible, and Exchangeable Resource for Studying Cellular (De)Differentiation. Cell Rep. 3, (2013).
- Tucker, K. L., Wang, Y., Dausman, J., Jaenisch, R. A transgenic mouse strain expressing four drug-selectable marker genes. Nucleic Acids Res. 25, 3745-3746 (1997).
- Nyabi, O., et al. Efficient mouse transgenesis using Gateway-compatible ROSA26 locus targeting vectors and F1 hybrid ES cells. Nucleic Acids Res. 37, 55(2009).
- Katzen, F. Gateway((R)) recombinational cloning: a biological operating system. Expert Opin Drug Discov. 2, 571-589 (2007).
- Schaft, J., Ashery-Padan, R., vander Hoeven, F., Gruss, P., Stewart, A. F. Efficient FLP recombination in mouse ES cells and oocytes. Genesis. 31, 6-10 (2001).
- Spencer, H. L., et al. E-cadherin inhibits cell surface localization of the pro-migratory 5T4 oncofetal antigen in mouse embryonic stem cells. Mol Biol Cell. 18, 2838-2851 (2007).
- Stryjewska, A., et al. Zeb2 Regulates Cell Fate at the Exit from Epiblast State in Mouse Embryonic Stem Cells. Stem Cells. , (2016).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the mouse embryo: A laboratory manual. , Cold Spring Harbor Laboratory Press. Third edn (2003).
- van den Berghe, V., et al. Directed migration of cortical interneurons depends on the cell-autonomous action of Sip1. Neuron. 77, 70-82 (2013).
- Li, J., et al. The EMT transcription factor Zeb2 controls adult murine hematopoietic differentiation by regulating cytokine signaling. Blood. , (2016).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
