הזמינות של SCs סומאטית הוא קריטי עבור רפואה רגנרטיבית, מידול המחלה ולהשיג תובנה SC מאפיינים. כאן אנו מציגים אסטרטגיות ניסיוני לתכנת, חוץ גופית בתוך, הבדיל תאים בוגרים לתאי גזע רקמות ספציפיות ניתן להרחבה/קדמון המקביל שלהם על-ידי הביטוי ארעית של יחיד activator תעתיק שיתוף הפה.
במאמר זה
סיכום
תקציר
כאן אנו מציגים פרוטוקולים לבודד תאים העיקרי ולסובב שאותם לתוך גזע/ובתאים (SCs) של אותה שושלת לביטוי ארעית של הגורם שעתוק לחרטט. בשיטה זו, תאים luminal (LD) של בלוטת החלב העכבר מומרים תאים כי התערוכה מאפיינים פונקציונליים המולקולריים של החלב SCs. הפה גם פונה באופן מלא הבדיל הלבלב אקסוקרינית תאים לתוך הלבלב צינור דמוי אבות. באופן דומה, כדי SCs אנדוגני, טבעי, תאי גזע דמוי הפה-induced ("ySCs") ניתן בסופו של דבר להרחיב כמו תא צורב תרבויות לטווח ארוך במבחנה, ללא צורך נוסף של הפה חוץ רחמי/טאז, כפי ySCs חוננו מדינה heritable SC דמוי עצמי המתחדש.
ההליך התיכנות המובאת כאן מציעה את האפשרות ליצור ולהרחיב במבחנה שופט ובתאים של מקורות רקמה שונים החל מתאים. הרחבה פשוטה של תאים סומטיים שמחוץ יש השלכות על רפואה רגנרטיבית, הבנת מנגנונים של הגידול חניכה ועוד, באופן כללי, עבור תא ולימודי ביולוגיה התפתחותית.
מבוא
תאי גזע סומאטית רקמות ספציפיות (SCs) הם קריטיים עבור חידוש רקמות ותיקון לאחר פציעה. האפשרות בקלות לבודד ולהרחיב unlimitedly vivo לשעבר סומאטית SCs מייצג בעיה קריטית עבור טיפולים regenerative פוטנציאלי, כמו גם עבור יישומים SC מחקר בסיסי, מידול המחלה. התקדמות בכיוון זה, עם זאת, יש כבר מוגבל על ידי הקושי של לכידת מדינת SC אפיתל איברים שונים בתוך חוץ גופית. ואכן, מספר רקמות בוגרות SCs תושב אינם קיימים, או לא יהיו זמינים או מספר ופוטנציאל הרגנרציה שלהם עלול להתערער עקב תנאי מזדקן או מחלה. בשנת 2016, התחלנו למלא את החלל הזה על ידי דיווח את הביטוי הזה של coactivator תעתיק, אחד הפה (כן-הקשורים חלבון) או שלה חלבונים הקשורים קשר הדוק TAZ (תעתיק activator עם מוטיב PDZ), לתוך תאים סופני הבדיל ביעילות יוצרת אוכלוסיות תאים פונקציונלית, ניתן להרחבה, שאינם tumorigenic, עצמיים מבצעית, מולקולרי ניתן להבחין בין שלהם SCs המתאימים רקמות ספציפיות1. דופק של מתמשכת הפה או פעילות טאז לכמה ימים לא מספיק כדי לגרום את המראה של עצמי חידוש SCs סומאטית. זהו מצב יציב זה אינו תלוי ביטוי transgene רציף, כמו זה יכול להיות מועבר דרך התא דורות ללא ביטוי נוסף של הפה/טאז חוץ רחמי1. הפרוטוקול הציג כאן פרטים ההליך המשמש ליצירת דה נובו אפיתל גזע/ובתאים של בלוטת חלב, הלבלב, החל מתאים של רקמות אלה. הליך זה ממלא קופסה שחורה בזירה התכנות/transdifferentiation הנוכחית. המאמץ המרכזי בכיוונים האלה יש אכן כה שבמרכזה תא המעבר למצב תאי גזע (iPSC) pluripotent המושרה, ואחריו המרה של אלה מתחלקים, pluripotent SCs לתוך הבדיל יותר תאים. עם זאת, iPSCs הם tumorigenic פעם הציג את רקמות בוגרות, מעלה את הצורך לפתח פרוטוקולים שלהם התמיינות מלאה ויעילה2. עם זאת, שלב זה בידול, אפילו כאשר הדבר אפשרי, מגיע במחיר של פוטנציאל איכלוס לטווח ארוך של יכולת הרחבה, ארגון עצמי ו עוגב. אלה הן תכונות חיוניות עבור התחדשות האיברים האופייניים למעשה רק של אנדוגני רקמות ספציפיות SCs ושל ה כיום מתואר הפה-induced-SCs (ySCs). באופן דומה, transdifferentiation ישירה של תא אחד סוג אחר באמצעות קוקטיילים של שעתוק שונים גורמים גם ליצור הבדיל תאים חסרי חיוניות proliferative ו stemness פוטנציאליים3.
ההליך המתואר כאן גם מנצל הטכנולוגיה תא צורב הציג לאחרונה, שלפיו SCs אנדוגני ניתן להרחיב, הבדיל שמחוץ4. הפה-induced SCs יכול ליצור SCs להיוות תא צורב גם בתנאי ניסיוני, ביולוגית או מחלה שבה SCs אנדוגני אינם נוכחים. ברצוננו לציין כי ההבדל עם הליכים אחרים התיכנות, הסוג של תא פלסטיות המוקנית על ידי הפה יתאימו להצורה היחידה של לדוגמות מצב דמוי SC המתרחשת ברקמות החי. הכל נראה טוב תכונות כמו SC שויכה רקמות תיקון או הפעלת oncogenic5. למרות לוותר על הומאוסטזיס של רקמות בוגרות מספר, הפה ו/או טאז הם חיוני עבור התחדשות, הגידול והרחבה של SCs סומאטית חוץ גופית1,6,7,8 ,9,10,11,12
פרוטוקול
כל ההליכים בבעלי חיים בוצעו הקפדה על ההנחיות שלנו מוסדיים ואושרו על-ידי OPBA, משרד הבריאות
1. דור של הפה-induced ובחלב תאי גזע דמוי (yMaSCs)
הערה: כל יצירות תקשורת, פתרון עבור מקטע 1 מצוינים בטבלה1.
- בידוד של אוכלוסיות תאים החלב ראשי
- להכין ברדס התרבות התא: ואזמלי מנתחים חד פעמיות, פתרון hyaluronidase, דיסוציאציה בינוני, היילוד פתרון, פתרון המיון, קולגן, אני ציפוי פתרון Ca2 + chelating פתרון, שטיפת בינוני #1, לשטוף בינוני #2, dispase פתרון, החלב בינונית תרבות 2D, קרח קר HBSS/PS.
- עבור ניסוי טיפוסי, להקריב 10 נקבות עכברים (או CD-1 של זן C57BL/6), בת 8-12 שבועות על ידי נקע בצוואר הרחם. לעקר את הבטן עם שפע פתרון אתנול 70% לפני ניתוח.
- לנתח את בלוטות החלב ע י ביצוע חתך בצורת Y לאורך בעור בטן בקפידה הפרדת הבלוטות מ הצפק על ידי משיכה עדינה עם מלקחיים דומונט. למקם את ביתור בלוטות בצלחת התא הלא דבק עם קרח 10 מ"ל HBSS קר/PS (בלוטות 20 עבור כל מנה), מוודא לא לשאת מעל כל רסיס עור.
- ברדס תרביות רקמה, לשטוף כל בלוטת פעם ב- 10 מ"ל של HBSS טריים/PS ומניחים בצלחת ריק התא הלא דבק (20 בלוטות עבור כל מנה). אל תשתמש תרביות רקמה צלחות, כמו התאים נוטים לדבוק בזה גורם לאובדן משמעותי של חומר.
- דק מינצ בלוטות החלב עם אזמלים עד תערובת הומוגנית של 1 מ מ3 קטעים מתקבל. לשחזר את הרקמה טחון כל מנה ב 10 מיליליטר דיסוציאציה בינוני עם פיפטה סרולוגית 25 מ ל למנוע סתימת ולהעביר ההשעיה 50 מ ל צינור חרוטי pipetting לפחות 5 x כדי disaggregate רקמות גושים.
הערה: עיכול יעיל, הא תקין של הרקמות בשלב 1.1.5 חיוני. - תקופת דגירה של h 1 ב 37 ° C עם טלטול נמרץ רציפה. אחרי ה' 1, לבדוק את homogenate ואת להאריך דגירה על ידי 10 דקות אם גושים עדיין קיימות. ספין למטה הרקמה מעוכל-400 g x עבור 5 דקות בטמפרטורת החדר וזורקים את תגובת שיקוע. Resuspend בגדר רקמות ב- 3 מ"ל של פתרון היילוד, דגירה 3 דקות על קרח.
הערה: המוליזה הוא טיפול אכזרי למדי, כך קפדנית העיתוי הוא קריטי בשלב זה. - לשטוף תאים עם 10 מ"ל של שטיפת בינוני #1, ספין למטה הרקמה מתעכל ב 400 x g למשך 5 דקות וזורקים את תגובת שיקוע. Resuspend בגדר רקמות ב 10 מ"ל של שטיפת בינוני # 2, צלחת במנות תרביות רקמה 10 ס מ. דגירה המנות עבור h 1-37 מעלות צלזיוס ב חממה תרבות התא.
הערה: שלב זה תאפשר הסרה של רוב fibroblasts, זה צריך לדבוק המנה תרבות. - להתאושש התליה תא הכלים ויוצקים לתוך צינור חרוטי 50 מ. ספין-400 g x עבור 5 דקות ולהסיר את תגובת שיקוע. לשטוף את גלולה פעמיים ב 10 מיליליטר Ca2 + chelating פתרון על ידי ספינינג למטה ב 400 x g למשך 5 דקות בכל פעם. Resuspend בגדר ב 5 מ של 0.25% טריפסין/EDTA דגירה למשך 5 דקות ב 37 º C.
- הוסף 5 מ של dispase פתרון על הפתרון טריפסין, להשלים עם DNase אני 1μg/mL. פיפטה למעלה ולמטה x לפחות 5 מ לטיפ 1 disaggregate DNA גושים, תקופת דגירה של 10 דקות ב 37 מעלות צלזיוס, רועדת כל 3 דקות.
- להוסיף 10 מ של שטיפת בינוני #2- והסינון צינור חרוטי 50 מ ל דרך מסננת תא μm 40. ספין למטה התליה תא ב 400 g x עבור 5 דקות וזורקים את תגובת שיקוע, מוודא לחסל את כל הנוזל.
- טיהור תאי אפיתל החלב על ידי FACS
- מכינים את תערובת נוגדן על-ידי הוספת 10 μL לין (העכבר שושלת היוחסין קוקטייל נוגדנים), 12 μL אנטי-CD326 (Ep-קאם), כדי ריכוז סופי של 30 ננוגרם למ"ל, אנטי μL 10-CD49f, כדי ריכוז סופי של 25 ננוגרם למ"ל, אנטי μL 10-CD61, כדי ריכוז סופי של 10 ng/mL , נגד μL 2.5-CD29, כדי ריכוז סופי של 2.5 ng/mL.
הערה: מ 1.3 על צעד זה, פועלת תמיד בחושך, כדי למנוע הלבנת של הנוגדנים שכותרתו fluorescently. עבור כל גלולה: - לשמור על מספר קטן של תאים (על-ידי טבילה טיפ 100 μL בבגדר) בצינור נפרדים. Resuspend תאי μL 500 של מיון פתרון בשפופרת FACS ולשמור על הקרח כמו המדגם ללא תווית עבור ההליך FACS.
- Resuspend כל גלולה ב 200 μL שטיפת בינוני #1, מוסיפים 44.5 μL של נוגדן מיקס, פיפטה ביסודיות, תקופת דגירה של 30 דקות על קרח בחושך. לדלל התליה תא ב- 10 מ"ל של שטיפת בינוני #1, ספין למטה-400 g x עבור 5 דקות וזורקים את תגובת שיקוע.
- Resuspend בגדר תא ב 2 מ"ל של מיון פתרון והמשך מסנן דרך ממבחנה FACS קאפ-מסננת FACS-הפרדה של אוכלוסיות תאים (כמו איור 1B). לפני ביצוע פרוטוקול FACS ססגוניות, ודא לתיקון העודפים אפשרי של כל fluorochrome לתוך כל אחד מאתנו. כדי לעשות זאת, דגירה כל נוגדן fluorophore מצומדת בנפרד עם התליה תא ומדידת חפיפה ספקטרלי ערכים עבור כל fluorophores, כל גלאי, באמצעות פקדי צבע יחיד, על מנת ליצור מטריצה פיצוי.
הערה: בניסוי זה, סדרן מצויד זרבובית μm 85 הועסק. הכנה טיפוסי של עכברים הנשי 10 תניב כ-800 אלף תאים LD. המשך סינון משני אם גושים הנוצרים במהלך הליך FACS.
- מכינים את תערובת נוגדן על-ידי הוספת 10 μL לין (העכבר שושלת היוחסין קוקטייל נוגדנים), 12 μL אנטי-CD326 (Ep-קאם), כדי ריכוז סופי של 30 ננוגרם למ"ל, אנטי μL 10-CD49f, כדי ריכוז סופי של 25 ננוגרם למ"ל, אנטי μL 10-CD61, כדי ריכוז סופי של 10 ng/mL , נגד μL 2.5-CD29, כדי ריכוז סופי של 2.5 ng/mL.
- זריעה של ראשי תאים LD החלב
- במהלך הליך FACS מעיל צלחת תרביות רקמה טוב רב עם קולגן אני ציפוי פתרון. תקופת דגירה של h 1 ב 37 מעלות צלזיוס, 5% CO2 בחממה תרבות התא. הסר את הפתרון ציפוי ולשטוף שטיפה בינונית #1 לפני ציפוי.
- לשטוף את התאים התאוששה FACS הליך עם 10 מ"ל של שטיפת פתרון #1, ספין לאורך 400 g x עבור 5 דקות, לחסל את תגובת שיקוע. Resuspend בגדר תא ב החלב 2D תרבות בינוני (500 µL טוב) וצלחת קולגן מטופלים. תן את התאים לשבת חממה התרבות התא במשך 48 שעות לאפשר את התא הנכון מצורף והפצת.
הערה: לצורך מיון טיפוסי של עכברים הנשי 10, 6-8 בארות של צלחת 24-ובכן רב טוב תניב של צפיפות תא אופטימלית (תאים 100 000/טוב).
- אינדוקציה של yMaSCs (הפה-induced החלב תאי-גזע)
הערה: משלב זה ואילך, כל הפרוצדורות צריכה להתבצע בתנאים BSL-2.- להכין את המושבה החלב בינוני. טרי להוסיף מטריקס קרום המרתף למדיום לפני תא זריעה.
- עבור אינדוקציה של הפה-induced החלב תאי גזע (yMaSCs), מגלי התאים LD הראשי על-ידי זיהום lentiviral על ידי ערבוב כרך אחד של תגובת שיקוע נגיפי FUdeltaGW-rtTA, כרך אחד של תגובת שיקוע FUW-tetO-הפה (או טאז), עם שני כרכים של החלב ללא סרום 2D תרבות בינוני 2 x ריכוזים של תוספי מזון, בעוד הנפח הכולל של 500 מ"ל. דגירה תאים עם supernatants lentiviral במשך 48 שעות. הכנה lentiviral טיפוסי, בבקשה פנה ל פרוטוקול מקוונים22.
- לאחר ההדבקה, לשטוף תאים חסיד, להתייחס החלב בינונית תרבות 2D בתוספת 2 µg/mL דוקסיציקלין לזירוז ביטוי גנים אקסוגני של הפה (או טאז). השתמש תאים נגועים ריק, וקטורים לביטוי EGFP או YAPS94A או תאים נגועים inducible וקטורים הפה (או טאז), אך עזב מבלי דוקסיציקלין כפקדי שלילי.
הערה: זיהום מוצלחת הניתנים לאימות על ידי לרביעיית-PCR עם תחל ספציפיות עבור האדם לקשקושים שלך transgene, כפי שתואר לעיל1. - לאחר 7 ימים האינדוקציה עם דוקסיציקלין, ניתוק תאים חסיד על ידי דגירה עם 0.05% טריפסין/EDTA (150 μL טוב) למשך 10 דקות ב 37 מעלות צלזיוס; עוצרים trypsinization על ידי דילול 1:5 במדיום שטיפת #2 (600 μL טוב), לספור תאים. Resuspend בתאים המדיום המושבה החלב (1 מ"ל במשך כל), בתוספת 2 μg/mL דוקסיציקלין ו זרע-צפיפות clonogenic של 1,000 תאים/טוב במצורף ultralow. ובכן 24 צלחות.
הערה: ודא כי המדיום המושבה החלב קפוא בזמנו של קרום המרתף מטריקס בנוסף. המטריקס קרום המרתף חייב תמיד להיות מאוחסנים ב-20 ° C עם ההגעה, הקרת לאט ב 4 ° C בלילה; ברגע הקרת, זה תמיד להיות מטופלת על הקרח, בהתאם להנחיות היצרן. - פעם לחרטט-לבטא LD תאים מתרבים, ינבכ MaSC כמו מושבות ההשעיה (מושבות yMaSC) (14 ימים לאחר זריעה), לספור ומתחילים לעבד עבור בבדיקות (איור 1C) נוספות.
הערה: תאי בקרה שלילית (כמו נקודת 1.4.3) יישאר כמו תאים בודדים. - לחדש את התרבות טריים החלב המושבה בינונית כל 72 h במהלך 14 ימי yMaSC המושבה צמיחה; לעשות זה להכין עם aliquot של המושבה החלב בינונית ללא מטריצה קרום המרתף 5%, בתוספת 10 x ריכוז של תוספי מזון ולהוסיף 1:10 מהנפח הכולל כדי מכל קידוח (למשל 100 μL ב 1 מ"ל של מדיום הכולל), כדי להימנע לדילול יתר המתלה מטריקס.
- תת culturing של yMaSCs
- לשחזר את המושבות העיקרי של המדיום המושבה החלב, ואז מביצועם reseed.
הערה: מושבות yMaSC שמקורם תאים LD היו הפה לרכוש יכולת התחדשות עצמית, יכול להיות בהצלחה תת בתרבית ללא נוסף דוקסיציקלין המינהל (כלומר, ללא תלות הביטוי של הפה הטרנסגניים/טז). - להכין, ברדס התרבות תאים, המושבה החלב בינוני כמו שלב 1.4.1 תא צורב החלב בינוני.
- לאסוף את כל דגימה, דגירה בהיקף עודף (10:1) של קרח HBSS קר עבור h 1 על קרח, כדי solubilize המטריקס קרום המרתף. לשטוף את המושבות 3 x על ידי צריך שתוציאו ב g x 180 במשך 5 דקות, resuspend בקרח HBSS קר. דגירה מושבות ב- 0.05% טריפסין/EDTA 10 דקות ב 37 ° C כדי להשיג השעיה תא בודד. פיפטה המושבות לאורך 10 x עם טיפ p1000 כדי להבטיח דיסוציאציה השלם לרמה תא בודד.
- הספירה של reseed בתאים המדיום המושבה החלב (1 מ"ל במשך כל) ללא דוקסיציקלין-צפיפות clonogenic של 1,000 תאים/טוב במצורף ultralow. ובכן 24 צלחות. חזור על פעולה זו passaging את הליך כל 10-14 ימים כדי להעריך את התחדשות עצמית.
- לפני המעבר השלישי, מעבר yMaSC מושבות בתנאים תרבות תא צורב, כדי לשפר את הרחבה yMaSC, כדי לאפשר היווצרות של מיני-בלוטות, זה לארגן עצמית אפיתל bilayered מקרוב מזכירה בלוטת חלב אין ויוו ארגון היסטולוגית.
- לשחזר מושבות של המדיום המושבה החלב כמו שלב 1.5.3 כדי 1.5.4. מושבות resuspend פקטורי גדילה 100% מופחת המטריצה קרום המרתף, בהתחשב כדי replate מקסימום של 20-25 מושבות עבור כל טוב של צלחת 24-ובכן ultralow מצורף ב- 150 µL של המטריקס.
- דגירה הצלחות בסדרה חממה התרבות התא במשך 40 דקות ב 37 מעלות צלזיוס ותנו המטריקס קרום המרתף לחזק ולאחר מכן כיסוי של ג'לים עם 500 μL של המדיום תא צורב החלב.
- אחרי כמה ימים לבדוק הקמת מושבות לטופס הנצה organoids (איור 1E).
- אחרי 10-14 ימים, מעבר או תהליך organoids לצורך ניתוח נוסף.
- המעבר organoids תרבויות, לשחזר organoids על-ידי איסוף כל דגימה של המקננת בכרך עודף (10:1) של קרח HBSS קר עבור h 1 על קרח, כדי solubilize המטריקס קרום המרתף. לשטוף organoids 3 x על ידי ספין למטה ב g x 180 במשך 5 דקות, resuspend בקרח HBSS קר.
- דגירה organoids ב- 0.05% טריפסין/EDTA 10 דקות ב 37 ° C כדי להשיג השעיה תא בודד. פיפטה organoids לאורך 10 x עם טיפ p1000 כדי להבטיח דיסוציאציה השלם לרמה תא בודד.
- Reseed כמו השעיה תא בודד בטיפה של מטריקס קרום המרתף מופחת גורם גידול של 100% (150 μL עבור כל טוב של צלחת 24-ובכן ultralow מצורף). תן המטריקס קרום המרתף טופס ג'ל על-ידי המקננת 40 דקות ב- 37 מעלות צלזיוס ב חממה התרבות תאים, שכבת-על ג'לים עם 500 μL של המדיום תא צורב החלב.
הערה: yMaSC organoids יכול להיות cryopreserved על ידי שחזור מתרבות מטריקס קרום המרתף 100% כמו שלב 1.5.13, הימנעות trypsinization. אחסן המדיום תא צורב החלב בתוספת 10% דימתיל סולפוקסיד. - במהירות להקפיא את organoids yMaSC ב-80 מעלות צלזיוס ולאחר מכן נשמר חנקן נוזלי.
- לשחזר את המושבות העיקרי של המדיום המושבה החלב, ואז מביצועם reseed.
2. דור של yDucts
הערה: כל יצירות תקשורת, פתרון עבור מקטע 2 מצוינים בטבלה מס ' 2.
- בידוד של ראשי acini הלבלב
- הכנס של דיסקציה מלקחיים ומספריים, 70% EtOH ולהכין תחת התא התרבות הוד acinar תרבות בינוני, 15 מ"ל עבור כל העכבר; שחזור acinar בינוני, 60 מ עבור כל העכבר; PBS/PS; collagenase פתרון מניות; collagenase אני פתרון A, 15 מ"ל עבור כל העכבר; שהמשרד זנב החולדה קולגן לי פתרון. לנטרל קולגן זנב העכברוש את ה-pH = 7, על-ידי התאמת קודם עם NaOH 0.1 N למתן חומצת חומץ אשר הקולגן התפרקה, ואחר עם 10N HCl. Dilute ל 2.5 מ"ג/מ"ל ב- PBS/PS. לשמור על הקולגן זנב החולדה, אני, כל ריאגנטים על קרח כדי לנטרל. את זה. להקריב 6 לעכברים 9 שבועות בן של גנוטיפ נכונה.
- הנח את העכבר כל על גבו, לשטוף את הבטן עם 70% אתנול פתרון. עושים חתך אורכי לאורך הקיר בטן. לאתר, לנתח הלבלב (באמצעות הטחול כמדריך) ומניחים אותו בקערה 10 ס מ התא הלא דבק בקרח 10 מ"ל קר PBS/PS. להעביר הכלים מיד ברדס התרבות תאים. משלב זה ואילך, פועלים תמיד תחת ברדס התרבות תאים.
- העברת כל הלבלב בתא החדש הלא-תבשיל דבק בעבר מלא עם 7 מ של collagenase אני פתרון א
- במהירות מינצ כל הלבלב עם זוג ואזמלי מנתחים חד פעמיות, כדי לקבל השעיה רקמות הומוגנית של בערך 1 מ3 קטעים.
הערה: חשוב לציין כי הליך זה צריך לקחת לא יותר מ 2 דקות על יכולת הקיום של האופטימלית תא. - דגירה המנה collagenase עיכול ב 37 מעלות צלזיוס, 5% CO2 ב חממה התרבות התא במשך 10 דקות, רועדת כל 3 דקות כדי להבטיח עיכול רקמת הומוגנית.
- לשחזר את הרקמה מתעכל צינור חרוטי 50 מ ל (אחד עבור כל הלבלב), כדי לבשל עם 10 מ"ל של מדיום לשטוף Acinar למקם אותו בצינור חרוט באותה 50 מ ל, pipetting מתעכל רקמות הלוך ושוב לא יותר מ 3 x.
- ספין למטה הרקמה מתעכל למשך 5 דקות ב g x 100 ב 18 ° C ולהסיר את תגובת שיקוע.
הערה: ספין למטה התאים ב 18 ° C כדי להוריד את פעילות collagenase במהלך שלב זה. - Resuspend הרקמה הצניפה ב 7 מ של collagenase אני פתרון A ויוצקים פתרון זה לתוך 10 ס מ התא הלא דבק תבשיל חדש.
- דגירה המנה בסיבוב השני של עיכול collagenase ב 37 מעלות צלזיוס למשך 10 דקות כמו שלב 2.1.5, רועדת כל 3 דקות כדי להבטיח עיכול רקמת הומוגנית. בינתיים, להכין אחד נקי 50-mL צינור חרוטי כל הלבלב עם מסננת תא 100 μm.
- לשחזר את הרקמה מתעכל ומעבירים דרך מסננת תא 100 μm מאת macerating הרקמה עם פומפה מזרק סטרילי 10 מ"ל (הקפד היטב לחץ כלפי מטה הרקמה, הימנעות כוחות גזירה וצורניים השטח מסננת). כדי לבשל עם 10 מ"ל של שטיפת acinar בינוני, עוברים אותם 100 μm תא מסננת הזה 10 מ"ל.
- ספין למטה הרקמה מתעכל למשך 5 דקות ב g x 100 ב 18 ° C ולהסיר את תגובת שיקוע.
- לשחזר בגדר רקמות עם 10 מ"ל של שטיפת acinar בינונית. העברת הפתרון תא 50 מ ל צינור חרוטי כבר המכילים נוספים 10 מ"ל של טרי שטיפת acinar בינוני, הימנעות pipetting מוגזם עבור resuspension של בגדר.
- ספין למטה הרקמה מתעכל למשך 5 דקות ב g x 100 ב 18 ° C ולהסיר את תגובת שיקוע.
- בזהירות resuspend הרקמה מתעכל ב 6 מ של שחזור acinar בינוני, להפיצו בבארות 2 של ריבוי 6-ובכן ובכן תרביות רקמה צלחת, 3 מ ל כל אחד. תחת stereomicroscope בקפידה להעריך את איכות הבידוד acinar, אשר מופיעים השעיה הומוגנית של אשכולות acinar, עם שיעור קטן של תאים בודדים (ראה איור 2B); להסיר כל רקמות גדול גושים בסופו של דבר להציג (בדרך כלל גלוי גם לעין בלתי מזוינת), על-ידי pipetting אותם הפתרון.
- זריעה של ראשי acini הלבלב
- דגירה האשכולות acinar מעוכל-37 מעלות צלזיוס חממה התרבות התא כבר שעתיים, כדי לאפשר התאוששות התא.
- במהלך המעיל שחזור תא 48-ובכן רב בארות עם 100 μL של זנב ינוטרלו עכברוש קולגן, תקופת דגירה של h 1-37 מעלות צלזיוס חממה התרבות התא כדי לאפשר כרית הידרוג לטופס.
- אחרי שעתיים של תא התאוששות, לאסוף התליה תא acinar צינור חרוטי, ספין למטה במשך 5 דקות ב g x 100 ב 18 ° C, להסיר את תגובת שיקוע.
- Resuspend את acini בהיקף המתאים של תרבות acinar בינוני (150 μL עבור כל טוב של צלחת 48 תרביות רקמה טוב). זרע בכל חלופה מועדפת הלבלב לתוך 16 בארות כדי להשיג צפיפות של האופטימלית (100-120 acinar אשכולות/טוב).
- לדלל ההשעייה acinar עם אמצעי אחסון שווה של קולגן זנב העכברוש ינוטרלו לי פתרון, שמירה על צינורות על קרח. מערבבים בזהירות ובמהירות זרע התליה תא על גבי כרית קולגן שמתואר 2.2.2 (300 μL עבור כל טוב של צלחת תרביות רקמה טוב רב טוב 48).
- דגירה h 1-37 מעלות צלזיוס חממה התרבות התא כדי לאפשר את הידרוג לטופס.
- אינדוקציה של הלבלב organoids
- כיסוי קולגן hydrogels עם 500 μL של Acinar תרבות בינוני בתוספת 2 דוקסיציקלין μg/ml עבור הפה תלוית אינדוקציה של הלבלב organoids מן R26-rtTAM2; TetO-הפהS127A עכברים; פקדים שלילי הינם מסופקים על ידי wt תאים בתרבית באותה תנאים או R26-rtTAM2; TetO-הפהS127A תאים תרבותי בהעדר דוקסיציקלין.
- תאים acinar תרבות Acinar תרבות בינוני בתוספת 2 דוקסיציקלין μg/mL עבור 5-7 ימים מרעננת תרבות בינוניים (300 μL טוב) כל 48 שעות, בעקבות היווצרות תא צורב על ידי שינויים מורפולוגיים לכיוון ציסטה ויוצרים מבנים דמויי-ductal ( איור 2C). ברגע organoids נוצרים, תאים שניתן passaged בתנאים תרבות תא צורב הלבלב או נמסקו עבור ניתוחים נוספים (למשל: החילוץ-RNA, immunofluorescence).
- תת culturing של הלבלב organoids
- כדי להעריך את יכולת התחדשות עצמית, clonally נודדות הפה-induced הלבלב organoids (yDucts) ב hydrogels מטריצה תלת מימדי קרום המרתף (תנאי התרבות תא צורב הלבלב) ללא תלות אספקת הפה/טאז אקסוגני (כלומר. ללא תלות דוקסיציקלין המינהל).
- להכין טריפסין 0,05%/EDTA; מטריקס קרום המרתף מופחת גורם גידול של 100%; הלבלב תא צורב בינונית, Collagenase לי פתרון ב'
- מכינים חרוט 15 מ"ל צינור עם 4 מ של Collagenase אני פתרון B בכל טוב להיות passaged.
- למחוק את תרבות בינוני, בזהירות לחלץ hydrogels מן הבארות על-ידי שאיפה עדין, להעביר אותם הצינורות חרוט.
- דגירה צינורות ב 37 מעלות צלזיוס למשך 30 דקות, עם טלטול נמרץ רציפה כדי לאפשר עיכול מלאה מטריצת קולגן (בדוק כל 10 דקות עד הידרוג הוא solubilized לחלוטין). ספין למטה תאים התאושש ב g x 750 למשך 2 דקות ולהסיר תגובת שיקוע.
- דגירה התאושש בתאים 1 מ"ל של טריפסין 0,05%/EDTA 10 דקות ב 37 ° C כדי להשיג השעיה תא בודד. לדלל טריפסין עם 9 מ של PBS 1 x, ספין למטה-750 גרם x למשך 2 דקות ולהסיר את תגובת שיקוע.
- Resuspend בגדר תא במטריצה קרום המרתף מופחת גורם הגדילה קר קרח ואת הזרע מצורף נמוך במיוחד צלחות (בדרך כלל ירידה של 150 μL היטב אחד של צלחת 24-טוב).
- . תן את הידרוג מטריקס קרום המרתף לחזק מאת המקננת הצלחות בסדרה חממה תרבות תא 40 דקות ב 37 מעלות צלזיוס, ואז כיסוי בינונית תא צורב הלבלב (500 μL במשך כל). yDucts יגדל כמו כמו ציסטה organoids ב 7-10 ימים (איור דו-ממדי).
- עבור עוד יותר passaging organoids ניתן להסיר חברת מטריקס קרום המרתף באמצעות דגירה ב- PBS קר קרח 1 x במשך 30 דקות, ואחריו על ידי שטיפה 3 פעמים ספין למטה ב g x 180 במשך 5 דקות ו- resuspension ב- PBS קר קרח 1 x כדי להימנע מטריקס דחויים. Organoids הפומבית אז עם טריפסין 0.05% 10 דקות לקבל השעיה תאים בודדים, reseeded במטריצת קרום המרתף טריים, ואז בשכבות הלבלב תא צורב בינונית (כמו 2.4.7-2.4.8).
- yDuct organoids יכול להיות cryopreserved של חנקן נוזלי על ידי שחזור מתרבות מטריקס קרום המרתף 100% כמו שלב 2.4.9, הימנעות trypsinization, אחסון לתוך הלבלב תא צורב בינוני בתוספת 10% דימתיל סולפוקסיד.
- yDuct organoids במהירות קפוא ב-80 ºC, ואז המשומרים חנקן נוזלי.
תוצאות
דור של yMaSCs
סקירה כללית של האסטרטגיה ניסיוני לתכנת ראשי תאים LD החלב על ידי ביטוי ארעית של הפה מוצג איור 1A. ראשי החלב LD בתאי אפיתל כבר טהור על ידי תא לפעיל על-פלורסנט מיון13. איור 1B מייצג את הליך המיון טיפוסית להשיג שלושה ייחודי subpopulations: התאים הבזליים (EpCAMנמוךCD49fגבוההCD61–), תאים Luminal קדמון (LP) (EpCAMגבוההCD49fנמוכהCD61+ ) ותאים LD (EpCAMגבוההCD49fנמוכהCD61–). זהירות gating של subpopulations שלוש הוא חיוני כדי לבודד הכנה טהור של LD תאים, זה מלא מובחנים, לגמרי הצמיחה נעצרה כאשר נזרע במושבה עטין ויוצרים תנאים (ראה איור 1C, עזב את החלונית). לעומת זאת, כאשר המושרה להביע את הפה אקסוגני, LD התאים מתחילים מתרבים כדי ליצור בקלות לזיהוי מושבות צפופות אפיתל בתרבויות קרום המרתף 5% מטריקס ההשעיה (איור 1C). היעילות של התכנות, העיד בסביבות 3% עבור טיפוסי ניסוי, יכול להיות שבוים על ידי ספירת מספר המושבות מעל המספר של תאים בודדים במקור נזרע בתרבויות קרום המרתף מטריקס ההשעיה (איור 1D). מחדש תאים luminal (yMaSCs) ואז ניתן להיכנס 100% קרום המרתף מטריקס תא צורב תרבות תנאים (ראה ערכת ב איור 1A), מארגן את עצמו לתוך מבנים מורכבים, כמו תא צורב להתפתח סביב לומן מרובות, להציג יכולת התחדשות עצמית מדהימה אפילו בהעדר דוקסיציקלין (קרי בהעדר ביטוי הפה הטרנסגניים) (איור 1E). בהיסטולוגיה, organoids yMaSC, נגזר להציג שכבה הבזליים (K14 חיובי), מול המטריקס קרום המרתף מחדש ECM, בשכבה luminal (K8 חיובי), מול חללים כמו לומן בתוך תא צורב (איור 1F). ארכיטקטורה זו היא להבחין מגניחותיה של organoids שהוקמה על ידי ילידי MaSCs (איור 1F).
דור של yDucts
סקירה כללית של האסטרטגיה ניסיוני לתכנת acini הלבלב הראשי על-ידי ביטוי ארעית של הפה מוצגת באיור2 א. כל אשכולות acinar מבודדים מן הנפח של רקמת הלבלב על ידי שילוב של דיסוציאציה קלה להדרה גודל באמצעות סינון. הכנה טיפוסי מוצג באיור 2B. לאחר בידוד, האשכולות תא acinar אמורה להופיע כמו השעיה של יחידות acinar אקסוקרינית של גודל הומוגני, עם שום זיהום על ידי האנדוקרינית איונים לנגרהנס או שברי העץ ductal הלבלב ואת דיסוציאציה מינימלי כדי תאים בודדים. זיהום על ידי איונים האנדוקרינית או שברי ductal היא אינדיקציה סינון סלקטיבי לקוי (שלב 2.1.10), כנראה עקב טיפול נוקשה; דיסוציאציה לא רצויים של אשכולות acinar תאים בודדים יכול להיות עקב טיפול collagenase מופרזת או unbuffered פעילות של אנזימים הפרוטאוליטי שפורסמו על ידי רקמת, אשר יכול להיות בלם על ידי טיפול SBTI נוספים.
ניסוי טיפוסי התיכנות acinar מוצג באיור 2C; בתוך 5-7 ימים של תרבות קולגן 3D-המבוסס על הידרוג בנוכחות דוקסיציקלין, הלבלב acini נגזר R26-rtTAM2/tetO-הפהS127A עכברים בקלות להפוך אשכולות דמויי צינור (כי קראנו yDucts), הולחן על ידי דקה טפט של תאי אפיתל להתרבות בסביבה חלל מרכזי המתרחב. יעילות התיכנות, שזה בסביבות 70% עבור ניסוי טיפוסי, ניתן למדוד בקלות כשקלע מספר אשכולות דמויי צינור אוורור מעל המספר הכולל של acini הזריעה (איור דו-ממדי). בקרה שלילית תאים, כלומר R26-rtTAM2 / + תאים או R26-rtTAM2/tetO-הפהS127A נותרו תאים ללא דוקסיציקלין, תמיד נשארות כמו פוסט mitotic אשכולות acinar בתנאים אלה התרבות, כפי שצוין בעבר דיווחו1 14, ,15. YDucts היו יכולים אז להיות passaged ברמה תא בודד לתוך תא צורב מבוססי Matrigel תרבות התנאים16 (ראה ערכת איור2 א), הצגת יכולת התחדשות עצמית מדהימה אפילו בהעדר דוקסיציקלין (קרי בהעדר ביטוי הפה הטרנסגניים) (2E איור).
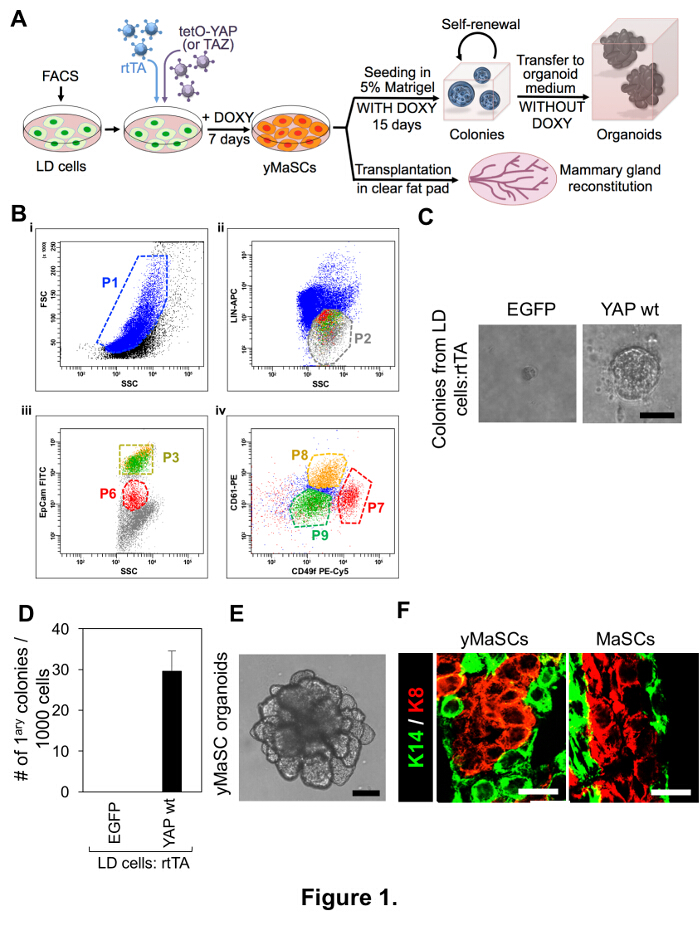
איור 1: תאי גזע תאים בידוד של LD החלב העיקרי, אינדוקציה של החלב. (א) ייצוג סכמטי של התהליך ניסיוני אימצה לתכנת מחדש תאים LD החלב העיקרי. (B) נציג FACS-מגרשים הממחישות את הליך המיון טיפוסי לטהר LD תאים. i) חלופה מועדפת תאים הן פיקוח על פי פיזור קדימה ואת הצד של תאים חיים (P1; כחול); ii) האוכלוסייה P1 יש ואז עוד יותר פיקוח על פי פרופיל לין שלה: subpopulation של תאים שושלת היוחסין-שלילי (P2; אפור) נבחרה, למעט תאים hematopoietic היוחסין-חיוביות; iii) האוכלוסייה P2 מחולק ואז של EpCAMגבוהה (P3; צהוב + ירוק) ו- subpopulationsנמוך (P6; אדום) EpCAM; iv) P3 ו- P6 הן ואז עוד יותר פיקוח על פי הפרופיל שלהם CD61/CD49f לתוך subpopulations שלושה: EpCAMנמוךCD49fגבוההCD61– התאים הבזליים (P7; אדום), EpCAMגבוההCD49fנמוכהCD61+ LP תאים (P8; צהוב) EpCAMגבוההCD49fנמוכהCD61 תאים LD– (P9; ירוק). (ג) התמונות הן להמחשה ליכולת של תאים LD, נגוע המבנה המוצע, כדי ליצור מושבות החלב 15 ימים לאחר זריעה במדיום המושבה החלב. רק תאים להפוך לבטא הפה המושבה יוצרי תאים, ואילו תאי בקרה שלילית (EGFP-נגוע) להישאר בבידוד-גידול תאים בודדים. סרגל קנה מידה = 50 μm. (ד) כימות של המושבה ויוצרים את היכולת של תאי המצוין, כמו (C). הנתונים מוצגים אומר + ש, נציג של חמישה ניסויים עצמאי, כל אחד עם משכפל טכני שש. (ה) נציג תמונה של הפה מחדש החלב כמו תאי גזע תאים (yMaSCs) לאחר 12 ימים לתוך תא צורב תרבות התנאים טריים תלת מימדי 100% קרום המרתף מטריקס הידרוג בהיעדר דוקסילין. סרגל קנה מידה = 100 μm. (נ) immunofluorescence נציג תמונות עבור דה מרקר הבזליים K14 (ירוק) ו- the luminal marker K8 (אדום) של organoids נגזר תאי המצוין, לאחר 12 ימים לתוך תא צורב תרבות תנאים. סרגל קנה מידה = 10 μm. איור זה מתרבה. et al., 2016 Panciera1. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
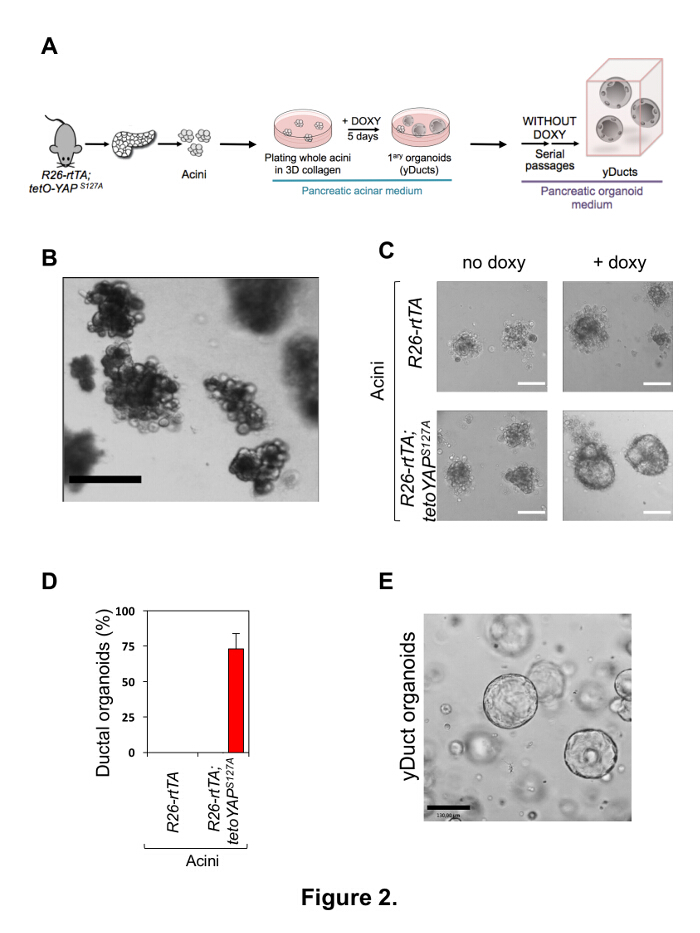
איור 2 : בידוד של ראשי בתאי הלבלב acinar, אינדוקציה של אבות הלבלב. (א) ייצוג סכמטי של התהליך ניסיוני אימצה לתכנת העיקרי בתאי acinar הלבלב אקסוקרינית. (B) תמונה ייצוגית של ראשי acini הלבלב רק לאחר ההליך בידוד (שלב 2.1.14). הכנת acinar אמורה להופיע כמו השעיה הומוגנית של אשכולות acinar, עם נוכחות מינימלית של תאים בודדים. סרגל קנה מידה = 400 μm. (ג) להחליפן בתמונות של ראשי acini הלבלב נגזר R26-rtTAM2 (לוחות העליון)או R26-rtTAM2; tetO-הפהS127A (להוריד לוחות) עכברים תרבותי ב קולגן תלת-ממדי-מבוסס הידרוג במשך 5 ימים עם או בלי דוקסיציקלין (הדוקסיציקלין), כמצוין. רק לבטא הפה acini העיקרי להמיר תאים לגדול כמו ציסטה דמוי תא צורב אחרי תוספת דוקסיציקלין. גודל ברים = 70 μm. (ד) כימות של היכולת של הלבלב acini ליצור ductal organoids על ביטוי הטרנסגניים הפה כמו (C). הנתונים מוצגים אומר + ש, נציג של חמישה ניסויים עצמאית, הופיעה עם משכפל טכני ארבע. (ה) נציג תמונה של reprogramed-הפה ductal כמו תאים (yDucts) לאחר שלושה פסוקים טריים תלת מימדי 100% קרום המרתף מטריקס הידרוג בהיעדרו של דוקסיציקלין. סרגל קנה מידה = 130 μm. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
| בידוד של תאים החלב ראשי | |
| Ca2 + chelating פתרון | חנות ב 4 ° C |
| EDTA | 0.02% w/V |
| PBS | |
| קולגן אני ציפוי פתרון | |
| חומצה אצטית 0.02N, pH 3,23 | |
| עכבר זנב קולגן (ציפוי) | 1:50 |
| פתרון dispase | חנות ב 4 ° C |
| Dispase | 5 מ"ג/מ"ל |
| PBS | |
| דיסוציאציה בינוני | |
| DMEM:F12 | |
| פתרון מניות hyaluronidase | 400 U/mL |
| עט/סטרפ | 1 x |
| פתרון מניות collagenase אני | 600 U/mL |
| פתרון haemolytic | חנות ב 4 ° C |
| מלון NH4Cl פתרון | חלקים 1 |
| TrisBase 20.6 g/L | 9 חלקים |
| להתאים את ה-pH ל 7.2 | |
| HBSS/PS | חנות ב 4 ° C |
| HBSS | |
| עט/סטרפ | 2 x |
| פתרון מניות hyaluronidase | מסנן 0.2 µm, חנות ב 4 ° C |
| Hyaluronidase מן האשכים שור (אבקת) | 2,000 U/mL |
| סודיום פוספט מאגר 1 מ' pH7.3 | |
| מלון NH4Cl פתרון | לאחסן בבית השגריר טי. |
| H2O | |
| מלון NH4קלרנית | 7.1 g/L |
| להתאים את ה-pH ל 7.65 | |
| מיון פתרון | מסנן 0.2 µm, חנות ב 4 ° C |
| BSA | 0.1% |
| EDTA | 1 מ מ |
| HEPES pH 7 | 25 מ מ |
| PBS | |
| לשטוף בינוני #1 | |
| DMEM/F12 | |
| עט/סטרפ | 1 x |
| לשטוף בינוני #2 | |
| DMEM/F12 | |
| FBS | 5% |
| עט/סטרפ | 1 x |
| החלב בינוני תרבות 2D | |
| DMEM/F12 | |
| FBS | 2% |
| הפארין | 4 מ"ג/מ"ל |
| -גלוטמין | 1 x |
| מאתר bFGF | 10 ng/mL |
| EGF מאתר | 10 ng/mL |
| עט/סטרפ | 1 x |
| אינדוקציה, Passaging של yMaSCs | |
| המושבה החלב בינוני | |
| DMEM:F12 | |
| FBS | 5% |
| הפארין | 4 µg/mL |
| -גלוטמין | 1 x |
| Matrigel (להוסיף מיד לפני זריעה) | 5% |
| מאתר bFGF | 20 ng/mL |
| EGF מאתר | 10 ng/mL |
| עט/סטרפ | 1 x |
| החלב בינוני תא צורב | |
| DMEM:F12 מתקדם | |
| B27 | 1 x |
| GlutaMax | 1 x |
| הפארין | 4 µg/mL |
| Hepes | 1 x |
| הראש האנושי | 100 ננוגרם למ"ל |
| מאתר bEGF | 20 ng/mL |
| EGF מאתר | 50 ng/mL |
| R-Spondin 1 | µg 1/mL |
טבלה 1: דור של yMaSCs. ההרכב של כל מדיה תרבות שונים ואת הפתרונות הנדרשים עבור בידוד של ראשי תאים LD החלב ו אינדוקציה של yMaSCs (סעיף 1).
| בידוד של ראשי acini הלבלב | |
| Acinar תרבות בינוני | |
| BPE | µg 50/mL |
| BSA | 0.1% |
| דקסמתזון | µg 1/mL |
| FBS | 0.1% |
| ITS-X | 1 x |
| עט/סטרפ | 1 x |
| SBTI | 0.2 מ"ג/מ"ל |
| בינוני של Waymouth | |
| שטיפת acinar בינוני | |
| BSA | 0.1% |
| עט/סטרפ | 1 x |
| RPMI בינוני | |
| SBTI | 0.2 מ"ג/מ"ל |
| שחזור acinar בינוני | |
| Acinar תרבות בינוני | |
| FBS | 30% |
| Collagenase אני פתרון A | |
| שטיפת acinar בינוני | |
| פתרון מניות collagenase אני | 360 U/mL |
| PBS/PS | חנות ב 4 ° C |
| PBS (באגירה פוספט תמיסת מלח) | |
| עט/סטרפ | 1 x |
| פתרון מניות collagenase אני | חנות ב-20 ° C |
| Collagenase, סוג אני (אבקת) | 6,000 U/mL |
| PBS | |
| Passaging של הלבלב organoids | |
| Collagenase אני הפתרון B | |
| PBS 1 x | |
| פתרון מניות collagenase אני | 240 U/mL |
| הלבלב בינוני תא צורב | |
| DMEM מתקדם/F12 | |
| B27 | 1 x |
| גסטרין | 10 ננומטר |
| FGF10 אנושי | 100 ננוגרם למ"ל |
| הראש האנושי | 100 ננוגרם למ"ל |
| EGF מאתר | 50 ng/ml |
| N-אצילוסיסטין | 1.25 מ מ |
| Nicotinamide | 10 מ מ |
| עט/סטרפ | 1 x |
| R-Spondin 1 | 1 מ"ג/מ"ל |
| SBTI | 0.2 מ"ג/מ"ל |
בטבלה 2: דור של yDucts. ההרכב של כל מדיה תרבות שונים ואת הפתרונות הנדרשים עבור בידוד של תאים acinar הראשית, אינדוקציה, passaging של yDucts (סעיף 2).
דיון
כאן אנו מציגים פרוטוקולים לתכנת שמחוץ סופני הבדיל לתאי האפיתל של רקמות שונות לתוך רקמות ספציפיות המתאימות ובתאים שלהם (או ySCs) על-ידי ביטוי ארעית של הפה, כפי שדווח בעבר1. שתוארו שני ההליכים: אחד המאפשר תכנות מחדש של תאים FACS מטוהר באמצעות וקטורים lentiviral, עוד אחד מונע זיהום נגיפי, מנצל הטרנסגניים ביטוי הפה. כל פרוטוקול מציג אסטרטגיית יעיל כדי לבודד, תאים ראשי תרבות ואסטרטגיה לכפות אקסוגני לחרטט ביטוי גנים בתאים הבדיל, יצירת דה נובו סומאטית רקמות ספציפיות ניתן להרחבה תאי גזע (ראה ערכות ב דמויות 1A ו- 2A).
אנחנו הפגינו האסטרטגיות בידוד כאן הציג ביעילות לבודד את אוכלוסיית תאים, כפי שמתואר על ידי העובדה מעולם לא גילינו שום תוצר מדגימות שליטה שלילי (דמויות 1C ו- 2 C).
הווקטורים lentiviral המשמש במחקר זה התכנות של ראשי תאים LD החלב הן דוקסיציקלין inducible, מציעים את האפשרות של שליטה חזקה מאוד של הביטוי transgene; אפשרות זו מאפשרת להפעיל, את הפה אקסוגני יהיה ביטוי. תשומת לב מיוחדת יוצבו להימנע השימוש כייל נוגדנים ויראלי מופרז, משום שזו יכולה להיות מזיקה במונחים של התכנות יעילות. במקרה של תאים acinar הראשית, החלפנו לגישה מלאה הטרנסגניים להשיג תלויי-הפה התכנות עם מניפולציות מינימלי. האסטרטגיה השנייה הוא גם מתאים acini הלבלב העיקרית, כמו אשכולות acinar מבודדים הם בקושי נוטה? זיהום lentiviral והוא עדין מאוד. האסטרטגיה הטרנסגניים המועסקים מציעה את אותו היתרון של וקטורים lentiviral תלויי-דוקסיציקלין שליטה הדוקה של ביטוי גנים. יתר על כן, האסטרטגיה הטרנסגניים לנצל עם ראשי acini הלבלב נושאת על היתרון הנוסף של הרבה יותר גבוה התיכנות יעילות לעומת ויראלי-induced התיכנות של תאים LD החלב. מעבר פלסטיות פנימיים שונים הקשורים לתאים שמקורם ברקמות שונות, שיעור גבוה יותר של התכנות הלבלב עלול להיגזר ממנה יעילות גבוהה יותר של ביטוי הקשורים לביטוי הפה אחיד ובלתי אוטונומית בכל תאים explanted. ראוי לציין, הראו כי הפה אקסוגני אינו נדרש אחרי דור של ySCs (מושבות yMaSC ו- yDucts), מבלי להשפיע על יכולת התחדשות עצמית שלהם. זה בגלל ySCs מחדש הפה אנדוגני/טאז, להשתמש בהם עבור התחדשות עצמית כאשר הפה אקסוגניים. מושבתת1.
אנחנו לאמת התפישה ySCs אכן מגיחים תאים על-ידי שליטה התא ממוצא שלנו הניסויים התיכנות באמצעות שושלת היוחסין-מעקב גנטי אימותים1.
אפיון מקיףשל ySCs מראה כי הפה-induced התכנות יוצר נורמלי סומאטית SCs1 כמוני) ברמת transcriptomic, ySCs להציג חופף מסיבית עם SCs מקורי; ii) ySCs מציגים בידול פוטנציאליים, ניתן להפיק בדיוק הבנתי multilineage תמיד מוגבלת בזהות שלהם רקמת המוצא; iii) ySCs שאינו משתנה, כאשר אי-tumorigenic מושתלים ויוו.
כאן נתאר גם הליכים לתחזק ולהרחיב בתרבות הן yMaSCs והן yDucts כמו organoids נעוץ קרום המרתף 100% מטריקס hydrogels. תנאים אלה מאפשרים ארגון עצמי של ySCs לתוך organoids תלת מימדי להבטיח קיומם של מאפיינים stemness לטווח ארוך בתרבות, שמאפשר להרחיב את אלה נובעות אוכלוסיות כרצונו ניתוחים במורד הזרם ויישומים. מסיבות לא ידועות, אנחנו לא ניתן היה לקבל yMaSC organoids על-ידי הצבת נגוע LD תאים ישירות בתנאים תרבות תא צורב 7 ימים לאחר הטיפול דוקסיציקלין בצלחת פלסטיק תרביות רקמה; במילים אחרות, השלב ביניים גדילה בתנאים המושבה החלב חיוני. בידיים שלנו, אפילו מקורי MaSCs דורשים תנאי המושבה החלב לפני passaging בתרבות תא צורב. יתר על כן, תוצר היעילה תא צורב מתקבל כאשר אנחנו להימנע בריא המושבות הראשי לתוך תאים בודדים, אבל מעדיף להעביר את המושבות ללא פגע לתוך תא צורב תרבות תנאים.
תא צורב תרבות תנאים גם לשאת את היתרון של נותן את האפשרות cryopreserve ySCs, ובלבד organoids הם התאוששו מטריצות שלהם, הימנעות תא דיסוציאציה לפני הקפאה קריוגנית באמבטיה חנקן.
הפה התכנות הליך שהוצגו ניתן להמיר סוגי תאים הבדיל ברורים שמקורם ברקמות למבוגרים שונות לתוך המתאימים רקמות ספציפיות תאי הגזע שלהם (בדקנו אותו באמצעות תאים החלב, הלבלב ו עצביים)1. ההבדל iPSCs או אחרים מאמצים התיכנות, הפה/המושרה SCs יכול לשמור על הזכרונות שלהם רקמת המוצא. ראוי לציין, דה-התמיינות של תאים סומטיים לתוך תאים ניחן בתכונות כמו גזע היא הצורה היחידה של פלסטיות גורל התא והנצפית התכנות ויוו, לדוגמה לאחר נזק לרקמות ולתמוך5,17 ריפוי הפצע , 18 , 19 , 20. זה ראוי לציין כי הפה ו TAZ הם במידה רבה לוותר על הומאוסטזיס נורמלי אבל קריטי לתיקון רקמות רקמות מספר11,21. בעקביות עם תפקוד פיזיולוגי של התיכנות השלבים המתוארים כאן, הפה/טאז לאחרונה הוכחו שתידרש התחדשות מעיים במודלים של העכבר של חולי קוליטיס באמצעות גרימת המרה של התאים מעיים למבוגרים אפיתל תיקון מציגה תכונות של בטן העובר19. הפה התכנות ובכך מרחיב את האסטרטגיות פלסטיות המושרה תא הנוכחי על-ידי מתן אמצעים כדי להפיק תאי גזע הסומטית, מדינה כה מאתגרת כדי ללכוד חוץ גופית בתוך. גישה זו, אם מורחב גם לתאי האדם, נגזר, שיש לה רלוונטיות רחבה מיישומים רפואה רגנרטיבית לחדר העבודה של המדינה stemness הסומטית, להרחבת סומאטית גזע תאים במבחנה.
גילויים
המחברים מצהירים אין אינטרסים כלכליים מתחרים.
תודות
אנו מודים קמרגו פ על המתנה של עכברים tetO-הפהS127A ; R26-rtTAM2 עכברים (מניות #006965) נרכשו מן המעבדה ג'קסון. אנו מודים Frasson קיארה ו ג'וזפה באסו לעזרה עם FACS נהלים. עבודה זו נתמכת על ידי למקורות מיוחד תוכנית מולקולרית לאונקולוגיה קלינית ' 5 לכל מיל"ומענקים למקורות PI-גרנט כדי פ מ, ועל ידי פרויקט הדגל אפיגנטיקה CNR-Miur ל פ מ הפרויקט קיבל מימון מ אירופה מחקר המועצה (ERC) תחת המחקר של האיחוד האירופי אופק 2020 ולהעניק והחדשנות (הסכם DENOVOSTEM מס 670126).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מזרקים סטריליים 10 מ"ל | קרניים | 10LC | |
| 100 מ"מ מסננת תאים | קורנינג | 352360 | |
| 15 מ"ל צינורות חרוטיים סטריליים | קורנינג | 430052 | |
| 24 בארות לוחות חיבור נמוכים במיוחד | Costar | 3473 | |
| מסנני תאים 40 מ"מ | קורנינג | 352340 | |
| 48 בארות צלחות מרובות בארות | קורנינג | 353078 | |
| צינורות חרוטיים סטריליים 50 מ"ל | קורנינג | 430290 | |
| צלחות מרובות בארות 6 בארות | קורנינג | 353046 | |
| תוסף DMEM/F12 | Gibco | 12634028 | |
| B27 (50x) | Gibco | 17504001 | |
| BPE | Gibco | 13028014 | |
| BSA | Sigma | A9418 | |
| קולגנאז, סוג I | סיגמא | 17018029 | |
| דקסמתזון | סיגמא | D4902 | |
| Dispase | Gibco | 1705-041 | |
| אזמל חד פעמי | Swann-Morton | 0503 | |
| DMEM/F12 | Gibco | 11320033 | |
| DMSO | Sigma | D2650 | |
| DnaseI | Roche | 11284932001 | |
| דוקסיציקלין היקלאט | סיגמא | D9891 | |
| צינורות EDTA | Sigma | E5134 | |
| אתנול 100% | Sigma | 51976 | |
| FACS (עם מכסי מסנן) | Falcon | 352235 | |
| FBS Gibco | 10270106 | ||
| FITC נגד עכבר CD326 (Ep-CAM) | BioLegend | 118208 | |
| FUdeltaGW-rtTA | addgene | #19780 | |
| FUW-tetO-EGFP | Addgene | #84041 | משמש כבקרה שלילית |
| FUW-tetO-MCS | Addgene | #84008 | משמש כבקרה שלילית |
| FUW-tetO-wtYAP | Addgene | #84009 | |
| FUW-tetO-YAPS94A | Addgene | #84010 | משמש כבקרה שלילית (מוטנט YAP מת בתעתיק) |
| GlutaMax | Gibco | 35050061 | |
| HBSS | Gibco | 24020117 | |
| HCl | Sigma | 30721 | |
| מלח נתרן הפרין | Sigma | H3149 | |
| תמיסת חיץ HEPES (1M) | Gibco | 15630-056 | |
| R-Spondin1 אנושי (התג שלו) | Sino Biological | 11083-H08H-5 | |
| Hyaluronidase מאשכי בקר | Sigma | H3506 | |
| ITS-X | Gibco | 51500056 | |
| נוגדן K-14 | Life Technologies | Ab7800 | |
| נוגדן K-8 | Life Technologies | Ab14053 | |
| L-גלוטמין | גיבקו | ||
| לין (קוקטייל נוגדנים לשושלת עכברים אלופיקוציאנין [APC]) | BD Biosciences | 51-9003632 | |
| Matrigel® גורם גדילה מופחת מטריצת ממברנת הבסיס, פנול ללא | אדום | 356231 | |
| N-אצטילציסטאין | סיגמא | A9165 | |
| NaOH | J.T.Baker | 0402 | |
| NH4Cl | סיגמא | A9434 | |
| ניקוטינמיד | סיגמא | 72340 | |
| דבק ללא תאים 10 ס"מ כלים (צלחת פטרי פוליסטירול סטרילית ואוסלאש; 94) | ROLL | 18248 | |
| PBS 10x | Euroclone | ECM4004XL | |
| PE אוגר נגד עכבר CD61 | BD Biosciences | 553347 | |
| PE-Cy5 חולדה אנטי אנושית CD49f | BD Biosciences | 551129 | |
| PE/Cy7 נגד עכברים/חולדות CD29 נוגדן | BioLegend | 102222 | |
| עט/סטרפטוקוקוס (10,000 יח'/מ"ל) | Gibco | 15140122 | |
| קולגן זנב עכברוש I (ציפוי) | Sigma | 122-20 | |
| קולגן זנב עכברוש I לתרבית תלת מימד | Cultrex | 3447-020-01 | |
| רקומביננטי אנושי FGF10 | Peprotech | 100-26 | |
| רקומביננטי אנושי Noggin | Peprotech | 120-10C | |
| עכבר רקומביננטי EGF | Peprotech | 315-09 | |
| עכבר רקומביננטי FGF בסיסי (bFGF) | Peprotech | 450-33 | |
| RPMI 1640 בינוני | Gibco | 31870025 | |
| SBTI (מעכב טריפסין מ-Glycine max) | Sigma | T6522 | |
| טריס בייס | Roche | 11814273001 | |
| Trypsin-EDTA 0.05% | Gibco | 25300054 | |
| Waymouth בינוני | Gibco | 31220023 |
מקורות
- Panciera, T. Induction of Expandable Tissue-Specific Stem/Progenitor Cells through Transient Expression of YAP/TAZ. Cell Stem Cell. 19 (6), 725-737 (2016).
- Bar-Nur, O. Lineage conversion induced by pluripotency factors involves transient passage through an iPSC stage. Nat Biotechnol. 33 (7), 761-768 (2015).
- Xu, J., Du, Y., Deng, H. Direct lineage reprogramming: strategies, mechanisms, and applications. Cell Stem Cell. 16 (2), 119-134 (2015).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Blanpain, C., Fuchs, E. Stem cell plasticity. Plasticity of epithelial stem cells in tissue regeneration. Science. 344 (6189), 1242281(2014).
- Bai, H. Yes-associated protein regulates the hepatic response after bile duct ligation. Hepatology. 56 (3), 1097-1107 (2012).
- Cai, J. The Hippo signaling pathway restricts the oncogenic potential of an intestinal regeneration program. Genes Dev. 24 (21), 2383-2388 (2010).
- Elbediwy, A. Integrin signalling regulates YAP and TAZ to control skin homeostasis. Development. 143 (10), 1674-1687 (2016).
- Taniguchi, K. A gp130-Src-YAP module links inflammation to epithelial regeneration. Nature. 519 (7541), 57-62 (2015).
- Zhang, W. Downstream of mutant KRAS, the transcription regulator YAP is essential for neoplastic progression to pancreatic ductal adenocarcinoma. Sci Signal. 7 (324), ra42(2014).
- Zanconato, F., Cordenonsi, M., Piccolo, S. YAP/TAZ at the Roots of Cancer. Cancer Cell. 29 (6), 783-803 (2016).
- Azzolin, L. YAP/TAZ incorporation in the beta-catenin destruction complex orchestrates the Wnt response. Cell. 158 (1), 157-170 (2014).
- Stingl, J. Purification and unique properties of mammary epithelial stem cells. Nature. 439 (7079), 993-997 (2006).
- Means, A. L. Pancreatic epithelial plasticity mediated by acinar cell transdifferentiation and generation of nestin-positive intermediates. Development. 132 (16), 3767-3776 (2005).
- Shi, G. Maintenance of acinar cell organization is critical to preventing Kras-induced acinar-ductal metaplasia. Oncogene. 32 (15), 1950-1958 (2013).
- Huch, M. Unlimited in vitro expansion of adult bi-potent pancreas progenitors through the Lgr5/R-spondin axis. EMBO J. 32, 2708-2721 (2013).
- Fernandez Vallone, V. Trop2 marks transient gastric fetal epithelium and adult regenerating cells after epithelial damage. Development. 143 (9), 1452-1463 (2016).
- Yanger, K. Robust cellular reprogramming occurs spontaneously during liver regeneration. Genes Dev. 27 (7), 719-724 (2013).
- Yui, S. YAP/TAZ-Dependent Reprogramming of Colonic Epithelium Links ECM Remodeling to Tissue Regeneration. Cell Stem Cell. , (2017).
- Pan, F. C. Spatiotemporal patterns of multipotentiality in Ptf1a-expressing cells during pancreas organogenesis and injury-induced facultative restoration. Development. 140 (4), 751-764 (2013).
- Panciera, T., Azzolin, L., Cordenonsi, M., Piccolo, S. Mechanobiology of YAP and TAZ in physiology and disease. Nat Rev Mol Cell Biol. 18 (12), 758-770 (2017).
- Lentiviral production and infection. , http://www.bio.unipd.it/piccolo/protocols/YAP_reprogramming_protocols.pdf (2016).
הדפסות חוזרות והרשאות
