כאן אנו מציגים פרוטוקול לבידוד גרעינים איכותיים מכליות עכבר קפואות המשפרים את ייצוג סוגי תאי הכליה המדולריים ומונעים את ביטוי הגנים מדיסוציאציה אנזימטית של רקמות.
מאמר שיטה
בידוד גרעינים מכליה של עכבר בוגר לריצוף RNA של גרעין יחיד
* These authors contributed equally
במאמר זה
סיכום
תקציר
הכליות מווסתות תהליכים ביולוגיים מגוונים כגון מים, אלקטרוליטים והומאוסטזיס על בסיס חומצה. תפקודים פיזיולוגיים של הכליה מבוצעים על ידי סוגי תאים מרובים המסודרים בארכיטקטורה מורכבת על פני ציר הקורטיקומדולרי של האיבר. ההתקדמות האחרונה בתעתיק תא בודד האיצה את ההבנה של ביטוי גנים ספציפיים לסוג התא בפיזיולוגיה ובמחלות של הכליה. עם זאת, פרוטוקולי דיסוציאציה של רקמות מבוססי אנזימים, המשמשים לעתים קרובות לריצוף RNA חד-תאי (scRNA-seq), דורשים בעיקר רקמות טריות (שאינן מאוחסנות בארכיון), מציגים תגובות עקה שעתוק, ומעדיפים את הבחירה של סוגי תאים שופעים בקליפת הכליה וכתוצאה מכך תת-ייצוג של תאי המדולה.
כאן, אנו מציגים פרוטוקול שמונע בעיות אלה. הפרוטוקול מבוסס על בידוד גרעינים ב-4 מעלות צלזיוס מרקמת כליה קפואה. גרעינים מבודדים מחתיכה מרכזית בכליה של העכבר המורכבת מקליפת המוח, מדולה חיצונית ומדולה פנימית. זה מפחית את ייצוג היתר של תאים קליפת המוח האופייניים לדגימות כליה שלמות לטובת תאים מדולריים, כך שהנתונים ייצגו את כל ציר הקורטיקומדולארי בשפע מספיק. הפרוטוקול פשוט, מהיר וניתן להתאמה ומספק צעד לקראת סטנדרטיזציה של שעתוק גרעינים בודדים במחקר כליות.
מבוא
הכליות מציגות ארכיטקטורת רקמות מורכבת ביותר. הם מורכבים מקטעים מובחנים מבחינה תפקודית ואנטומית לאורך ציר קורטקומדולרי ומתווכים פונקציות ביולוגיות, כגון ויסות נפח נוזל חוץ-תאי, איזון אלקטרוליטים או הומאוסטזיס חומצי-בסיס1.
ההתקדמות בשעתוק חד-תאי אפשרה אפיון מעמיק של רקמות מורכבות והאיצה את ההבנה של ביטוי גנים ספציפיים למקטע ולסוג התא בפיזיולוגיה של הכליה, התפתחותה ומחלותיה 2,3,4.
עם זאת, פרוטוקולי הדיסוציאציה מבוססי האנזימים המשמשים לעתים קרובות עבור scRNA-seq מציגים מספר חסרונות ואילוצים. בהתאם לפרוטוקול, הם יוצרים תגובות לחץ שעתוק והטיה לדיסוציאציה של רקמות לכיוון סוגי תאים קליפתיים קלים יותר לניתוק 5,6. למרות שפרוטוקולים המשתמשים בפרוטאזות פעילות קרה עבור כליות עובריות מסוגלים למתן שינויים בשעתוק הקשורים ללחץ, הם אינם מצליחים להתגבר על הטיית הדיסוציאציה כלפי תאי קליפת המוח וייתכן שלא ניתן להסתגל בקלות לסוגים שונים של רקמות כליות חולות7. בנוסף, גישות חד-תאיות אינן תואמות בקלות לדגימות רקמה קפואות, מה שמגביל את היישום שלהן בעיקר לרקמות טריות שאינן מאוחסנות בארכיון, ובכך הופכות את איסוף הרקמה לגורם מגביל6.
ריצוף RNA של גרעינים בודדים (snRNA-seq) יכול לעקוף מגבלות אלה 8,9. כאן אנו מציגים פרוטוקול לבידוד גרעינים מפרוסה מרכזית של רקמת כליה קפואה של עכבר בוגר (איור 1)10. הפרוטוקול שלנו פשוט ומספק גישה סטנדרטית להשגת ספריות ריצוף RNA עם ייצוג מאוזן של סוגי תאי כליה מגוונים עבור מודלים ניסיוניים שאינם כרוכים בשינויים אזוריים חזקים ברקמות. במקרה האחרון, הפרוטוקול שלנו יכול להתבצע גם עם כליות שלמות.
פרוטוקול
כל הניסויים בבעלי חיים נערכו בהתאם לחוק צער בעלי חיים (TierSchG) ולתקנה הניסויית לרווחת בעלי חיים (TierSchVersV) ואושרו על ידי הרשויות המקומיות וקציני רווחת בעלי החיים במוסד שלנו (MDC).
1. הכנת רקמות
- הכינו צלחת 6 בארות המכילה 2 מ"ל של 1x פוספט-חוצץ מלוחים (PBS) לכל באר עבור כל כליה שתתקבל. הכינו צלחת 6 בארות המכילה 2 מ"ל של תמיסת ייצוב RNA לכל באר וכליה. מצננים מראש את שתי הצלחות על קרח.
- הרדימו עכבר C57BL/6 זכר בן 3 עד 6 חודשים. מניחים את העכבר על מגש ניתוח, מצמידים את הגפיים ומעקרים את הבטן עם 70% אתנול.
- פתחו את הבטן עד לכלוב הצלעות בעזרת מלקחיים ומספריים. הרם את המעי ואיברים אחרים הצידה והסר את הכליות על ידי חיתוך זהיר של השופכן, עורק הכליה והווריד במספריים. שטפו את הכליה ב-PBS 1x קר כקרח שהוכן קודם לכן, והסר את החיתולית הכלייתית ואת כל השומן שנותר מהכליה עד שכל הרקמה הלבנה תוסר (איור 2A).
- מניחים את הכליה על צלחת ניתוח קרה ומשתמשים באזמל חד או סכין גילוח כדי לקבל פרוסה אמצעית של 1-2 מ"מ. ודאו שפיסת הרקמה מכילה את כל ציר הקורטיקומדולרי (איור 2B). השתמש במספריים ומלקחיים מיקרודיסקציה כדי לחתוך בזהירות את קליפת המוח מצידי החלק המרכזי. בתוך פיסת הרקמה המנותחת, שלושת המקטעים קליפת המוח, המדולה החיצונית והמדולה הפנימית אמורים להיראות בבירור (איור 2C).
הערה: הפרוסה לא תעלה על עובי של 2 מ"מ או משקל של 20 מ"ג כדי להבטיח כמויות חיץ מספיקות לליזה יעילה של רקמות וכדי למזער רנ"א רקע סביבתי בספריות cDNA. רנ"א סביבתי מבזבז קיבולת רצף, מכיוון שהוא אינו קשור לגרעינים בודדים. - מעבירים את פיסת הכליה לתמיסת ייצוב ה-RNA שהוכנה מראש ודגרים במשך 24 שעות ב-4 מעלות צלזיוס כדי למנוע התפרקות RNA. לאחר 24 שעות, הסר את תמיסת ייצוב ה- RNA ואחסן את הרקמה ב -80 מעלות צלזיוס עד לשימוש נוסף. בזהירות להסיר את הפתרון עודף עם נייר טישו.
2. בידוד גרעינים
- שלבי ניקוי והכנה
- נקו ספסלים ופיפטות עם 70% אתנול ותמיסת טיהור RNase.
- נקו צינור מטחנת רקמות בעל תחתית עגולה בנפח 2 מ"ל ופסטל תואם A ו-B עם תמיסת טיהור RNase, ואחריה 70% אתנול ומים נטולי RNase (שפופרת מטחנה אחת וסט פסטל לכל דגימה). תן לו להתייבש לחלוטין.
- מצננים מראש את הצנטריפוגה ל-4°C.
- יש לתייג ולקרר מראש שלושה צינורות איסוף של 15 מ"ל, שפופרת איסוף של 1.5 מ"ל, שפופרת איסוף של 5 מ"ל המופעלת על ידי פלואורסצנטיות (FACS) ושפופרת מטחנה יבשה לכל דגימה על קרח.
- הכנת חיץ
- חממו את תמיסת המלאי של קומפלקס ריבונוקלאוזיד-ונדיל ל-65°C עד להרכבה מחדש לתמיסה ירוקה-שחורה שקופה בהתאם להוראות היצרן. 11
- הכינו 1x PBS המכיל 4% אלבומין בסרום בקר (BSA) כמתואר בטבלה 1A. בנוסף, הכינו PBS 1x עם 0.04% BSA (טבלה 1B). יש לסנן את שתי התמיסות באמצעות מסנן מזרק צלולוז אצטט (SFCA) נטול פעילי שטח בגודל 0.2 מיקרומטר ולשמור על קרח עד לשימוש נוסף.
- הכינו את Nuclei Lysis Buffer 1 (NLB1, טבלה 1C). הוסף 4 מ"ל של חיץ ליזיס EZ עבור Nuclei Lysis Buffer 2 (NLB2, טבלה 1D) ו- 2 מ"ל של 0.04% BSA / PBS עבור מאגר תרחיף גרעינים (NSB, טבלה 1E) לצינורות 15 מ"ל. הוסף את פתרון מעכבי RNase ל- NLB2 ו- NSB ישירות לפני השימוש כמצוין להלן בפרוטוקול. יש לשמור על קרח עד לשימוש חדש.
- הכינו חיץ ליזיס EZ עם 10% סוכרוז (מאגר הדרגתי סוכרוז, טבלה 1F). ערבבו היטב וסננו את החיץ לצינור טרי של 15 מ"ל באמצעות מסנן מזרק SFCA בגודל 0.2 מיקרומטר. יש לשמור על קרח עד לשימוש חדש.
- הומוגניזציה של רקמות וליזה של תאים
הערה: על מנת למזער את התפרקות הרנ"א, כל השלבים מתבצעים על קרח. יש לקרר מראש את צינור המטחנה, צלחת הפטרי וכל החוצצים. כל שלבי ההשעיה נעשים על ידי זיווג זהיר של מתלה הגרעינים. אין לערבל את הדגימה כדי למנוע כוחות גזירה ונזק לגרעינים.- קחו את פיסת הכליה הקפואה והעבירו אותה לצלחת פטרי פוליסטירן 60 מ"מ על קרח המכיל 1 מ"ל NLB1.
- טחנו את הרקמה ביסודיות באמצעות סכין גילוח או אזמל (איור 3A).
- חותכים את קצה קצה פיפטה 1 מ"ל ומעבירים את הרקמה הטחונה ואת החיץ לצינור המטחנה. הקפידו להעביר את כל חלקי הרקמות. שטפו את צלחת הפטרי 5-10 פעמים עם החיץ, במידת הצורך.
- הומוגניזציה של המתלה על קרח על ידי תנועה איטית של מזיק A, פי 25 למעלה ולמטה בצינור המטחנה. הימנעו מבועות אוויר שנגרמות על-ידי תנועה מהירה (איור 3B).
- מעבירים את ההומוגנט דרך מסננת של 100 מיקרומטר בצינור איסוף מקורר מראש של 15 מ"ל ושוטפים את המסנן עם עוד 1 מ"ל של NLB1.
- שטפו את צינור המטחנה במאגר גרעיני EZ קרים והשליכו את החיץ.
- מעבירים את ההומוגנט בחזרה לצינור המטחנה והופכים את המתלה על קרח להומוגני על ידי תנועה איטית של פשט B, פי 15 למעלה ולמטה בצינור המטחנה. הימנעו מבועות אוויר שנגרמות על-ידי תנועה מהירה (איור 3C).
- מעבירים את ההומוגנט לצינור איסוף מקורר מראש של 15 מ"ל. שטפו את צינור המטחנה עם עוד 2 מ"ל של NLB1 והקפידו להעביר את כל שברי הרקמה לצינור האיסוף. לדגור הומוגנאט (נפח כולל של 4 מ"ל) במשך 5 דקות על קרח כדי lyse את התאים.
- טיהור גרעינים
- מעבירים את ההומוגנט דרך מסננת של 40 מיקרומטר לתוך צינור איסוף מקורר מראש של 15 מ"ל. סובב את צינור האיסוף במשך 5 דקות ב 500 x גרם ב 4 ° C בצנטריפוגה עם רוטור דלי מתנדנד. בינתיים, הוסף פתרון מעכב RNase ל- NLB2 (טבלה 1D).
- מוציאים את הסופרנאטנט מבלי להפריע לכדור. בזהירות להשעות את הגלולה ב 4 מ"ל של NLB2.
- בזהירות הניח את המתלה עם כרית 1 מ"ל של חיץ הדרגתי סוכרוז. צנטריפוגה ב 500 x גרם במשך 5 דקות ב 4 ° C בצנטריפוגה עם רוטור דלי מתנדנד. בינתיים, הוסף פתרון מעכב RNase ל- NSB (טבלה 1E).
- לאחר הצנטריפוגה יש להסיר בעדינות את צינור האיסוף מהצנטריפוגה ולהיזהר שלא להפריע לשתי השכבות בעת הטיפול בצינור האיסוף. פסולת תאים נראית בין שתי השכבות. מוציאים את הסופרנאטנט בזהירות ומתחילים עם הפסולת. הסר את הסופרנאטנט שנותר מבלי להפריע לגלולת הגרעינים והשהה בזהירות את הגלולה ב 1 מ"ל של NSB.
הערה: נפח המתלה תלוי בכמות הרקמה המשמשת לבידוד ובגודל הגלולה שהושג לאחר שלב הצנטריפוגה האחרון. ייתכן שיהיה צורך להתאים את עוצמת הקול למספר הגרעינים הצפוי. - העבירו את ההומוגנט דרך מסננת של 20 מיקרומטר לתוך צינור איסוף FACS מקורר מראש של 5 מ"ל.
3. מיון גרעינים
- הוסף 20 μL של 4′,6-diamidino-2-phenylindole (DAPI) לכל מ"ל של NSB לריכוז סופי של 2 μM להומוגנאט בצינור האיסוף FACS וערבב בזהירות. דוגרים במשך 5 דקות על קרח.
- הכן את צינור האיסוף מקורר מראש של 1.5 מ"ל עם 20 μL של 4% BSA / 1x PBS והוסף תמיסת מעכבי RNase של 0.5 μL לריכוז סופי של 1 U/μL. המשך מיד למיון.
- מיין את הגרעינים באמצעות סדרן תאים.
- ערבבו את מתלי הגרעינים לזמן קצר לפני הכנסת צינור איסוף FACS למיון.
- הגדר שער P1 ראשון בהתבסס על הפיזור הקדמי (FSC) והפיזור הצדדי (SSC) כדי לא לכלול פסולת וצברים (איור 4A).
- כדי לא לכלול גרעינים ריקים או פגומים וכפולות, הגדר שער עוקב בהתבסס על DAPI-Area לעומת DAPI-Height (DAPI-A לעומת DAPI-H) (איור 4B).
- מיין גרעינים בודדים לתוך צינור איסוף 1.5 מ"ל המכיל 4% BSA / 1x PBS עם 1 U/μL RNase תמיסת מעכב מוכן 3.2.
4. בקרת איכות
- מדדו את ריכוז הגרעינים הסופי תחת מיקרוסקופ פלואורסצנטי או בתא ספירה אוטומטי בשתי ספירות בלתי תלויות לפחות והעריכו את איכות התרחיף (איור 5).
הערה: ריכוזים אופטימליים הם בין 700 - 1,200 גרעינים/μL. ריכוזי תאים נמוכים יותר, כגון 700 גרעינים/μL, עשויים להיות עדיפים, מכיוון שספריות cDNA שנוצרו הכילו פחות רנ"א רקע סביבתי (תעתיקים שאינם משויכים לגרעינים בודדים). - חשב את הנפח הנדרש של השעיית גרעינים להתאוששות הרצויה של גרעינים בודדים רצפים. על מנת למנוע הצטברות גרעינים והתפרקות RNA, יש לעבור מיד להכנת הספרייה.
תוצאות
כדי לקבוע את ביצועי הפרוטוקול שלנו, השתמשנו בערכת ביטוי גנים 10x Genomics Chromium Single Cell 3' 3' להכנת ספרייה וניתחנו את נתוני snRNA-seq עם חבילת Seurat12,13.
איור 6 מציג תוצאות מספריית snRNA-seq מייצגת. כדי להעריך את איכות הגרעינים שלנו, שרטטנו את מספר הגנים כנגד מספר התעתיקים (המוגדרים על-ידי מזהים מולקולריים ייחודיים (UMIs)) שנצבעו על-ידי חלק הקריאות במיטוכונדריה (איור 6A). גרעינים באיכות טובה מראים בדרך כלל מספר גבוה יותר של קריאות, מתאם בין UMI ומספרי גנים, ושברי קריאה מיטוכונדריאליים נמוכים.
לצורך הניתוח שלאחר מכן, גרעינים עם פחות מ -500 או יותר מ -4000 גנים נספרו, או יותר מ -5% של RNA מיטוכונדריאלי נשללו (n = 828). רק גנים המבוטאים במינימום של שלושה גרעינים נכללו. זיהינו כ-20,000 גנים בסך הכל ב-6,000 הגרעינים הנותרים עם 1,600 גנים חציוניים ו-2,800 UMI חציוניים לכל גרעין (איור 6B).
האשכולות התבססו על גנים משתנים מאוד. זיהינו בסך הכל 18 אשכולות. זהויות התאים הוסברו בהתבסס על גנים ידועים של סמנים (לא מוצגים). תת-צבירים מסוג תא אחד סוכמו לצביר אחד והתוצאה הייתה בסך הכל 11 סוגי תאים נפרדים: פודוציטים, צינורית פרוקסימלית (PT), גפה דקה (tL), גפה עולה עבה (TAL), צינורית מפותלת דיסטלית (DCT), צינורית חיבור (CNT), תאים ראשיים ואינטרקלטים של תעלת איסוף (CD-PC, A-IC, B-IC), אפיתל מדולרי עמוק של האגן (DMEP) ואנדותל. דפוסי ביטוי גנים של סמנים מועשרים בצביר הודגמו בחלקת נקודות (איור 6C) ובאשכולות מסוג תאים בתרשים הטבעה של שכן סטוכסטי מבוזר T (t-SNE) (איור 6D).
כדי להעריך את התפלגות סוגי התאים במדגם שלנו, האחוז של כל סוג תא חושב (איור 6E) ושימש לקביעת היחס בין PT ל-TAL. ה-PT ממוקם בעיקר בקליפת הכליה ולעתים קרובות מיוצג יתר על המידה במערכי נתונים של תאים בודדים בכליות, שכן תאים של PT קלים לניתוק, והם נפוצים מאוד בדגימות כליה שלמות. ה-TAL, לעומת זאת, משתרע על פני כל המדולה החיצונית14. לפיכך, היחס בין שברי PT ו-TAL מייצג מדד טוב להעשרת סוגי תאים מדולריים במערך נתונים של תא בודד בכליה. באופן כללי, יחס PT/TAL במערכי נתונים של כליה שלמה של תא בודד נע בין 8 (נתונים שלא פורסמו מרקמת כליה שלמה שטופלה בפרוטאז קר) ל-45 עבור רקמה מנותקת אנזימטית10,14,15. במערך הנתונים snRNA-seq שהוצג כאן הצלחנו להגיע ליחס PT/TAL של 2. תוצאה זו ממחישה כי הסרת קליפת המוח העודפת במהלך דיסקציה של רקמות בשילוב עם snRNA-seq מביאה לשיפור ניכר בייצוג סוג תאי הכליה.
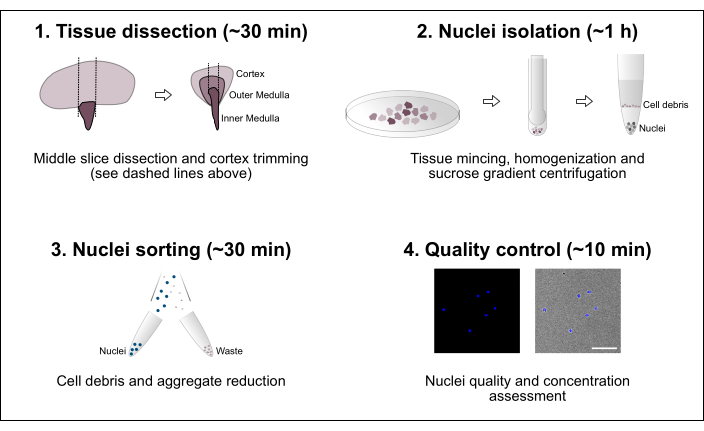
איור 1: סקירה סכמטית של זרימת העבודה. הפרוטוקול מורכב מארבעה שלבים עיקריים הכוללים דיסקציה של רקמות ואחריה בידוד גרעינים, מיון גרעינים והערכת טוהר וריכוז סופית. סרגל קנה מידה = 100 מיקרומטר. לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.

איור 2: דיסקציה של הכליה והכנת רקמות . (A) תמונה מייצגת של כליה שלמה מנותחת. הקווים המקווקווים מציינים את החתכים הדרושים לקבלת פרוסה אמצעית של 1-2 מ"מ עם ייצוג של כל סוגי תאי הכליה. (B) תמונה מייצגת של הפרוסה האמצעית שהתקבלה. הקווים המקווקווים מציינים את החתכים לחיתוך קליפת המוח מהצד. (C) תמונה מייצגת של פיסת הכליה המרכזית עם קליפת המוח החתוכה. קליפת המוח (C), המדולה החיצונית (OM) והמדולה הפנימית (IM) נראות בבירור. סרגל קנה מידה = 500 מיקרומטר. לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.

איור 3: הומוגניזציה של רקמות וטיהור גרעינים . (A) תמונה מייצגת המציגה רקמת כליה טחונה מספיק. סרגל קנה מידה = 500 מיקרומטר. (B) הומוגנט לאחר שלב ההומוגניזציה הראשון (25 פעימות עם צינור מטחנה A, 2 מ"ל). (C) הומוגנט לאחר שלב הומוגניזציה שני (15 פעימות עם צינור מטחנה B, 2 מ"ל). אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
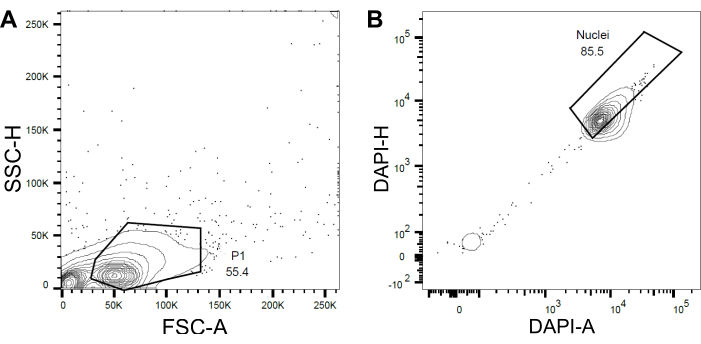
איור 4: אסטרטגיית Gating למיון גרעינים. (A ) שער P1 ראשון נקבע בהתבסס על פיזור קדמי (FSC) לעומת פיזור צדדי (SSC) כדי לא לכלול פסולת ואגרגטים. (B ) שער עוקב המבוסס על DAPI-Area (DAPI-A) לעומת DAPI-Height (DAPI-H) לא כלל גרעינים ריקים או פגומים וכפולות. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
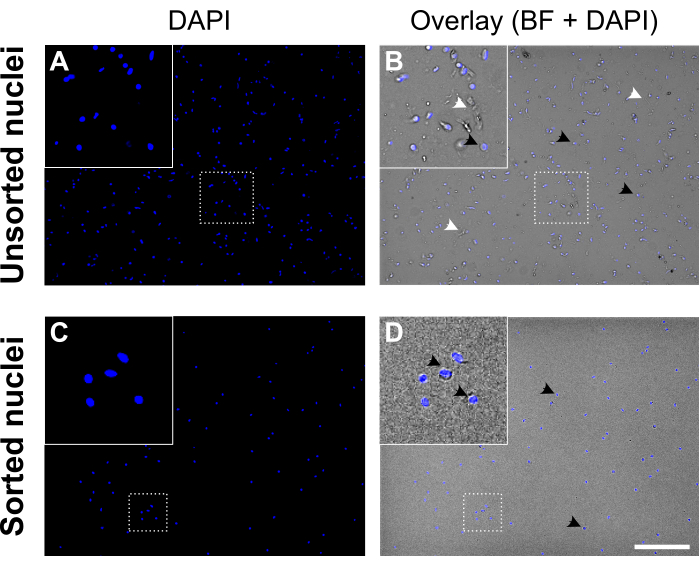
איור 5: תרחיף גרעינים לפני ואחרי מיון גרעינים. (א, ג) גרעינים מוכתמים ב-DAPI (כחול). (ב, ד) שכבת-על של DAPI וערוץ brightfield (BF). לפני המיון (לוח עליון) מתלה הגרעינים מכיל פסולת תאים וצברים (מסומנים בראשי חץ לבנים). לאחר מיון (פאנל תחתון) מתלה הגרעינים נראה הרבה יותר נקי. דוגמאות לגרעינים מוכתמים ב-DAPI מסומנות בראשי חץ שחורים. גרעינים באיכות טובה נראים עגולים וחלקים עם קרום שלם ומופרדים היטב, בעוד גרעינים באיכות ירודה נראים מקומטים ומראים אובדן של קרום הגרעין. סרגל קנה מידה = 250 מיקרומטר. לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
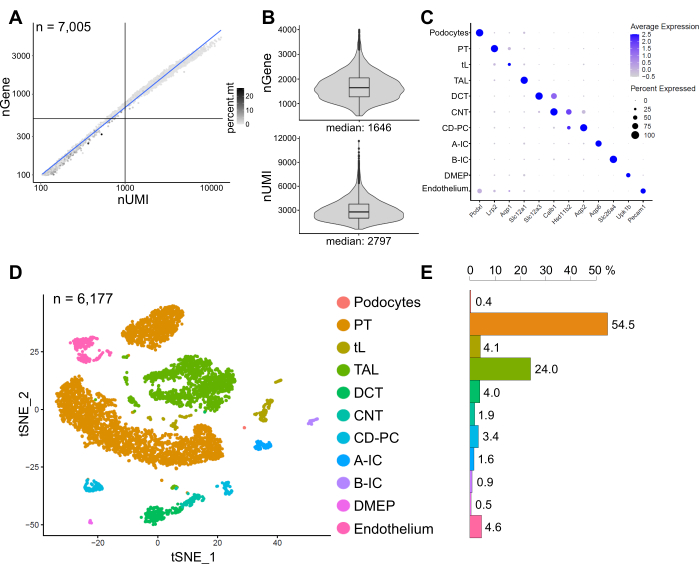
איור 6: בקרת איכות וניתוח של מערך נתונים מייצג של snRNA-seq. (A) מספר הגנים (nGene) שזוהו כנגד מספר המזהים המולקולריים הייחודיים (nUMI) שנצבעו על ידי חלק הקריאות המיטוכונדריאליות (percent.mt). גרעינים באיכות נמוכה מתאימים לרביע השמאלי התחתון של העלילה (n = 828) ולא נכללו בניתוח שלאחר מכן. (B) התפלגות וחציון של nGene ו-nUMI שזוהו לכל גרעין במערך הנתונים snRNA-seq, המייצגים 6,177 גרעינים (> 500 גנים). הספריות רוצפו לעומק חציוני של ~ 8,200 קריאות ממופות לכל גרעין. (C) תרשים נקודה המציג דפוסי ביטוי גנים של סמנים מועשרים בצביר (ציר x) עבור סוגי תאים בודדים (ציר Y). גודל הנקודה מתאים לשיעור התאים המבטאים את הגן שצוין. הצבע מתאים לביטוי הממוצע. (D) תרשים T-distributed stochastic neighbor embedding (t-SNE) של סוגי תאים מזוהים. (E) התפלגות סוג התא במערך הנתונים snRNA-seq. PT, צינורית פרוקסימלית; tL, איבר דק; TAL, איבר עולה עבה, DCT, צינורית מפותלת דיסטלית; CNT, חיבור צינורית; CD-PC, איסוף תאים ראשיים צינור; A-IC, סוג A תאים intercalated; B-IC, סוג B תאים intercalated; DMEP, אפיתל מדולרי עמוק של האגן. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
| מגיב | ריכוז סופי | נפח (מ"ל) | ||
| (A) 4% BSA / PBS | ||||
| מלח חוצץ פוספט (PBS) עם 10% אלבומין בקר | 4% | 2 | ||
| PBS (מלח חוצץ פוספט) 1X ללא סידן או מגנזיום | - | 3 | ||
| (ב) 0.04% BSA / PBS | ||||
| 4% BSA / PBS | 0.04 % | 0.5 | ||
| PBS (מלח חוצץ פוספט) 1X ללא סידן או מגנזיום | - | 49.5 | ||
| (C) מאגר גרעיני ליזה 1 (NLB1) | ||||
| חיץ EZ ליזיס גרעיני | - | 4 | ||
| מעכב RiboLock RNase (40 U/μL) | 1 U/μL | 0.1 | ||
| קומפלקס ריבונוקלאוזיד-ונדיל (200 mM) | 10 מ"מ | 0.2 | ||
| (D) מאגר גרעיני ליזה 2 (NLB2) | ||||
| חיץ EZ ליזיס גרעיני | - | 4 | ||
| מעכב RiboLock RNase (40 U/μL) | 1 U/μL | 0.1 | ||
| (E) מאגר תרחיף גרעינים (NSB) | ||||
| 0.04% BSA / PBS | - | 2 | ||
| מעכב RiboLock RNase (40 U/μL) | 1 U/μL | 0.05 | ||
| (F) מאגר הדרגתי סוכרוז (10% סוכרוז) | ||||
| משקל: 1 גרם של סוכרוז | ||||
| יש להמיס ב-6 מ"ל של Nuclear EZ Lysis Buffer | ||||
| מלא עד 10 מ"ל ב-Nuclear EZ Lysis Buffer | ||||
| מסננים דרך מסנן מזרק 0.2 מיקרומטר לתוך צינור טרי | ||||
טבלה 1: מתכוני תמיסה: (א) הכנת 4% BSA/1x PBS. יש לסנן באמצעות מסנן מזרק SFCA בגודל 0.2 מיקרומטר ולשמור על קרח עד לשימוש. (B) הכנה של 0.04% BSA/1 x PBS. יש לסנן באמצעות מסנן מזרק SFCA בגודל 0.2 מיקרומטר ולשמור על קרח עד לשימוש. (C) הכנת חיץ גרעיני ליזה 1 (NLB1). אמצעי אחסון מצוינים מסופקים לכל מדגם. יש לשמור על קרח עד לשימוש. (D) הכנת Nuclei Lysis Buffer 2 (NLB2). אמצעי אחסון מצוינים מסופקים לכל מדגם. הוסף את מעכב RiboLock RNase ל- NLB2 ישירות לפני השימוש כפי שצוין בפרוטוקול. יש לשמור על קרח עד לשימוש. (ה) הכנת חיץ תרחיף גרעינים (NSB). אמצעי אחסון מצוינים מסופקים לכל מדגם. הוסף את מעכב RiboLock RNase ל- NSB ישירות לפני השימוש כפי שצוין בפרוטוקול. יש לשמור על קרח עד לשימוש. (ו) הכנת חיץ הדרגתי סוכרוז. יש לסנן באמצעות מסנן מזרק SFCA בגודל 0.2 מיקרומטר ולשמור על קרח עד לשימוש.
דיון
תעתיק חד-תאי מקדם את ההבנה של ביטוי גנים ספציפיים לסוג התא בפיזיולוגיה ובמחלות של הכליה. כאן, סיפקנו שיטה פשוטה וניתנת לשחזור לבידוד גרעינים בודדים באיכות גבוהה מרקמת כליות עכבר קפואה עבור snRNA-seq בצורה סטנדרטית.
עבור snRNA-seq, חיוני להשתמש בגרעינים באיכות גבוהה כקלט ליצירת ספריות ולהימנע מהתפרקות RNA במהלך עיבוד רקמות. לכן, הדגירה של חלקי רקמה בתמיסת ייצוב RNA מיד לאחר הדיסקציה חיונית להגנה ולייצוב RNA תאי ומאפשרת לאחסן דגימות ב - 80 מעלות צלזיוס ללא הגבלת זמן. כאשר מיישמים פרוטוקול זה על רקמות קפואות ללא טיפול בתמיסת ייצוב RNA, כגון חומר ארכיוני, נדרשת ריצת ניסוי, ויש להעריך את איכות ה-RNA מכיוון שראינו אובדן משמעותי של שלמות ה-RNA ברקמה קפואה ללא דגירה מוקדמת בתמיסת ייצוב RNA.
באופן כללי, טיפול מתאים בדגימות הוא חיוני למקסום ההתאוששות של גרעינים בודדים שלמים. כל שלבי ההשעיה צריכים להתבצע על ידי צנרת בזהירות כדי למנוע לחץ גזירה ונזק פיזי. מאגרים עבור השעיית הגרעינים הסופית ומיון הגרעינים צריכים להכיל BSA כדי למנוע אובדן וצבירה של גרעינים.
נפחי חיץ בפרוטוקול זה ממוטבים עבור דגימות רקמות קטנות מאוד (~ 15 מ"ג). זה קריטי כדי להבטיח ליזה מלאה התא ושטיפה מספקת כדי ליצור מתלים באיכות גבוהה. גושי רקמה גדולים יותר או דגימות כליה שלמות יגרמו לריכוזי גרעינים מוגזמים המובילים לגושים וצבירה, שפע גבוה של RNA סביבתי ואיכות תרחיף ירודה באופן כללי. אם דגימות גדולות יותר או רקמות אחרות מעובדות, מומלץ מאוד לבצע ריצות ניסיון כדי לקבוע נפחי חיץ אופטימליים עבור רמות RNA סביבתי מינימליות. איכות וריכוזי הגרעינים והרנ"א צריכים להיבדק בקפידה מכיוון שעומס יתר גורם לביצועים ירודים באופן כללי.
בנוסף, כמויות גדולות של פסולת תאים, הגורמות לרמות גבוהות של RNA סביבתי שאינן קשורות לגרעינים בודדים, משפיעות לרעה על תוצאות הריצוף. הבהרת תרחיף הגרעינים על ידי צנטריפוגה באמצעות כרית סוכרוז מקלה במידה מסוימת על בעיה זו, אך היא יכולה גם להוביל להטיה בייצוג סוג התא על ידי בחירה נגדית כנגד גרעינים צפופים וקטנים הקיימים, למשל, בתאי מערכת החיסון16. אם זה מדאיג, יש להשמיט את שיפוע הסוכרוז. לעומת זאת, מצאנו כי ציטומטריית זרימה המבוססת על צביעת DAPI הייתה קריטית להפחתת כמות פסולת התא על מנת לייצר תרחיף גרעינים יחיד באיכות גבוהה.
לבידודם של גרעינים בודדים יתרונות ניכרים בהשוואה לגישות חד-תאיות8. הוא תואם לרקמות קפואות כראוי, מה שהופך את אוסף הרקמה לגמיש יותר, ועוקף את הצורך בדיסוציאציה רקמתית מבוססת אנזים, שיכולה להציג תגובות מתח שעתוק 6,17. יתר על כן, הוא מתגבר על הטיית הדיסוציאציה המעדיפה את הבחירה של סוגי תאים הניתנים לניתוק בקלות של קליפת הכליה, מה שעלול להוביל לייצוג חסר של סוגי תאים מדולריים בכמה גישות מבוססות אנזימים 5,6,10.
שימוש בחתיכת כליה מרכזית במקום ברקמת כליה שלמה חוסך משאבים ומתקן ייצוג יתר של סוגי תאים שופעים כפי שתואר קודםלכן 10. עם זאת, בהתאם למודל העכבר או לפנוטיפ שנחקר, ייתכן שיועיל להשתמש בדגימות כליה שלמות במקום בפרוסה אמצעית אחת. דגימות כליה שלמות עשויות לייצג יותר את פרופורציות התאים האמיתיות, או שינויים המתרחשים בכליה כולה, בעוד שפרוסה אמצעית קצוצה הוכיחה יתרון לפנוטיפים מדולריים או כאשר חומר הדגימה היה מוגבל. החלטה זו, אם כן, היא מאוד ספציפית למשתמש ויש לשקול אותה בזהירות.
גילויים
למחברים אין מה לחשוף.
תודות
אנו מודים לפלטפורמת הגנומיקה המדעית במרכז מקס דלבריק לרפואה מולקולרית באגודת הלמהולץ, ברלין על התמיכה הטכנית.
JL ו- KMSO נתמכו על ידי קבוצת ההדרכה למחקר של קרן המחקר הגרמנית (DFG) GRK 2318 ועל ידי יחידת המחקר FOR 2841. KMSO נתמך על ידי מענק מחקר שיתופי 1365. AB נתמך על ידי מימון מפרס גוטפריד וילהלם לייבניץ של DFG שהוענק ל-NR.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| סדרן תאים | - | למיון תאים המופעל על ידי פלואורסצנטיות (FACS); למשל BD FACSAria Cell Sorter. | |
| צנטריפוגה 5810 R | Eppendorf | 5811000015 | |
| שקופיות תא ספירת תאים רוזנת | Invitrogen | C10228 | |
| Countess II FL מונה תאים אוטומטי | Invitrogen | AMQAF1000 | צריך להכיל קוביית אור DAPI לספירת גרעינים. לחלופין, ניתן לספור גרעינים באופן ידני במיקרוסקופ פלואורסצנטי. |
| 4′,6-Diamidino-2-phenyl-indol-dihydrochlorid (DAPI) | Biotrend | 40043/b | תמיסת מלאי שהוכנה בריכוז של 100 µM. משמשת לצביעה של גרעינים בריכוז סופי של 2 µM. |
| D(+)-סוכרוז ≥ 99.9%, צינורות | VWR | 0335-500G | |
| LoBind ללא DNA (1.5 מ"ל) | אתנול 22431021 | ||
| 70 | - | -צינורות | |
| FACS | pluriSelect | 43-10100-46 | |
| סט מטחנת רקמות KIMBLE Dounce 2 מ"ל מסנני | סיגמא-אולדריץ' | D8938-1SET | |
| 0.2 ומיקרו; m | Sartorius | 16534-GUK | |
| Invitrogen | AM9937 | ||
| Nuclei EZ Prep ערכת בידוד גרעינים | Sigma-Aldrich | NUC-101 | Nuclei EZ Lysis Buffer (מוצר מס' N3408) הדרוש להכנת מאגר |
| PBS (מי מלח חוצץ פוספט) 1X ללא סידן או מגנזיום | קורנינג | 21-040-CV | |
| צלחות פטרי, פוליסטירן 60 מ"מ | סיגמא-אולדריץ' | P5481 | |
| מי מלח חוצץ פוספט (PBS) עם 10% אלבומין בקר | סיגמא-אולדריץ' | SRE0036 | |
| פלורימסננת מיני 100 ומיקרו; m | pluriSelect | 43-10100-46 | |
| pluriמסננת מיני 20 ומיקרו; m | pluriSelect | 43-10020-40 | |
| pluriמסננת מיני 40 ומיקרו; m | pluriSelect | 43-10040-40 | |
| צינור צנטריפוגה מפוליסטירן (15 מ"ל) | פלקון | ||
| - | |||
| מעכב RiboLock RNase (40 U/µ L) | תרמו פישר | EO0384 | |
| קומפלקס ריבונוקלאוזיד-ונדיל | ניו אינגלנד Biolabs | S1402S | עקוב אחר הוראות היצרן (https://international.neb.com/products/s1402-ribonucleoside-vanadyl-complex#Product%20Information). עם השימוש, תמיסת המלאי של 200 מ"מ מורכבת מחדש לתמיסה שקופה ירוקה-שחורה על ידי דגירה בטמפרטורה של 65 מעלות צלזיוס. |
| RNAlater פתרון ייצוב | Invitrogen | AM7020 | |
| RNase AWAY | Fisher Scientific | 11952385 |
מקורות
- Thomas, R. S. Kidney modeling and systems physiology. Wiley Interdisciplinary Reviews: Systems Biology and Medicine. 1 (2), 172-190 (2009).
- Potter, S. S. Single-cell RNA sequencing for the study of development, physiology and disease. Nature Reviews Nephrology. 14 (8), 479-492 (2018).
- Park, J., Liu, C. L., Kim, J., Susztak, K. Understanding the kidney one cell at a time. Kidney International. 96 (4), 862-870 (2019).
- Clark, A. R., Greka, A. The power of one: advances in single-cell genomics in the kidney. Nature Reviews Nephrology. 16 (2), 73-74 (2020).
- Lake, B. B., et al. A single-nucleus RNA-sequencing pipeline to decipher the molecular anatomy and pathophysiology of human kidneys. Nature Communications. 10 (1), 2832(2019).
- Wu, H., Kirita, Y., Donnelly, E. L., Humphreys, B. D. Advantages of single-nucleus over single-cell RNA sequencing of adult kidney: Rare cell types and novel cell states revealed in fibrosis. Journal of the American Society of Nephrology. 30 (1), 23-32 (2019).
- Adam, M., Potter, A. S., Potter, S. S. Psychrophilic proteases dramatically reduce single-cell RNA-seq artifacts: a molecular atlas of kidney development. Development. 144 (19), 3625-3632 (2017).
- Habib, N., et al. Massively parallel single-nucleus RNA-seq with DroNc-seq. Nature Methods. 14 (10), 955-958 (2017).
- Muto, Y., et al. Single cell transcriptional and chromatin accessibility profiling redefine cellular heterogeneity in the adult human kidney. Nature Communications. 12 (1), 2190(2021).
- Hinze, C., et al. Kidney single-cell transcriptomes predict spatial corticomedullary gene expression and tissue osmolality gradients. Journal of the American Society of Nephrology. 32 (2), 291(2021).
- Berger, S. L. Isolation of cytoplasmic RNA: ribonucleoside-vanadyl complexes. Methods in Enzymology. 152, 227-234 (1987).
- Butler, A., Hoffman, P., Smibert, P., Papalexi, E., Satija, R. Integrating single-cell transcriptomic data across different conditions, technologies, and species. Nature Biotechnology. 36 (5), 411-420 (2018).
- Stuart, T., et al. Comprehensive Integration of single-cell data. Cell. 177 (7), 1888-1902 (2019).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Kirita, Y., Wu, H., Uchimura, K., Wilson, P. C., Humphreys, B. D. Cell profiling of mouse acute kidney injury reveals conserved cellular responses to injury. Proceedings of the National Academy of Sciences of the United States of America. 117 (27), 15874-15883 (2020).
- Schneeberger, S., et al. The neuroinflammatory interleukin-12 signaling pathway drives Alzheimer's disease-like pathology by perturbing oligodendrocyte survival and neuronal homeostasis. bioRxiv. , 441313(2021).
- Nguyen, Q. H., Pervolarakis, N., Nee, K., Kessenbrock, K. experimental considerations for single-cell RNA sequencing approaches. Frontiers in Cell and Developmental Biology. 6, 108(2018).
הדפסות חוזרות והרשאות
