אינטראקציות חלבון-חלבון חשובות להבהרת תפקודם של חלבוני המטרה, וקו-אימונומשקעים (co-IP) יכולים לאשר בקלות PPIs. הדבקנו באופן זמני פלסמיד המקודד חלבון מתויג אפיטופ לתאי HEK-293 ופיתחנו שיטת משקעים חיסוניים כדי לאשר בקלות את הקישור של שני חלבוני מטרה.
מאמר שיטה
משקעים חיסוניים עם ג'ל זיקה נגד תג אפיטופ לחקר אינטראקציות חלבון-חלבון
במאמר זה
סיכום
תקציר
אינטראקציות חלבון-חלבון (PPIs) ממלאות תפקיד מרכזי בתופעות ביולוגיות, כגון ארגון תאי, העברת אותות תוך תאיים וויסות שעתוק. לכן, הבנת PPIs היא נקודת התחלה חשובה לחקירה נוספת של תפקוד חלבון המטרה. במחקר זה, אנו מציעים שיטה פשוטה לקבוע את הקישור של שני חלבוני מטרה על ידי החדרת וקטורי ביטוי יונקים לתאי HEK-293 בשיטת פוליאתילנימין, הנחת התאים במאגר ליזה חלבוני תוצרת בית, ומשיכת חלבוני המטרה על ג'ל זיקה תג אפיטופ. בנוסף, ניתן לאשר את ה-PPI בין החלבונים השונים המאוחים של תג אפיטופ על ידי שימוש בנוגדני זיקה כנגד כל תג במקום בג'ל הזיקה של תג האפיטופ. פרוטוקול זה יכול לשמש גם לאימות PPIs שונים, כולל תמציות גרעיניות, מקווי תאים אחרים. לכן, זה יכול לשמש כשיטה בסיסית במגוון רחב של ניסויי PPI. חלבונים מתפרקים על ידי מהלך זמן ממושך ומחזורי הקפאה-הפשרה חוזרים ונשנים. לכן, ליזה תאים, immunoprecipitation, ו immunoblotting צריך להתבצע בצורה חלקה ככל האפשר.
מבוא
חלבונים ממלאים תפקיד מרכזי בכל תפקודי התא, כולל עיבוד מידע, חילוף חומרים, תחבורה, קבלת החלטות וארגון מבני. חלבונים מתווכים את תפקידיהם על ידי אינטראקציה פיזית עם מולקולות אחרות. אינטראקציות חלבון-חלבון (PPIs) חשובות לתיווך תפקודים תאיים, כגון תיווך העברת אותות, חישת הסביבה, המרת אנרגיה לתנועה פיזית, ויסות הפעילות של אנזימי חילוף חומרים ואיתות ושמירה על ארגון תאי1. לפיכך, ניתן להשתמש ב- PPIs כדי להבהיר פונקציות לא ידועות2. ניתן לסווג שיטות לזיהוי PPIs לשלושה סוגים: in vitro, in vivo ו - in silico. Co-immunoprecipitation (co-IP), כרומטוגרפיית זיקה, טיהור זיקה טנדם, מערכי חלבונים, תצוגת פאגים, השלמת מקטעי חלבון, קריסטלוגרפיה של קרני רנטגן וספקטרוסקופיית תהודה מגנטית גרעינית שימשו לזיהוי PPI במבחנה 3. בין שיטות אלה, co-IP נמצא בשימוש נרחב בגלל הפשטות שלה.
תג ההיתוך FLAG מורכב משמונה חומצות אמינו (AspTyrLysAspAspAspLys: DYKDDDDK), כולל אתר מחשוף אנטרוקינאז, ותוכנן במיוחד עבור כרומטוגרפיה של זיקה חיסונית4. חלבונים המתויגים ב-DYKDDDDK מזוהים ונלכדים באמצעות נוגדן אנטי-DYKDDDDK. לכן, הם נמשכים ביעילות למטה באמצעות DYKDDDDK מחייב חרוזי אגרוז5 כדי לאשר את הקישור שלהם חלבונים ספציפיים בצורה פשוטה. משקעים חיסוניים יכולים להתבצע במגוון תאים, וניתן לאשר מגוון רחב של PPIs באמצעות נוגדנים כנגד החלבון המעניין. משקעים חיסוניים ואלוציה פפטידית עם חרוזי אגרוז אנטי-DYKDDDDK דווחו בעבר5.
כאן, אנו מספקים שיטת משקעים חיסונית פשוטה שבה פלסמיד המקודד חלבון מתויג DYKDDDDK מוכנס באופן זמני לתאי HEK-293 כדי לאשר את הקשר של שני חלבונים מעניינים. נוגדני DYKDDDDK מסוימים יכולים להיקשר הן ל-N-terminus והן ל-C-terminus של חלבוני ההיתוך, אך לא לאחרים6. לכן, כדי למנוע בלבול, יש לבחור את הנוגדן שמזהה את התג המאוחה הן ל-N והן ל-C-terminus. בעת החדרת תג אפיטופ, ייתכן שניתן יהיה להימנע משינויים קונפורמטיביים בחלבון על ידי הכנסת 3 עד 12 זוגות בסיסים בין תג האפיטופ לחלבון המטרה. עם זאת, הרצף שנוסף צריך להיות זוג בסיסים בכפולות של 3 כדי למנוע הסטת מסגרת.
פרוטוקול
איור 1 מציג סקירה כללית של הפרוטוקול.
1. הכנת פתרונות ומאגרים
- מאגר ליזה חלבונית: הכן את מאגר ליזה החלבון בעקבות דוח7 שפורסם בעבר (טבלה 1).
- Protein lysis buffer + protease inhibitor (PI): הוסף מעכב פרוטאז (ראה טבלת חומרים) למאגר שהוכן לעיל (שלב 1.1). יש לאחסן בטמפרטורה של -20°C.
- מאגר דגימה: ערבבו 900 μL של 4x מאגר דגימה Laemmli (ראו טבלת חומרים) ו-100 μL של 2-מרקפטואתנול. יש לאחסן בטמפרטורה של -20°C.
- מלח חוצץ פוספט (PBS) עם פוליאוקסאתילן (20) סורביטן מונולאורט (PBS-P): מערבבים 1.998 ליטר PBS ו-2 מ"ל פוליאוקסאתילן (20) סורביטן מונולאורט (ראו טבלת חומרים). יש לאחסן בטמפרטורת החדר.
- מאגר Tris/Glycine/SDS אחד: יש לערבב 450 מ"ל DDW ו-50 מ"ל של 10x Tris/Glycine/SDS. יש להכין בטמפרטורת החדר ביום השימוש.
2. טרנספקציה פלסמיד
- תרבית תאי HEK-293 בצלחת מצופה קולגן בקוטר 10 ס"מ לתת-מפגש (80%-95%) באמצעות מדיום הנשר המעובד של דולבקו המכיל 10% נסיוב בקר עוברי ו-1% פניצילין-סטרפטומיצין (10,000 יחידות/מ"ל פניצילין G ו-10,000 מיקרוגרם/מ"ל סטרפטומיצין) (ראו טבלת חומרים).
- מכינים 1-10 מיקרוגרם של פלסמיד7 כדי להיות transfected לכל צלחת ולעשות תערובת transfection. הוסף 150 mM NaCl לנפח סופי של 250 μL למנה. מערבלים ומסובבים את התערובת.
- הוסף 60 μL של 1 מ"ג/מ"ל פוליאתילנימין (PEI, ראה טבלת חומרים) לכל מנה, ולאחר מכן 150 mM NaCl לנפח סופי של 250 μL של תמיסת PEI.
- הוסף את תמיסת PEI לתערובת הטרנספקציה כדי ליצור תמיסה מעורבת. מיד מערבולת (במהירות הגבוהה ביותר עבור 3-5 שניות, לבצע את אותו הדבר לאחר מכן) ולהסתובב למטה.
- יש לדגור בטמפרטורת החדר למשך 15-30 דקות. במהלך תקופה זו, לשנות את המדיום של תאי HEK-293.
- מפזרים 500 מיקרוליטר / צלחת של תמיסה מעורבת על כל צלחת של תאי HEK-293 ולדגור לילה (13-14 שעות).
- בצע החלפה בינונית למחרת.
3. ליזה של תאים והכנת דגימה
הערה: כדי למנוע פירוק חלבון, יש לבצע את השלבים הבאים ללא שימור או הפשרה בהקפאה של הדגימה ככל האפשר.
- כ-48 שעות לאחר הטרנספקציה, שטפו את התאים שלוש פעמים עם PBS קר כקרח, הוסיפו 500 מיקרוליטר/צלחת של חיץ ליזה חלבוני + PI, ואספו את התאים על ידי מגרד תאים ופיפטה בצינור עם ספיחת חלבון נמוכה על קרח.
- מערבבים כל 5 דקות ודוגרים על הדגימות על קרח במשך 10 דקות.
- צנטריפוגה ב 16,400 x גרם במשך 10 דקות ב 4 ° C. אספו את הסופרנאטנט והעבירו אותו לצינור טרי של 1.5 מ"ל עם ספיחת חלבון נמוכה. הדגימות ניתן לאחסן ב -80 ° C.
- לקבוע את ריכוז החלבון של הדגימות באמצעות ערכת מדידת ריכוז חלבון בהתאם לפרוטוקול היצרן (ראה טבלת חומרים).
- יש להפריד בין 200-1000 מיקרוגרם של אותה כמות חלבון בכל דגימה, ולאחר מכן להוסיף מאגר ליזה של חלבון + PI כדי להתאים את הנפח הכולל ל-500-1000 מיקרוליטר.
הערה: השלבים הבאים מבוצעים על קרח.
4. הכנת slurry
הערה: הכינו תרחיף ביחס 1:1 של חלבון G ג'ל וג'ל אפיטופ טאג ביום שלפני או ביום של משקעים חיסוניים.
- הכנת חלבון G ג'ל
- בעזרת קצה שקצהו חתוך, מערבבים היטב ולאחר מכן מפרידים את ג'ל החלבון G (ראו טבלת חומרים) כך שמכינים 20 מיקרוליטר חרוזים לדגימה.
- צנטריפוגה בטמפרטורה של 12,000 x גרם למשך 20 שניות ב-4°C והניחו את החרוזים על קרח למשך דקה אחת כדי לאפשר לחרוזים להתאזן. השליכו את הסופרנאטנט בעזרת פיפטה.
- הוסף 1 מ"ל של חיץ חלבון ליזה + PI לג'ל G החלבון שהוכן בשלב 4.1.2 וערבב על ידי הקשה והפוך. צנטריפוגה בטמפרטורה של 12,000 x גרם למשך 20 שניות ב-4°C, הניחו את החרוזים על קרח למשך דקה אחת כדי לאפשר לחרוזים להתאזן, והשליכו את הסופרנטנט.
- חזור על שלב 4.1.3 שלוש פעמים.
- הוסיפו נפח שווה של חיץ חלבון ליזה לג'ל G החלבון כדי ליצור תמיסת ג'ל G של חלבון ביחס של 1:1. חלבון G ג'ל slurry ניתן לאחסן ב 4 °C במשך כ 1 יום.
- הכנת ג'ל אפיטופ תג זיקה
- בעזרת קצה שקצהו חתוך, יש להתסיס היטב ולאחר מכן להפריד את ג'ל הזיקה לתג אפיטופ (ראה טבלת חומרים) כך שמכינים 10-15 מיקרוליטר חרוזים לדגימה.
- צנטריפוגה ב 5,000 x גרם במשך 30 שניות ב 4 ° C ולחכות 1 דקה על קרח כדי לאפשר את החרוזים להתאזן. השליכו את הסופרנאטנט בעזרת פיפטה.
- הוסף 1 מ"ל של חיץ ליזה חלבון + PI לג'ל הזיקה של תג אפיטופ שהוכן בשלב 4.2.2 וערבב על ידי הקשה והפוך. צנטריפוגה בטמפרטורה של 5,000 x גרם למשך 30 שניות ב-4°C, הניחו את החרוזים על קרח למשך דקה אחת כדי לאפשר לחרוזים להתאזן, והשליכו את הסופרנאטנט עם פיפטה.
- חזור על שלב 4.2.3 פעמיים.
- הוסף 500 μL של 0.1 M גליצין (pH 3.5) לג'ל אפיטופ תג זיקה שהוכן בשלב 4.2.4 וערבב על ידי הקשה והיפוך. שלב זה מבוצע כדי להסיר נוגדנים תג epitope חינם. בתוך 20 דקות לאחר הוספת גליצין, צנטריפוגה ב 5,000 x גרם במשך 30 שניות ב 4 ° C, מניחים את החרוזים על קרח למשך דקה אחת כדי לאפשר לחרוזים להתאזן ומשליכים את supernatant.
- הוסף 500 μL של חיץ ליזה חלבון + PI לג'ל הזיקה של תג אפיטופ שהוכן בשלב 4.2.5 וערבב על ידי הקשה והפוך. צנטריפוגה בטמפרטורה של 5,000 x גרם למשך 30 שניות ב-4°C, הניחו את החרוזים על קרח למשך דקה אחת כדי לאפשר לחרוזים להתאזן, והשליכו את הסופר-נטנט.
- חזור על שלב 4.2.6 שלוש פעמים.
- הוסף נפח שווה של חיץ ליזה חלבוני לג'ל הזיקה של תג האפיטופ כדי להכין תרחיף ג'ל זיקה לתג אפיטופ ביחס של 1:1. ניתן לאחסן את תרחיף הג'ל אפיטופ תג זיקה ב 4 °C למשך כ 1 יום.
5. ניקוי מוקדם עם ג'ל G החלבון ולכידת קומפלקסים חלבוניים עם ג'ל זיקה תג אפיטופ
- ערבבו 1:1 חלבון G slurry (מוכן בשלב 4) עם פיפטה עם קצה חתוך והוסיפו 40 μL בכל פעם לדגימה.
- סובב את הדגימה במשך שעה אחת על מסובב (ראה טבלת חומרים) בכ- 30 שניות למחזור בתא קירור (4°C).
- צנטריפוגה בטמפרטורה של 12,000 x גרם למשך 20 שניות ב-4°C והניחו את החרוזים על קרח למשך דקה אחת כדי לאפשר לחרוזים להתאזן.
- אספו את הסופרנאטנט והעבירו אותו לצינור חדש של 1.5 מ"ל עם ספיחת חלבון נמוכה.
- הפרד את הדגימה לקלט מהדגימה בשלב 5.4 והעבר אותה לצינור חדש של 1.5 מ"ל.
- הוסף 20-30 μL של 1: 1 epitope תג ג ג slurry לדגימה.
- סובבו על מסובב במשך כ-30 שניות למחזור בתא קירור (4°C) למשך שעתיים.
- הוסף מאגר דגימה לקלט שהוכן בשלב 5.5 כדי לדלל אותו ל- 4x, וחמם ב- 98 ° C למשך 10 דקות. הקלט יכול להיות מאוחסן ב -80 °C.
הערה: בגלל האפשרות של פירוק חלבון עקב הקפאה והפשרה, יש לבצע את השלבים הבאים מבלי לשמר את החלבון ככל האפשר.
6. שטיפה ופליטה של החלבונים המושקעים
- הגדר את הטמפרטורה של בלוק החום ל 98 °C.
- צנטריפוגה ב 5,000 x גרם במשך 30 שניות ב 4 ° C ולחכות 1 דקה על קרח כדי לאפשר את החרוזים להתאזן. השליכו את הסופרנאטנט בעזרת פיפטה.
- הוסף 1 מ"ל של מאגר ליזה חלבון + PI וערבב על ידי הקשה והפוך. סובבו על מסובב במשך כ-30 שניות בכל מחזור בתא קירור (4°C) למשך 5 דקות. צנטריפוגה ב 5,000 x גרם במשך 30 שניות ב 4 ° C, לחכות 1 דקה על קרח כדי לאפשר את החרוזים להתאזן, ולהשליך את supernatant.
- חזור על שלב 6.3 5-10 פעמים.
- הוסף 10 μL של מאגר דגימה לדגימה שהוכנה בשלב 6.4. מרתיחים ב-98°C למשך 10 דקות.
- צנטריפוגה ב-5,000 x גרם ב-4°C למשך 30 שניות.
- מניחים עמוד בצינור חדש עם ספיחת חלבון נמוכה ומעבירים את הג'ל לעמוד באמצעות פיפטה עם קצה חתוך. עמוד משמש כדי למנוע זיהום של הג'ל.
- צנטריפוגה ב 9,730 x גרם למשך דקה אחת ב 4 ° C. אסוף את הזרימה. ניתן לאחסן את הדגימה ב -80 °C.
הערה: אם יש חשש לפירוק דגימה, יש לבצע את האימונובלוטציה הבאה ללא הקפאה.
7. אימונובלוטינג
הערה: הליכי אימונובלוטינג מבוססים על דוחות קודמים 7,8.
- טען דגימות שלמות על ג'ל פוליאקרילאמיד נתרן דודציל-סולפט (SDS-PAGE, ראה טבלת חומרים).
הערה: במידת הצורך, השתמש בג'לים גדולים כך שניתן יהיה להעביר את כל הדגימה. ג'לים עם בארות 50 μL שימשו כאן. - הניחו את הג'לים בתא האלקטרופורזה והוסיפו חיץ Tris/Glycine/SDS 1x (ראו טבלת חומרים) עד לנפח המתאים סביב הג'לים.
- אלקטרופורזה ג'ל ב 100 V ו 400 mA.
- מעבירים לממברנות פוליווינילידן פלואוריד (PVDF, ראו טבלת חומרים).
- חסום את כתמי קרום PVDF עם חלב רזה 5% ב- PBS-P למשך שעה אחת בטמפרטורת החדר.
- שטפו את הממברנה שלוש פעמים עם PBS-P על שייקר במהירות שיא למשך 5 דקות. בצע את אותו הליך לאחר מכן בעת הכביסה.
- יש לדגור למשך הלילה על שייקר עם הנוגדן הראשוני (ראו טבלת חומרים) בטמפרטורה של 4°C.
- שטפו את הממברנה שלוש פעמים עם PBS-P למחרת.
- יש לדגור במשך שעה עם הנוגדן המשני על שייקר בטמפרטורת החדר.
הערה: אם המשקל המולקולרי של חלבון המטרה קרוב לשרשרת הכבדה IgG, שיש לה משקל מולקולרי של כ-50 kDa, ניתן להשתמש בנוגדן משני ספציפי לשרשרת קלה כדי למנוע חפיפה של רצועת המטרה עם שרשרת IgG כבדה. במחקר זה נעשה שימוש בנוגדנים ספציפיים לשרשרת אור7 או Veriblot כמגיב זיהוי IP (ראה טבלת חומרים). - זהה להקות של חלבונים עם מצעים זוהרים peroxidase. ניתן לשמור את הממברנה ב- PBS לאחר שטיפתה פעמיים עם PBS-P.
- רצועה במשך 10 דקות עם תמיסת הפשטה (ראו טבלת חומרים).
- לשטוף שלוש פעמים ולחסום עם 5% חלב רזה PBS-P. הפרוטוקול לאחר מכן זהה לשלב 7.6 ואילך.
תוצאות
לאדיפוציטים תרמוגניים, הידועים גם בשם אדיפוציטים חומים ובז ', יש השפעות פוטנציאליות נגד השמנת יתר ונגד אי סבילות לגלוקוז. PR (PRD1-BF1-RIZ1 הומולוגי) תחום המכיל 16 (PRDM16) הוא קו-פקטור שעתוק הממלא תפקיד חשוב בקביעת זהות אדיפוציט תרמוגנית 9,10.
EHMT1 (euchromatic histone-lysine N-methyltransferase 1), הידוע גם בשם GLP, מזרז בעיקר מונו-ודימתילציה של ליזין 9 של היסטון H3 (H3K9) באמצעות הקו-פקטור S-אדנוזיל מתיונין 11. דו"ח קודם הצביע על כך ש- EHMT1 הוא מתילטרנספראז חיוני בקומפלקס PRDM16 השולט בגורל תאי השומן התרמוגני באמצעות מתילציה של היסטון12,13. יתר על כן, דיווחנו בעבר כי רמות הביטוי של PRDM16 ו- EHMT1 מתואמות באופן משמעותי עם אלה של גנים תרמוגניים ברקמת השומן החומה הפריrenלית האנושית (BAT), דבר המצביע על כך שגם PRDM16 וגם EHMT1 ממלאים תפקידים חשובים בהתפתחות BAT אנושי8.
כדי להדגים את היעילות של פרוטוקול זה כשיטה לאישור PPIs, הדבקנו DYKDDDDK-PRDM16 ו- HA-EHMT1 לתאי HEK-293 ו- DYKDDDDK-PRDM16 המואץ על ידי המערכת החיסונית באמצעות הפרוטוקול לעיל. PRDM16 המתויג DYKDDK ו-EHMT1 המתויג HA הוכנסו לאתרי השיבוט של וקטור ביטוי היונקים pcDNA3.1 (ראו טבלת חומרים). אימונובלוטינג אישר את הקשר בין DYKDDDDK-PRDM16 ו-HA-EHMT1 בקבוצות שנדבקו ב-DYKDDDDK-PRDM16 וב-HA-EHMT1 (איור 2).
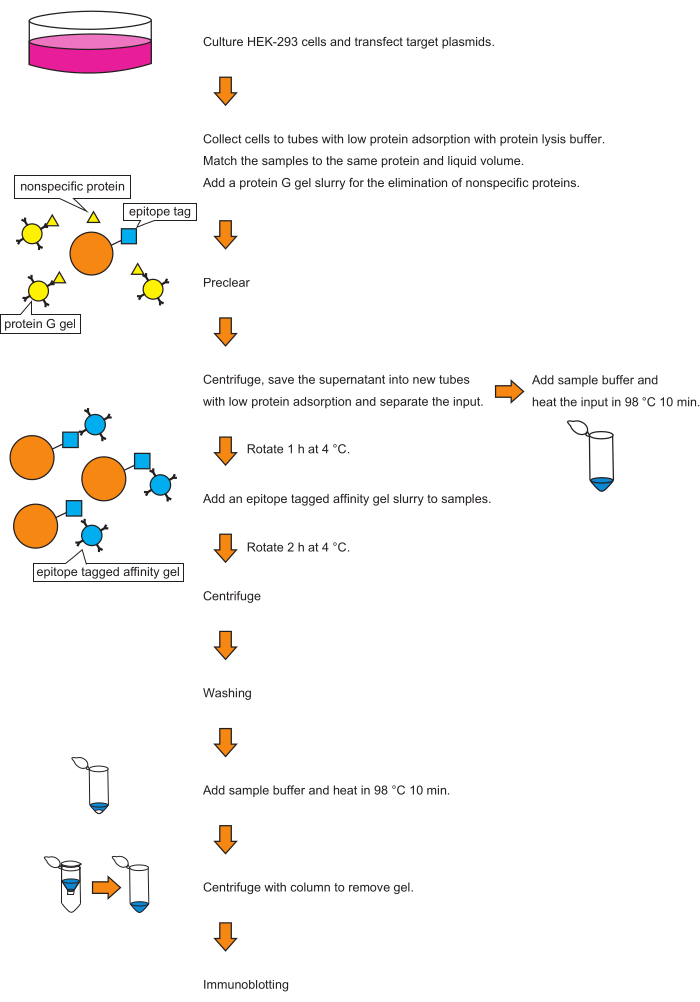
איור 1: ייצוג סכמטי של משקעים חיסוניים משותפים. הסכימה של הפרוטוקול מוצגת כאן. הצד הימני מציג את זרימת העבודה של הפרוטוקול; הצד השמאלי מציג ייצוג גרפי של התגובות. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
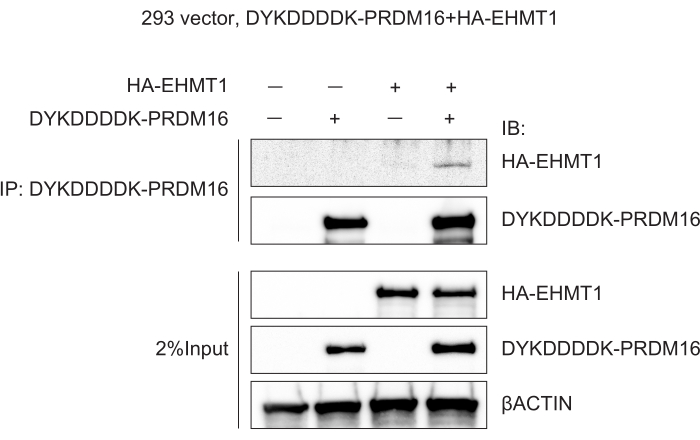
איור 2: PRDM16 משויך ל-EHMT1. תאי HEK-293 הודבקו בווקטור (בקרה שלילית), DYKDDDDK-PRDM16, או DYKDDDDK-PRDM16 ו-HA-EHMT1. לאחר מכן בוצע Co-immunoprecipitation באמצעות ג'ל זיקה לתג DYKDDDDK, ואחריו immunoblotting. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
| חיץ ליזה חלבוני 250 מ"ל (סינון 0.22 מיקרומטר, מאוחסן ב-4°C) | ||
| מ"ל | ריכוז סופי | |
| 1 מטר טריס pH 8.0 | 12.5 | 50 מ"מ |
| 5 מטר NaCl | 7.5 | 150 מ"מ |
| 0.5 M חומצה Ethylenediaminetetraacetic | 0.5 | 1 מ"מ |
| גליצרול | 25 | 10% |
| אתר פוליאוקסיאתילן(10) אוקטילפניל | 2.5 | 1% |
| DDW | 202 | |
| סך | 250 | |
טבלה 1: הרכב מאגר ליזה חלבונית.
דיון
פרוטוקול זה הוא כמעט כמו פרוטוקולים 5,7,14,15 שדווחו בעבר. הנקודה החשובה של פרוטוקול זה היא שאנו אף פעם לא עוצרים את הניסוי משלב הליזה התאית לשלב המשקעים החיסוניים. פירוק חלבונים מעכב זיהוי PPI. מסלול זמן ממושך ומחזורי הקפאה-הפשרה חוזרים ונשנים מפרקים חלבונים. אלקטרופורזה ב- SDS-PAGE צריכה להתבצע גם באותו יום של משקעים חיסוניים לא רק כדי למזער את פירוק החלבון, אלא גם כדי למקסם את זיהוי PPI.
באדיפוציטים תרמוגניים, האינטראקציה בין EHMT1 ו- PRDM16 דווחה במחקר קודם13. קומפלקס EHMT1 - PRDM16 מסדיר את גורל תאי האדיפוציט החומים ואת התרמוגנזה13. EHMT1 גורם ל- PRDM16 להתייצב על ידי הפסקת האינטראקציה של PRDM16 - חלבון קושר חלבון עמילואיד (APPBP) 216. ייצוב PRDM16 זה מוסדר על ידי cullin(CUL) 2-APPBP2 ו- EHMT116.
במחקר זה, תאי HEK-293 שימשו מכיוון שתאי HEK-293 נמצאים בשימוש נרחב בייצור חלבונים רקומביננטיים17. ניתן להשתמש בקווי תאים אחרים שקל להדביק עם פלסמידים, כגון תאי Cos-7 ותאי הלה. PEI שימש לטרנספקציה מכיוון ש- PEI חסכוני ופשוט יותר בהשוואה לליפופקציה קונבנציונלית.
ניקוי מוקדם, סיבוב בג'ל אפיטופ תג ושטיפה הם שלבים חשובים במיוחד בשיטה זו. ניקוי מקדים יכול להסיר את החלבונים שנקשרים באופן לא ספציפי לג'ל. בנוסף, זמן הסיבוב עם ג'ל הזיקה לתג אפיטופ חשוב מכיוון שזמן מוגזם עלול לגרום לזיהוי חלבונים לא ספציפיים, וזמן לא מספיק עלול לעכב את זיהוי חלבוני המטרה.
יש לציין את הנקודות הבאות. תאי HEK-293 מתנתקים בקלות; לכן, מנות מצופות קולגן יש להשתמש בעת הכנת הדגימות. פתרון PEI הוא ציטוטוקסי; לכן, המדיום צריך להיות מוחלף לאחר transfection מבלי לעזוב את התאים לתקופה ממושכת. אם לא נצפים PPIs, כמות הפלסמידים הנגועים עשויה להיות לא מספקת ו / או כמות החלבון המובאת ל- IP עשויה להיות נמוכה. בנוסף, אם מספר השטיפות מוגזם, האינטראקציות עלולות להחמיץ. כדי לטפל באלה, ניתן לשקול את הדברים הבאים: הגדלת כמות הפלסמיד שהוכנס לתאי HEK-293, הגדלת כמות החלבון המשמש ל- IP, והפחתת מספר הכביסות. יתר על כן, אם נשאר יותר מדי supernatant בשטיפה הסופית, זה יעלה על גדותיו מן הבארות של סודיום דודציל סולפט-פוליאקרילאמיד ג'ל. אם נצפים פסים לא ספציפיים, כמות הפלסמיד/חלבון המשמשת לקניין רוחני עשויה להיות גבוהה מדי, או שמספר או עוצמת השטיפות עשויים להיות לא מספיקים. ניתן לטפל בהם על ידי הפחתת כמות הפלסמיד/חלבון המשמש ל- IP, הגדלת מספר השטיפות, או הגדלת כוח הכביסה על ידי הגדלת ריכוז המלח במאגר הכביסה.
דטרגנטים נפוצים כגון פוליאוקסאתילן (10) אתר אוקטילפניל עלולים לשבש PPIs משמעותיים מבחינה תפקודית18. דטרגנטים עדינים יותר עשויים להגביר את ההתאוששות של קומפלקסים חשובים מבחינה פונקציונלית, בעוד שהם יכולים להניב רמה בלתי מקובלת של אינטראקציות לא ספציפיות עקב מסיסות חלקית. מאגר החלבון ליזיס המשמש במחקר הנוכחי מכיל 1% פוליאוקסאתילן (10) אתר אוקטילפניל. חיץ זה יוצר חלבונים ציטופלזמיים עם כמויות גבוהות של חלבונים המבוטאים יתר על המידה על ידי הפלסמידים הנגועים. כאשר משקעים חיסוניים מבוצעים על דגימות שהוכנו על ידי הפרדת גרעינים וציטופלסמה, הרקע מצטמצם בהשוואה לדגימות שהוכנו על ידי ליזה של תאים שלמים, וניתן לזהות רצועות מטרה ברורות17. אם המשקעים החיסוניים מבוצעים עם חלבונים בגרעין, ניתן לחלץ חלבונים גרעיניים באמצעות ערכת מיצוי גרעינית מסחרית או על ידי השמדה והסרה של ציטופלסמה עם חיץ מלח נמוך המכיל חומר ניקוי ולאחר מכן מיצוי חלבונים גרעיניים עם חיץ מלח גבוה19. זמן הפיתוח של immunoblotting צריך להיות מותאם לא רק כדי למנוע רקע, אלא גם כדי לזהות להקות מסוימות.
לשיטה זו היו מספר מגבלות. ראשית, השתמשנו ב-PPI שצפוי מאוד לזהות. שנית, מכיוון שהביטוי של כל גן תלוי בשילוב של פלסמידים, לא ניתן לקבל מספיק חלבון, ולכן האינטראקציה עשויה, שלא להתגלות.
לסיכום, באמצעות שיטה זו, PPIs ניתן לאשר כלכלית ובקלות להשוות ספקטרומטריית מסה. ניתן לאשר את ה-PPI בין חלבוני ההיתוך השונים של תג האפיטופ גם על ידי שימוש בנוגדני זיקה כנגד כל תג במקום ג'ל הזיקה של תג האפיטופ. שיטות דומות של משקעים חיסוניים יכולות להתבצע בסוגי תאים אחרים על ידי החדרת פלסמיד המבטא כל חלבון המאוחה לתג DYKDDDDK. יתר על כן, שימוש בנוגדנים אנדוגניים במקום ג'ל אפיטופ תג זיקה מאפשר לאשר PPIs אנדוגניים בסוגי תאים שונים.
גילויים
אנו מצהירים כי לאף אחד מהמחברים אין ניגודי אינטרסים הקשורים למחקר זה.
תודות
עבודה זו נתמכה על ידי האגודה היפנית לקידום המדע (JSPS) מענק KAKENHI מספר 19K18008 (G.N.), JSPS KAKENHI מענק מספר 22K16415 (G.N.), JSPS KAKENHI מענק מספר 22K08672 (H.O.), מענק מחקר של האגודה היפנית לסוכרת לחוקרים צעירים (G.N.), ומענק מחקר של MSD Life Science Foundation לחוקרים צעירים (G.N).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.5 M EDTA (pH8.0) | Nippon gene | 311-90075 | |
| 10% Mini-PROTEAN TGX ג'ל חלבון טרומי, 10 בארות, 50 ומיקרו; L | Biorad | 4561034 | |
| 10x Tris/Glycine/SDS | Biorad | 1610772 | |
| ANTI-FLAG M2 Affinity Gel | Sigma | A2220 | |
| Anti-Mouse IgG, כבשים שלמות מקושרות HRP | GE Healthcare | NA931-1ML | |
| Anti-Rabbit IgG, חמור בטן שלם מקושר HRP | GE Healthcare | NA934-1ML | |
| מגרד תאים M | Sumitomo בקליט | MS-93170 | |
| צלחת מעיל קולגן I 100 מ"מ | IWAKI | 4020-010 | |
| cOmplete, מעכב פרוטאז נטול EDTA קוקטייל | רוש | 4693132001 | |
| DMEM/F-12, תוסף GlutaMAX | Invitrogen | 10565042 | |
| D-PBS (-) | FUJIFILM Wako | 045-29795 | |
| גליצרול | FUJIFILM Wako | 072-00626 | |
| גליצין | FUJIFILM Wako | 077-00735 | |
| HA-Tag (C29F4) ארנב mAb #3724 | איתות תאים | C29F4 | |
| Laemmli מאגר דגימה | מעבדות Bio-Rad | 161-0747 | |
| עמודות כרומטוגרפיה מיקרו ביו-ספין | Biorad | 7326204 | |
| Mini-PROTEAN תא טטרה למיני ג'לים טרומיים | Biorad | 1658004JA | |
| נוגדן חד-שבטי ANTI-FLAG M2 המיוצר בעכבר | Sigma | F3165 | |
| NaCl | FUJIFILM Wako | 191-01665 | |
| pcDNA3.1-FLAG-PRDM16 | מאמר זה | N/A | |
| pcDNA3.1-HA-EHMT1 | מאמר זה | N/A | |
| pcDNA3.1-וקטור | נייר זה | N/A | |
| PEI MAX - טרנספקציה דרגה ליניארית פוליאתילנימין הידרוכלוריד | PSI | 24765 | |
| תמיסת פניצילין-סטרפטומיצין | FUJIFILM Wako | 168-23191 | |
| ערכת בדיקת חלבון BCA פירס | תרמו סיינטיפיק | 23227 | |
| פוליאוקסיאתילן(10) אתר אוקטילפניל | FUJIFILM Wako | 168-11805 | |
| פוליאוקסיאתילן(20) סורביטן מונולאורט | FUJIFILM Wako | 167-11515 | |
| חלבון G Sepharose 4 חבילות מעבדה בזרימה מהירה | Cytiva | 17061801 | |
| חלבון LoBind צינורות | eppendorf | 30108442 | |
| ROTATOR RT-5 | TAITEC | RT-5 | |
| חלב רזה | Morinaga | 0652842 | |
| פתרון הפשטה | FUJIFILM Wako | 193-16375 | |
| Trans-Blot Turbo Mini PVDF Transfer Pack | Biorad | 1704156B03 | |
| Trans-Blot Turbo System | Biorad | N/A | |
| Trizma base | Sigma | T1503-1KG | |
| נבדק USDA סרום בקר עוברי (FBS) | HyClone | SH30910.03 | |
| Veriblot | Abcam | ab131366 | |
| β-אקטין (13E5) ארנב mAb #4970 | איתות תאים | 4970S |
מקורות
- Braun, P., Gingras, A. History of protein-protein interactions: from egg-white to complex networks. Proteomics. 12 (10), 1478-1498 (2012).
- Yanagida, M. Functional proteomics; current achievements. Journal of Chromatography B-Analytical Technologies in the Biomedical and Life Sciences. 771 (1-2), 89-106 (2002).
- Rao, V. S., Srinivas, K., Sujini, G. N., Kumar, G. N. S. Protein-protein interaction detection: methods and analysis. International Journal of Proteomics. 2014, 147648(2014).
- Hopp, T. P., et al. A short polypeptide marker sequence useful for recombinant protein identification and purification. Nature Biotechnology. 6 (10), 1204-1210 (1988).
- Gerace, E., Moazed, D. Affinity pull-down of proteins using anti-FLAG M2 agarose beads. Methods in Enzymology. 559, 99-110 (2015).
- Einhauer, A., Jungbauer, A. The FLAG peptide, a versatile fusion tag for the purification of recombinant proteins. Journal of biochemical and biophysical methods. 49 (1-3), 455-465 (2001).
- Egusa, G., et al. Selective activation of PPARα maintains thermogenic capacity of beige adipocytes. iScience. 26 (7), 107143(2023).
- Nagano, G., et al. Activation of classical brown adipocytes in the adult human perirenal depot is highly correlated with PRDM16-EHMT1 complex expression. PLoS One. 10 (3), e0122584(2015).
- Seale, P., et al. Transcriptional control of brown fat determination by PRDM16. Cell Metabolism. 6 (1), 38-54 (2007).
- Kajimura, S., et al. Regulation of the brown and white fat gene programs through a PRDM16/CtBP transcriptional complex. Genes and Development. 22 (10), 1397-1409 (2008).
- Shinkai, Y., Tachibana, M. H3K9 methyltransferase G9a and the related molecule GLP. Genes and Development. 25 (8), 781-788 (2011).
- Able, A. A., Richard, A. J., Stephens, J. M. TNFα effects on adipocytes are influenced by the presence of lysine methyltransferases, G9a (EHMT2) and GLP (EHMT1). Biology. 12 (5), 674(2023).
- Ohno, H., Shinoda, K., Ohyama, K., Sharp, L. Z., Kajimura, S. EHMT1 controls brown adipose cell fate and thermogenesis through the PRDM16 complex. Nature. 504 (7478), 163-167 (2013).
- Bian, W., et al. Protocol for establishing a protein-protein interaction network using tandem affinity purification followed by mass spectrometry in mammalian cells. STAR Protocols. 3 (3), 101569(2022).
- Cristea, I. M., Chait, B. T. Affinity purification of protein complexes. Cold Spring Harbor Protocols. 2011 (5), (2011).
- Wang, Q., et al. Post-translational control of beige fat biogenesis by PRDM16 stabilization. Nature. 609 (7925), 151-158 (2022).
- Holden, P., Horton, W. Crude subcellular fractionation of cultured mammalian cell lines. BMC Research Notes. 2, 243(2009).
- Yang, L., Zhang, H., Bruce, J. E. Optimizing the detergent concentration conditions for immunoprecipitation (IP) coupled with LC-MS/MS identification of interacting proteins. Analyst. 134 (4), 755-762 (2009).
- Herrmann, C., Avgousti, D. C., Weitzman, M. D. Differential salt fractionation of nuclei to analyze chromatin-associated proteins from cultured mammalian cells. BIO-PROTOCOL. 7 (6), e2175(2017).
הדפסות חוזרות והרשאות
