סקירה זו שואפת לבחון את התפקיד המכניסטי של אנקירין 1 (TRPA1) פוטנציאל קולטני חולף בפתוגנזה של CIPN ולהעריך את הפוטנציאל שלו כמטרה טיפולית להתערבות אימונומודולטורית ואנטי-דלקתית.
מאמר סקירה
TRPA1 בנוירופתיה היקפית הנגרמת על ידי כימותרפיה: מטרה מבטיחה לאימונומודולציה ולטיפול אנטי-דלקתי
במאמר זה
סיכום
תקציר
נוירופתיה היקפית הנגרמת על ידי כימותרפיה (CIPN) היא מצב קליני נפוץ וחמור הנגרם כאשר חומר כימותרפי פוגע במערכת העצבים ההיקפית, ובדרך כלל מאופיין בכאב חריג בגפיים הרחוקות וברגישות מוגברת לגירויים חמים וקרים. עם זאת, קיימים מעט טיפולים קליניים ל-CIPN, ולכן חשוב לזהות שיטות טיפול יעילות. אנקירין 1 (TRPA1), קולטן פציעה, יכול להיות מופעל על ידי לחץ חמצוני, מתווכים דלקתיים ומצבים היפותרמיים במהלך הפתוגנזה וההתקדמות של CIPN. TRPA1 מווסת את מסלול הדלקת במורד הזרם ומקדם שחרור גורמים דלקתיים וניורופפטידים, מה שמוביל לוויסות חיסוני לא תקין, מה שמוביל לתגובה דלקתית נוירוגנית ולאיתות כאב. במחקר זה נבחן תפקידו של TRPA1 בפתוגנזה של CIPN, מאומת האפשרות לכוון את TRPA1 לטיפול ב-CIPN על ידי עיכוב דלקת עצבית, ונבחן הסיכויים לשימוש באנטגוניסטים של TRPA1 וצמחי מרפא טבעיים לטיפול קליני ב-CIPN.
מבוא
סרטן נשאר אחד האתגרים המרכזיים בבריאות הציבורהעולמיים 1. למרות שכימותרפיה ממלאת תפקיד מרכזי בשיפור הישרדות הסרטן, לעיתים קרובות היא מלווה בתופעות לוואי חמורות, שביניהן CIPN הוא אחד הסיבוכים השכיחים והמורכבים ביותר. CIPN מאופיין קלינית בכאב סימטרי, פרסטזיה ורגישות חריגת לקור או חום בגפיים הרחוקות2, וחלק מהמטופלים עלולים גם לחוות קואורדינציה מוטורית עדינהלקויה 3. השכיחות המדווחת של CIPN משתנה מאוד, ונעה בין כ-50% ל-90%, וכ-30%-40% מהמקרים עלולים להתפתח לסיבוכים נוירולוגיים כרוניים2, מה שמפחית משמעותית את איכות חיי המטופלים ואת עמידתם בטיפול. הסיכון לפתח CIPN מושפע ממספר גורמים, כולל אופן המתן (מנה יחידה, מינון מצטבר או משך טיפול), תרופות נלוות, גיל, אנמיה, מדד מסת גוף גבוה (BMI) ונוירופתיה קיימתמראש 2,4,5. תרופות אנטי-ניאופלסטיות שדווחו כמעוררות רמות שונות של נוירוטוקסיות כוללות תרכובות מבוססות פלטינה, טקסאנים, אלקלואידים וינקה, מעכבי פרוטאזום (כגון בורטסומיבי), תרופות אפיגנטיות או אימונומודולטוריות (כגון תלידומיד ולנאלידומיד), ומעכבי מיקרוטובולים (כגון אריבולין)6.
נכון לעכשיו, האפשרויות הפרמקולוגיות לניהול CIPN נשארות מוגבלות. האגודה האמריקאית לאונקולוגיה קלינית (ASCO) ממליצה על דולוקסטין כהתערבות הפרמקולוגית היחידה עם תמיכה מבוססת ראיות לטיפול ב-CIPN. מחקרים קליניים הראו כי דולוקסטין יעיל בהפחתת כאב הקשור ל-CIPN, כאשר תועלתו הטיפולית בולטת במיוחד בנוירופתיה הנגרמת על ידי תרופות כימותרפיות מבוססות פלטינה, במיוחד אוקסליפלטין (OXA), בעוד שיעילותו ב-CIPN הנגרמת על ידי סוכנים אחרים, כגון טקסאנים ואלקלואידים וינקה, נראית משתנה יותר בין מחקרים7. למרות היעילות המוכחת שלו במשכי כאבים, היתרון הקליני הכולל של דולוקסטין הוא מתון, שכן הוא מספק בעיקר הקלה סימפטומטית ולא מונע CIPN או הופך שינויים פתולוגיים בסיסיים. יתרה מזאת, למרות שדולוקסטין נסבל בדרך כלל היטב, הטיפול עשוי להיות מלווה בתופעות לוואי קלות עד בינוניות, כולל עייפות, נדודי שינה ובחילות, שעלולות להגביל את ההיצמדות לטווח ארוך אצל חלק מהמטופלים. סוכנים נפוצים אחרים, כגון גאבאפנטין ופרגאבאלין, משמשים לניהול תסמינים אך הראו תוצאות טיפוליות לא עקביות או לא מספקות ב-CIPN 8,9. לכן, נותר צורך דחוף לפתח אסטרטגיות מניעה יעילות יותר ולזהות מטרות טיפוליות חדשות ל-CIPN.
בשנים האחרונות, עם ההבנה המעמיקה של הפתוגנזה של CIPN, מנגנונים רבים כגון תגובה דלקתית, לחץ חמצוני ושינויים בפלסטיות העצבית משכו בהדרגה תשומת לב גוברת 10,11,12. ביניהם, לחץ חמצוני ודלקת עצבית נחשבים לגורמים מרכזיים להתחלה ולהתקדמות של פגיעה עצבית ב-CIPN. חשוב לציין כי ערוץ TRPA1, ערוץ יונים רגיש לחמצון אדום המובע בשפע בנוירונים חושיים, הפך למתווך מולקולרי מרכזי המקשר בין לחץ חמצוני לאיתות דלקתי לבין התעוררות יתר של הנוירונים ורגישות לכאב13,14. בניגוד ל-TRPV1, שמזהה בעיקר חום רעיל, ו-TRPM8, שמזהה גירויים קורים, TRPA1 מאופיין ברגישותו הגבוהה למטבוליטים חמצניים ואלקטרופיליים שונים כגון 4-הידרוקסינוננל (4-HNE)15. הפעלת TRPA1 כוללת בדרך כלל שינוי קוולנטי של שאריות ציסטאין קריטיות16, מנגנון ייחודי שממקם את TRPA1 כגשר מולקולרי קריטי המקשר בין לחץ חמצוני ופרוקסידציה ליפידי המושרה על ידי כימותרפיה לבין התפתחות רגישות יתר-כאבית. יתרה מזאת, מספר מחקרים בבעלי חיים הראו מעורבות פונקציונלית של TRPA1 בכאב נוירופתי הנגרמת מכימותרפיה. במיוחד, במודלים נוירופתיים המושרים על ידי OXA, אבלציה גנטית או חסימה פרמקולוגית של TRPA1 מקלה באופן משמעותי על אלודיניה קרה ומכנית, מה שמעיד על תרומה קריטית של TRPA1 לפתוגנזה של CIPN17,18.
באופן ספציפי, TRPA1 הוא ערוץ יונים רגיש לחמצון רדוקס, המובע מאוד בנוירונים נוציספטיביים פריפריים. תרופות כימותרפיות גורמות לעיתים קרובות לתפקוד לקוי של המיטוכונדריה, לחץ חמצוני ופרוקסידציה של שומנים בנוירונים, מה שמוביל להצטברות מופרזת של מיני חמצן תגובתי (ROS) ותוצרי פרוקסידציה ליפידיים כגון 4-HNE. מולקולות תגובתיות אלו יכולות לשנות קוולנטית את שאריות הציסטאין המרכזיות של TRPA1 או לשנות את סף ההפעלה שלה, מה שמוביל לפתיחת ערוצים, זרימת Ca²⁺ ודפולריזציה נוירונלית, ובכך מגבירות את העברת הכאב והאיתות הדלקתי 19,20,21. מחקרים קודמים הראו כי TRPA1 רגיש לקור ויכול להיות מופעל על ידי מתווכים דלקתיים אנדוגניים, מה שתורם להתפתחות רגישות יתר לכאב הנגרמת מקור.22. בנוסף, הוכח כי TRPA1 פועל כערוץ יונים רגיש למכנו, שפעילותו מווסת על ידי מצב החמצון התאי, ומשתתף בכאב מכני חריג ורגישות יתר22,23. מעבר לנוירונים, TRPA1 מתבטא גם במספר סוגי תאי חיסון, כאשר הפעלתו מווסת את שחרור הציטוקינים ואת מפלי הדלקת, ומגבירה עוד יותר את הדלקת העצבית ההיקפית. ביחד, הרגישות לקור, הרגישות למכנונית, ותגובתיות החמצון הרדוקסיבי של TRPA1 יוצרות קשר מכני ברור בין לחץ חמצוני המושרה על ידי כימותרפיה לבין תהליכי הכאב הפתולוגיים הנובעים מכך, ובכך תורמים להתחלה ולתחזוקה של CIPN. בהתאם לכך, מיקוד ב-TRPA1 לשיבוש המעגל האכזרי של לחץ חמצוני ורעילות נוירודלקתית עשוי לייצג אסטרטגיה טיפולית מבטיחה לניהול כאב נוירופתי היקפי הנגרמת מכימותרפיה. במחקרים קיימים, אסטרטגיות התערבות הממוקדות ב-TRPA1 אושרו על פני מספר מערכות מודל. במבחנה, תרביות נוירונים של DRG בשילוב עם הדמיית סידן משמשות לעיתים קרובות לאימות השפעת הפעלת TRPA1 על העוררות נוירונית המושרה על ידי כימותרפיה25. בחי החיים, CIPN מושרה בדרך כלל במכרסמים באמצעות OXA, פקליטקסל או בורטזומיב, ואחריה עיכוב פרמקולוגי או גנטי של TRPA1 והערכות התנהגותיות נוספות כגון רגישות יתר לקור ומכנית 17,26,27. ברמה הטיפולית, אנטגוניסטים של TRPA1 הוכיחו יעילות בהקלה על כאב נוירופתי במודלים פרה-קליניים 28,29. ביחד, ממצאים אלו מספקים בסיס ניסויי מוצק למחקר תרגומי שמכוון ל-TRPA1 כאסטרטגיה טיפולית ל-CIPN.
מחקר עדכני כבר חשף קשר אפשרי בין TRPA1 ל-CIPN. עם זאת, מחקרים אלו התמקדו בעיקר בהשפעה הישירה של TRPA1 על העברת אותות הכאב ובתפקידו המקומי בתגובה הדלקתית. עם זאת, עדיין חסר מחקר שיטתי וחקירה מעמיקה של המנגנונים שבאמצעותם TRPA1 מווסת את תגובות החיסון כדי להשפיע על התהליך הפתולוגי הכולל של CIPN. לכן, מאמר זה דן במנגנונים הפוטנציאליים של CIPN, עם דגש על חקר תפקיד TRPA1 בפתוגנזה של CIPN. הסטטוס הנוכחי של המחקר על אנטגוניסטים וצמחי מרפא טבעיים מסוכם גם הוא כדי לאמת את היתכנות עיכוב TRPA1 ליצירת השפעות חיסוניות אנטי-דלקתיות לטיפול ב-CIPN. החידוש במאמר זה טמון בחקר שיטתי של תפקיד TRPA1 בפתוגנזה של CIPN מנקודת מבט ויסות חיסונית, תוך התגברות על מגבלות מחקר קודמות שהתמקדו אך ורק בהשפעותיו בתאי עצב או בדלקת מקומית. בנוסף, היא מספקת יעדים חדשים ותמיכה תיאורטית לפיתוח תרופות לטיפול ב-CIPN, בעלות חשיבות מדעית רבה וערך יישום קליני.
סקירה ופרספקטיבה
1. מנגנונים פוטנציאליים ל-CIPN
הפתומנגניזם של CIPN מורכב ומקושר לתפקוד לקוי של מיטוכונדריה הנגרמת על ידי תרופות כימותרפיות, לחץ חמצוני, הפרעות במערכת החיסון, חוסר ויסות בתעלות היונים, נזק לנוירונים של גנגליון שורש הגב (DRG), והפרעה לשלד הציטו הנוירוני 2,30,31,32,33,34,35,36,37, 38,39,40,41,42. טבלה 1 מספקת סקירה של המנגנונים הפתוגנים הספציפיים המעורבים ב-CIPN.
- תפקוד לקוי של מיטוכונדריה ולחץ חמצוני
חומרים כימותרפיים גורמים לשינויים מורפולוגיים של מיטוכונדריה, הפרעות ביואנרגטיות וייצור מופרז של ROS, מה שמוביל לנזק מבני מיטוכונדריאלי, פגיעה בתפקוד ולחץ חמצוני 12,43. אירועים אלו מפעילים תאי חיסון, מעלים את רמות הציטוקינים הפרו-דלקתיים ומפעילים מסלולי איתות דלקתיים, ובסופו של דבר תורמים להתפתחות CIPN. באופן ספציפי, סוכנים כימותרפיים מבוססי פלטינה יוצרים תוספות פלטינה-DNA שמצטברות ב-DRG, שם הן נקשרות ל-DNA גרעיני (nDNA) ו-DNA מיטוכונדריאלי (mtDNA). זה מקדם קישוריות צולבת, משנה את מבנה וסינתזה של DNA גרעיני, גורם לנזק DNA/מיטוכונדריאלי, מגביר את ייצור ROS, מפעיל תעלות הקשורות לקולטני פציעה ומעורר אפופטוזיס נוירוני. קיימות גם עדויות לכך ש-OXA גורם לכאב נוירופתי על ידי הפעלת אסטרוציטים והגברת ציטוקינים פרו-דלקתיים במסלול MAPK (חלבון מופעל על ידי מיטוגן).
בנוסף לתרכובות מבוססות פלטינה, חומרים כימותרפיים נוספים יכולים לפגוע בשלמות המיטוכונדריה באמצעות מנגנונים מגוונים. פקליטקסל מפריע הן להעברת האקסונים והן להעברת המטוכונדריה, מה שמוביל לפתיחת נקבוב המעבר לחדירות המיטוכונדריאלית (mPTP). אירוע זה גורם לאובדן פוטנציאל ממברנה מיטוכונדריאלית, יצירת יתר של ROS, דלדול ATP, זרימת סידן ונפיחות מיטוכונדריאלית. בורטזומיב, לעומת זאת, מעכב פעילות פרוטאזום ומפריע להומאוסטזיס חלבוני תאי, ובכך גורם לנזק מבני מיטוכונדריאלי ולפגיעה בתפקוד. שינויים אלו מתבטאים בנפיחות ווואקואוליזציה של מיטוכונדריה, חוסר ויסות סידן, דיכוי שרשרת הנשימה, ירידה בייצור ATP והצטברות ROS. יתרה מזאת, וינקריסטין (VCR) מעכב פולימריזציה של מיקרוטובולים, מה שפוגע בהובלה המיטוכונדרית לאורך אקסונים ומוביל להפחתת פוטנציאל הממברנה, הפרעה בהומאוסטזיס הסידן והתעוררות עצבית לא תקינה. ביחד, סוכנים אלו מדגישים את התפקיד המרכזי של תפקוד לקוי מיטוכונדריאלי בהשפעות נוירוטוקסיות של תרופות כימותרפיות 41,44,45,46,47.
באופן דומה, תפקוד לקוי של מיטוכונדריה משמש כרגולטור מרכזי של איתות פרו-דלקתי, בעוד שדלקת, בתורה, מחמירה את הנזק למיטוכונדריה, ובכך יוצרת מעגל קסמים של נוירוטוקסיות30,31. ראוי לציין כי ה-ROS שנוצר בתהליך זה מפעיל ישירות את ערוץ היונים הרגיש לרדוקס TRPA1, וגורם לזרימת סידן, לעוררות יתר של הנוירונים ותסמינים אופייניים הקשורים ל-CIPN כגון קור ואלודיניה מכנית. לכן, לחץ חמצוני משמש כנקודת מפנה מרכזית המקשר בין נזק מיטוכונדריאלי, הפעלת TRPA1 והפתוגנזה של CIPN. איור 1 ממחיש את המנגנונים שבאמצעותם תפקוד לקוי של מיטוכונדריה ולחץ חמצוני תורמים להתפתחות CIPN. - חריגות במערכת החיסון
- אינטראקציות נוירואימוניות
אינטראקציות נוירואימוניות ממלאות תפקיד מרכזי בהתפתחות ובהתמדה של CIPN. עדויות הולכות וגדלות מצביעות על כך שהתקשורת בין מערכת העצבים למערכת החיסון תורמת משמעותית להיווצרותה. תרופות כימותרפיות גורמות ללחץ תאי ופגיעה אקסונלית, מה שמוביל לשחרור דפוסים מולקולריים הקשורים לנזק (DAMPs) שמפעילים את איתות קולטני Toll-like 4 (TLR4) על מקרופאגים ותאי גליה. הפעלה זו מקדמת קיטוב מקרופאגים M1 והפרשת כימוקינים כגון CCL2 ו-CXCL10, המגייסים לימפוציטים T של CD4+ ו-CD8+ ותאי B ל-DRG, תוך הפחתת מספר תאי T אנטי-דלקתיים ב-48,49,50,51. למרות שנויטרופילים רגישים מאוד להשפעות הציטוטוקסיות של כימותרפיה, מה שמוביל לנויטרופניה מערכתית, מספר מחקרים דיווחו על עלייה בהפעלה וחדירה של נויטרופילים במערכת העצבים ההיקפית וב-DRG במהלך נוירופתיה המושרה על ידי כימותרפיה32. תאי מאסט (MCs) מווסתים עוד יותר תגובות פרו-דלקתיות על ידי גיוס תאי מערכת החיסון ושחרור מגוון ציטוקינים דלקתיים. בנוסף, ציטוקינים פרו-דלקתיים יכולים לדכא את פעילות תאי ההרג הטבעיים (NK), להחמיר דלקת עצבית ולחץ חמצוני ובכך לקדם התקדמות CIPN52.
תרופות כימותרפיות יכולות גם לשנות את הביטוי של גנים הקשורים לתפקודים חיסוניים ונוירוניים בנוירונים חושיים. לדוגמה, VCR מעלה את הביטוי של גורם שעתוק מפעיל 3 (ATF3) ושל נוירוטנסין (Nts), ובכך מווסת את שחרור הכימוקינים ומקדם גיוס תאי חיסון ל-DRG, אשר בתורו משפיע על התגובה הנוירודלקתית. OXA מווסת את הביטוי של פרוסטגלנדין-H2 D-איזומראז (Ptgds) וגן מארח RNA גרעיני קטן 1 (Snhg1), המעורבים בסינתזה של מתווכים דלקתיים ובוויסות הפלסטיות הנוירונלית, ובכך משפיעים על ההתעוררות הנוירונית והעברת אותות הכאב. לעומת זאת, ציספלטין (CDDP) משנה את הביטוי של ליפוקלין-2 (Lcn2) והומיאובוקס האצבע אבץ 2 (Zfhx2), ומפריע להומאוסטזיס מטבולי עצבי ולוויסות השעתוק, ובכך מקדם דלקת עצביתותפקוד לקוי של הנוירונים. ביחד, חוסר הוויסות של פרופילי ביטוי גנים אלו תחת לחץ כימותרפי חושף את האינטראקציה המורכבת בין פגיעה עצבית להפעלה חיסונית במהלך הפתוגנזה של CIPN.
יתרה מזאת, TRPA1 מתבטא לא רק בנוירונים תחושתיים אלא גם בתאי חיסון כמו מקרופאגים ו-MCs, שם הוא מתווך את שחרור הציטוקינים הפרו-דלקתיים. הביטוי הכפול של TRPA1 עשוי לשמש כקשר מולקולרי מרכזי שמניע את השיח הנוירואימוני והדלקת שמאחורי CIPN. - החמרה של דלקת עצבית
סוכנים כימותרפיים מווסתים את הפעלת והפרשת המתווך החיסוני מתאי גליה לווייניים (SGCs) ב-DRG, מיקרוגליה ואסטרוציטים בחוט השדרה, ותאי שוואן באקסונים54. הפעלת תאי החיסון מעלה את רמות הציטוקינים הפרו-דלקתיים, כגון פקטור נמק גידול-אלפא (TNF-α), אינטרלוקין-1 בטא (IL-1β), אינטרלוקין-6 (IL-6), אינטרלוקין-8 (IL-8), אינטרלוקין-20 (IL-20), המעודדים דלקת עצבית ורגישות נוירונלית; לעומת זאת, הביטוי של ציטוקינים אנטי-דלקתיים כגון אינטרלוקין-10 (IL-10) ואינטרלוקין-4 (IL-4) מדוכא, מה שמפחית את הפתרון של הדלקת. במקביל, כימוקינים כמו CCL2, CXCL1, CXCL12, CX3CL1 ו-CCL3 תורמים לגיוס תאי חיסון ולאינטראקציות בין נוירונים גליאליים. שינויים אלו מפעילים יחד מסלולי איתות דלקתיים מרכזיים, כגון MAPK והגורם הגרעיני kappa-light-chain-enhancer של תאי B מופעלים (NF-κB), שמגבירים עוד יותר את ייצור הציטוקינים ואת ההתעוררות היתר של הנוירונים 54,55,56,57,58,59. איור 2 ממחיש את המנגנונים שבאמצעותם חוסר ויסות מערכת החיסון גורם ל-CIPN.
חשוב לציין שמחקרים עדכניים הראו כי TRPA1 פועל כאפקטור ומגבר קריטי במורד הזרם של מפלי הדלקת הללו. ציטוקינים פרודלקתיים ומתווכים חמצניים יכולים להרגיש או להפעיל ישירות תעלות TRPA1 בנוירונים חושיים, ובכך לקשר דלקת עצבית להגברת ההתעוררות הנוירונית ולרגישות יתר לכאב ב-CIPN60,61.
- אינטראקציות נוירואימוניות
- דיסרגולציה של ערוץ יונים
- תעלות אשלגן
תרופות כימותרפיות מעוררות תגובה נוירודלקתית, המובילה לביטוי חריג של תעלות Kir4.1, המעודדות הפעלה של SGCs, הגברת ויסות חלבון חומצה סיביליארית גליאלית (GFAP), ושחרור ציטוקינים פרו-דלקתיים (למשל, TNF-α ו-IL-6). דבר זה מחמיר את ההתעוררות של נוירוני DRG ומעורר CIPN33. - ערוצי TRP
תעלות TRP מעורבות בתגובה הדלקתית ובכאב הנוירופתי הקשור ל-CIPN ויכולות להיות מופעלות על ידי לחץ חמצוני המושרה על ידי כימותרפיה. ביניהם, ערוץ TRPA1, הממוקם בעיקר בנוירונים חושיים, מתווך דלקת נוירוגנית על ידי שחרור נוירופפטידים כגון פפטיד קלציטונין הקשור לגן (CGRP) וחומר P (SP), המעודדים גיוס תאי חיסון לאתרי הפגיעה. במקביל, TRPA1 מתבטא גם בתאי גליה ותאי חיסון, שם הפעלתו מעודדת שחרור ציטוקינים וכמוקינים פרו-דלקתיים, מה שמגביר עוד יותר את גיוס תאי החיסון ומגביר את התגובה הדלקתית. ביחד, TRPA1 משמש כגשר חיוני בין מערכת העצבים למערכת החיסון, ותורם להגברת הדלקת ולרגישות יתר של הנוירונים ב-CIPN. לכן, האנטגוניזם ל-TRPA1 עשוי להקל על כאב באמצעות מודולציה נוירו-אימונית כפולה על ידי עיכוב שחרור CGRP ו-SP, הפחתת דלקת נוירוגנית וגיוס תאי חיסון, והורדת רמות ציטוקינים פרו-דלקתיים62.
סינג ועמיתיו דיווחו כי טיפול ב-OXA הגביר את הביטוי המשותף של וונילואיד 1 (TRPV1) ופוטנציאל קולטן חולף M8 (TRPM8) עם TRPA1 ב-DRGs של חולדות, מה שהוביל לשיפור בהתנהגויות כאב נוירופתיות. ראוי לציין כי TRPA1 ו-TRPV1 חולקים דיבור תפקודי באיתות כאב המושרה על ידי כימותרפיה; עם זאת, היישומים הקליניים הנוכחיים מתמקדים בעיקר באגוניסט TRPV1 קפסאיצין, שמקל על כאב נוירופתי על ידי דה-סנסיפיקטורים המבטאים את TRPV134. זה מספק תובנות לפיתוח עתידי של אסטרטגיות משככי כאבים המיועדות ל-TRPA1. ביחד, TRPA1 משמש כמשלב קריטי של לחץ חמצוני, הפעלה חיסונית ואיתות כאב, מה שהופך אותו למטרה מבטיחה הן לטיפולים משככי כאבים והן לטיפולים אנטי-דלקתיים ב-CIPN.
- תעלות אשלגן
- פגיעת נוירונים ב-DRG
- נזק נוירוני ישיר
ה-DRG הוא האתר העיקרי המושפע מ-CIPN, אך מנגנוני הנזק הנוירוני משתנים בין סוכנים כימותרפיים. איור 3 מציג את המסלולים הייחודיים המעורבים בפגיעת נוירונים ב-DRG הנגרמת על ידי תרופות שונות. לדוגמה, PTX מעודד חדירת מקרופאגים ל-DRG, מה שמפחית את מספר סיבי העצב התוך-אפידרמיים (IENFs) ומאיץ את התקדמות CIPN35. סוכנים מבוססי פלטינה מצטברים בנוירוני DRG, גורמים לתפקוד לקוי של מיטוכונדריה, יצירת ROS מופרזת ואפופטוזיס נוירוני. תלידומיד יכול לגרום ישירות לנזק נוירוני DRG. יתרה מזאת, מספר תרופות כימותרפיות משנות את הביטוי והתפקוד של תעלות יוני נתרן, אשלגן וסידן, ומובילות להתעוררות יתר של נוירונים36,37. הפרעה במבני מיקרוטובול ב-DRG פוגעת עוד יותר בהובלה אקסונלית ומפעילה ניוון וולרי, מה שמוביל בסופו של דבר לאובדן סיבי עצב ולפגיעה בהעברת העצבים38. - נזק עקיף המתווך על ידי מערכת החיסון
בנוסף לרעילות נוירונית ישירה, חומרים כימותרפיים עלולים לפגוע בנוירוני DRG בעקיפין באמצעות הפעלת איתות חיסוני מולד. פגיעה תאית הנגרמת על ידי סוכנים אלו משחררת DAMPs, שמפעילים קולטני זיהוי דפוסים (PRRs) כגון TLR4 והקולטן לתוצרי גליקציה מתקדמים (RAGE). הפעלת קולטנים אלו גורמת למפלים נוירודלקתיים, מגבירה את ההתעוררות הנוירונית ומחמירה כאב נוירופתי39. ביחד, ממצאים אלו מצביעים על כך שחומרים כימותרפיים גורמים לפגיעה ב-DRG הן דרך מנגנוני ציטוטוקסים ישירים והן דרך מסלולים עקיפים המתווכים על ידי מערכת החיסון, ובכך תורמים להופעת והתקדמות CIPN.
- נזק נוירוני ישיר
- הפרעה של שלד התא העצבי
מחקרים קודמים הראו כי דה-פולימריזציה של מיקרוטובולים מחלישה ישירות את שלמות המבנה של הנוירונים ופוגעת ביכולת ההארכה האקסונלית שלהם. פירוק שלד התא גורם לאי-סדירויות על פני הנוירון, ושינויים מכניים אלו יכולים לשמש כסימנים פיזיקליים של CIPN40. מחקר נוסף של Chine ואחרים היה הראשון שהראה ש-Hsp27 יכול למנוע CIPN על ידי הגנה על מבנה אקסונלי. בניגוד למנגנונים אנטי-דלקתיים מסורתיים, Hsp27 מפעיל אפקטים נוירופרוטקטיביים על ידי ויסות מסלולי אפופטוטיה ושמירה על יציבות ציטוסקלט46.
אלקלואידים של וינקה (כגון וינקריסטין, VCR) נקשרים במיוחד לקצוות ה-β-טובולין, חוסמים את יצירת הצירים והובלה אקסונית, מה שמוביל לדפולימריזציה של מיקרוטובולים ולפגמים בצמיחת נויריטים40. לעומת זאת, פקליטקסל מייצב את המיקרוטובולים ומונע את דה-פולימריזציה שלהם, ובכך משבש את העברת האותות החשמליים ואת ההובלה המיטוכונדריאלית בתוך אקסונים, מה שגורם לדהמיאלינציה של סיבי עצב היקפיים41. בורטזומיב, דרך מסלול לא-פרוטאזומי, גורם לפולימריזציה מופרזת של מיקרוטובולים, מעכב התרחבות נויריטים ומפעיל ניוון אקסונלי42.
תרופות אלו מובילות יחד לפגיעה בהובלה אקסונלית, אפופטוזיס נוירוני ואובדן הולכה עצבית, ומהווים את הבסיס הפתולוגי המרכזי של CIPN. בנוסף, הפעלת מסלול האיתות RhoA/ROCK/LIMK/cofilin מונעת שינוי חוטי אקטין, ומעכבת עוד יותר את התחדשות האקסונים63. הפרעה בציטוסקלטלית גם מתמודדת עם פגמים בהעברת המיטוכונדריה והפעלת הקלפיין, ויוצר מחזור אכזרי של "מבנה-אנרגיה-אפופטוזיס" שמאיץ את התקדמות CIPN64.
2. מנגנוני CIPN הקשורים ל-TRPA1
TRPA1 הוא ערוץ קטיון לא-סלקטיבי הקיים בדרך כלל כהומוטטראמר בממברנת התא. הוא מכיל שישה מקטעים טרנסממברנליים (S1-S6) האופייניים לתעלות TRP. מתוכם, S1-S4 מהווים את תחום חיישן המתח (VSLD), בעוד ש-S5 ו-S6 מעצבים את הנקבובית דרכה עוברים היונים. אזורים אלו חיוניים להפעלת התעלה ולתפקידה בזיהוי גירויים כואבים, תרמייםוכימיים. האזור הארוך N-טרמינלי של TRPA1 מכיל מספר דומיינים חוזרים של אנקירין (ARDs), המתווכים אינטראקציות עם חלבונים אחרים ותורמים לוויסות תערוצי. אזור זה משמש גם כאתר מרכזי למודולציה של קינאזות המעורבות באיתות כאב66,67. בקצה C, הדומיין דמוי TRP מתחבר לאזור הטרנסממברנלי ומשחק תפקיד מרכזי במעבר ערוצים. התנועה של תחום זה, יחד עם סידורי S5 ו-S6, עומדת בבסיס פתיחת התעלה וזרםCa2+, שמפעיל מסלולי איתות במורד הזרם המעורבים בדלקתוכאב. בסך הכל, ה-ARDs, הליקסים הטרנסממברניים (S1-S6) ותחום דמוי TRP הם המאפיינים המבניים המרכזיים שקובעים את הפעלת TRPA1 ואת תפקידו בכאב ובאיתות דלקתי. איור 4 ממחיש את התחומים המבניים המרכזיים של TRPA1 הרלוונטיים להפעלתו על ידי תרופות כימותרפיות, בעוד שטבלה 2 מסכמת את מנגנוני CIPN הקשורים ל-TRPA1 61,62,70,71,72,73,74,75,76,77,78,79 ,80,81,82,83.
- הפעלה של TRPA1 בתיווך לחץ חמצוני ב-CIPN
- לחץ חמצוני הוא גורם מרכזי הן ליעילות האנטי-גידולית והן לנוירוטוקסיות של תרופות כימותרפיות84. TRPA1 פועל כערוץ יונים רגיש לחמצון רדוקסיבי ואלקטרופילים, שמופעל בתנאי לחץ חמצוני מוגבר במהלך כימותרפיה. פוספוליפידים מחומצנים (OxPAPCs) ואלקטרופילים נוספים שמקורם ב-ROS משנים את שאריות הציסטאין בדומיין ה-N-טרמינלי של TRPA1 באופן קוולנטי, ובכך מפעילים את התעלה ומעודדים זרם סידן. הפעלה זו מובילה לשחרור נוירופפטידים ומתווכים דלקתיים כגון CGRP ו-SP, המתווכים העברת כאב לא תקינה ודלקת נוירוגנית בפתוגנזה של CIPN61,70. בינתיים, דלקת היקפית הנגרמת על ידי תרופות כימותרפיות גורמת להיוצרות יתר ולהצטברות של ROS בגנגליונים החושיים, שמפעילה ומגבירה את TRPA1, ויוצרת לולאת משוב חיובית ROS-TRPA1 שמגבירה רגישות יתר דלקתיתומכנית 85.
CIPN המושרה על ידי CDDP גם הוא מסתמך על מנגנון זה, שכן CDDP מקדם ייצור ROS ברקמות הפה, מה שמפעיל את TRPA1 ומוביל לכאב אורופציאלי מתמשך86. באופן דומה, OXA מווסת את פעילות TRPA1 באמצעות מנגנונים מרובים. מצד אחד, OXA מפעיל ישירות את TRPA1 באמצעות מנגנון רגיש לגלוטתיון, מה שמוביל לחמצה ציטופלסמית בנוירוני DRG71,87. מצד שני, OXA מעכב פרוליל הידרוקסילאז (PHD), ובכך מונע הידרוקסילציה של שאריות הפרולין באזור הקצה ה-N של TRPA1, מה שמגביר את רגישות התעלה ל-ROS ומעלה משמעותית את תגובתו לגירויים קרים71. בנוסף, OXA מפעיל את מסלול האיתות p38 MAPK, ומקדם עוד יותר רגישות יתר לקור המתווכת על ידי TRPA188.
מחקרים בבעלי חיים סיפקו ראיות חזקות התומכות במנגנונים אלה. בעכברים מסוג בר שטופלו ב-OXA, נצפו אלודיניה מכנית בולטת ורגישות יתר לקור, בעוד שתגובות אלו היו מוחלשות משמעותית בעכברי TRPA189. ממצאים עקביים התקבלו גם במודל זחל של דג זברה של CIPN, שבו הפעלת TRPA1 הגבירה את ייצור ROS על ידי קידום לחץ חמצוני והעברת אותות כאב, ובכך שמרה על תגובת הכאב90. ביחד, ממצאים אלו מצביעים על כך ש-TRPA1 פועל כנקודת צומת קריטית המחברת בין חישה של ROS להגברת כאב, ויוצר מסלול מרכזי דרכו לחץ חמצוני מתווך כאב נוירופתי ב-CIPN.
- לחץ חמצוני הוא גורם מרכזי הן ליעילות האנטי-גידולית והן לנוירוטוקסיות של תרופות כימותרפיות84. TRPA1 פועל כערוץ יונים רגיש לחמצון רדוקסיבי ואלקטרופילים, שמופעל בתנאי לחץ חמצוני מוגבר במהלך כימותרפיה. פוספוליפידים מחומצנים (OxPAPCs) ואלקטרופילים נוספים שמקורם ב-ROS משנים את שאריות הציסטאין בדומיין ה-N-טרמינלי של TRPA1 באופן קוולנטי, ובכך מפעילים את התעלה ומעודדים זרם סידן. הפעלה זו מובילה לשחרור נוירופפטידים ומתווכים דלקתיים כגון CGRP ו-SP, המתווכים העברת כאב לא תקינה ודלקת נוירוגנית בפתוגנזה של CIPN61,70. בינתיים, דלקת היקפית הנגרמת על ידי תרופות כימותרפיות גורמת להיוצרות יתר ולהצטברות של ROS בגנגליונים החושיים, שמפעילה ומגבירה את TRPA1, ויוצרת לולאת משוב חיובית ROS-TRPA1 שמגבירה רגישות יתר דלקתיתומכנית 85.
- תפקיד TRPA1 בוויסות מערכת החיסון ובכאב דלקתי
TRPA1 הוא ערוץ קטיון רגיש לחמצון רדוקס, לא סלקטיבי, המתבטא הן במערכת החישה ההיקפית והן בסוגי תאי חיסון שונים. הוא יכול להיות מופעל על ידי לחצים חמצניים, ניטרטיביים ואלדהידיים המושרים על ידי תרופות כימותרפיות, וכן על ידי מתווכים דלקתיים וגירויים אלקטרוכימיים, ובכך ממלא תפקיד קריטי בתגובות דלקתיות ורגישות לכאב במהלך CIPN24,91,92.- TRPA1 מווסת דלקת עצבית המתווכת על ידי תאי מערכת החיסון
במערכת העצבים ההיקפית, TRPA1 מאופיין בצורה הטובה ביותר בנוירונים סנסוריים של DRG, שם הוא משמש כמתווך מרכזי של נוציספציה. במהלך הכימותרפיה, רמות גבוהות של ROS, מיני חנקן תגובתיים (RNS) ומטבוליטים של אלדהיד, שמקורם בעיקר בנוירונים פגועים ותאי שוואן הסובבים, יכולים להפעיל ישירות את TRPA1 הנוירוני, מה שמוביל להגברת ההתעוררות הנוירונית ולרגישות יתר לכאב93. בינתיים, בנוירונים חושיים, הוכח כי איתות TLR4 מעלה את ביטוי TRPA1 בנוירוני DRG, ובכך מגביר רגישות הכאב94.
מעבר לנוירונים, תאי שוואן מבטאים גם TRPA1, שיכול להיות מופעל על ידי לחץ חמצוני. תאי שוואן מופעלים מגבירים אותות ROS ומשחררים מתווכים דלקתיים, ויוצרים לולאת משוב "תאי שוואן-נוירון-TRPA1" שמקיימת דלקת עצבית ותורמת להתפתחות CIPN72,73. מחקרים בבעלי חיים הראו כי דלדול של מקרופאגים תושבי עצב סיאטי מפחית משמעותית את הכאב הקשור לסרטן הנגרם מהפעלת TRPA1 של תא שוואן ולחץ חמצוני, ומדגיש את האינטראקציה בין תאי שוואן לתאי המיאלואידים73.
בנוסף לנוירונים חושיים, TRPA1 מתבטא פונקציונלית במספר אוכלוסיות תאי חיסון, כולל מקרופאגים, תאי T, תאי NK ו-MCs 24,74,95. ROS, RNS ומטבוליטים שנוצרים במהלך כימותרפיה יכולים להפעיל TRPA1 בתאים אלו, מה שמוביל לתגובות חיסוניות מגוונות בהתאם לסוג התא91. במקרופאגים, TRPA1 מדכא הפעלה פרודלקתית, מקדם פנוטיפ אנטי-דלקתי, ומגביל את חדירת המאקרופאג'ים, ובכך מפעיל אפקטים אנטי-דלקתיים ומגני רקמות14,96. בלימפוציטים, הפעלת TRPA1 מדכאת את תפקודי ההפעלה והאפקטור של תאי T, ומפחתת לרעה על תגובות החיסון המתווכות על ידי תאי T97, בעוד שזרםCa2+ בתיווך TRPA1 עשוי לשפר את הציטוטוקסיות של תאי NK, ולווסת תגובות נוירודלקתיות לאחר פגיעת עצב52,74. בתאי מאסט, הפעלת TRPA1 נקשרה לדגרנולציה הנגרמת מלחץ ולאיתות פרו-דלקתי, מה שתורם להגברת דלקת אלרגית ונוירוגנית24,75.
יחד, תצפיות אלו מצביעות על כך ש-TRPA1 משמש כמרכז איתות המקשר בין נוירונים, תאי שוואן ותאי חיסון, כאשר הפעלת TRPA1 מוגברת בכל סוג תא תורמת להתחלה ולתחזוקה של CIPN. איור 5 מציג את המנגנונים המוצעים של דיבור נוירואימוני מתווך TRPA1 ואיתות כאב ב-CIPN. - TRPA1 בכאב דלקתי ובנוציספציה הקשורה ל-CIPN
במערכת העצבים החושית, TRPA1 ממוקם בעיקר בנוירונים חושיים ראשוניים של DRG, גנגליונים טריגמינליים (TG) וגנגליונים ווגאליים (VG). תוצרי לחץ חמצוני, מתווכים דלקתיים ואיתות קינאז חלבוני (PKA/PKC) המושרים על ידי תרופות כימותרפיות משפרים את הפוספורילציה של TRPA1 ואת פעילות התעלה26. הפעלת התעלה מגבירה את זרם ה-Ca2+ התוך-תאי, וגורמת לשחרור נוירופפטידים כגון SP, נוירוקינין A (NK-A) ו-CGRP, המעודדים הרחבת כלי דם, אקסטרווזציה של פלזמה וגיוס תאי חיסון, ובכך גורמים לדלקת נוירוגנית ורגישות לכאב62.
בתנאים דלקתיים, רמות גבוהות של ציטוקינים פרו-דלקתיים (משפחת IL-1, TNF-α, IL-6, IL-8) וכמוקינים (CXCL5/CXCR2) מגבירות עוד יותר את ייצור ROS ואת הפעלת TRPA1, מה שמוביל לדפולריזציה של הממברנה ולהתעוררות יתר של נוירוני DRG, ובסופו של דבר תורמים לכאב נוירופתי. בנוסף, מתווכים דלקתיים כמו NGF מגבירים את ביטוי TRPA1, ויוצרים לולאת משוב חיובית שמקיימת דלקת וכאב 14,98,99,100. TRPA1 משתתף גם ברגישות היקפית ומרכזית, ובכך מגביר את העברת הכאב101.
יתרה מזאת, TRPA1 מקדם איתות נוציספטיבי על ידי ויסות מסלולים הקשורים לדלקת. TRPA1 מעלה את זרימת Ca2+ ומפעיל את מסלול הפנקסין-1 (PANX1), ומגביר את שחרור אדנוזין טריפוספט (ATP). ATP חוץ-תאי, הפועל כנוירוטרנסמיטיר, תורם עוד יותר לרגישות כאב102. תרופות כימותרפיות יכולות גם להרגיש את TRPA1 באמצעות הפעלת קולטני ברדיקינין B2 ואיתות PLC/PKCε במורד הזרם בתאי מאסט, מה שמחמיר כאב הקשור ל-CIPN103. לעומת זאת, תרכובות אופיאטיות כמו לופרמיד הוכחו כמדכאות את פעילות TRPA1 ופעילות תעלת הנתרן עם שער מתח (VGSC), מעכבות הפעלה מיקרוגליאלית ולחץ חמצוני, ובכך מקלות על היפראלגזיה ב-CIPN104,105.
לסיכום, TRPA1 משמש כמטרה מולקולרית מרכזית המקשרת בין לחץ חמצוני לאיתות דלקתי ב-CIPN. על ידי תיאום אינטראקציות דו-כיווניות בין תאי חיסון לנוירונים חושיים, TRPA1 לא רק יוזם ומפיץ דלקת אלא גם מגביר את הכאב, ומשמש כגשר קריטי בין ויסות חיסוני, דלקת עצבית ורגישות יתר לנוציספטיבית. - דיבור משולב בתעלות יונים מתווך TRPA1 ורגישות נוירונית DRG
TRPA1 מתבטא מאוד בנוירונים חושיים פגועים, במיוחד ב-DRG, ומשמש כערוץ יונים מרכזי המתווך ב-CIPN. הוא מווסת את ההתעוררות הנוירונית ומקדם העברת אותות נוציספטיביים דרך אינטראקציות עם ערוצי יונים מרובים. לדוגמה, הפעלה של TRPV1 יכולה לשפר את הרגישות ל-TRPA1, ושני הערוצים לעיתים קרובות מבוטאים יחד, מה שתורם באופן סינרגטי לאלודיניה קרה ולהיפראלגזיה מכנית 76,106. בנוסף, TRPA1 מפגין פונקציות משלימות עם הערוץ הרגיש לקור TRPM8: TRPM8 מתווך תחושות קירור תמימות בטווח של 25-28 מעלות צלזיוס, בעוד ש-TRPA1 מופעל מתחת ל-17 מעלות ואחראי לזיהוי גירויים עזים ומזיקים לקור. הפעלה לא תקינה של שני הערוצים מעורבת ברגישות יתר לקור הנפוצה אצל חולי CIPN77. עומס חמצוני המושרה על ידי כימותרפיה ופעילות מוגברת של ערוצי Ca2+ יכולים להפעיל עוד יותר את ערוצי TRPA1, מה שמוביל לירי פוטנציאל פעולה תכוף בהתאם לתעלות Na+ עם שער מתח (Nav1.7)78,79. יתרה מזאת, Zn2+ יכול להפעיל ישירות את TRPA1 כדי לקדם את שחרור CGRP80, בעוד שערוצי K+ עם שערי מתח (Kv7) מפעילים השפעה רגולטורית שלילית על תהליךזה 81. ביחד, האינטראקציה השיתופית בין TRPA1 לתעלות יונים אחרות, כולל TRPV1, TRPM8, Ca+, Na+, K+ ו-Zn2+, מגבירה את ההתעוררות הנוירונית והעברה נוציספטיבית ב-CIPN.
יתרה מזאת, הומאוסטזיס pH תוך-תאי יכול לווסת את פעילות TRPA1. מחליף Na+/H+ 1 (NHE1) משפיע על רגישות ל-TRPA1 על ידי ויסות ה-pH התוך-תאי. במצבי פציעה דלקתיים או כימותרפיים, TRPA1 ו-NHE1 מתקשרים בנוירוני DRG 87,107, וחמיצה תוך-תאית משפרת את תגובתיות TRPA1, מה שמוביל לתדירות פוטנציאלית פעולה מוגברת ושחרור מוגבר של נוירטרנסמיטרים כמו גלוטמט ו-CGRP 82,83. תהליך זה תורם לכאב דלקתי ולרגישות יתר לקור וממשיך לחזק דלקת עצבית. לעומת זאת, עיכוב ביטוי או תפקוד TRPA1 בנוירוני DRG מחליש משמעותית את ההעברה הנוציספטיבית והתגובות הנוירו-דלקתיות108.
לסיכום, TRPA1 משמש כמרכז מולקולרי מרכזי המקשר בין מתח חמצוני לאיתות ערוצי יונים ב-CIPN. באמצעות אינטראקציה נרחבת עם תעלות יונים מרובות ומנגנוני ויסות תוך-תאיים, TRPA1 מקדם התעוררות יתר של נוירונים חושיים ורגישות יתר-כאב, ומהווה מטרה מולקולרית קריטית לטיפול בכאב הקשור ל-CIPN. איור 6 מתאר את המנגנון שבו TRPA1 מווסת את ההתעוררות הנוירונית ומגביר את האיתות הנוציספטיבי באמצעות אינטראקציות עם תעלות יונים שונות.
- TRPA1 מווסת דלקת עצבית המתווכת על ידי תאי מערכת החיסון
3. פוטנציאל למיקוד ב-TRPA1 לטיפול ב-CIPN
בסעיף הקודם הסברנו כיצד TRPA1 הוא מטרה מרכזית להקלה על CIPN על ידי הפעלת תגובה נוירואינפלמטית של מפל אינפומטורי. מנגנון הפעולה של TRPA1 הוא כפול: מצד אחד, TRPA1 מווסת ישירות על ידי מפל הדלקת העצבי ומשתתף בתהליך הפתולוגי של CIPN; מצד שני, TRPA1 מתקשר עם אותות דלקתיים, אשר בתורם מתווכים תגובות נוירוטוקסיות ומחמירים את הנזק הנוירוני. לכן, עיכוב ממוקד של TRPA1 יכול להפחית לחץ חמצוני ותגובות נוירודלקתיות, להחליש את איתות הכאב, ולבסוף לשפר את התסמינים הקשורים ל-CIPN. איור 7 מציג את המנגנונים המוצעים שבאמצעותם עיכוב TRPA1, בין אם על ידי אנטגוניסטים ספציפיים או חומרים צמחיים טבעיים, מפחית כאב נוירופתי הקשור ל-CIPN.
- האנטגוניסט של TRPA1
TRPA1 יכול להיות מופעל על ידי חומרים חיצוניים (כגון שמן חרדל וקינמלדהיד) וחומרים אנדוגניים (למשל, מוצרי לחץ חמצוני ומתווכים דלקתיים)62 כדי לגרום לכאב, גירוד ודלקת109. מסיבה זו, TRPA1 מוכר כמטרה טיפולית עם פוטנציאל יישום רחב, כולל ניהול כאב, מחלות דלקתיות והפרעות נוירולוגיות. לכן, מחקר ופיתוח אנטגוניסטים של TRPA1 הם קריטיים.
מספר אנטגוניסטים של TRPA1 הוכיחו ערך טיפולי פוטנציאלי בהקלה על CIPN 109,110,111,112,113,114,115,116,117. המנגנונים העיקריים שלהם כוללים דיכוי תגובות לחץ חמצוני המתווכות על ידי TRPA1, זרם סידן ואיתות נוירואינפלמטורי, ובכך מפעילים השפעות אנטגוניסטיות על פעילות TRPA1. במחקרים פרה-קליניים, החוסם הסלקטיבי TRPA1 HC-030031 הפחית משמעותית את הרגישות המכאנית והקור הנגרמת על ידי OXA ו-CDDP28. בינתיים, אנטגוניסטים מהדור הבא כמו GRC-17536 ו-LY-3526318 התקדמו לניסויים קליניים שלב II לנוירופתיה סוכרתית, שיעול כרוני וכאב נוירופתי הקשור לאוסטיאוארתריטיס, והראו סבילות טובה ויעילות ראשונית109,113.
טבלה 3 מספקת סיכום של מצב ההתפתחות הנוכחי והיישומים הקליניים של אנטגוניסטים מייצגים של TRPA1. מחקרים אלו מספקים ראיות קליניות התומכות בפוטנציאל התרגומי של אנטגוניסטים של TRPA1 בטיפול בכאב נוירופתי. עם זאת, רוב האנטגוניסטים של TRPA1 עדיין מוגבלים בשל זמינות ביולוגית נמוכה ופוטנציאל להשפעות מחוץ למטרה 115,118,119, ועדיין לא נכנסו להערכה קלינית ספציפית ל-CIPN. מחקר עתידי צריך להתמקד באופטימיזציה של סלקטיביות תרכובות ותכונות פרמקוקינטיות, וכן בעיצוב ניסויים קליניים המיועדים במיוחד ל-CIPN, כדי לאמת את הרלוונטיות הטיפולית של עיכוב TRPA1 בהקשר זה.
בנוסף לאנטגוניזם ישיר, מודולציה של פעילות TRPA1 דרך מטרות מולקולריות אחרות הראתה גם היא פוטנציאל ב-CIPN. קולטני סיגמא-1 מפעילים תפקידים רגולטוריים על מגוון תעלות יונים, והוכח כי אנטגוניסטים של קולטני סיגמא-1 מעכבים משמעותית את ביטוי ותפקוד ממברנת הפלזמה של תעלות TRPA1, ובכך מונעים את התקדמות תסמיני הכאב בעכברי מודל CIPN89 שנגרמו על ידי OXA. מחקר של טרביזן ואחרים הראה כי ניתן למנוע ולהקל על תסמיני רגישות יתר ל-CIPN הנגרמת על ידי בורטזומיב באמצעות שימוש מקביל באנטגוניסט TRPA1 HC-030031 או בחומצה נוגדת החמצון α-ליפואית לפני או בזמן הכימותרפיה120. יתרה מזאת, בהקשר של נוירוטוקסיות הנגרמת על ידי תרופות כימותרפיות, מעכבי TRPA1 מסוגלים להפחית נזק נוירולוגי על ידי הפחתת איתות פרודלקתי התלויים בסידן.
לסיכום, אנטגוניסטים של TRPA1 ממלאים תפקידים חשובים במניעה ובטיפול ב-CIPN על ידי ויסות תפקוד ועיכוב פעילות הערוץ הזה, בין מנגנונים נוספים, להפחתת רגישות יתר לכאב ולהקל על נזק עצבי. - מודולטורים של פעילות TRPA1 כאפשרויות חדשות לטיפול ב-CIPN
TRPA1 מעורב בתהליכים הפתולוגיים של CIPN דרך תגובת מפל נוירודלקתי ופגיעה נוירוטוקסית, וייתכן שהוא מטרה חדשה לטיפול ב-CIPN.
מספר מחקרים הראו כי צמחי מרפא טבעיים מסוימים ורכיביהם הפעילים קשורים קשר הדוק לוויסות פעילות ערוץ TRPA1 ומפגינים השפעות ביולוגיות כגון פעולות אנטי-דלקתיות ומשככות כאבים, ובכך מספקים אסטרטגיות פוטנציאליות למניעה וטיפול ב-CIPN. לדוגמה, הוכח שליקוויריטין בעל תכונות אנטי-דלקתיות משמעותיות121, בעוד שאליצין מציג פוטנציאל למשכי כאבים בשל תכונותיו נוגדי החמצון והאנטי-דלקתיים122; שתי התרכובות מעורבות במודולציה של פעילות ערוץ TRPA1. בהתבסס על ממצאים אלו, ישנה השערה כי תרכובות טבעיות אלו עשויות להקל על תפיסת הכאב הקשורים ל-CIPN ולתגובות נוירודלקתיות באמצעות ויסות פעילות TRPA1, ובכך להשפיע על השפעות טיפוליות פוטנציאליות. מחקרים נוספים גילו שמנטול מפגין אפקט רגולציה דו-כיווני על תעלות TRPA1, ומפעיל את TRPA1 בריכוזים נמוכים ומעכב את פעילותו בריכוזים גבוהים יותר. לכן, שימוש נכון במנטול עשוי לווסת את פעילות TRPA1 כדי להשיג השפעות משככי כאבים ונוגדי דלקת אצל חולי CIPN123. באופן דומה, קינמון, ששימש מסורתית כטיפול חימום לקידום זרימת הדם, מכיל קינמלדהיד כמרכיב הפעיל העיקרי שלו. לי ואח' דיווחו כי קינמלדהיד מפעיל קולטני TRPA1, מקדם תרמוגנזה ברקמת השומן החומה ובכך מסייע לשמור על טמפרטורת הגוף ולהפחית רגישות לקור124. יתרה מזאת, קינמלדהיד משפר את תגובת נוגדי החמצון על ידי הפעלת גורם גרעיני קשור לאריתרואיד 2 (Nrf2)125. ביחד, מנטול, על ידי עיכוב TRPA1 בריכוזים גבוהים יותר, עשוי להקל על אלודיניה מכנית וקורה האופיינית ל-CIPN, בעוד שצינמלדהיד, באמצעות מנגנוני נוגדי חמצון מפעילי TRPA1 ומתווך Nrf2, עשוי לנטרל לחץ חמצוני הנגרמת על ידי כימותרפיה ולשפר את אי הסבילות לקור בקרב מטופלי CIPN. בנוסף, ברגנין מונוהידראט, ליגוסטרזין, סייקוספונין ותמציות מים של Notopterygium incisum הוכחו כמפחיתות כאב נוירופתי126,127,128,129.
טבלה 4 מסכם את מקורות הצמחים הטבעיים של ליגנדים TRPA1 ואת המנגנונים האפשריים שלהם להקלה על CIPN. ממצאים אלו מדגישים את הפוטנציאל של רכיבי הרפואה הסינית הסינית בהפחתת נוירוטוקסיות ב-CIPN. למרות שזוהו מגוון תרכובות טבעיות כמודולטורים של TRPA1 עם השפעות טיפוליות פוטנציאליות, רובם נשארים ב in vitro ושלבי מחקר בעלי חיים, והראיות ליעילותם ב-CIPN נגזרות בעיקר ממודלים פרה-קליניים. לעומת זאת, רק למנטול יש ראיות מוגבלות להוכחת היתכנות אנושית וניסויים קליניים רשומים מתמשכים130. ממצאים אלה מצביעים יחד על כך שבעוד שמוצרים טבעיים המיועדים ל-TRPA1 מראים פוטנציאל רב להקלה על נוירוטוקסיות הקשורה ל-CIPN, נדרשים מחקרים קליניים מתוכננים היטב נוספים כדי לאמת את הפוטנציאל התרגומי שלהם ואת היעילות הטיפולית שלהם.
מודולטורים טבעיים של TRPA1 שזוהו מתמציות צמחים לא רק מספקים פרספקטיבות טיפוליות חדשות לניהול כאב, אלא גם מהווים מקורות טבעיים פוטנציאליים לטיפול ב-CIPN. עדויות הולכות וגובות מצביעות על כך שתרכובות טבעיות יכולות להקל על תסמינים נוירוטוקסיים הנגרמים מכימותרפיה על ידי דיכוי פעילות יתר של TRPA1 או הפעלת השפעות רגולטוריות דו-כיווניות על התעלה, ובכך להשיג תוצאות משככי כאבים ונוגדות דלקת כאחד. עם זאת, למרות הפוטנציאל הקדם-קליני המבטיח, האימות הקליני השיטתי נותר בלתי מספק. יתרה מזאת, תרכובות אלו מציגות בדרך כלל תכונות רגולטוריות מרובות מטרות ורב-מסלולים, מה שמקשה להגדיר את התרומה הספציפית של מודולציית TRPA1 להשפעות הטיפוליות הכוללות שלהן. מחקרים עתידיים צריכים להתמקד בהבהרת המנגנונים המולקולריים שבאמצעותם מודולטורים טבעיים של TRPA1 משפיעים על CIPN, לחקור את האינטראקציות הסינרגטיות בין TRPA1 לערוצי יון אחרים או מסלולי איתות, ולביצוע ניסויים קליניים מתוכננים היטב לאישור יעילותם ובטיחותם. מאמצים כאלה יהיו חיוניים לתרגום סוכנים טבעיים המכוונים ל-TRPA1 לאסטרטגיות מעשיות לניהול CIPN.
4. דיון
לפי הסטטיסטיקות האחרונות של הסוכנות הבינלאומית למחקר סרטן (IARC), יהיו כמעט 20 מיליון מקרים חדשים של סרטן בשנת 2022, וכ-50% מאותם חולי סרטן ימותו בסופו של דבר מסרטן או מסיבוכיו. תחזיות IARC מצביעות גם על כך שמספר מקרי הסרטן החדשים בשנה יעלה על 35 מיליון בשנת 2050. לכן, סרטן הוא דאגה מרכזית בבריאות הציבור ברחבי העולם ואחד התורמים המרכזיים לנטל העולמי של מחלה1. למרות שטיפולים חדשים לסרטן (כגון טיפולים ממוקדים ואימונותרפיה) ממשיכים להיות נחקרים ומפותחים, כימותרפיה עדיין ממלאת תפקיד מרכזי בטיפול בסרטן. CIPN הוא תופעת לוואי נפוצה של כימותרפיה ומשפיע על מהלך הטיפול ועל יעילותו. עם זאת, הפתוגנזה של CIPN אינה ברורה אך עשויה להיות קשורה לתפקוד לקוי של מיטוכונדריה, לחץ חמצוני, חריגות במערכת החיסון, חוסר ויסות תעלות יונים ונזק לנוירונים DRG2. נכון להיום, רק דולוקסטין הומלץ על ידי ה-ASCO לניהול כאב בחולי CIPN. למרות היעילות המוכחת שלו כמשככת כאבים, התועלת הקלינית הכוללת של דולוקסטין מתונה, שכן הוא מספק בעיקר הקלה סימפטומטית במקום למנוע CIPN או להפוך שינויים פתולוגיים בסיסיים8. לכן, חקר היעדים הפוטנציאליים של CIPN חשוב לפיתוח תרופות ולטיפול מדויק.
ערוצי TRP, שהם מתווכים מרכזיים באיתות נוציספטיב, זוכים לתשומת לב גוברת בהקשר של פיתוח טיפולי CIPN. מבין ערוצי ה-TRP, TRPA1 הוצע כגורם מרכזי בהשראת רגישות יתר לכאב על ידי מגוון תרופות כימותרפיות131. לכן, מחקר זה מתמקד בתפקיד TRPA1 בפתוגנזה של CIPN ומבהיר עוד יותר את המנגנונים שבאמצעותם הוא מתווך כאב נוירופתי, כפי שמודגם באיור 8. תעלה זו מופעלת על ידי לחץ חמצוני כדי לגרום לכאב מכני חריג ורגישות יתר לקור 61,70,71, והיא מעורבת בנוציספציה דלקתית על ידי ויסות תאי מערכת החיסון כדי לתווך דלקת עצבית 62,72,73,74,75. בנוסף, ערוצי TRPA1 מתקשרים עם TRPV1, TRPM8 וערוצים עם שערי מתח כמו Ca+, Nav1.7, Zn2+ ו-Kv7. אינטראקציות אלו מגבירות תגובות כאב נוירופתיות ודלקתיות 76,77,78,79,80,81. מודולציה סינרגטית כזו נושאת השלכות קליניות משמעותיות. מכיוון ש-TRPA1, TRPV1 ו-TRPM8 מבוטאים יחד בנוירונים חושיים ויכולים לווסת את פעילותו הדדית, מעכבים דו-מטריים או מרובי מטרות מסוגלים לגרום להשפעות משככות כאבים בולטות יותר מאשר אלו המיועדות ל-TRPA1 בלבד. יתרה מזאת, אינטראקציה סינרגטית זו מאפשרת לכל תרכובת להשיג יעילות משכך כאבים דומה במינונים נמוכים יותר, ובכך להפחית תופעות לוואי פוטנציאליות. באופן דומה, ה-DRG, שהוא יעד לנוירוטוקסיות של CIPN, מושפע מ-TRPA1. הפעלת TRPA1 מגבירה את ההתעוררות של נוירוני DRG, מה שמקדם את שחרור הנוירוטרנסמיטרים מה-DRG, מה שמוביל לרגישות מוגברת לתסמיני נוציספטיביים82,83. לסיכום, TRPA1 יכול להחמיר כאב נוירופתי אצל חולי CIPN על ידי השראת תגובת קסקדה נוירודלקתית. לכן, אנטיגוניזציה של TRPA1 יכולה להקל ביעילות על התסמינים הדלקתיים והכואבים של CIPN, מה שגם מרמז כי השימוש באנטגוניסטים של TRPA1 וצמחי מרפא טבעיים הוא קריטי.
היעילות של אנטגוניסטים של TRPA1 הוכחה ביעילות במודלים של בעלי חיים. לדוגמה, בעכברים עם KO עם TRPA1 ולאחר יישום אנטגוניסטים של TRPA1 (למשל, HC-030031), תסמיני הכאב הנוירופתי המושרים על ידי תרופות כימותרפיות נחלשו משמעותית 86,89. עם זאת, עדיין קיימות מגבלות ביישום אנטגוניסטים של TRPA1, שכן ניסויים קליניים למטופלים עם CIPN טרם נערכו, מה שמרמז כי יש להעריך ולאשר עוד את בטיחות ויעילות אנטגוניסטים של TRPA1 בבני אדם. לדוגמה, הבדלים בדפוסי הביטוי של TRPA1 וברגישות לאנטגוניסטים בין מכרסמים לבני אדם עשויים להוביל לפערים בין תוצאות פרה-קליניות לקליניות. בנוסף, המרת מינונים ניסיוניים מבעלי חיים לבני אדם נותרה לא ודאית, מה שמגביר עוד יותר את מורכבות פיתוח התרופות.
בנוסף, המנגנונים המדויקים שבאמצעותם TRPA1 פועל כמטרה טיפולית ב-CIPN טרם הוברו במלואם, ותפקידיו הספציפיים לרקמות דורשים מחקר נוסף. בהינתן הביטוי הרחב של TRPA1 בנוירונים סנסוריים, תאי שוואן ותאי חיסון, הגדרת תפקידיו הספציפיים בהקשרים תאיים שונים נותרה מאתגרת. רוב המחקרים הקיימים מסתמכים על אנטגוניסטים מערכתיים של TRPA1, מה שמקשה לייחס במדויק את ההשפעות שנצפו למחלקות תאיות ספציפיות. יש להדגיש כי TRPA1 המובע בנוירונים סנסוריים מתווך ישירות את איתות הנוציספטיביים, בעוד ש-TRPA1 בתאי שוואן ותאי חיסון מווסת בעיקר תהליכים דלקתיים ומיקרו-סביבתיים שמווסתים באופן משני את רגישות הכאב. לכן, מחיקה ספציפית לרקמה של TRPA1 תספק תובנות מכניות חשובות. אובדן ספציפי לנוירונים של TRPA1 יכול להבהיר את תפקידו הישיר בהתעוררות נוציצפטורים ובהעברת כאב, בעוד שמחיקה ספציפית לתאי שוואן עשויה להבהיר כיצד לחץ חמצוני מונע על ידי TRPA1 ואינטראקציות בין הגליאל-נוירונים מקדמים דלקת עצבית מתמשכת. חשוב לציין, מודלים ספציפיים לתאי החיסון של TRPA1 (למשל, במאקרופאגים או תאי T) יסייעו להגדיר את תרומת איתות TRPA1 החיסוני לשיחת צולב נוירואימונית ולוויסות דלקתי ב-CIPN. גישות כאלה יעמיקו משמעותית את הבנתנו את תפקודי TRPA1 הספציפיים לרקמה ולתאים ויסייעו בפיתוח אסטרטגיות טיפוליות מדויקות יותר. בינתיים, היבטים רבים של האנטגוניזם ל-TRPA1 בטיפול ב-CIPN עדיין צריכים להיבחן לעומק. לדוגמה, האם TRPA1 מציג תפקידים פונקציונליים שונים ב-CIPN המושרה על ידי סוכנים כימותרפיים שונים, וכיצד ניתן לווסת את פעילותו בדיוק רב יותר להשגת יעילות טיפולית מיטבית, נותרו שאלות חשובות שטרם נפתרו.
בהקשר זה, השימוש המשולב באנטגוניסטים של TRPA1 עם תרכובות צמחיות טבעיות או נוסחאות מסורתיות מהרפואה הסינית מייצג גישה טיפולית מבטיחה. טיפול משולב כזה עשוי לא רק להפחית רעילות הקשורה לתרופות, אלא גם לשפר את היעילות באמצעות השפעות סינרגטיות רב-מטרות. בסך הכל, אנטגוניזציה של TRPA1 יכולה לווסת תגובות חיסוניות ולקטוע את מפלי הדלקת הנוירולוגיים, ובכך להפחית ביעילות את הנוירוטוקסיות והנזק הנוירוני, ומציעה תובנות חדשות ואסטרטגיות פוטנציאליות לניהול קליני של CIPN.
מסקנות
סקירה זו בוחנת באופן מקיף את הקשר המורכב בין TRPA1 ל-CIPN, וכן את ההשפעות האנטי-דלקתיות האפשריות של האנטגוניזם ל-TRPA1 בטיפול בו. מחקרים פרה-קליניים הראו כי עיכוב פרמקולוגי או מחיקה גנטית של TRPA1 יכולים לדכא דלקת עצבית, להפחית את ההתעוררות הנוירונית ולהפחית נוירוטוקסיות, ובכך ליצור השפעות נוגדות דלקת ומשככי כאבים שעשויים לסייע בהקלה על תסמיני CIPN. עם זאת, עדיין קיימות מגבלות במחקר הנוכחי. מחקרים עתידיים צפויים לחקור לעומק את המנגנונים המולקולריים הספציפיים שמאחורי מעורבות TRPA1 ב-CIPN, לייעל אסטרטגיות מיקוד ולבצע ניסויים קליניים רחבי היקף לאימות בטיחות ויעילות של אנטגוניסטים של TRPA1. זה יספק אפשרויות טיפול מדויקות ויעילות יותר למטופלים עם CIPN.
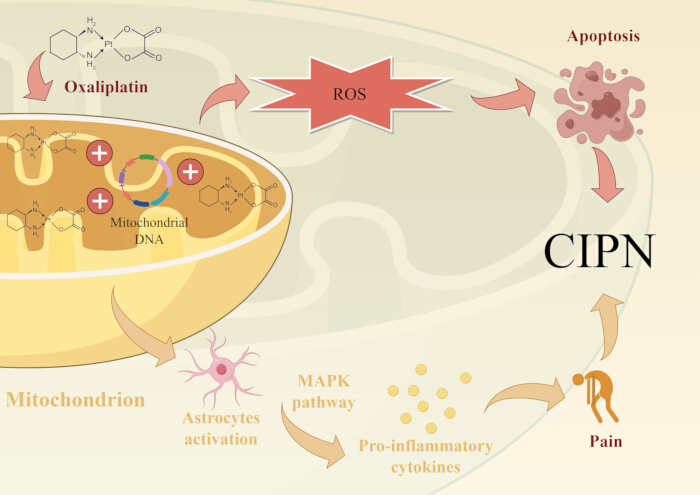
איור 1: תפקוד לקוי של מיטוכונדריה ומנגנוני CIPN הנגרמות מלחץ חמצוני. סוכנים כימותרפיים מבוססי פלטינה יוצרים תוספות פלטינה-DNA שמצטברות ב-DRG, שם הן נקשרות ל-nDNA ול-mtDNA. זה גורם לנזק DNA/מיטוכונדריאלי, מגביר את ייצור ROS ומעורר אפופטוזיס נוירוני. יש גם עדויות לכך ש-OXA גורם לכאב נוירופתי על ידי הפעלת אסטרוציטים והגברת ציטוקינים פרו-דלקתיים במסלול MAPK. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
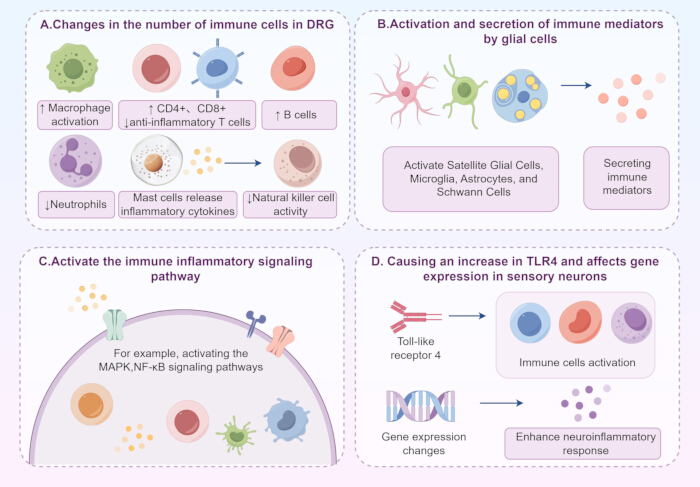
איור 2: מנגנוני השראת CIPN על ידי חריגות במערכת החיסון. (א) תרופות כימותרפיות מובילות להפעלת מקרופאגים, עלייה במספר תאי T לימפוציטים (CD4+), תאי T ציטוטוקסיים (CD8+) ותאי B ב-DRG, וירידה במספר תאי T נוגדי דלקת ונויטרופילים. MCs תורמים להתקדמות CIPN על ידי גיוס תאי חיסון ושחרור מגוון ציטוקינים דלקתיים ב-CIPN, ובכך מפחיתים את פעילות תאי ה-NK, מה שמחמיר דלקת עצבית ולחץ חמצוני. (ב) סוכנים כימותרפיים מווסתים את הפעלת והפרשת המתווכים החיסונית דרך SGCs ב-DRG, מיקרוגליה ואסטרוציטים בחוט השדרה, ותאי שוואן באקסונים, מה שמוביל להגברת ההתעוררות של נוירונים חושיים ולהגברת רגישות הכאב ב-CIPN. (ג) הפעלה של מסלולי איתות חיסוניים-דלקתיים, כגון MAPK ו-NF-κB, ממלאת גם תפקיד חשוב בהחמרת תגובות נוירודלקתיות. (ד) סוכנים כימותרפיים יכולים גם להפעיל תאי חיסון ולהגביר תגובות נוירודלקתיות על ידי הגברת TLR4 והפעלת חוסר ויסות גנטי נלווה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
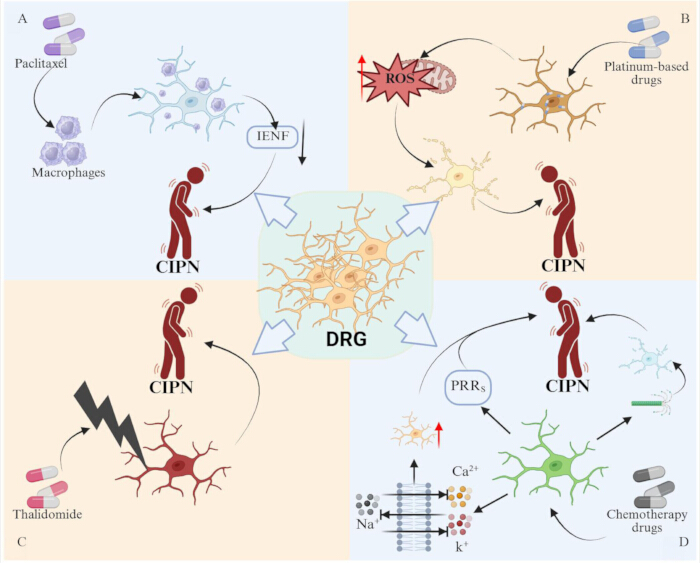
איור 3: DRG הוא מטרה מרכזית עבור תרופות כימותרפיות שמפעילות CIPN. (A) PTX עלול לגרום לחדירת מקרופאגים ל-DRG, מה שמפעיל ירידה במספר ה-IENFים. (ב) תרופות פלטינה מצטברות ב-DRG, מה שמוביל לתפקוד לקוי של מיטוכונדריה ולעלייה ברמות ROS, מה שמקדם אפופטוזיס נוירוני. (ג) תלידומיד יכול להזיק ישירות ל-DRG. (ד) חומרים כימותרפיים עלולים גם לפגוע בנוירוני DRG על ידי שינוי תעלות יוני נתרן, אשלגן וסידן, הפרעה למבנה המיקרוטובולים, והפעלת PRRs. אנא לחצו כאן לצפייה בגרסה מוגדלת של איור זה.
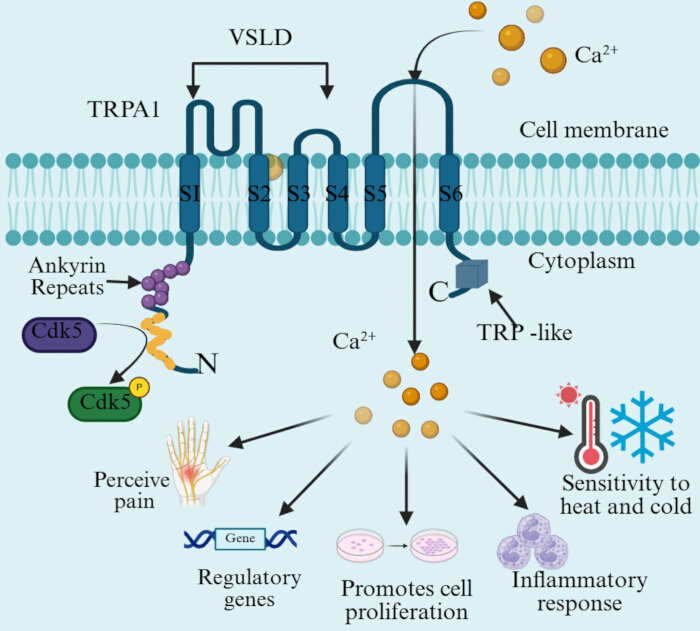
איור 4: התחומים המבניים המרכזיים של TRPA1 הרלוונטיים להפעלתו על ידי סוכנים כימותרפיים. תעלת TRPA1 מכילה שישה שברי ממברנה α-סליליים (S1-S6). ביניהם, S1-S4 מהווים את VSLD, ו-S5 ו-S6 יוצרים מבנה לולאת נקבוביות קעור. שני קצות NH2 ו-COOH של תעלת TRPA1 ממוקמים בציטופלזמה. אחד הקצוות הארוכים יותר של NH2 מכיל את ARDs ואת אתר Cdk5, בעוד שהקצה C של TRPA1 מכיל דומיין דמוי TRP ומקושר לתחום המבנה הטרנסממברני. הפעלת תעלה עלולה לגרום לזרם של Ca2+ , מה שמפעיל סדרה של מסלולי איתות תאים, כגון אלו שמווסתים את ביטוי הגנים, מקדמים התרבות תאים ומעוררים תגובות דלקתיות. מבנה TRPA1 קובע את תפקידו בזיהוי כאב ורגישות לחום/קור. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
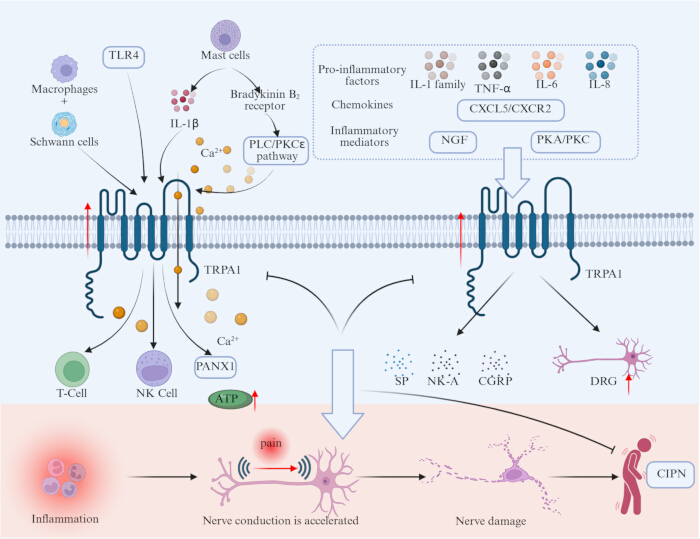
איור 5: TRPA1 מווסת נוציספציה נוירודלקתית בתאי מערכת החיסון. תאי חיסון (מקרופאגים, תאי שוואן ו-MCs), גורמים פרודלקתיים (משפחת IL-1, TNF-α, IL-6, IL-8), כימוקינים (CXCL5/CXCR2), מתווכים דלקתיים (NGF, PKA/PKC) ו-TLR4 יכולים להפעיל ערוצי TRPA1. הפעלת ערוצי TRPA1 יכולה להעלות את ריכוז Ca2+ התוך-תאי, מה שמעודד שחרור SP, NK-A ו-CGRP, משפיע על תאי החיסון (תאי T, תאי NK) ומווסת מסלולים הקשורים לדלקת (מסלול PANX1), ובכך משפר את ההתעוררות של נוירוני DRG ושומר על דלקת עצבית וכאב מתמשך. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
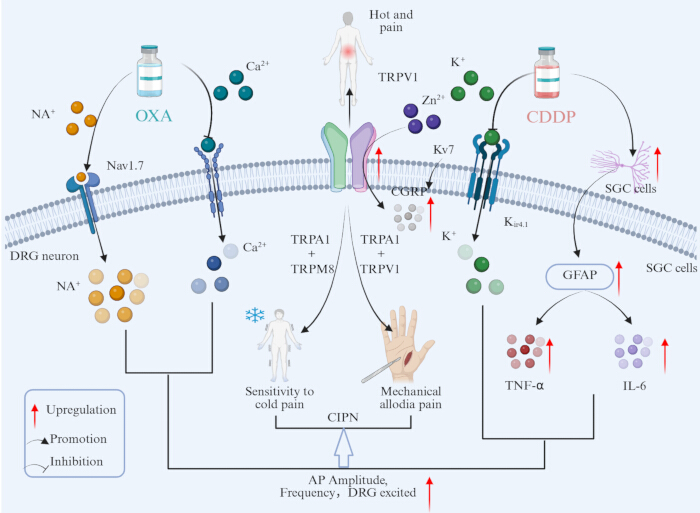
איור 6: TRPA1 מווסת את תעלות היונים כדי להאיץ את איתות הכאב. TRPA1 ו-TRPM8 מעורבים ברגישות יתר לקור, ו-TRPA1 ו-TRPV1 מעורבים באלודיניה מכנית. בנוסף, ערוצי TRPA1 עם תעלות Ca+, Nav1.7, Zn2+, Kv 7 ו-Kir4.1 עם שערי מתח מקדמים שחרור מתווכים דלקתיים (כגון CGRP, GFAP) וגורמים פרו-דלקתיים (כגון TNF-α, IL-6), מה שמפעיל את ההתעוררות הגבוהה של נוירוני DRG, מה שמפעיל אפקט סינרגטי בהחמרת כאב נוירופתי ודלקתי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
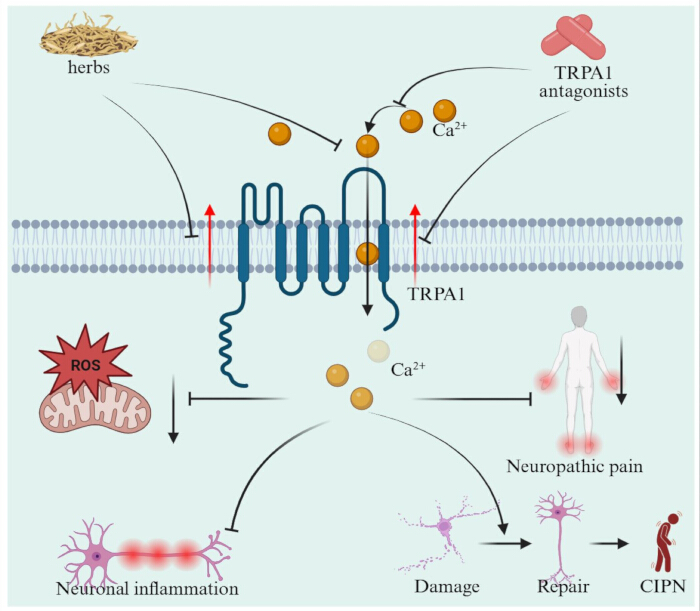
איור 7: פוטנציאל למיקוד TRPA1 לטיפול ב-CIPN. השימוש באנטגוניסטים של TRPA1 ובצמחי מרפא טבעיים יכול לעכב את פעילות ערוץ TRPA1, ובכך להפחית את שטףCa2+ ואת הלחץ החמצוני, אשר בתורו מדכא תגובות נוירודלקתיות ומפחית כאב נוירופתי, ובכך מפחית נזק עצבי ומשפר את התסמינים הקשורים ל-CIPN. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
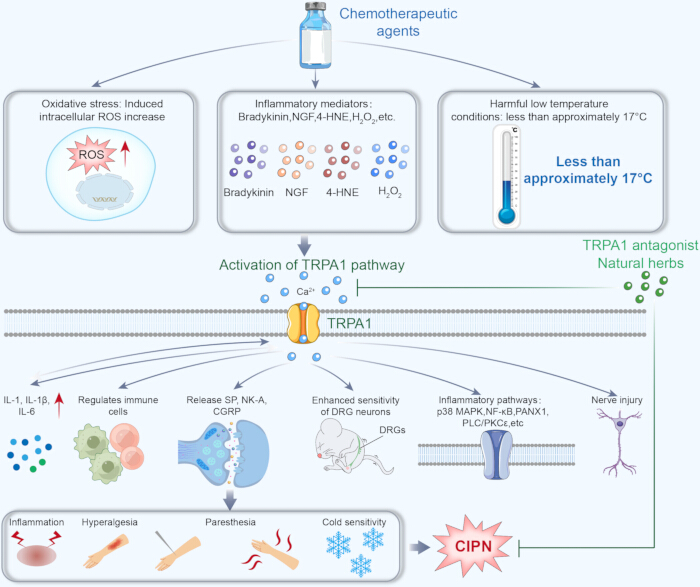
איור 8: עיכוב TRPA1. אסטרטגיה טיפולית ל-CIPN. הפעלת TRPA1 גורמת לדלקת ורגישות יתר ב-CIPN; עיכובו על ידי אנטגוניסטים או צמחי מרפא עשוי להפחית דלקת נוירוגנית, רגישות נוציספטיבית ותסמיני CIPN. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
טבלה 1: מנגנונים פוטנציאליים שמאחורי CIPN. תרופות כימותרפיות תורמות ל-CIPN דרך מסלולים פתולוגיים מרובים, כולל תפקוד לקוי של המיטוכונדריה ולחץ חמצוני, חריגות במערכת החיסון, חוסר ויסות בתעלות היונים, פגיעה בנוירונים ב-DRG והפרעה לשלד הציטו-תאי העצבי. מנגנונים אלו מובילים יחד לדלקת עצבית, נוירוטוקסיות וכאב נוירופתי. אנא לחצו כאן להורדת הטבלה הזו.
טבלה 2: מנגנוני CIPN הקשורים ל-TRPA1. TRPA1 תורם ל-CIPN באמצעות תהליכים פתולוגיים מרובים, כולל הפעלה הנגרמת על ידי לחץ חמצוני, ויסות ודלקת חיסונית, אינטראקציות עם תעלות יונים, ופגיעה נוירונית DRG. מנגנונים אלו משפרים יחד את ההתעוררות הנוירונית ומקדמים כאב נוירופתי ורגישות יתר. אנא לחצו כאן להורדת הטבלה הזו.
טבלה 3: מצב ההתפתחות הנוכחי והאינדיקציות הקליניות של אנטגוניסטים מייצגים של TRPA1. טבלה זו מסכמת את האנטגוניסטים המרכזיים ל-TRPA1 שנחקרו במחקרים פרה-קליניים וקליניים, כולל מנגנוני הפעולה שלהם, ההתוויות הטיפוליות ושלבי התפתחות התרופה. חומרים אלו מעכבים את פעילות ערוץ TRPA1, ובכך מפחיתים לחץ חמצוני, דלקת וכאב נוירופתי הקשורים ל-CIPN ולמצבים פתולוגיים נוספים. אנא לחצו כאן להורדת הטבלה הזו.
טבלה 4: מקורות צמחיים טבעיים של ליגנדים TRPA1 והמנגנונים הפוטנציאליים שלהם להקלה על CIPN. טבלה זו מסכמת תרכובות טבעיות מייצגות ותמציות צמחיות המווסתות את פעילות TRPA1, כולל מקורותיהן, סוגי הכימיקלים, תנאי הניסוי והמטרות המולקולריות שלהן. סוכנים טבעיים אלה מפעילים אפקטים נוירופרוטקטיביים ואנטי-דלקתיים על ידי ויסות TRPA1 ומסלולי איתות קשורים, ובכך מקלים על לחץ חמצוני, דלקת עצבית והיפר-אקסיביות נוירונית הקשורה ל-CIPN. אנא לחצו כאן להורדת הטבלה הזו.
גילויים
אין ניגודי עניינים פיננסיים שיש לחשוף.
תודות
המחברים רוצים להביע את תודתם לכל חברי קבוצתו של מינגג'ו לי על תמיכתם וסיועם. כתב יד זה נתמך על ידי הקרן הלאומית למדעי הטבע של סין (82104838), תוכנית הניצוץ של קרן קידום סין (XH-D001), ותכנית המחקר והפיתוח המרכזית של מחוז ליאונינג (2024JH2/102500062), שזוכה להכרת תודה. איור 1 ואיור 2 צוירו באמצעות FigDraw.
מקורות
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).