אנו מציגים מודל נדידה תלת-ממדי של גליובלסטומה המשתמש בגליאומספירות מגנטיות שמקורן במטופלים שנוצרו מגידולים שאובחנו לאחרונה וחזרים. פלטפורמה זו מאפשרת המחשה של דינמיקת ההגירה הספציפית של מטופלים והערכת יעילות טיפולית. הבדיקה יכולה להיות מולטיפלקסית לאחר ההגירה כדי להעריך את מיקום החלבונים ודפוסי ביטוי.
מאמר שיטה
בדיקת נדידת גליובלסטומה תלת-ממדית שכפולה עם מיקום ספרואידי מתווך ננו-חלקיקים מגנטיים בתנאים היפוקסיים
במאמר זה
סיכום
תקציר
אנו מתארים מבחן הגירה תלת-ממדי שניתן לשחזור כדי למודל את הפוטנציאל הנדידה והפולשני של גליאומספירות גליובלסטומה שמקורן במטופלים מגידולים שאובחנו לאחרונה וחזרו תחת מצבים היפוקסיים קליניים רלוונטיים. גליומספירות בגודל אחיד מועברות לשכבה דקה של מטריצה חוץ-תאית ומעובדות יחד עם ננו-חלקיקי תחמוצת הברזל המגנטיים, המאפשרים ריכוז מיקומן בתוך בארות התרבית באמצעות מיקום על מחזיק לוחות מגנטיים. הכללת ננו-חלקיקי תחמוצת הברזל המגנטיים בזריעה מאפשרת הדמיה מדויקת ומקומית של גליומספירות שמקורן במטופלים בודדים באמצעות כוח מגנטי עדין וממעלה את צינורות עיבוד התמונה האוטומטיים על ידי הפחתת שונות במיקום. בדיקה זו תומכת בלימוד מפורט של התנהגות נדידה של גליובלסטומה בסביבה מיקרו-רלוונטית פיזיולוגית ומאפשרת השוואה ישירה של פוטנציאל פולשני והתנהגות נדידה בין גליומספירות שאובחנו לאחרונה לאלו שמקורן בחולים החוזרים. השיטה תואמת להדמיה של תאים חיים ולניתוח מולטיפלקס, ומציעה פלטפורמה ניתנת להרחבה לחקר קדם-קליני של נדידת גליובלסטומה, פוטנציאל פולשני ותגובה טיפולית.
מבוא
גליובלסטומה נותרת אחד האתגרים המשמעותיים ביותר באונקולוגיה הנוירולוגית. מחלה זו מונעת על ידי הטרוגניות נרחבת בין חולים ובתוך המטופלים, הימנעות חזקה מתגובה לרמת הטיפול, עמידות לאינדוקציה אפופטוטית, ופלסטיות מרשימה בתגובה לתנאי סביבה1. לאחרונה, המורכבות של מיקרו-סביבת הגידול (TME) זכתה לתשומת לב רבה, במיוחד לאופי הדינמי של תאי גזע דמויי גליומה (GSCs), שיכולים להחליף פנוטיפ ומצב תא בתגובה לשינויים מיקרוסביבתיים 2,3. פלסטיות פנוטיפית זו מקדמת התקדמות הגידול ותורמת להישנות בלתי נמנעת למרות טיפול תקני בקו החזית. כריתה כירורגית נותרה ההתערבות היעילה ביותר לשיפור הפרוגנוזה של המטופל, אך בשל האופי הפולשני והפולשני המיקרוסקופי של גליובלסטומה, הסרה מלאה של הגידולאינה אפשרית. מידול הדינמיקה הפולשנית של דגימות מטופלים בשלבים שונים של מחלה ובמצבים ספציפיים לגידול יאפשר הבנה מעמיקה יותר של היכולת הדינמית והפלסטית של נדידת גליובלסטומה, ובכך יסייע בזיהוי גישות טיפול חדשות ויעילות5. לכן, פיתוח מודלים פיזיולוגיים רלוונטיים ללכידת דינמיקות פלישה והגירה ספציפיות של מטופלים הוא חיוני לשיפור המחקר הפרה-קליני ולקידום מטרות אלו. יתרה מזאת, מודלים כאלה קריטיים להערכת היעילות של טיפולים אנטי-גידולים חדשניים, שניתן לפתח תיאורטית לשימוש בשילוב עם ניתוח למניעת פלישה מיקרוסקופית שארית ולבסוף להפחתת הסיכון להישנות. המורכבות של גליובלסטומה מצדיקה את הצורך במודלים פרה-קליניים מתקדמים ומורכבים שיכולים לשחזר תכונות ארכיטקטוניות מרכזיות של הגידול. מודלים תלת-ממדיים שמקורם במטופלים זכו לתשומת לב מוגברת בזכות יכולתם לשמר אינטראקציות בין תאים, לשמור על גרדיאנטים של חומרים מזינים, חמצן וסוכנים טיפוליים, ולשכפל את שלמות המבנה של גידולים מקומיים 6,7. עם זאת, ויזואליזציה של מודלים תלת-ממדיים אלו מציבה אתגרים טכניים, כולל מיקום ספרואידים, שונות דימותית ויכולת שחזור הבדיקה.
כאן, אנו מתארים מודל נדידת גליובלסטומה תלת-ממדי ספציפי למטופל המתבצע בתנאי היפוקס, ומאפשר חקירת דינמיקות נדידה בין דגימות שמקורן בתתי-סוגים שונים של גידולים ושלבים של מחלה, כולל דגימות גידול תמימות וחוזרות בטיפול. פלטפורמה זו מאפשרת הערכה של תגובות שונות לחומרים טיפוליים ותומכת בניתוח מולטיפלקס לאחר ההגירה באמצעות סגמנטציה של תמונות, מה שמאפשר הערכה כמותית של דינמיקת נדידה, גדילה ספרואידי וביטוי חלבונים. שילוב ננו-חלקיקי תחמוצת הברזל המגנטיים מאפשר ריכוז עקבי של ספרואידים בתוך כל באר על ידי הפעלת כוח מגנטי עדין8. ספרואידים המגודלים בלוחות רב-בארים סטנדרטיים לעיתים קרובות מפגינים נטייה לסטות לעבר קצוות הבאר, התנהגות שמאמינים מושפעת מהיווצרות מניסקי נוזלי ואידוי היקפי, במיוחד בבארות בהיקף הלוח 9,10,11. תופעות אלו מציגות ארטיפקטים של הדמיה ורעש רקע, במיוחד במהלך מיקרוסקופיית אור מועברת, מה שעלול לסבך את דימות הדימוי של טיים-לאפס של דינמיקת פלישה. בניגוד לתרביות חד-שכבתיות דו-ממדיות, שבהן ניתן לבחור אזורים של צפיפות תאים אחידה להדמיה, בדיקות פלישה לכדור יחיד דורשות מיקום מדויק ועקבי של כל הכדור ואזור ההגירה בתוך שדה ההדמיה. זה מוסיף אתגר נוסף, שכן סטייה או מיקום לא סדיר בתוך הבאר עלולים לפגוע באיכות הנתונים וביכולת השכפול. לכן, ריכוז עקבי של ספרואידים בתוך לוחות רב-בארים ממזער אתגרים אלו ומשפיר לא רק את איכות ההדמיה אלא גם את עקביות הניסוי, צינורות עיבוד תמונה וניתוחים לאחר ההגירה. בנוסף, התחלת תרביות ספרואידיות בצפיפויות תא אחידות בלוחות תרבית ספרואידים מיוחדים אלו מקדמת היווצרות ספרואידית ששכפולה, ומפחיתה את השונות במורפולוגיה, קצב הגדילה ושלמות המבנה10,11. במונחים מעשיים, גליומספירות טיפוסיות המשמשות בבדיקות אלו נעות בקוטר של 150–300 מיקרון, ונוצרות באופן שכפול תחת צפיפויות תאים סטנדרטיות. התרביות נשמרות בתנאים היפוקסיים (1%–2% O2).
הפלטפורמה המתוארת כאן תומכת בפורמטים בקצב ייצור בינוני עד גבוה, כגון לוחות 96 בארות, המאפשרים מספר שכפולים לכל דגימת מטופל, וניתנת להרחבה לבדיקות תרופות או בדיקות רב-מצביות12 . לכן, אופטימיזציה של מיקום הספרואיד ותנאי התרבית חיונית לשיפור החוסן והרלוונטיות הקלינית של מודלים תלת-ממדיים פרה-קליניים המשמשים לחקר פוטנציאל פולשני של גליומה ותהליכים תאיים דינמיים נוספים.
פרוטוקול
תאי גליובלסטומה שמקורם במטופלים סופקו על ידי ארסמוס MC, רוטרדם, הולנד, ובית החולים לילדים חולים (טורונטו, קנדה). דגימות המטופלים הראשיות של הקווים הללו התקבלו כחלק מכריתת מטופלים שגרתית בהסכמתם המודעת (מספרי אישור אתיים, MEC-2013-090, 0020010404).
1. הכנת גליומספירות מגנטיות שמקורן בחולה (איור 1)
- לפחות 30 דקות לפני פירוק הגליומספרה, יש להציע מספיק תווך אנזימי ניתוק תאים ומדיום גליאומספירה לניסוי (בדרך כלל 1 מ"ל לכל בקבוק T75 מתכופף) ולהביא את שניהם לטמפרטורת החדר.
- בתנאים סטריליים, לאסוף גליומספירות מבקבוק התרבית באמצעות שאיפה עדינה באמצעות פיפטה סרולוגית בנפח 10 מ"ל ועזר פיפטות והעבירם לצינור קוני של 15 מ"ל. צנטריפוגה ב-300 x g למשך 3 דקות. השליך בזהירות את הסופרנטנט מבלי להפריע לכדור התא.
- החזירו את הכדור למרחק של 1 מ"ל במדיום אנזים של ניתוק תאים בטמפרטורת החדר ודגרו במשך 10–15 דקות, תוך ערבוב עדין כל 2-3 דקות על ידי פיפטינג עם פיפטת P1000 כדי לאפשר את ההתנתקות לתעלה תא יחיד.
- הוסיפו נפח שווה של מדיום גליאוספירה כדי לנטרל את האנזים. צנטריפוגה את תליית התא היחיד ב-300 x g למשך 3 דקות בטמפרטורה של 37 מעלות צלזיוס, ואז החזירו בעדינות את כדור התא ב-3–5 מ"ל של מדיום גליומספירה שלם, בהתאם לגודל כדור התא, תוך ציון הנפח המדויק לספירת התא הבאה.
הערה: זמן הדגירה של מדיום האנזים תלוי במידה רבה בגודל הגליומספירות בתרבית, תמיד יש לבדוק אותן חזותית לפני השימוש ולאמץ בהתאם. - קח אליקו מייצג של 10 מיקרו-ליטר של מתלה תא יחיד וערבב בעדינות עם 10 מיקרו-ליטר של Trypan Blue בצינור מיקרוצנטריפוגה בנפח 1.5 מ"ל. טעין 10 מיקרו ליטר מהתערובת הזו להמוציטומטרימטר או למונה תאים אוטומטי כדי לקבוע תאים ברי קיימא.
- זרע 500 תאי גליובלסטומה בודדים בכל באר לתוך מיקרופלטה ספרואידית בעלת חיבור נמוך במיוחד עם 96 בארות. צפיפות הזריעה האופטימלית עשויה להשתנות בין דגימות מטופלים.
- הוסף 1 מיקרוגרם/מ"ל פרופידיום יודיד (PI) ו-0.05 מיקרוליטר ננו-חלקיקי תחמוצת ברזל לכל באר (לדוגמה, השתמש בננו-חלקיקי מגנטיים של 1.5 מיקרוליטר ל-20 ספרואידים, המתאימים לכ-10,000 תאים בודדים). ודא שננו-חלקיקי תחמוצת הברזל עוברים הומוגניזציה לפני ההוספה על ידי פיפטינג למעלה ולמטה עם P100 שמכוון ל-100 מיקרוליטר.
הערה: נפח ננו-חלקיקי תחמוצת הברזל המשמשים ניתן לאופטימיזציה בהתאם לקו התאים, אך במקרה זה, 1.5 מיקרוליטר ל-10,000 תאים הספיק למיקום מרכזי של הספרואידים. מערך זה מבטיח גודל ספרואיד עקבי בין דגימות המטופלים, ומקל על השוואה ישירה של דינמיקת פלישה וצמיחה במהלך בדיקת הפלישה. - דגירה של לוחות במשך 48 שעות בחממת תרבית תאים לחה בטמפרטורה של 37 מעלות צלזיוס, 5%CO2 ו-21% O 2 כדי לאפשר יצירת גליומספרה.
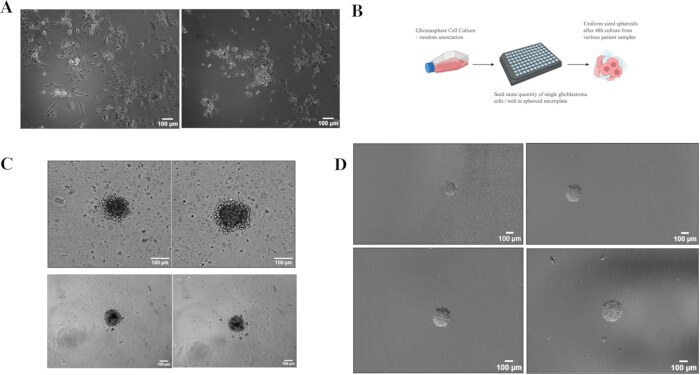
איור 1: גליומספירות בגודל ומיקום אחיד, שהתרכלו יחד עם ננו-חלקיקי תחמוצת ברזל. (א) גליומספירות שמקורן בגידולי מטופלים שאובחנו לאחרונה וחזרים מציגות פנוטיפים כפולים ואסוציאציות אקראיות בין תאים. (ב) ייצוג סכמטי של היווצרות ספרואידים בגודל אחיד בתוך 48 שעות מהזריעה. (C) שידרו תמונות אור של גליומספרים שגודלו במשך 48 שעות במיקרופלוחת ספרואיד עגולה ללא (לוח עליון) ועם (לוח תחתון) ננו-חלקיקי תחמוצת ברזל. שימו לב למראה הכהה והמנוקד של גליאומספירות המכילות ננו-חלקיקי תחמוצת ברזל. (D) מיקום גליאוספירה המראה מיקום אקראי של גליאומספירות שגודלו ללא ננו-חלקיקים (למעלה) לעומת מיקום מרכזי עקבי של אלו שגודלו בננו-חלקיקים (למטה), מה שמוביל להפחתת רעש רקע ולשיפור איכות התמונה. פס סולם = 100 מיקרון. סכימה שנוצרה באמצעות Biorender.com. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
2. הכנת לוחות רב-בארים מצופים במטריצה חוץ-תאית (ECM) (שעה לפני מבחן ההגירה)
- עליקו ואחסנו את ה-ECM לפי הוראות היצרן. הפשיר אליקוט של 1 מ"ל ECM (דילול 1:10) באיטיות על הקרח במהלך הלילה בטמפרטורה של 4°C. מיד לפני הציפוי, יש להכין פתרון עבודה סופי ב-1:100 (v/v) על ידי ביצוע דילול נוסף של 1:10 של המלאי ביחס 1:10 במדיום נוירוספירה קר לחלוטין. שמור את ה-ECM המדולל על קרח כל הזמן כדי למנוע פולימריזציה מוקדמת. תמיד תשמור את הדילול הזה על קרח כי ECM יפולימר במהירות בטמפרטורת החדר.
- יש לחלק 50 מיקרוליטר מפתרון העבודה של 1:100 ECM לכל באר של פלטה עם 96 בארות, שקופה, שטוחת תחתית או μClear-bottom. דגרו את הלוח בטמפרטורה של 37 מעלות צלזיוס למשך לפחות שעה אחת כדי לאפשר ל-ECM להתייצב וליצור מטריצה דקה בכל באר.
- לאחר הדגירה, הסר בזהירות 30 מיקרוליטר מכל באר, ומשאיר 20 מיקרוליטר של ECM פולימריזי (ריכוז סופי 1:100 וולט/וולט) מצפים את תחתית כל באר. יש לשמור על ה-ECM קר ככל האפשר בזמן זה, שכן הוא מתפורר במהירות בטמפרטורת החדר. ניתן גם לקרר מראש ולאחסן את לוח ההדמיה על קרח במהלך תהליך זה.
3. התקנת לוח הדמיה והדמיית תאים חיים
- ביום הבדיקה (48 שעות לאחר זריעת גליומספרה) הנחו את המיקרופלטה המצופה ב-ECM על מנוע לוחות מגנטי עם 96 בארות, כפי שמוצג באיור 2B,C. חטא את הפלטת המגנטית על ידי ריסוס של 70% אתנול וניגוב יבש, לא להשרות.
- בדוק ויזואלית ספרואידים לאיכות ואחידות. באמצעות פיפטה, העבר 80 מיקרוליטר מדיום המכיל את הגליאוספירה היחידה מכל באר ופיפטה בעדינות אל הלוח עם פני ה-ECM.
הערה: עבור ספרואידים גדולים במיוחד, יש להקפיד למזער את עומס הגזירה במהלך ההעברה; ניתן להשיג זאת על ידי חיתוך 1-2 מ"מ מקצה קצה פיפטת P100 באמצעות מספריים להרחבת הפתח ולהפחתת נזק מכני. ודא שהמספריים עברו סטריליזציה תחת קרינת UV לפני השימוש. הכי חשוב, למזער את הוספת בועות האוויר, שכן זה משפיע רבות על ההדמיה. - לטפל בספרואידים לפי העיצוב הניסיוני. הכינו את תמיסות הטיפול בריכוזים הרצויים בנפח של 20 מיקרוליטר, ואז מוסיפים את 20 המיקרוליטר הללו לכל באר המכילה את הספרואידים כדי להגיע לנפח סופי של 100 מיקרוליטר.
הערה: טיפול בגליומספירות בדרך זו מפחית פיפטינג ומפחית את הסיכון להסרת הספרואידים מהבאר. - העבר את הלוח, תוך שהוא נשאר על הכונן המגנטי, למערכת ההדמיה להדמיה חיה. יש להיזהר בעת הסרת הלוח ממחזיק המגנטי ולשמור על ישר ככל האפשר כדי למזער את תנועת הספרואידים ממרכז הבאר.
- לבצע הדמיה חיה באמצעות מיקרוסקופ תאי חי הפוך מתוכנת, המצויד באובייקטיב Plan-Apochromat 5x/0.35 NA, עדשת צינור 0.5x, מצלמת Axiocam 506 (binning =2) ושימוש בתוכנת Zen 3.1 (Blue Edition). כיול פיקסל למיקרון מובנה במערכת ההדמיה ומטופל אוטומטית על ידי התוכנה, ולכן אין צורך בכיול ידני. במקרה זה, יש לבצע הדמיה בהגדלה של 2.5x (5x אובייקטיב עם עדשת צינור 0.5x), כאשר המצלמה מחוברת ל-2x2, מה שמוביל לכיול של 1 פיקסל = 3.645 מיקרון.
- כוון את בקרות הסביבה כך שיהיה 1% חמצן ו-5%CO2 עם קצב זרימת אוויר איטי מאוד ממערבל הגז. זה מסייע למנוע אידוי לא רצוי כאשר האוויר הנכנס עובר דרך בקבוק לחות.
- כדי למנוע הזזת גליאומספירה במהלך תקופת ההדמיה הראשונית, יש להפחית את תאוצת שלב המיקרוסקופ ומהירות המיקרוסקופ ל-10%, תוך מזעור התנועה על פני ה-ECM לפני ההיצמדות הספרואידית.
- טען בעדינות את לוח המולטיבאר ללא מנוע מגנטי למיקרוסקופ. אם רלוונטי, ודאו שחומר הלוח נבחר בתוכנה כדי לוודא שהאופטיקה מותאמת להתאמה.
- השתמש בהגדלה מתאימה שמכסה את כל שדה הראייה הפולשני. לדוגמה, ב-Cell Discoverer 7 נבחרו עדשת האובייקטיב 5x ועדשת הצינור 0.5x להניב הגדלה של 2.5x.
- אתר כל גליומספירה, התמקד והקצה מיקום הכולל את הקואורדינטות x-y-z. אוטופוקוס חומרתי, אם זמין, צריך לשמש להבטחת הדמיה עקבית של אותו מישור מוקד לאורך כל הניסוי.
- בדוק את ערוצי הניגודיות של גרדיאנט פאזה (אור מועבר) וערוצי פלואורסצנציה והתאימו את זמן החשיפה ועוצמת האור כדי לוודא שאין חשיפה יתר. אקסייט פרופידיום יודיד (כתם תאים מתים) באמצעות נורית LED של 590 ננומטר. איסוף פליטה באמצעות מסנן פס מרובע, תוך לכידת רצועת אורך גל של 618–756 ננומטר. זה עשוי להשתנות במיקרוסקופים אחרים, בהתאם למסננים ולמקור האור הקיימים.
- הגדר לצלם תמונות כל שעה למספר הימים הרצוי.
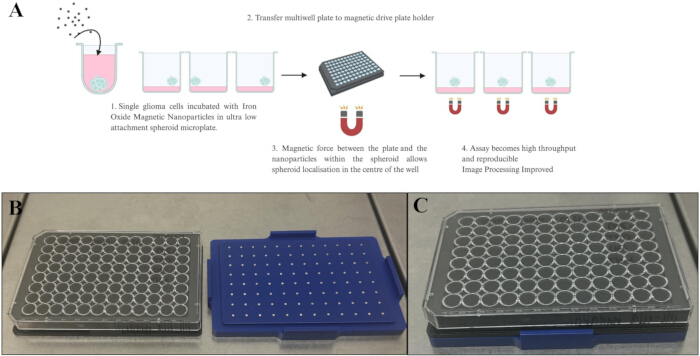
איור 2: תיאור של התקנת לוח ההדמיה. (א) תרשים סכמטי המייצג את הפרוטוקול המתואר. (ב) תמונה של לוח רב-בארות הסמוך להנעת לוחות מגנטיים והתקנה פשוטה של לוח רב-בארות מעל המנוע המגנטי, כאשר כל מגנט בודד ממוקם במרכז כל באר, מה שמקל על מיקום גליומספרה. סכימה שנוצרה באמצעות Biorender.com. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
4. קיבוע הספרואידים לאחר בדיקת פלישה לניתוח חלבונים מרובה (איור 3)
- לאחר סיום בדיקת הפלישה, שטפו כל באר ב-100 מיקרוליטר של PBS. זה יביא את הנפח ל-200 מיקרוליטר/באר. חזור על שלב זה על ידי הסרת 100 מיקרוליטר PBS והחלפה ב-100 מיקרו-ליטר נוספים של PBS.
- הסר בזהירות 200 מיקרוליטר של מדיום, ואז הוסיף 100 מיקרוליטר של 4% פרפורמלדהיד (PFA) לכל באר ודגר במשך 10 דקות בטמפרטורת החדר מתחת למכסה אדים.
זהירות: פאראפורמלדהיד הוא חומר כימי רעיל, ויש לנקוט זהירות כדי למזער סיכון או חשיפה. - לאחר הקיבע, הסר את ה-PFA מכל באר ושוטף 3 פעמים עם PBS על ידי הסרת ה-PFA והוספת 100 מ"ל PBS בכל פעם.
- הוסיפו צביעת חיסון לפי הוראות היצרן. לחלופין, לאחסון ארוך טווח, יש להוסיף נתרן אזיד (0.02%) ל-PBS כדי לשמור על הסטריליות ולאטום את הפלטה עם שכבת שקופה. אחסן ב-4 מעלות צלזיוס עד שנדרש.
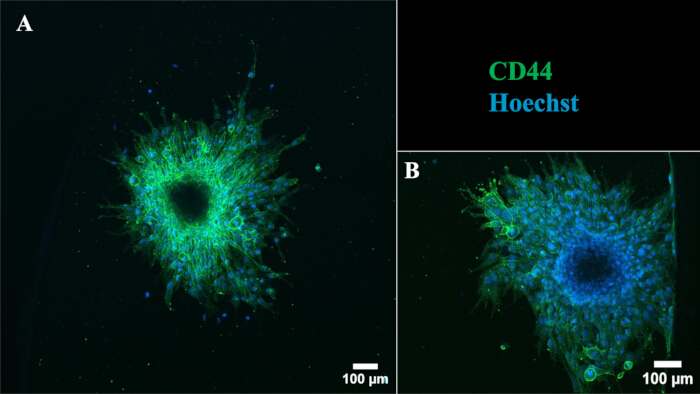
איור 3: ניתוח חלבונים מייצג לאחר בדיקת נדידה של גליומספירות הממוקמות במרכז לעומת בקצה הבאר. מיקרוסקופיה קונפוקלית סורקת בלייזר של גליומספירות חוזרות עם צביעת חיסון בנוגדן המיועד לסמן תאי גזע גליובלסטומה CD44 לאחר ההגירה. CD44-FITC (ירוק) והוכסט (גרעינים, כחול). פס סולם = 100 מיקרון. ראשי החץ מציינים את קצה הבאר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
5. צינור עיבוד תמונה של דינמיקת הגירה שמקורה במטופלים
הערה: מניסיוננו עם מערך הנתונים שלנו, אנו ממליצים שלמחשב העיבוד יהיה מעבד רב-ליבות עם תדר ליבה בסיסי גבוה וכמות משמעותית של זיכרון, שכן עיבוד WEKA מתאים מאוד למספר ליבות גבוה וינצל זיכרון זמין בהתאם לגודל מערך הנתונים. מפרט משומש ומומלץ כפי שמפורט להלן. שים לב שעיבוד GPU אינו בשימוש בזרימת עבודה זו.
מעבד: >= 6 ליבות | >= 2 גיגה-הרץ (מומלץ); 32 ליבות | 2.1 גיגה-הרץ (משומש)
זיכרון: > 32GB (מומלץ); 192 GB (משומש)
- Open Fiji13 [נכון לעכשיו נעשה שימוש בקובץ ההרצה ImageJ-win64.exe הכלול לניתוח]. Open Image על ידי ניווט ל- – קובץ > Open Select multi-channel, multi scene time-lapse image file (.czi) נפתח בממשק פיג'י (אם משתמשים בסקריפט, זהו קובץ משלים 1).
- בחר את התמונות הנדרשות בממשק הגרפי. זה עובד הכי טוב אם הגליומספירות הפולשות ביותר בניסוי יאמן תחילה את המסווג (כלומר שליטה טובה – DMSO), כי תמונה זו תספק פרטים על כל קטע בתמונה, כלומר מראה התאים הפולשים/הנודדים לעומת ספרואיד מול רקע.
- לאחר מכן עברו לתמונה > צבע > ערוצים מפוצלים – זה מפריד את התמונה לשני ערוצים – אחד במקרה זה עם צביעת יודיד פרופידיום והשני עם אור משודר.
- בחר את הערוץ לסגמנטציה – במקרה זה, ערוץ האור המשודר שמייצג את דינמיקת ההגירה. נווט לתוספים > סגמנטציה > סגמנטציה WEKA ניתנת להפעלה14.
- שנו את שמות שתי המחלקות ברירת המחדל ל: מחלקה 1: גליומספירה; כיתה 2: פלישה/הגירה. הוסף מחלקה שלישית בשם Background (אופציונלי אך מומלץ) על ידי ניווט להגדרות > מחלקה חדשה > רקע.
- באמצעות כלי Freeline, סמן אזורי אימון בתוך כל ערימת תמונה ומחלקה על ידי ציור על האזורים המייצגים, כלומר, צייר סחרור בספרואיד ולחץ על Add to Spheroid , חזור על כך עבור אזור הפלישה והרקע עד שכל האזורים מיוצגים בכל מחלקה. אמן את המסווג על ידי לחיצה על Train Classifier. ניתן להוסיף הערות לתמונות נוספות כדי לאמן את המסווג לשפר את הדיוק במידת הצורך.
- כאשר מסופק, שמור את מודל המסווג המאומן באמצעות שם קובץ כמו CellLine_Treatment_Classifier.model. סגור את חלון הסגמנטציה כשהוא מסתיים.
- לתמונות חדשות המשתמשות במסווג השמור, יש לגשת ל-Plugins > Segmentation > Trainable WEKA Segmentation >Load Classifier> Open Saved Classifier CellLine_Treatment_Classifier (זה שומר קובץ .model - . זו אחת הדרישות שקובץ משלים 2 יהיה מוכן לפני שהסקריפט רץ. כאשר הסקריפט מופעל, יש לבחור את קובץ הדגימה המתאים).
- ניווט כדי לקבל הסתברות בממשק הסגמנטציה של WEKA Trainable - זה מייצר מפות הסתברות לכל מחלקה שנבחרה, כלומר גליומספרה, פלישה/הגירה, רקע שמצביעות על הסבירות שכל ערך פיקסל שמוקצה לתמונה שייך למחלקה או לאזור הספציפי בתמונה. זה ייצור קובץ של 3 תמונות נפרדות של מפות הסתברות (גליומספרה, פלישה, רקע) עם טווח דינמי של 32 ביט לכל תמונה.
- בחר את מפת ההסתברות המתאימה לפלישה/הגירה. נווט ל-Image > Hyperstacks > Reduce Dimensionality. בחר לשמור את המקור.
- בטל את הערוצים אך שומר על הפריימים – זה מצמצם את המפה לערוץ אחד עם הזמן – במקרה זה, מפת הסתברות הפלישה. בחר את מפת ההסתברות המתאימה לגליומספרה.
- חזור על השלבים 5.10-5.11. כעת יהיו שתי מפות הסתברות התואמות לתמונת הטיימלפס של האור המקורית ששודרה עבור סצנה אחת של ההגירה ואזור הספרואיד. שמור את שניהם עם הקונבנציה הבאה של שמות הקובץ: ImageName_Scene_Gliomasphere_ProbabilityMap ו-ImageName_Scene_Invasion_Probability Map בתיקייה המתאימה לניסוי הנבחר, כלומר CellLine_Treatment.
- הגדר סף ליצירת מסכה בינארית: עבור לתמונה > כוון > סף. בחר שיטת סף (למשל, ין, אוטסו). שמור על שיטת הבחירה זהה בכל התמונות המעובדות.
- נווט כדי לנתח מדידות > סט. בחר את המידות הרצויות; שטח קרציות, צפיפות משולבת וממוצע ואז לחץ על אוקיי. נווט לניתוח > ניתוח חלקיקים. לפלישה/הגירה, גודל הסט: 0 – אינסוף; מעגליות: 0.00 – 1.00. לגבי גליומספירות, גודל הקבוצה: בדרך כלל, 1500 – אינסוף (מתאים לפי הצורך לפי גודל הכדורים בקו התאים/הטיפול - כדורי הבקרה יגדלו באופן טבעי); מעגליות: 0.05 – 1.00. בחר יחידות פיקסל לכולם.
- נווט לניתוח>ניתוח פיקסלים> הצג: בחר מסכות. לאחר יצירת המסכות, יש לאמת את אזור העניין המפוצל לאורך כל ערימת הטיימלפס כדי להבטיח מעקב מדויק. יישם פעולות בינאריות דרך תהליך > בינארי > ... (למשל, בחירת מילוי חורים בעת שיפור מסכת הספרואיד), ואז ניווט לניתוח > ניתוח חלקיקים > להראות > לבחור כלום ולבחור סיכום. זה יספק חלון סיכום של מדידות נבחרות.
- שמור את התוצאות על ידי לחיצה על קובץ > שמור כ-> תוצאות. שמור כקובץ .csv. פתוח בגיליון אלקטרוני או תוכנת ניתוח אחרת.
- חזור על סף הניתוח וניתוח החלקיקים עבור כל הקבוצות המחולקות (למשל, גליומספרות, פלישה) כדי להפיק מדידות מתאימות לאורך זמן. .csv הפלט מספק שטח (בפיקסלים או מיקרונים בהתאם לכיול) לאורך זמן.
- בחר את ערוץ הפלואורסצנציה המייצג צביעת PI (למשל, ערוץ 2). החלו סף וניתוח חלקיקים כפי שציינתי כדי לזהות תאים מתים. השתמשו בתוסף Calculator Plus כדי להכפיל מסכות של תאים חיוביים PI עם מסכת הגליאוספירה ובנפרד עם מסכות הפלישה כדי לכמת תאים מתים עבור האזורים הספציפיים.
- ייצוא מסכות, מפות הסתברות וטבלאות סיכום כקבצי TIFF ו-CSV עם שמות קבצים ברורים ותיאוריים לתיעוד וניתוח בהמשך. כאשר משתמשים בסקריפט המסופק בתוספת, ניתן למצוא את קונבנציית השמות הבאה: לדוגמה: FileName_Scene#_(PI-)Invasion_Summary.csv (נתונים עבור אובייקטים לאורך זמן), FileName_Scene#_(PI-)Invasion.zip (אזורים שהוגדרו באמצעות חלקיקי ניתוח).
הערה: קובץ משלים 1 ייצור קבצי TIF בודדים עם תמונות טיימלפס לכל סצנה. קובץ משלים 2 יריץ את סיווג הפיקסלים של WEKA בהתבסס על קובץ מודל סיווג מוגדר מראש על כל הסצנות וכל התמונות בכל טיים לאפס, ומספק מפות הסתברות לגליאוספירה וגם לתאים הפולשים. קובץ משלים 3 יחלק את כל התמונות לגליומספירות ותאים פולשים ויכמת את האזורים המכוסים וכן את חלוקת האזורים המכוסים על ידי תאים מתים (PI-חיוביים). קובץ משלים 4 להרצה מניח שיטת סף מסוימת וגם אזור מסוים לניתוח, בעוד שקובץ משלים 3 מאפשר למשתמש להגדיר את הסף ולהתאים את האזור לכל סצנה. הסף לא צריך להשתנות למתודות שונות לכל סצנה אלא ניתן להגדיר אותו למתדות שונות לכל אובייקט.
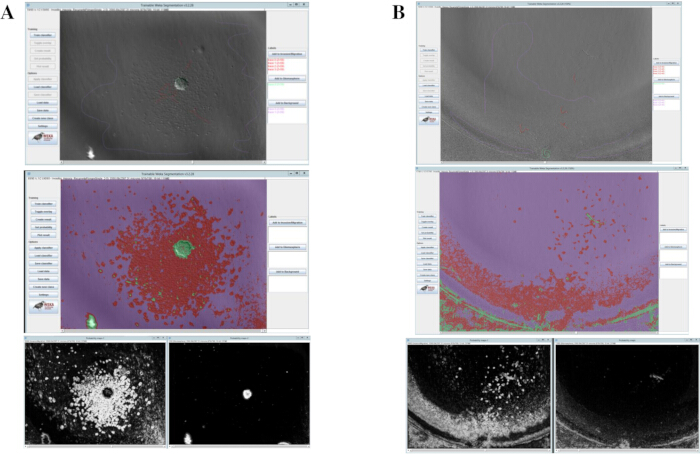
איור 4: אתגר בעיבוד תמונה שניתן לשחזור עקב סגמנטציה לקויה של גליומספרה. צינור עיבוד תמונה באמצעות תוסף סגמנטציה של WEKA שניתן להכין בפיג'י מציג (A) גליוספירה ממוקדת מרכזית עם סגמנטציה גדולה יותר של שטח ההגירה מול רקע לעומת (B) גליוספירה ממוקדת לשוליים, מה שגורם לסגמנטציה לקויה של תמונה ולשכפול בלתי שמיש. על ידי הבטחת עקביות בלוקליזציה של גליומספירות, עיבוד תמונה בין שכפולים ביולוגיים מופיע כפי שמוצג ב-(A), מה שמשפר משמעותית את השחזור והאוטומציה של הבדיקה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
תוצאות
באמצעות מבחן ההגירה התלת-ממדי המתוארת בתנאים היפוקסיים, גליומספירות מגידולי מטופלים חוזרים טופלו באמצעות כלי רכב או תרופה X, ודינמיקת הפלישה נבדקה כל שעה במשך 72 שעות. איור 5 מתאר את ניתוח הסגמנטציה של WEKA של דינמיקת הפלישה, וחושף כי תרופה X מפחיתה משמעותית את הפוטנציאל הפולשני של גליומספירות חוזרות בהשוואה לבקרת כלי רכב בתנאים היפוקסיים קליניים רלוונטיים.
כדי להעריך עוד את השפעת תרופת X על מאפייני תאי הגזע לאחר ההגירה, הגליומספירות תוקנו וצבעו חיסון לביטוי ומיקום סמן תאי הגזע של גליובלסטומה CD44, כפי שמוצג באיור 6. ניתוח מולטי-פלקס זה מקל על המחשה של דינמיקת ההגירה וביטוי סמנים של תאי גזע, ומספק תובנות כיצד תרופה X מווסת הן את הפוטנציאל הפולשני והן את התכונות הדמויות גזע של מודלים חוזרים של גליובלסטומה בתנאים היפוקסיים קליניים רלוונטיים.
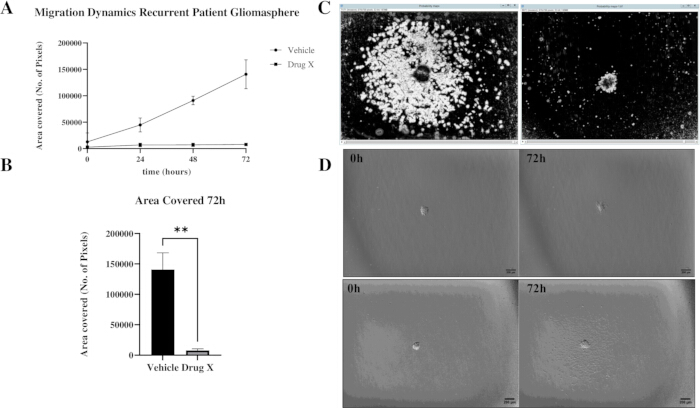
איור 5: בדיקת נדידה אופטימלית מדגישה את היעילות של תרופה X החדשה במניעת נדידה חוזרת של גליומספירות. גליומספירות נחזוריות שמקורן במטופל שטופלו בכלי רכב או תרופה X במשך 72 שעות בתנאי היפוקס. דינמיקת הפלישה נלכדה כל שעה במשך 72 שעות. (A) תמונות אור מייצגות שידרו של דינמיקת הפלישה ב-0 ו-72 שעות בפאנל העליון - הרכב טופל ולוח תחתון - טיפול בתרופה X. (ב) מפות הסתברות מייצגות של אזור הפלישה המשמשות בניתוח הסגמנטציה. (ג) גליומספירות חוזרות שטופלו בתרופה X הראו פוטנציאל פולשני נמוך משמעותית לעומת גליומספירות שטופלו ברכב. כימות האזור הפולש לאחר 72 שעות הראה ירידה משמעותית בפלישות גליומספירות שטופלו על ידי תרופה X, המיוצגת כשטח הכולל המכוסה בזמן הקיבוע. הנתונים מייצגים את שטח הפלישה לאורך זמן מ-n=3 שכפולים בלתי תלויים. המובהקות הסטטיסטית הוערכה באמצעות מבחן t לא מזווג; p < 0.005 מסומן על ידי **. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
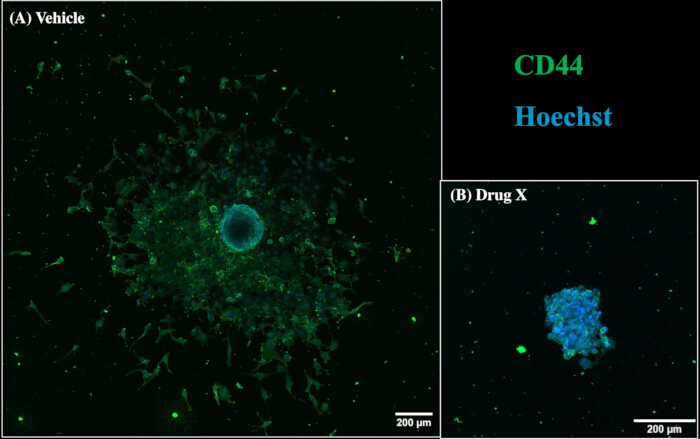
איור 6: הגירה וביטוי סמן תאי גזע לאחר טיפול. גליומספירות המתוארות באיור 5 היו קבועות לאחר ההגירה וצובעו חיסון באמצעות נוגדן המיועד לסמן תאי הגזע של גליובלסטומה CD44 לאחר טיפול בכלי רכב או בתרופה X. איור זה מדגים את סוג ניתוח המולטי-פלקס לאחר ההגירה שניתן לבצע באמצעות טכניקות אימונוסיינינג סטנדרטיות. תמונות מראות את CD44-FITC (ירוק) ואת Hoechst (גרעינים, כחול). פס קנה מידה = 200 מיקרון. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של האיור.
קובץ משלים 1: שמירת קבצי CZI מרובי סצנות מהמיקרוסקופ כסצנה אחת כקבצי TIF.אנא לחצו כאן להורדת הקובץ הזה.
קובץ משלים 2: יצירת העתקות הסתברות באמצעות מודל וקה.אנא לחצו כאן להורדת הקובץ הזה.
קובץ משלים 3: ניתוח סגמנטציה ללא סף. אנא לחצו כאן להורדת הקובץ הזה.
קובץ משלים 4: ניתוח סגמנטציה עם סף. אנא לחצו כאן להורדת הקובץ הזה.
דיון
מידול הדינמיקה הפולשנית של גידולים אגרסיביים במיוחד כמו גליובלסטומה הוא קריטי לשיפור ההבנה שלנו של תהליכי המחלה ולזיהוי אסטרטגיות טיפול יעילות יותר. הטבע המורכב, האדפטיבי והפלסטי של נדידת תאי גליובלסטומה מחייב מודלים פרה-קליניים שיכולים ללכוד במדויק את ההתנהגויות הדינמיות של תאי גליומה בודדים בעת הנדידה ממסת הגידול המרכזית. חשוב לציין כי מידול תהליכים אלו על פני דגימות שמקורן במטופלים משלבים שונים של המחלה מאפשר לחוקרים להתמודד טוב יותר עם אתגר ההטרוגניות של הגידול ולזהות שינויים ספציפיים בשלב בדינמיקת הפלישה.
בהינתן מורכבות זו, סביר להניח שמודלים פרה-קליניים צריכים להיות בעלי רמת מורכבות שווה. כאן, אנו מתארים שיטה משופרת ליצירת גליומספירות שמקורן בחולים בגודל אחיד, המעובדות יחד עם ננו-חלקיקי תחמוצת הברזל. גישה זו מאפשרת מיקום מבוקר של גליומספירות במרכז כל באר, ומאפשרת דימות תאים חיים אוטומטיים של דינמיקת פלישה. מספר מחקרים הדגישו שונות משמעותית בגודל, בצורת הספרואידים ובקינטיקת הצמיחה בעת שימוש בשיטות תרבית תלת-ממדיות קונבנציונליות, סייד ועמיתיו הראו כי ספרואידים יכולים להציג התפלגות בקוטר רחב בין אלו שמקורם באוכלוסיות תאי גזע לא ממויינים לעומת אוכלוסיות תאי גזע סרטניים לא ממוינים, מה שמשקף שונות מובנית ביצירת ספרואידים15,16. הטרוגניות זו זוהתה גם כמקור מרכזי לבעיות שכפול בבדיקות סקר סמים מבוססות ספרואיד, מה שמדגיש עוד יותר את חשיבות יצירת אוכלוסיות ספרואידיות הומוגניות12. ממצאים אלו מדגישים את הצורך בסטנדרטיזציה של תנאי היווצרות ספרואיד לפני ביצוע ניתוחים פונקציונליים, אתגרים ששיטה זו מתמודדת איתם ישירות. על ידי סטנדרטיזציה של גודל הספרואיד ומיקומו, שיטה זו משפרת משמעותית את השחזוריות ומפחיתה שונות שמקושרת בדרך כלל למערכות תרביות תאים תלת-ממדיות, שבהן היווצרות כדורית לא אחידה יכולה להשפיע על ניתוח במורד הזרם.
במהלך הפיתוח הראשוני של הבדיקה הזו, ראינו שונות משמעותית במיקום הספרואיד בין השכפולים, מה שדרש שימוש במספר רב של בארות בכל ניסוי אך גם במספר רב של שכפולים ביולוגיים להשגת תוצאות מובהקות סטטיסטית. דבר זה לא רק הגדיל משמעותית את עומס העבודה, אלא גם יצר כמות משמעותית של נתונים בלתי שמישים, הפחיתה את יעילות הבדיקה ואת השחזוריות. לכן, השונות שנוצרה שיקפה אובדן נתונים כמותיים ולא הבדלים בהתנהגות הפלישה. על ידי ריכוז הגליומספירות בתוך כל באר, מיקום מגנטי מבטיח שניתן יהיה לפצל ולנתח תמונות מכל הרפליקטים באופן עקבי, גם כאשר נצפים הבדלים ביולוגיים בדינמיקת הפלישה בין הדגימות.
שילוב ננו-חלקיקי תחמוצת הברזל יוצר כוח מגנטי עדין שמרכז באופן עקבי את הגליומספירות בכל הבארות, ומשפר משמעותית את ביצועי צינור עיבוד התמונה, עיבוד הנתונים וניתוחי ההגירה, מבלי להשפיע על ביולוגיית הגליומספירה או הקיימות8. יתרון מרכזי של מערכת זו הוא התאימות שלה לניתוח מולטיפלקס לאחר ההגירה, לדוגמה, איור 6 מציג ניתוח של ההמחשה של סמן תאי הגזע של גליובלסטומה CD44, המאפשר הערכת ביטוי תאי גזע לאחר נדידה וטיפול בין דגימות המטופלים. יכולת זו מדגישה את הפוטנציאל של הפלטפורמה למחקרים אינטגרטיביים המקשרים בין פנוטיפים פולשניים לתכונות מולקולריות, שיקול חשוב לאור הפלסטיות הפנוטיפית של תאי גזע דמויי גליובלסטומה בתגובה לרמזים מיקרוסביבתיים ויכולתם להתחמק מטיפול המעודד הישנות בלתי נמנעת של הגידול.
בעוד שבדיקה זו משפרת מאוד את השחזוריות של המחשת דינמיקת פלישה לכדורים בודדים, קיימות מגבלות קריטיות שיש לקחת בחשבון לאופטימיזציה עתידית של מבחנים. Matrigel הוא מודל נפוץ של ממברנת בסיס, אך הוא תחליף מורכב ובלתי מוגדר למטריקס חוץ-תאית (ECM) שמקורו בסרקומות עכברים, שאינו משחזר במלואו את מיקרו-סביבת המוחהאנושי 17. אופטימיזציה עתידית של המבחן עשויה לשלב מודלים ייחודיים למוח של ECM כדי לחקות טוב יותר את מיקרו-סביבת הגידול במוח, שלדעתנו היא שלב אופטימיזציה הכרחי במודלים של פלישת מוח במבחנה18,19. בעוד שמטריגל נותר מודל מאומץ נרחב של ECM, הוא מייצג מטריצה חוץ-תאית שאינה ספציפית למוח שמקורה בסרקומה של עכברים. לכן, הוא אינו משחזר במלואו את התכונות הביוכימיות והמכניות של מיקרו-סביבת המוח האנושי. חשוב לציין כי אסטרטגיית המיקום המגנטי המתוארת כאן אינה תלויה במטריצה וניתן להתאים אותה בקלות למערכות ECM ספציפיות למוח במחקרים עתידיים כדי לשפר עוד יותר את הרלוונטיות הפיזיולוגית.
שיקולים נוספים של הבדיקה הם הדרישות האפשריות להכשרת מודל סגמנטציה חדש של WEKA לכל קו תאים, בשל הטרוגניות ודגימה במורפולוגיית הפלישה. בנוסף, יש לאופטם הן את צפיפות הזריעה והן ריכוז הננו-חלקיקים לכל סוג תא וסוג ספרואיד, כדי לשמור על אחידות וכדאיות לפני ביצוע בדיקות נדידה בתפוקה גבוהה. למרות מגבלות אלו, פלטפורמה זו מספקת מסגרת ניתנת להרחבה וגמישה לחקר פלישה ספציפית לגליובלסטומה ותגובת טיפול ספציפית למטופלים. התאימות שלה להדמיית תאים חיים, צינורות סגמנטציה אוטומטיים וניתוח פוסט-אסיי מרובה פונים פותחת הזדמנויות לסינון תוכן גבוה של טיפולים חדשניים, טיפולים משולבים ומחקרים מכניים של פלישה מדגימות גידולים הטרוגניות מאוד של מטופלים. יתרה מזאת, הרחבת הבדיקה הזו למערכות תרביות משותפות, כגון תאי מוח תושבים כמו אסטרוציטים, נוירונים ומיקרוגליה, או מודלים של אינטראקציות בין מחסומי דם ומוחי, מספקת תובנות נוספות לגבי אינטראקציות בין סטרומות גידול שמניעות התקדמות וחזרת גליובלסטומה.
מספר שלבים טכניים זוהו במהלך פיתוח הבדיקה כגורמים קריטיים לשחזוריות ולביצועי הבדיקה הכוללים. תקנון צפיפות הזריעה של קווי תאים לפני הבדיקה מבטיח שגודל הגליאוספירה ההתחלתי יהיה עקבי, מה שמאפשר דינמיקת גדילה ספרואידי להיות ניתנת להשוואה בין קווי תאים, טיפולים ותנאים. ללא שלב סטנדרטיזציה זה, גדלי הספרואידים הראשוניים יוסיפו רמת שונות משמעותית, אשר עשויה לשקף תגובות משתנות של גליומספרים לתנאים ניסיוניים. מיקום מרכזי מדויק של גליומספירות בתוך כל באר הוא דרישה מרכזית לרכישת תמונות אוטומטית מדויקת ולחלוקה במורד הזרם. ספרואידים לא מרכזיים יצרו רעש דימות משמעותי ומונעים שימוש בסגמנטציה של WEKA כאמצעי לחלוקת התמונות לאזורים מוגדרים בבירור. על ידי הבטחת מיקום כל הגליומספירות במרכז, ניתן להשתמש באותו מסווג WEKA מספר פעמים כאשר הרעש מצטמצם משמעותית ואיכות התמונה משתפרת באופן דרמטי. ייצוג של זה מוצג באיור 1. שילוב ננו-חלקיקי תחמוצת הברזל המגנטיים הוא לכן שיטה להבטיח מיקום מרכזי של גליומספרות, למזעור שונות מיקום ולשפר משמעותית את עיבוד התמונה וההשוואה בין שכפולים. לבסוף, אימון מודל סגמנטציה בתוך צינור WEKA מהווה שלב תקינה קריטי נוסף. עקב הטרוגניות בין-מטופלת והבדלים במורפולוגיית הפלישה, מודל סגמנטציה יחיד עשוי שלא להכליל על כל הדגימות. אימון מחדש או שיפור פרמטרי סיווג לכל קו תא מבטיח מפות הסתברות מדויקות של אזורים פולשים ומונע טעויות כמות.
בסך הכול, בדיקה זו מספקת פלטפורמה ניתנת לשחזור וניתנת להרחבה לחקר ההתנהגויות הפולשות הדינמיות של דגימות גליומה שמקורן במטופלים בזמן אמת. התאימות שלה להדמיה מולטיפלקסית ולניתוחים מולקולריים במורד הזרם הופכת אותו לכלי עוצמתי ורב-שימושי הן למחקר גליומה בסיסי והן למחקר תרגומי, אשר ישפר משמעותית את הרלוונטיות התרגומית של מודלים של גליובלסטומה פרה-קלינית.
גילויים
אין מה לחשוף
תודות
עבודה זו נתמכה על ידי Research Ireland (קרן המדע של אירלנד) תחת קוד מענק 20391A01 ועל ידי מועצת מחקר הבריאות תחת קוד המענק ERA-TRANSCAN-2022-002. התאים סופקו בנדיבות על ידי שותפינו במעבדת דירקס, SickKids, טורונטו ובמרכז הרפואי ארסמוס (EMC), רוטרדם.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| ערכת ביופרינטינג 96 באר, נקייה | גריינר | 655840 | |
| אקוטאז | Invitrogen | 00-4555-56 | לא זמין |
| תוסף B-27 (50X), סרום חופשי ללא ויטמין A | גיבקו | 12587010 | 10% |
| גורם גדילה בסיסי של פיברובלסטים, אנושי (bFGF) | PeproTech | 100-18B | 20 ng/ml |
| סלדיסקברר 7 | צייס | - | |
| מיקרופלטות ספרואידי קורנינג | קורנינג | CLS4515 | |
| מטריצת קורנינג מטריג'ל | קורנינג | 354234 | 1:100 דילול סופי |
| מונה תאים אוטומטי של Countess | Invitrogen | - | |
| DMEM-F12 (500 מ"ל) | תרמופישר | 11320-074 | לא זמין |
| פקטור גדילה אפידרמלי אנושי (EGF) | PeproTech | AF-100-15 | 20 ng/ml |
| FITC עכבר אנטי-אנושי CD44 | BD פארמינגן | 555478 | 1:100 |
| Greiner CELLSTAR 96 Well תרבית תאי פוליסטירן מיקרופלטות עם באר F-Bottom/ארובה, ומיקרו; שקוף, שחור, TC, סטרילי, עם מכסה. | גריינר | 655090 | |
| הפארין | תרמופישר | A16198 | 5&מיקרו; g/ml |
| Hoechst 33258 | סיגמא אלדריץ' (מרק) | 861405 | 1&מיקרו; g/ml |
| NanoShuttle-PL | גריינר | 657841 | 1.5 &; l/10,000 תאים |
| פניצילין - סטרפטומיצין | מרק | P4333 | 1% |
מקורות
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
הדפסות חוזרות והרשאות
