כאן אנו מציגים פרוטוקול להקמת מודל תאי למחלת אלצהיימר הנגרמת על ידי חומצה אוקדאית בתאי SH-SY5Y והערכת ההשפעות הנוירופרוטקטיביות של גסטרודין באמצעות לחץ חמצוני וניתוח מסלולי AKT/GSK-3β.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר מחקר
גסטרודין מפחית את ההיפרפוספורילציה של טאו הקשורה לשינויים באיתות AKT/GSK-3β במודל תאי מחלת אלצהיימר
* These authors contributed equally
במאמר זה
סיכום
תקציר
מחלת אלצהיימר (AD) היא מחלה נוירודגנרטיבית נפוצה שלגביה קיימות כיום תרופות יעילות מוגבלות. כרכיב הביואקטיבי העיקרי שמקורו ב-Gastrodia elata, גסטרודין (GAS) הראה פוטנציאל טיפולי ברור לטיפול ב-AD; עם זאת, המנגנון המולקולרי של פעולתו עדיין לא ברור. במחקר זה, אנו שואפים לחקור את מנגנון השפעת GAS על תאי מודל AD. פרמקולוגיה ברשת משמשת לניתוח היעדים ומסלולי האיתות המושפעים מ-GAS ב-AD. מודל תאי AD נבנה על ידי השראת תאי SH-SY5Y של נוירובלסטומה אנושית עם חומצה אוקדאית (OA). הערכה שקיימות התאים באמצעות מבחן CCK-8, בעוד שנמדדו רמות SOD, MDA ו-T-AOC. קצב האפופטוזיס נקבע באמצעות צביעה כפולה של Annexin V-FITC/PI, וביטוי של גורמים הקשורים לאפופטוזיס, וכן AKT, GSK-3β, p-Tau (Ser396) ו-p-Tau (Thr181), שנבדקו באמצעות RT-qPCR וטכניקות ווסטרן בלוטינג. ניתוח פרמקולוגיה רשת מציע של-GAS יש פוטנציאל לווסת אפופטוזיס תאי ומסלולי איתות נלווים, כולל PI3K/AKT. הניסויים שלנו מראים ש-GAS יכול לעכב רמות MDA, להעלות את T-AOC ו-SOD בתאי מודל AD, ולהפחית אפופטוזיס תאי. תוצאות ה-Western bloting מצביעות על כך ש-GAS מפחית את ההשפעות המעכבות של OA על ביטוי p-AKT (Ser473) ו-p-GSK-3β (Ser9). בנוסף, הוא מפחית את הביטוי המופרז של p-Tau (Ser396) ו-p-Tau (Thr181), מדכא את ביטוי Bax ומגביר את ביטוי Bcl-2. GAS מדגים את היכולת להקל על פגיעות עוקה חמצונית הנגרמת על ידי OA ולהפחית אפופטוזיס. GAS עשוי לדכא היפרפוספורילציה של טאו, הקשורה לשינויים במסלול האיתות AKT/GSK-3β, ובכך להפעיל השפעות נוירופרוטקנטיות פוטנציאליות.
מבוא
מחלת אלצהיימר (AD) היא הפרעה נוירודגנרטיבית מתקדמת המתאפיינת בעיקר באובדן זיכרון וליקוי קוגניטיבי, ומייצגת את הצורה הנפוצה ביותר של דמנציה בעולם, ומהווה כ-60% עד 80% מהמקרים1. הפתוגנזה הבסיסית של AD נשארת מורכבת ועדיין לא הוברה במלואה2. סימנים פתולוגיים מרכזיים שנצפו במקרי AD קליניים כוללים הצטברות של פלאקים סניליים (SP) וקשרים נוירופיבריליים (NFTs) בתוך המוח 3,4. ידוע היטב כי שני האירועים הפתולוגיים המרכזיים ב-AD הם הפקדה חוץ-תאית של חלבון β-אמילואיד (Aβ) ליצירת פלאקים סניליים והתכנסות תוך-תאית של חלבון טאו היפר-פוספורילי ליצירת סבכים נוירופיבריליים 5,6,7. בנוסף, לחץ חמצוני ודלקת עצבית הם גורמים משלימים שיכולים לתרום להחמרה של AD 8,9,10,11.
ככל שמגמת הזדקנות האוכלוסייה העולמית מתעצמת, מספר חולי הדמנציה עלה משמעותיתב-12.13. עם זאת, אפשרויות הטיפול ב-AD נשארות מוגבלות, וכוללות בעיקר תרופות חד-מטרה כמו ממנטין, דונפזיל וגלנטמין14. עם זאת, ההשפעות הטיפוליות שלהן הן בעיקר פליאטיביות ולא משנות מחלה, ודווחו תופעות לוואי מסוימות כגון הפרעות במערכת העיכול, סחרחורת וברדיקרדיה. לכן, פיתוח אסטרטגיות טיפוליות בטוחות ויעילות יותר נותר עדיפות מחקרית חשובה15,16. תרופות מונוקלונליות שהושקו לאחרונה, כמו לקאנמאב, הביאו תקווה חדשה לחולים עם AD קל. עם זאת, העלויות והמגבלות הגבוהות שלהם אינן עונות על הביקוש הטיפולי המשמעותי. מניעה וטיפול ב-AD ממשיכים להוות אתגר משמעותי17,18. הממצאים ממחקרים שונים הראו שצמחי מרפא, במיוחד רפואה סינית מסורתית, מציגים השפעות רב-רכיביות המכוונות למסלולים מרובים המעורבים בהפרעות ניווניות כמו AD. מחקרים הראו כי תרכובות פעילות מגנודרמה לוסידום יכולות להקל על נזק חמצוני ברקמת המוח של עכברי AD, לעכב אפופטוזיס, להפחית נמק נוירוני ההיפוקמפוס ולשפר פגיעה קוגניטיבית.. במחקר על AD, באו ואח' השתמשו בפרמקולוגיה רשתית כדי לזהות מטרות מרכזיות של אסטרגלוסיד IV בדלקות הקשורה ל-AD. הממצאים שלהם חשפו כי קולטני גורם גדילה אפידרמלי (EGFR) ואינטרלוקין-1β (IL-1β) הם מטרות קריטיות, המספקים מועמדים טיפוליים פוטנציאליים ומטרות מחלה לטיפול קליני במחלות ניווניות נוירודגנרטיביות. Dartigues ואחרים, 21, ניתחו את תמצית גינקו בילובה והראו שיש לה השפעות חיוביות בהפחתת הסיכון לדמנציה ותמותה בקרב קשישים. מטופלים שטופלו בתמצית גינקו בילובה הראו שיעור תמותה נמוךיותר, 22.
גסטרודיה אלאטה, השייך למשפחת הסחלבים, הוא עשב סיני מסורתי, אכיל ורפואה. הריזום של Gastrodia elata נפוץ מאוד בגסטרודין (GAS), גסטרודיה פוליסכרידים ואלקלואידים. מחקרים פרמקולוגיים עדכניים הראו כי תרכובות פעילות אלו מחזיקות בהשפעות משפרות זיכרון וקוגניטיביות, וכן תכונות נוירוהגנטיות ויעילות בטיפול באינסומניה וסחרחורת. התרכובת הביואקטיבית העיקרית של Gastrodia elata היא GAS, שמופקת מהפקעת ובעל תכונות רפואיות. GAS, הידוע גם בשם 4-הידרוקסיבנזיל אלכוהול 4-O-β-d-גלוקוזיד, שייך למחלקת הגליקוזידים הפנוליים24. המבנה הכימי של GAS מוצג באיור 1, עם משקל מולקולרי של 286.278. המסה המולקולרית הנמוכה יחסית של גליקוזידים ומונוגליקוזידים מקלה על חדירה יעילה שלהם דרך מחסום הדם-מוח, ובכך מהווה בסיס יסודילתפקיד הנוירופרוטקנטי של GAS. יתרה מזאת, הספיגה הגבוהה שלהם משפרת עוד יותר את היעילותשלהן. בשנים האחרונות, מחקרים רבים הראו את הפוטנציאל של GAS בטיפול בהפרעות מוח שונות, כולל 27,28,29,30 לספירה, מחלת פרקינסון (PD)31, ואיסכמיה מוחית32. ל-GAS יש מגוון רחב של תכונות פרמקולוגיות, כולל השפעות אנטי-חמצוניות, היפוליפידמיות, אנטי-דלקתיות ואנטי-הזדקנות33,34. מנגנון הפעולה שלו כולל מסלולי איתות מרובים כגון Nrf2, NF-κB ו-AMPK35. GAS מפעיל אפקטים נוירופרוטקטיביים במודל עכבר של פגיעה נוירולוגית הנגרמת על ידי Pb על ידי ויסות מסלול Wnt/Nrf236, ומציג גם אפקט אנטי-אפופטוטי בטיפול בהפרעות ניווניות נוירודגנרטיביות באמצעות ויסות מסלול האיתות Nrf237. GAS גם השפיע לטובה על AD על ידי דיכוי ביטוי BACE1 בהיפוקמפוס באמצעות מסלול איתות38 של קינאז/גורם התחלת חלבון-2α (PKR/eIF2α). יתרה מזאת, GAS הראה השפעות מעכבות על הפעלת איתות NF-κB המושרה על ידי TCDD, ובכך החליש אפופטוזיס של נוירוני PC12 והפעלת אסטרוציטים39.
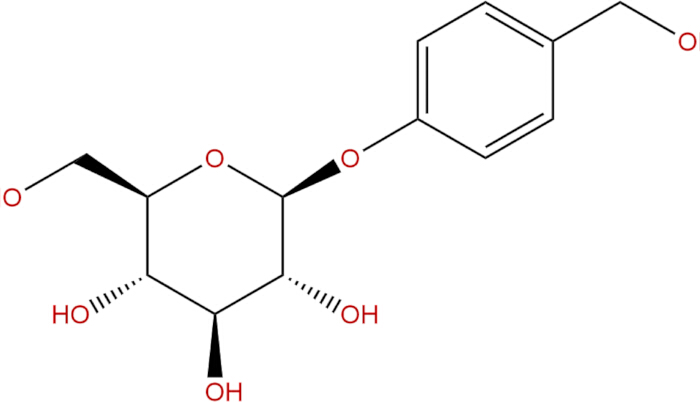
איור 1: נוסחה כימית מבנית של GAS. אנא לחצו כאן לצפייה בגרסה גדולה יותר של איור זה.
OA, שמקורו בספוג השחור של סוג הליכונדריה, שייך לקבוצת חומצות שומן ארוכות שרשרת ומשמש כמרכיב העיקרי של רעל צדפות שלשול (DSP). הוא מעכב ביעילות את פעילות הפוספטאזות של חלבון, במיוחד PP1A ו-PP2A, מה שמוביל להיפרפוספורילציה תאית ולהפרעה של הומאוסטזיס תאי40,41. תכונה זו הופכת אותו לכלי חשוב לחקר מחלות הקשורות לזרחון חלבונים. לכן, השימוש ב-OA מאפשר בניית מודלים של תאי AD הכוללים שינויים בזרחון חלבוני טאו. מחקר זה נועד לחקור את ההשפעה והמנגנון של GAS, המרכיב הפעיל העיקרי של Gastrodia elata, על מודל תאי AD המושרה על ידי OA, ולהבהיר את השפעתו הנוירומגנטית על תאי מודל AD על ידי מיקוד במסלול האיתות AKT/GSK-3β.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל פעולות הפרמקולוגיה ברשת בוצעו בהתאם להנחיות שיטות הערכת פרמקולוגיה ברשת. כל ההליכים הניסיוניים בוצעו בהתאם לתקנות ניהול המעבדה של אוניברסיטת המדע הטכנולוגי של ג'ג'יאנג.
פרמקולוגיה רשת
חיזוי מטרות פוטנציאליות של GAS: החיוכים הקאנוניים של GAS (PubChem CID: 1150) נלקחו ממאגר PubChem42. מבנה SMILES הועלה למסד הנתונים SwissTargetPrediction (http://www.swisstargetprediction.ch/)43. פרמטר המין הוגדר להומו ספיינס. היעדים החזויים עם ערך הסתברות > 0.1 נשמרו כדי להפחית תחזיות חיוביות שגויות. כל יעדי החלבון החזויים הוסדרו לסמלים גנים רשמיים באמצעות מאגר הנתונים UniProt43 (מינים מוגבלים להומו ספיינס), ורשומות כפולות הוסרו.
גנים הקשורים ל-AD נאספו ממאגר GeneCards (https://www.genecards.org/)44,45 וממסד הנתונים OMIM (https://www.omim.org/)46 תוך שימוש במונח החיפוש "מחלת אלצהיימר". ב-GeneCards נבחרו גנים עם ציון רלוונטיות > 10. מטרות שהושגו מ-GeneCards ו-OMIM אוחדו, כפילויות הוסרו, ושמות הגנים הוסדרו באמצעות UniProt.
היעדים החזויים של GAS והגנים הקשורים ל-AD יובאו לפלטפורמת Venny 2.1 המקוונת כדי לקבל מטרות חופפות. סך הכל זוהו 52 גנים מצטלבים (ראו טבלה משלימה 1) כמטרות טיפוליות פוטנציאליות ל-GAS ב-AD.
52 היעדים המצטלבים הועלו למסד הנתונים STRING (https://string-db.org/)47 לניתוח PPI. המין הוגדר להומו ספיינס, וציון האינטראקציה המינימלי הנדרש נקבע ל-0.4 (ביטחון בינוני). צמתים מנותקים היו מוסתרים. נתוני האינטראקציה שהתקבלו יוצאו והוצגו באמצעות תוכנת Cytoscape (גרסה 3.9.1).
ניתוח העשרת GO ו-KEGG: 52 היעדים המצטלבים הועלו למסד הנתונים Metascape (https://metascape.org/)48 עבור ניתוחי העשרת אונטולוגיית גנים (GO) ואנציקלופדיית קיוטו לגנים וגנומים (KEGG). המין נקבע כ-Homo sapiens. קריטריוני ההעשרה הוגדרו כערך p < 0.01, חפיפה מינימלית ≥ 3, ומקדם העשרה > 1.5. מסלולי KEGG דורגו לפי ערך p, ו-20 המסלולים המועשרים ביותר נבחרו להמחשה. תוצאות העשרה הוצגו באמצעות פלטפורמת ביו-אינפורמטיקה מקוונת.
קובץ מבנה החלבון של GSK-3β התקבל ממאגר הנתונים של RCSB PDB. קובץ המבנה של GAS בפורמט SDF הורד ממסד הנתונים PubChem והומר לאחר מכן לפורמט Mol2 באמצעות תוכנת Open Babel GUI. הקבצים שהוזכרו לעיל עובדו באמצעות תוכנת AutoDock להוספת אטומי מימן, הסרת מולקולות מים והקצאת מטענים. הקבצים המעובדים נשמרו לאחר מכן בפורמט PDBQT. לאחר זיהוי ועיבוד קשרי טורסיה במולקולות הליגנד, הקבצים נשמרו בפורמט PDBQT. אנרגיית הקישור הנמוכה ביותר בין שתי המולקולות הושגה על ידי ביצוע עגינה מולקולרית באמצעות תוכנת AutoDock Vina. בהמשך, תוצאות העגינה הוצגו ונותחו באמצעות PyMOL.
הכנת תמיסת המלאי
אבקת ה-OA (25 מיקרוגרם) הומסה לחלוטין ב-1200 מיקרוליטר של 10% דימתיל סולפוקסיד (DMSO) שהוכנה עם תמיסת מלח סטרילית-בופר-פוספט (PBS) ליצירת תמיסת מלאי של 25 מיקרומון. תמיסת המלאי אוחסנה ואוחסנה בטמפרטורה של -80°C. לפני כל ניסוי, OA מדולל טרי עם מדיום הנשר המוסב של Dulbecco (DMEM) (ראו טבלת חומרים) לריכוזי העבודה הרצויים. אבקת GAS (20 מ"ג) הומסה ב-1.4 מ"ל של PBS סטרילי, סיננה דרך ממברנה של 0.22 מיקרון לעיקור, והוכנה כתמיסת מלאי של 50 מ"מ, שנשמרה בטמפרטורה של -20 מעלות צלזיוס. לפני השימוש, תמיסת המלאי מדוללת עם DMEM מלא לריכוזי העבודה המצוינים.
בניית מודל תא AD
תאי SH-SY5Y של נוירובלסטומה אנושית נאספו ושימשו במחקר זה (ראו טבלת חומרים). תאי SH-SY5Y הושרתו בריכוזי שיפוע של OA (0, 10, 20, 40, 80, 160 ננומטר) למשך תקופות של 12, 24 ו-36 שעות בהתאמה, כדי להקים את מודל תאי AD.
בדיקת כחיות תאים
כדי לקבוע את הריכוז האופטימלי ומשך ההשראה של OA לקביעת מודל תאי AD, תאי SH-SY5Y טופלו בריכוזי שיפוע של OA (0, 10, 20, 40, 80 ו-160 ננומטר) לתקופות זמן שונות (12, 24 ו-36 שעות), והערכה שקיימות התאים באמצעות מבחןCCK-8 49. תאי SH-SY5Y הוזרעו בלוחות 96 בארות בצפיפות של 7.5 ×-103 תאים לבאר ב-100 מיקרוליטר DMEM מלא. הלוחות דגרו בטמפרטורה של 37 מעלות צלזיוס באינקובטור לח עם 5% CO₂ במשך 24 שעות כדי לאפשר חיבור תאים. לאחר חיבור של 24 שעות, נוספו 100 מיקרוליטר תמיסת OA לכל באר כדי להשיג ריכוזים סופיים של 0, 10, 20, 40, 80 ו-160 ננומטר בנפח כולל של 200 מיקרו ליטר לבאר. קבוצת הביקורת (CON) קיבלה נפח שווה של DMEM מלא ללא OA, בעוד שקבוצת OA קיבלה OA בריכוזים המצוינים. התאים דוגרו במשך 12 שעות, 24 שעות או 36 שעות בתנאי תרבית סטנדרטיים. כל ריכוז ונקודת זמן הוגדרו עם שישה בארות שכפול. שלוש בארות ריקות (בינוניות בלבד) נכללו לתיקון רקע.
קביעת מדד לחץ חמצוני תאי
תאי SH-SY5Y בשלב הצמיחה הלוגריתמי הוזרעו לתוך לוח בן 6 בארות. לאחר טיפול תאי, המדיום הקודם הושלך מהבארות. לאחר מכן, הבארות נשטפו שלוש פעמים עם PBS מקורר מראש בטמפרטורה של 4 מעלות צלזיוס. לאחר מכן נוסף בופר ליזיס תאים, והתאים עברו ליזה על קרח בשיטה המתאימה כפי שהונחתה על ידי הערכה. תכולת החלבון בדגימות נמדדה באמצעות ערכת בדיקת חלבון BCA (ראו טבלת חומרים). הפעילויות של T-AOC, SOD ו-MDA נקבעו בהתאם להוראות שסופקו עם ערכות הבדיקה המתאימות (ראו טבלת חומרים).
זיהוי אפופטוזיס תאים
אפופטוזיס התאים הוערך באמצעות ערכת צביעה כפולה Annexin V-FITC/PI (ראו טבלת חומרים) בהתאם להוראות היצרן. לזמן קצר, נאספו גם תאים צפים וגם תאים דביקים נוספים. תאים דביקים עוכלו באמצעות טריפסין ללא EDTA כדי למנוע נזק ממברנה מלאכותית ובשילוב עם תאים צפים. התאים נשטפו פעמיים עם PBS קר והושאו מחדש ב-500 מיקרוליטר של 1× Binding Buffer בצפיפות של 0.5–1 × 10⁶ תאים.
לאחר מכן, נוספו 5 מיקרוליטר של אנקסין V-FITC ו-5 מיקרוליטר של פרופידיום יוד (PI) לכל דגימה, התערבבו בעדינות ודגרו בטמפרטורת החדר בחושך למשך 10–20 דקות. הדגימות הונחו על קרח ונותחו תוך שעה באמצעות ציטומטר זרימה.
לניתוח ציטומטרי זרימה, נעשה שימוש בבקרות לא צבועות ובקרות צביעה בודדות (Annexin V-FITC בלבד ו-PI בלבד) לקביעת פרמטרי פיצוי ושערי רבעים. שערי פיזור קדמי וצד (FSC/SSC) יושמו לראשונה כדי להוציא פסולת ואגרגטים של תאים. נרכשו מינימום של 10,000 אירועים לכל דגימה. הנתונים נותחו באמצעות תוכנת FlowJo.
ניתוח PCR כמותי בזמן אמת (RT-qPCR)
לפי ההוראות שסופקו על ידי ערכת השעתוק ההפוכה של AG, ה-RNA שהופק עבר שעתוק הפוך ליצירת DNA משלים (cDNA), אשר דולל פי 10 במים סטריליים כדי לשמש כתבנית הראשונה. מערכת התגובה RT-qPCR הוכנה בהתאם לפרוטוקול ערכת Green Master Mix (ללא Rox), והניתוח בוצע באמצעות מכשיר PCR כמותי פלואורסצנטי (ראו טבלת חומרים). ערכי ה-Ct שהתקבלו עובדו ונותחו, ורמות הביטוי של גני המטרה חושבו בשיטת 2-ΔΔCt, כאשר ΔCt מייצג את ההבדל בין ערכי Ct בקבוצת הטיפול ל-GAPDH, ו-ΔΔCt מייצג את ההבדל בין ערכי ΔCt בקבוצת הטיפול לקבוצת הביקורת. רשימת המבנים נמצאת בטבלה המשליחה 2.
ניתוח ווסטרן בלוטינג
בופר הפירוק התא, יחד עם מעכב פרוטאז ומעכב פוספטאז, שולב ביחס של 100:1:1. התאים עברו ליזציה כדי להפיק חלבונים תאיים. ריכוז החלבון נקבע באמצעות ערכת הבדיקה BCA. חלבונים (20–30 מיקרוגרם לנתיב) הופרדו על ג'לים SDS-PAGE ב-10% ב-80 וולט לג'ל הערימה ו-120 וולט לג'ל המתפרק. החלבונים הועברו לממברנות PVDF (0.45 מיקרון) ב-300 mA למשך 90 דקות באמצעות העברה רטובה. הממברנה נחסמה בחלב דל שומן של 5% בטמפרטורת החדר למשך שעתיים, ולאחר מכן דגירה בלילה עם נוגדן ראשוני (ראו טבלת חומרים) בטמפרטורה של 4°C. לאחר דגירה עם הנוגדן המשני בטמפרטורת החדר למשך שעה, הממברנה נשטפה ארבע פעמים עם TBST למשך 5 דקות כל אחת. הפסים הוצגו באמצעות תגובות גילוי כימילומינסנציה משופרת (ECL) (ראו טבלת חומרים), והגילוי בוצע באמצעות מערכת הדמיית ג'ל. ערכי הגווני האפור נותחו באמצעות תוכנת ImageJ לצורך תובנות נתונים.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
סקר מטרה הקשור לגז לטיפול ב-AD
זיהוי היעדים של GAS לטיפול ב-AD כלל חיפושים במסדי נתונים וניתוח תוכנה. מאגר תחזית המטרות השווייצרי הניב 100 יעדים פוטנציאליים, בעוד ש-OMIM ו-GeneCards (עם ציון רלוונטיות > 10) נשאלו למטרות הקשורות ל-AD, מה שהוביל לסך של 2376 יעדים פוטנציאליים. בהמשך, השימוש בפלטפורמת Venny 2.1 המקוונת אפשר זיהוי 52 יעדים טיפוליים פוטנציאליים ל-GAS ב-AD (איור 2A).
המידע על אינטראקציה בין חלבון לחלב...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
בשנים האחרונות חלה עלייה עולמית בשכיחות מחלת אלה-זהר. מצב זה מאופיין במצב כרוני, טבע בלתי הפיך, נכות ושיעורי תמותה גבוהים, מה שהופך אותו לאתגר משמעותי בהקשר של אוכלוסייה גלובלית מזדקנת. למרות בולטותה, האטיולוגיה של AD מורכבת, והפתוגנזה שלה נותרה לא מובנת במלואה51.
הרפואה הסינית המסורתית מציעה יתרונות משמעותיים במניעה וטיפול במחלות, ומדגימה יעילות משמעותית ורמת בטיחות יחסית גבוהה52,53<...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
למחברים אין מה לחשוף.
תודות
מחקר זה נתמך על ידי הקרן הפתוחה של אוניברסיטת הטכנולוגיה המדעית של ג'ג'יאנג, האקדמיה לביומדיסין שאושינג (SXAB202007).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מערכת PCR בזמן אמת 7500 | APExBIO | S0080 | משמש לזיהוי תאים אפופטוטיים |
| מכשיר תיוג אנזימים A450 | Proteintech | 50599-2-Ig | WB, דילול 1:1000 |
| ערכת גילוי אפופטוזיס Annexin V-FITC | Proteintech | 60178-1-Ig | WB, דילול 1:1000 |
| נוגדן אנטי-בקס | Proteintech | 10494-1-AP | WB, דילול 1:1000 |
| נוגדן אנטי-Bcl-2 | אבקאם | ab32057 | WB, דילול 1:1000 |
| נוגדן אנטי-GAPDH | Proteintech | 28866-1-AP | WB, דילול 1:1000 |
| נוגדן אנטי-פ-טאו (Ser396) | Biofroxx | 1172 | מאגר חסימה עבור WB |
| נוגדן אנטי-פ-טאו (Thr181) | Vazyme Biotech | A311-01/02 | משמש לבדיקת קיום תאים |
| אבקת חלב דל שומן ביופרוקס | מדעי הסולארביולוגיה ומדעי השמש טכנולוגיה | D8371 | ממס לתרכובות |
| ערכת CCK-8 | Wisent Biotechnology | 319-105-CL | לתרבית תאים |
| דימתיל סולפוקסיד (DMSO) | APExBIO (ארה"ב) | K1231 | מגיב גילוי WB |
| מדיום סוכר גבוה DMEM | אלאדין ביוכימיה טכנולוגית | G111309 | תרכובת פעילה |
| תגובת ECL כימלומינסצנטית | פרומגה | A6101 | להגברה של qPCR |
| ציטומטר זרימה | מדעי הסולארביולוגיה ומדעי השמש טכנולוגיה | BC6410 | בדיקת פרוקסידציה ליפידית |
| אבקת גסטרודין (GAS), טוהר ו-GE; 98% | MedChemExpress | HY-N6785 | גורם להיפרפוספורילציה של טאו |
| מערכת הדמיית ג'ל | ביוטכנולוגיה ביוטיים | C0221A | שטוף את התאים |
| GoTaq qPCR Master Mix | Proteintech | SA00001-1 | WB, דילול 1:5000 |
| ערכת בדיקת MDA (מלונדיאלדהיד) | Proteintech | SA00001-2 | WB, דילול 1:5000 |
| חומצה אוקדאית (OA) | ATCC | CRL-2266 | תא |
| PBS | ביוטכנולוגיה ביוטיים | S0101M | לבדיקת לחץ חמצוני |
| נוגדן משני (IgG אנטי-עכבר של עזים, מצורף HRP) | מדעי הסולארביולוגיה ומדעי השמש טכנולוגיה | BC1315 | זיהוי קיבולת נוגדי חמצון |
| נוגדן משני (עז אנטי-ארנב IgG, קונjugated-HRP) | Beyotime Biotechnology | R0016 | חילוץ RNA |
| SH-SY5Y | סיגמא-אלדריץ' | 9002-07-7 | עיכול תאים |
| ערכת בדיקת SOD (דיסמוטאז סופראוקסיד טוטאלי) | תרמו פישר סיינטיפיק | A45072 | קורא מיקרופלט רב-תכליתי לזיהוי ספיגה |
| ערכת קיבולת נוגדי חמצון כוללת (T-AOC) | בקטון, דיקינסון ושות' | 661310 | לניתוח תא בודד רב-פרמטרי ומיון תאים. |
| ריאגנט טריזול | תרמו פישר סיינטיפיק | 4351104 | ניתוח ביטוי גנים |
| טריפסין | ביוגרפיה ראד | 1708195 | הדמיית DNA/RNA/ג'ל חלבון |
מקורות
- Hu, X., Wang, T., Jin, F. Alzheimer's disease and gut microbiota. Sci China Life Sci. 59 (10), 1006-1023 (2016).
- Qiu, C., Du, Y. A call for action to strengthen research on population interventions against Alzheimer's disease and senile dementia. J Shandong Univ Health Sci. 55 (10), 1-6 (2017).
- Livingston, G., et al. Dementia prevention, intervention,and care: 2020 report of the Lancet Commission. Lancet. 396 (10248), 413-446 (2020).
- Li, T. F., Guo, Z. Q., Wang, Y. Abnormal ß-amyloid metabolism and Alzheimer disease. J Neurosci Ment Health. 22 (12), 904-908 (2022).
- Zheng, J., et al. Oral administration of a fusion protein between the cholera toxin B subunit and the 42-amino acid isoform of amyloid-β peptide produced in silkworm pupae protects against Alzheimer's disease in mice. PLoS One. 9 (12), e113585(2014).
- La Spada, A. R., et al. A Becn1 mutation mediates hyperactive autophagic sequestration of amyloid oligomers and improved cognition in Alzheimer's disease. PLoS Genet. 13 (8), e1006962(2017).
- Aboelwafa, H. R., El-Kott, A. F., Abd-Ella, E. M., Yousef, H. N. The possible neuroprotective effect of silymarin against aluminum chloride-prompted Alzheimer's-like disease in rats. Brain Sci. 10 (9), 628(2020).
- Tobore, T. O. On the central role of mitochondria dysfunction and oxidative stress in Alzheimer's disease. Neurol Sci. 40 (8), 1527-1540 (2019).
- Kawamoto, E. M., et al. Oxidative state in platelets and erythrocytes in aging and Alzheimer's disease. Neurobiol Aging. 26 (6), 857-864 (2005).
- Stancu, I. C., et al. Aggregated Tau activates NLRP3–ASC inflammasome exacerbating exogenously seeded and non-exogenously seeded Tau pathology in vivo. Acta Neuropathol. 137 (4), 599-617 (2019).
- Connolly, K., et al. Potential role of chitinase-3-like protein 1 (CHI3L1/YKL-40) in neurodegeneration and Alzheimer's disease. Alzheimers Dement. 19 (1), 9-24 (2022).
- Yingquan, W., Jing-Hong, L., Ruixia, J. Alzheimer disease in China (2015-2050) estimated using the 1% population sampling survey in 2015. China J Alzheimers Dis Relat Disord. 2 (1), 289-298 (2019).
- Amat-Ur-Rasool, H., Ahmed, M., Hasnain, S., Carter, W. G. Anti-cholinesterase combination drug therapy as a potential treatment for Alzheimer's disease. Brain Sci. 11 (2), 184(2021).
- Cummings, J., Lee, G., Mortsdorf, T., Ritter, A., Zhong, K. Alzheimer's disease drug development pipeline: 2017. Alzheimers Dement (N Y). 3 (3), 367-384 (2017).
- Birks, J. S., Harvey, R. J. Donepezil for dementia due to Alzheimer's disease. Cochrane Database Syst Rev. 6 (6), CD001190(2018).
- Knopman, D. S., et al. Alzheimer's disease. Nat Rev Dis Primers. 7 (1), 33(2021).
- Silva, T., Reis, J., Teixeira, J., Borges, F. Alzheimer's disease, enzyme targets and drug discovery struggles: from natural products to drug prototypes. Ageing Res Rev. 15, 116-145 (2014).
- Liu, X., Yi, W., Xi, B., Dai, Q., Lu, L. Identification of drug-disease associations using a random walk with restart method and supervised learning. Comput Math Methods Med. 2022 (1), 7035634(2022).
- Yu, N., et al. Ganoderma lucidum triterpenoids (GLTs) reduce neuronal apoptosis via inhibition of ROCK signal pathway in APP/PS1 transgenic Alzheimer's disease mice. Oxid Med Cell Longev. 2020 (1), 1-11 (2020).
- Bao, M., et al. Astragaloside IV against Alzheimer's disease via microglia-mediated neuroinflammation using network pharmacology and experimental validation. Eur J Pharmacol. 957, 175992(2023).
- Dartigues, J. F., et al. Ginkgo biloba extract consumption and long-term occurrence of death and dementia. J Prev Alzheimers Dis. 4 (1), 16-20 (2017).
- Savaskan, E., Mueller, H., Hoerr, R., von Gunten, A., Gauthier, S. Treatment effects of Ginkgo biloba extract EGb 761® on the spectrum of behavioral and psychological symptoms of dementia: meta-analysis of randomized controlled trials. Int Psychogeriatr. 30 (3), 285-293 (2017).
- Wang, D., Liu, W., Lu, M., Xu, Q. Neuropharmacological effects of Gastrodia elata Blume and its active ingredients. Front Neurol. 16, 1574277(2025).
- El Menyiy, N., et al. Chemistry, biological activities,and pharmacological properties of gastrodin: mechanism insights. Chem Biodivers. 21 (6), e202400402(2024).
- Yu, H., et al. Research progress on classification of chemical constituents from Gastrodia elata and their pharmacological effects. Chin Tradit Herbal Drugs. 53, 5553-5562 (2022).
- Tang, C., et al. Comparative pharmacokinetics of gastrodin in rats after intragastric administration of free gastrodin, parishin and Gastrodia elata extract. J Ethnopharmacol. 176, 49-54 (2015).
- Fu, X., et al. Antioxidation effects and mechanism of gastrodin in AD rat models. Acta Anat Sin. 41 (4), 485-490 (2010).
- Shi, R., et al. Gastrodin alleviates vascular dementia in a 2-VO vascular dementia rat model by altering amyloid and Tau levels. Pharmacology. 105 (7-8), 386-396 (2020).
- Fasina, O. B., et al. Gastrodin from Gastrodia elata enhances cognitive function and neuroprotection of AD mice via the regulation of gut microbiota composition and inhibition of neuron inflammation. Front Pharmacol. 13, 814271(2022).
- Zheng, Q., et al. MicroRNA-452 promotes tumorigenesis in hepatocellular carcinoma by targeting cyclin-dependent kinase inhibitor 1B. Mol Cell Biochem. 389 (1-2), 187-195 (2014).
- Yan, J., Yang, Z., Zhao, N., Li, Z., Cao, X. Gastrodin protects dopaminergic neurons via insulin-like pathway in a Parkinson's disease model. BMC Neurosci. 20 (1), 31(2019).
- Xiao, H., et al. Gastrodin promotes hippocampal neurogenesis via PDE9-cGMP-PKG pathway in mice following cerebral ischemia. Neurochem Int. 150, 105171(2021).
- Liu, Y., et al. A review on central nervous system effects of gastrodin. Front Pharmacol. 9, 24(2018).
- Fu, J., et al. Gastrodia elata specific miRNA attenuates neuroinflammation via modulating NF-κB signaling pathway. Int J Neurosci. 134 (12), 1652-1662 (2023).
- Wang, Y., et al. Gastrodin: a comprehensive pharmacological review. Naunyn Schmiedebergs Arch Pharmacol. 397 (6), 3781-3802 (2024).
- Liu, C. M., et al. Effects of gastrodin against lead-induced brain injury in mice associated with the Wnt/Nrf2 pathway. Nutrients. 12 (6), 1805(2020).
- De Oliveira, M. R., Brasil, F. B., Fürstenau, C. R. Nrf2 mediates the anti-apoptotic and anti-inflammatory effects induced by gastrodin in hydrogen peroxide-treated SH-SY5Y cells. J Mol Neurosci. 69 (1), 115-122 (2019).
- Zhang, J. S., et al. Gastrodin suppresses BACE1 expression under oxidative stress condition via inhibition of the PKR/eIF2α pathway in Alzheimer's disease. Neuroscience. 325, 1-9 (2016).
- Jiao, M., et al. Effect of the SSeCKS–TRAF6 interaction on gastrodin-mediated protection against 2,3,7,8-tetrachlorodibenzo-p-dioxin-induced astrocyte activation and neuronal death. Chemosphere. 226, 678-686 (2019).
- Cohen, P., Holmes, C. F., Tsukitani, Y. Okadaic acid: a new probe for the study of cellular regulation. Trends Biochem Sci. 15 (3), 98-102 (1990).
- Qin, Y., et al. Okadaic acid detection through a rapid and sensitive amplified luminescent proximity homogeneous assay. Toxins (Basel). 15 (8), 501(2023).
- Kim, S., et al. PubChem 2023 update. Nucleic Acids Res. 51 (D1), D1373-D1380 (2022).
- Daina, A., Michielin, O., Zoete, V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 47 (W1), W357-W364 (2019).
- Stelzer, G., et al. The GeneCards suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54 (1), 1.30.31-1.30.33 (2016).
- Safran, M., et al. Practical guide to life science databases. , Springer Nature. Singapore. (2021).
- Amberger, J. S., Bocchini, C. A., Schiettecatte, F., Scott, A. F., Hamosh, A. OMIM.org: Online Mendelian Inheritance in Man (OMIM®), an online catalog of human genes and genetic disorders. Nucleic Acids Res. 43 (D1), D789-D798 (2014).
- Szklarczyk, D., et al. The STRING database in 2021: customizable protein–protein networks,and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 49 (D1), D605-D612 (2020).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Tominaga, H., et al. A water-soluble tetrazolium salt useful for colorimetric cell viability assay. Anal Commun. 36 (2), 47-50 (1999).
- Ton, A. M. M., et al. Oxidative stress and dementia in Alzheimer's patients: effects of synbiotic supplementation. Oxid Med Cell Longev. 2020 (1), 2638703(2020).
- Roth, K. A. Caspases, apoptosis,and Alzheimer disease: causation,correlation,and confusion. J Neuropathol Exp Neurol. 60 (9), 829-838 (2001).
- Cheng, M., et al. The effects of Porphyromonas gingivalis on the apoptosis of hippocampal cells in Sprague-Dawley rats and its underlying mechanisms. Int J Clin Exp Med. 13 (1), 300-309 (2020).
- Liu, H., et al. Development of chemical fingerprints for quality control of Xiong Ma Tang and its related preparations by high-performance liquid chromatography. J Chromatogr Sci. 54 (2), 206-215 (2016).
- Liu, S. J., et al. Gastrodin attenuates microglia activation through renin-angiotensin system and Sirtuin3 pathway. Neurochem Int. 120, 49-63 (2018).
- Hu, Y., Li, C., Shen, W. Gastrodin alleviates memory deficits and reduces neuropathology in a mouse model of Alzheimer's disease. Neuropathology. 34 (4), 370-377 (2014).
- Liu, J., et al. Systems pharmacology uncovers the multiple mechanisms of Xijiao Dihuang decoction for the treatment of viral hemorrhagic fever. Evid Based Complement Alternat Med. 2016 (1), 9025036(2016).
- Ran, B., et al. Drug-drug interactions prediction using fingerprint only. Comput Math Methods Med. 2022 (1), 7818480(2022).
- Sharma, V. K., Singh, T. G., Singh, S., Garg, N., Dhiman, S. Apoptotic pathways and Alzheimer's disease: probing therapeutic potential. Neurochem Res. 46 (12), 3103-3122 (2021).
- Zhou, W., Gao, Y., Xu, S., Yang, Z., Xu, T. Purification of a mannose-binding lectin Pinellia ternata agglutinin and its induction of apoptosis in Bel-7404 cells. Protein Expr Purif. 93, 11-17 (2014).
- Goedert, M., Spillantini, M. G., Jakes, R., Rutherford, D., Crowther, R. Multiple isoforms of human microtubule-associated protein tau: sequences and localization in neurofibrillary tangles of Alzheimer's disease. Neuron. 3 (4), 519-526 (1989).
- Hernández, F., Gómez De Barreda, E., Fuster-Matanzo, A., Lucas, J. J., Avila, J. GSK3: a possible link between beta amyloid peptide and tau protein. Exp Neurol. 223 (2), 322-325 (2010).
- Lu, Z., et al. Neuroprotection and mechanism of Gas-miR36-5p from Gastrodia elata in an Alzheimer's disease model by regulating glycogen synthase kinase-3β. Int J Mol Sci. 24 (24), 17295(2023).
- Vossel, K. A., et al. Tau reduction prevents Aβ-induced axonal transport deficits by blocking activation of GSK3β. J Cell Biol. 209 (3), 419-433 (2015).
- Singh, A. K., et al. Berberine: a plant-derived alkaloid with therapeutic potential to combat Alzheimer's disease. CNS Agents Med Chem. 19 (3), 154-170 (2019).
- Belsare, K. D., et al. Soluble TREM2 inhibits secondary nucleation of Aβ fibrillization and enhances cellular uptake of fibrillar Aβ. Proc Natl Acad Sci U S A. 119 (5), e2114486119(2022).
- Matsuda, S., et al. Roles of PI3K/AKT/GSK3 pathway involved in psychiatric illnesses. Diseases. 7 (1), 22(2019).
- Pan, S., et al. Oleanolic acid derivatives induce apoptosis in human leukemia K562 cell involved in inhibition of both Akt1 translocation and pAkt1 expression. Cytotechnology. 67 (5), 821-829 (2014).
- Zhou, F., et al. Network pharmacology-based strategy to investigate pharmacological mechanisms of Tinospora sinensis for treatment of Alzheimer's disease. J Ethnopharmacol. 259, 112940(2020).
- Liu, Z., Wang, Z. Protein tyrosine kinase 2 regulates tau phosphorylation through PI3K/AKT/Gsk3β signaling pathway. Labeled Immunoassays Clin Med. 29 (3), 464-470 (2022).
- Cope, P. J., Ourradi, K., Li, Y., Sharif, M. Models of osteoarthritis: the good, the bad and the promising. Osteoarthritis Cartilage. 27 (2), 230-239 (2019).
- Wang, X., Blanchard, J., Tung, Y. C., Grundke-Iqbal, I., Iqbal, K. Inhibition of protein phosphatase-2A (PP2A) by I1PP2A leads to hyperphosphorylation of tau, neurodegeneration,and cognitive impairment in rats. J Alzheimers Dis. 45 (2), 423-435 (2015).
- Liu, T. T., et al. Gastrodin alleviates Aβ25-35-induced glycolytic dysfunction via activating PI3K/AKT/BACH1 signaling in Alzheimer's disease models. Exp Neurol. 389, 115225(2025).
- Zuo, H. J., et al. Gastrodin regulates PI3K/AKT-Sirt3 signaling pathway and proinflammatory mediators in activated microglia. Mol Neurobiol. 61 (5), 2728-2744 (2024).
- Wang, Y. P., Mandelkow, E. Tau in physiology and pathology. Nat Rev Neurosci. 17, 22-35 (2015).
- Pardridge, W. M. Drug transport across the blood–brain barrier. J Cereb Blood Flow Metab. 32 (11), 1959-1972 (2012).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.