La pittura cromosoma è un metodo utile per studiare l'organizzazione del nucleo cellulare e l'evoluzione del cariotipo. Qui, dimostriamo un approccio per isolare e amplificare specifiche regioni di interesse da singoli cromosomi di politene che vengono successivamente utilizzati per l'ibridazione fluorescente in situ bi-e tridimensionale (FISH).
Articolo metodologico
Pittura cromosoma 2D e 3D nelle zanzare della malaria
In questo articolo
Sommario
Abstract
L'ibridazione fluorescente in situ (FISH) delle sonde cromosomiche intere del braccio è una tecnica robusta per mappare le regioni genomiche di interesse, rilevare riarrangiamenti cromosomici e studiare l'organizzazione tridimensionale (3D) dei cromosomi nel nucleo cellulare. L'avvento della microdisezione di cattura laser (LCM) e dell'amplificazione dell'intero genoma (WGA) consente di ottenere grandi quantità di DNA da singole cellule. La maggiore sensibilità dei kit WGA ci ha spinto a sviluppare vernici cromosomico e ad usarle per esplorare l'organizzazione cromosoma e l'evoluzione in organismi non modello. Qui presentiamo un metodo semplice per isolare e amplificare i segmenti eunuromatici dei singoli bracci cromosomici di politene dalle cellule infermiere ovariane della zanzara malaria africana Anopheles gambiae. Questa procedura fornisce una piattaforma efficiente per ottenere vernici cromosomche, riducendo al contempo il rischio complessivo di introdurre DNA estraneo nel campione. L'uso di WGA consente diversi cicli di ri-amplificazione, con conseguente elevate quantità di DNA che possono essere utilizzate per più esperimenti, tra cui 2D e 3D FISH. Abbiamo dimostrato che le vernici cromosomiche sviluppate possono essere utilizzate con successo per stabilire la corrispondenza tra porzioni eunuromatiche di politene e bracci cromosomici mitotici in An. gambiae. Nel complesso, l'unione di LCM e WGA mono cromosomico fornisce uno strumento efficiente per creare quantità significative di DNA bersaglio per futuri studi citogenetici e genomici.
Introduzione
La pittura cromosomica è una tecnica utile per studiare l'evoluzione dei cariotipi 1-5 e per visualizzare le anomalie citogenetiche attraverso l'ibridazione del DNA cromosomico etichettato fluorescentmente 1,6-8. Questo metodo viene applicato anche allo studio della dinamica 3D dei territori cromosomici nello sviluppo 9 e della patologia 10. Le vernici cromosomico etichettate in modo differenziato sonoutilizzate per la visualizzazione di singoli cromosomi mitotici 11,12,meiotici 13,14o interfase non politene 15,16 e politene 9,11,17 cromosomi. Un protocollo semplice e robusto per ottenere vernici cromosomche sarebbe molto utile per espandere questa tecnica ad organismi non modello, come le zanzare. Il complesso delle Anopheles gambiae è un gruppo di sette zanzare morfologicamente indistinguibili che variano nel comportamento e nell'adattamento, inclusa la capacità di trasmettere la malaria. Queste zanzare fungono da modello eccellente per comprendere meglio l'evoluzione di specie strettamente correlate che differiscono notevolmente nella loro capacità vettoriale. La maggior parte degli studi citogenetici sulle zanzare della malaria sono stati fatti utilizzando cromosomi ben sviluppati e altamente politenizzati (esaminati in 18,19). I modelli di bande leggibili dei cromosomi politene hanno permesso ai ricercatori di dimostrare l'associazione tra inversioni polimorfiche e adattamenti ecologici in Anopheles gambiae 20. Inoltre, le caratteristiche 21 specifiche dei tessuti e delle specie 22 dell'organizzazione cromosomica del politene 3D sono state caratterizzate nel complesso di An. macullipennis. Tuttavia, lo studio dei cromosomi mitotici potrebbe fornire ulteriori informazioni importanti. Ad esempio, un più alto livello di polimorfismo dell'eterocromatina osservato nei cromosomi mitotici è stato correlato con la ridotta attività di accoppiamento e fertilità in An. gambiae 23. La corrispondenza tra i segmenti eunuromatici dei bracci del politene e del cromosoma mitotico potrebbe essere difficile da stabilire solo confrontando le loro lunghezze relative. Questo perché l'eterocromatina costituisce una porzione significativa dei cromosomi mitotici, ma è sottorappresentata nei cromosomi politene 24. La disponibilità di vernici cromosomiche per le zanzare della malaria consentirebbe ai ricercatori di espandere significativamente gli studi citogenetici includendo altre specie, riducendo sostanzialmente il costo e il tempo nelle analisi dell'evoluzione cariotipica e della dinamica 3D dei cromosomi in questo gruppo di insetti epidemiologicamente importanti.
Al fine di ottenere grandi tratti di cromosomi, la microdisezione è diventata una tecnica integrale per manipolare e isolare specifiche regioni di interesse del complemento cromosomico. Se accoppiata con l'amplificazione dell'intero genoma (WGA), la microdisezione si traduce in potenti applicazioni a valletracui FISH 11,12 e sequenziamento del genoma di nuova generazione 25-27. In precedenza, la tecnica richiedeva l'uso di aghi specializzati di microdisezione che dovevano essere controllati manualmente da un utente esperto 28. L'avanzamento della microdisezione di cattura laser (LCM) ha portato a uno strumento semplificato più adatto per isolare singole cellule 29,30 o singoli cromosomi 31-33 con un ridotto rischio di contaminazione. Questo approccio consente all'utente di studiare le eterogeneità genetiche e le anomalie cromosomiche che si verificano in singole cellule, invece di un panorama di consenso che deriva dalla messa in comune di più cellule insieme 34-36. Sono stati utilizzati diversi metodi per amplificare il DNA prodotto dalla microdisezione. DOP-PCR, una tecnica utile per l'amplificazione di sequenze altamente ripetitive, è stata utilizzata per amplificare i cromosomi microdissecati da specie tra cui la cavalletta 37,l'anguilla spinosa 38e la tilapia del Nilo 39. Più recentemente, il kit GenomePlex WGA4 Single Cell basato su PCR e il kit repli-g single cell basato sull'amplificazione a spostamento multiplo (MDA) sono diventati strumenti preziosi per esperimenti che coinvolgono l'analisi genetica di singole cellule umanee cromosomi 40-42,inclusi i sistemi cromosomici B nelle cavallette 37 e locuste 43. Questi due kit hanno ciascuno vantaggi e svantaggi, ma la loro apparente superiorità rispetto ad altri sistemi di amplificazione disponibili è stata dimostrata 44.
La quantità di DNA che può essere ottenuta da un singolo cromosoma o da un segmento cromosomico è significativamente inferiore a quella di un intero nucleo. Pertanto la microdisezione, l'amplificazione e la successiva analisi di un singolo cromosoma sono molto più impegnative, specialmente negli organismi con piccoli genomi come in Drosophila o Anopheles. Sebbene le vernici siano state sviluppate da singoli cromosomi microdissecati di un umano 33 e una vespa 45,un esperimento FISH di successo ha richiesto più (almeno 10-15) cromosomi mitotici microdissecati di una mosca della frutta 11. Tuttavia, la capacità di microseleggere e amplificare un singolo cromosoma sarebbe importante per (i) ridurre la possibilità di contaminazione con materiale proveniente da un cromosoma diverso, (ii) ridurre al minimo il numero di preparati cromosomici necessari per la microdisezione, (iii) abbassare il nucleotide e il polimorfismo strutturale del campione microsacrato sia nelle applicazioni FISH che sequenziando le applicazioni a valle. I cromosomi polytene presenti in molte specie di Ditteri offrono un'opportunità unica di acquisire una quantità iniziale di DNA molto più elevata. Forniscono anche una risoluzione più elevata e una struttura cromosoma che non può essere raggiunta attraverso l'uso di cromosomi mitotici. Questa risoluzione aggiunta può essere fondamentale per visualizzare riarrangiamenti cromosomici, struttura della cromatina e segmenti cromosomici da microdissacrare 28,46.
Qui presentiamo una procedura per isolare efficacemente un segmento eufomatico da un singolo braccio cromosomico di politene, amplificare il DNA e usarlo nelle applicazioni FISH a valle nelle zanzare della malaria. In primo luogo, applichiamo LCM per isolare ed estrarre un singolo braccio cromosomico da diapositive a membrana appositamente preparate. In secondo luogo, il WGA viene utilizzato per amplificare il DNA dal materiale microdissecato. In terzo luogo, ibridamo il DNA amplificato negli esperimenti FISH ai preparati di politene squash 47, alle diapositive cromosome metafase e interfase 48, nonché ai campioni di supporto intero ovarico 3D. Questa procedura è stata fatta per dipingere con successo la maggior parte dell'eucromatina in braccia cromosomiche di An. gambiae.
Protocollo
1) Preparazione dello scivolo cromosomico di Polytene per la microdisezione di cattura laser
- Seziona le femmine di anopheles semi-gravide a 25 ore di alimentazione post-sangue. Fissare le ovaie di circa cinque femmine in 500 μl di soluzione di Carnoy fresca modificata (100% metanolo: acido acetico glaciale, 3:1) a temperatura ambiente per 24 ore. Trasferire le ovaie a -20 °C per una conservazione a lungo termine.
- Preparare la soluzione di Carnoy (100% etanolo: acido acetico glaciale, 3:1) e acido propionico al 50% poco prima di fare scivoli cromosomici.
- Posizionare un paio di ovaie in una goccia della soluzione di Carnoy su uno scivolo a membrana in PET Zeiss 1.0. A seconda delle dimensioni, dividere le ovaie in circa 2-4 sezioni con aghi sezionanti e posizionarle in una goccia di acido propionico al 50% su vetrini puliti sotto un microscopio a dissezione.
- Separare i follicoli e rimuovere il tessuto rimanente usando un tovagliolo di carta sotto uno stereomicroscopio a dissezione. Aggiungere un nuovo calo di acido propionico al 50% ai follicoli e consentire loro di sedersi per 3-5 minuti a temperatura ambiente.
- Posizionare una coverslip siliconizzata sopra la goccia. Lasciare riposare lo scivolo per circa 1 minuto.
- Coprire il vetrino con un materiale assorbente (la carta da filtro viene utilizzata per questo metodo) e, durante l'utilizzo del lato gomma di una matita, applicare una generosa quantità di pressione sul copricapo toccandolo ripetutamente con la gomma.
- Riscaldare lo scivolo a 60 °C su un sistema di denaturazione/ibridazione dello scivolo per 15-20 minuti per aiutare ad appiattire i cromosomi di politene. Posizionare gli scivoli in una camera umida a 4 °C durante la notte per consentire all'acido di appiattire ulteriormente i cromosomi.
- Posizionare i vetrini a freddo 50% di etanolo per 10 minuti. Rimuovere delicatamente il coverslip e sostituire a freddo il 50% di etanolo per altri 10 minuti.
- Scivoli disidratati nel 70%, 90%, 100% etanolo per 5 minuti ciascuno. Scivoli ad aria asciutta.
- Preparare una soluzione di soluzione tampone GURR aggiungendo una singola compressa tampone a 1 L di acqua distillata. autoclave.
- Preparare la soluzione di Giemsa aggiungendo 1 ml di soluzione di colorazione Giemsa a 50 ml di tampone GURR.
- Posizionare gli scivoli essiccati all'aria nella soluzione Giemsa per 10 minuti e lavare tre volte in 1X PBS. L'aria secca scivola di nuovo in un clima sterile controllato per evitare contaminazioni.
2) Microdissezione di cattura laser di un singolo braccio cromosomico di politene
Questa sezione descrive in dettaglio l'utilizzo del software PALMRobo, fornito con il sistema palm MicroBeam Laser Microdissection.
- Pulire il microscopio con etanolo al 100%. Sterilizzare guanti e tubi con una luce UV in un reticegliatore UV.
- Accendi il microscopio a microdisezione laser PALM MicroBeam e accendi il laser. Aprire la suite di dissezione laser PALMRobo e configurare le impostazioni "Power" e "Focus" in base alle esigenze.
- Cerca il braccio cromosomico di politene di interesse.
- Utilizzando lo strumento "Matita", delineare l'area selezionata.
- Aprire la "finestra Elementi" dalla barra dei menu.
- Selezionate l'elemento "Disegnato", assicurate di aver selezionato "Taglia".
- Installare il tubo del cappuccio adesivo nel supporto e posizionarlo sopra lo scivolo, lasciando un piccolo spazio di <1 mm di dimensioni, e avviare il taglio laser.
- Posizionare la "selezione catapulta" all'interno del sito di taglio, lasciando spazio tra il bordo e il cromosoma.
- Selezionare "LPC" dall'opzione a discesa e iniziare a catapultare.
- Verificare che il campione sia stato catapultato in cappuccio premendo l'icona "Occhio".
3) Purificazione del DNA da un singolo braccio cromosomico in politene microdissecato
Seguire le istruzioni del QIAamp DNA Micro Kit per rilasciare e purificare il DNA raccolto. Il passaggio 3.1 è stato modificato per adattarsi al tubo invertito.
- Aggiungere 15 μl Tampon ATL e 10 μl proteinasi K al tubo invertito (all'interno del tappo) e incubare a 56 °C per 3 ore.
- Aggiungere 25 μl tampone ATL, 50 μl buffer AL, e 1 μl RNA portante; aggiungere 50 μl 100% EtOH; mescolare.
- Trasferire il lysate nella colonna QIAamp; centrifuga. Lavare aggiungendo tampone AW1 da 500 μl; centrifuga. Posizionare la colonna nel nuovo tubo di raccolta, aggiungere 500 μl tampone AW2; centrifuga. Posizionare la colonna in un nuovo tubo; centrifuga per rimuovere il liquido in eccesso.
- Posizionare la colonna in un tubo di microcentrifugo da 1,5 μl e aggiungere 20 μl di acqua per eludere; centrifuga.
- Evaporare il DNA appena eluito fino a un volume finale di 9 μl usando unfugo sottovuoto.
4) Amplificazione del DNA da un singolo braccio cromosomico di politene microdissecato
Due diversi protocolli sono stati utilizzati per la WGA di un singolo braccio cromosomico.
- Amplificazione del DNA e preparazione della sonda tramite GenomePlex WGA
- Segui il protocollo GenomePlex Single Cell WGA4 Kit per produrre il primo lotto di DNA amplificato:
- Aggiungere la soluzione proteica k preparata al campione da 9 μl; incubare il DNA a 50 °C per 1 ora, quindi riscaldare a 99 °C per 4 min. Tieniti sul ghiaccio.
- Aggiungere 2 μl 1X tampone di preparazione della libreria a cella singola e 1 μl di soluzione di stabilizzazione della libreria; campione di calore a 95 °C per 2 min. Raffreddare su ghiaccio e centrifuga.
- Aggiungere 1 μl di enzima di preparazione della biblioteca; mescolare e centrifugare. Incubare come segue:
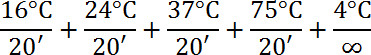
- Aggiungere 7,5 μl 10X Amplification Master Mix, 48,5 μl di acqua. 5,0 μl WGA DNA polimerasi; mescolare e centrifugare.
- Termociclo come segue:
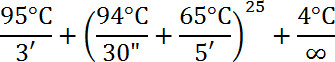
- Purificare il DNA utilizzando il Kit Genomic DNA Clean & Concentrator. Il protocollo è il seguente:
- Aggiungere il campione di DNA-DNA binding buffer:DNA 5:1 (specifico per dna genomico inferiore a 2 kb. Se il DNA del campione è maggiore di 2 kb, utilizzare un rapporto 2:1) e trasferirlo alla colonna di spin fornita. centrifuga.
- Aggiungere tampone di lavaggio del DNA da 200 μl e centrifuga. Ripetere il passaggio di lavaggio. Quindi, aggiungere 50 μl di acqua ed elutare il DNA in un nuovo tubo da 1,5 ml.
- Riamplificare il DNA campione utilizzando il GenomePlex WGA3 Reamplification Kit come segue:
- Aggiungere 10 μl di DNA al tubo PCR (il kit consiglia 10 ng totali di DNA) con 49,5 μl di acqua, 7,5 μl 10x Amplification Master Mix, 3,0 μl 10 mM di miscela DNTP e 5,0 μl WGA DNA Polimerasi. Mescolare e centrifugare.
- Utilizzare il seguente profilo per la reazione:
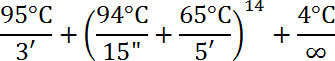
- Conservare il DNA a -20 °C.
- Etichettare il DNA per FISH utilizzando il GenomePlex WGA3 Reamplification Kit come segue:
- Creare un mix master dal Kit di ricampionamento GenomePlex WGA3 aggiungendo 10 μl di DNA al tubo PCR con acqua da 49,5 μl, 7,5 μl 10X Amplification Master Mix, 3,0 μl 1 mM dNTP mix (1 mM di dATP, dCTP, dGTP, 0,3 μl 1 mM dTTP - se si utilizza dUTP etichettato), 1 μl di 25 nM etichettato dUTP , e 5,0 μl WGA DNA Polimerasi.
- Utilizzare il seguente profilo per la reazione:
- L'etanolo precipita la sonda etichettata aggiungendo 1/10 del volume di reazione finale (7,5 μl per reazione di 75 μl) di 3 M acetato di sodio pH 5.2 e 2-3 volumi di etanolo al 100%. Raffreddare il campione di DNA a -80 °C per almeno 30 minuti.
- Centrifugare il campione a 4 °C per 10 minuti per creare pellet etichettato e rimuovere il pellet supernatante e asciutto all'aria.
- Creare il buffer di ibridazione come segue:
0,2 g Disgrasso di Dextran
1200 μl Formamide deionizzata
580 μl H2O
120 μl 20X SSC - Aggiungere 40 μl di tampone di ibridazione al pellet essiccato all'aria.
- Segui il protocollo GenomePlex Single Cell WGA4 Kit per produrre il primo lotto di DNA amplificato:
- Amplificazione del DNA e preparazione della sonda tramite REPLI-G Single Cell WGA seguita da nick-translation
- Segui il protocollo REPLI-g Single Cell WGA Kit per produrre il DNA amplificato:
- Preparare il buffer D2 (3 μl di 1 M DTT + 33 μl Buffer DLB).
- Mescolare 4 μl di materiale microdissecato purificato con 3 μl Buffer D2. Tubo di film da mescolare. Incubare per 10 min a 65 °C. Aggiungere 3 μl di soluzione di arresto; mescolare.
- Aggiungere 9 μl H2O, 29 μl REPLI-g Reaction Buffer e 2 μl di REPLI-g DNA Polimerasi al campione. Incubare a 30 °C per 8 ore. Inattivare la DNA polimerasi riscaldando a 65 °C per 3 min. Conservare il DNA a -20 °C.
- Segui il protocollo di traduzione nick per etichettare il DNA amplificato REPLI-g:
- Preparare la seguente combinazione di etichette:
1 μg di DNA amplificato
Tampone di DNA polimerasi 5 μl 10X
5 μl 10X dNTP
5 μl 1X BSA
1 μl 1 mM Etichettato dNTP
4 μl 1 U/μl DNasi I
1 μl 10 U/μl DNA polimerasi I
DaH 2O a 50 μl - Incubare a 15 °C per 2 ore. Aggiungere 2 μl di EDTA da 0,5 M per interrompere la reazione. Controlla le dimensioni dei frammenti di DNA correndo sul gel.
- Seguire i passaggi dal 4.1.4.3-4.1.4.6 per precipitare e solubilizzare il pellet.
- Preparare la seguente combinazione di etichette:
- Segui il protocollo REPLI-g Single Cell WGA Kit per produrre il DNA amplificato:
5) PESCE 2D su preparati di zucca del politene e cromosomici mitotici
Si prega di fare riferimento a protocolli dettagliati per FISH sui preparati di politene squashes 47 e diapositive cromosomtiche mitotiche 48. Qui forniamo brevi protocolli.
- FISH su preparati per zucca cromosomici di politene
- Immergere le diapositive in 1X PBS per 20 minuti a RT. Correggere le diapositive in paraformaldeide al 4% in 1X PBS per 1 min.
- Scivoli disidratati attraverso lavaggi di etanolo: 50%, 70%, 90%, 100% per 5 minuti ciascuno a RT. Scivoli ad aria secca.
- Prewarm la sonda in tampone di ibridazione a 37 °C. Aggiungere 10-20 μl di sonda per far scorrere. Coperchio con coperchio da 22 X 22 mm. Premere eventuali bolle d'aria utilizzando una punta di pipetta.
- Cromosomi denaturati e sonda a 90 °C per 10 min. Bordi di tenuta di coverslip con cemento di gomma. Trasferire lo scivolo in camera umida e incubare a 39 °C durante la notte.
- Lavare gli scivoli con 1X SSC a 39 °C per 20 min. Lavare le diapositive con 1X SSC a RT per 20 minuti. Risciacquare le diapositive in 1X PBS, quindi aggiungere Prolunga anti-dissolvenza con DAPI. Coprire con coverlip e archiviare in una casella di scorrimento a 4 °C per almeno un'ora prima della visualizzazione.
- FISH sui preparati mitotici cromosomici
- Estrarre cromosomi mitotici da dischi immaginari di 4th larva instar di An. gambiae.
- Preparare diapositive cromosomtiche adatte a FISH.
- Aggiungere 2-3 μl di sonda di DNA etichettata al tampone di ibridazione in un tubo e mescolare delicatamente pipettando.
- Applicare 10 μl della miscela di sonda sul vetrino e coprire con un coverslip da 22 X 22 mm. Premere eventuali bolle d'aria utilizzando una punta di pipetta.
- Per la controsottenzione e il rilevamento, applicare Prolunga anti-dissolvenza con DAPI alla preparazione e rimanere al buio per almeno un'ora prima della visualizzazione.
6) PESCE 3D su tessuto ovarico a montaggio intero
- Preparare la combinazione buffer A seguente:
60 mM KCl
15 mM NaCl
0,5 mM spermidina
0,15 mM Spermina
2 mM EDTA
0,5 mM EGTA
TUBI DA 15 mM - Preparare le diapositive per la visualizzazione nucleare aggiungendo uno strato di smalto in un motivo quadrato in modo che corrisponda alle dimensioni dei copripavimenti. Ciò crea una superficie rialzata per evitare la schiacciamento dei nuclei quando si posiziona su coverslip in futuro.
- Sezionare le ovaie fresche delle femmine dello stadio 3 di Christopher e conservare in una soluzione di 150-250 μl Tampone A con 0,5% di digitonina. Eseguire ago di dissezione più grande sui follicoli (in tubo con buffer A con 0,5% di digitonina) per distruggere la membrana follicolare.
- Vortice per 5-10 minuti per disturbare ulteriormente i follicoli. Raschiare eventuali pezzi follicolari di grandi dimensioni e tubo di centrifuga per 30 secondi all'impostazione più bassa di ~ 500 giri al minuto (RPM). Trasferire il supernatante in un nuovo tubo Eppendorf da 2 ml e aggiungere 100 μl di Tampone A. Ripetere il passaggio 6.3 tra 5-7 volte, fino a quando il tessuto visibile non viene rotto in piccole particelle.
- Ruota entrambi i tubi per 10 minuti a 2.000 giri/min. Scartare il supernatante in entrambi i tubi. Nota: entrambi i tubi verranno utilizzati per realizzare diapositive finali di visualizzazione nucleare. Il tubo con supernatante raccolto dovrebbe contenere principalmente nuclei estratti, mentre il tubo originale con tessuto conterrà una miscela di tessuto e nuclei incorporati nelle cellule di alttanti. Aggiungere 200 μl di Tampone A - 0,1% Tritone e incubare durante la notte a 4 °C. Centrifugare 5 min a 10.000 giri/min (10.621 x G) e rimuovere il supernatante.
- Aggiungere 200 μl 4% di paraformaldeide in PBS. Incubare in termomisore per 30 minuti, mescolando a 450 giri/min. Centrifugare 5 min a 5.000 giri/min (2.655 x G) e rimuovere il supernatante. Lavare con tampone A con 0,1% Tritone per 5 min, mescolando a 450 giri/min in thermomixer. Centrifugare 5 min a 5.000 giri/min (2.655 G) e rimuovere il supernatante.
- Aggiungere la sonda prerifascita a 37 °C etichettata sul tubo. Denatura a 95 °C in termomixer, miscelazione a 450 giri/min, per 10 min. Continuare la denaturazione a 80 °C per 15 minuti con miscelazione continua. Incubare a 37 °C in termomisore, con miscelazione a 450 giri/min durante la notte. Centrifuga 5 min a 5.000 giri/min (2.655 x G). Rimuovere il supernatante.
- Lavare con tampone A con 0,1% Tritone per 5 min. Centrifuga 5 min a 5.000 giri/min (2.655 x G). Ripetere 2 volte. Applicare la goccia di Prolunga anti-dissolvenza con DAPI.
- Pipet fuori nuclei/soluzione DAPI con attenzione (evitando bolle), applicare su scivolo e coprire con coverslip.
Risultati
La figura 1 descrive il flusso complessivo del protocollo descritto in questo articolo. L'utente inizia inizialmente microdissecando campioni di DNA cromosomico da diapositive a membrana. Il materiale microdissecato viene estratto e purificato. Il DNA purificato viene quindi amplificato, ri-amplificato, etichettato e quindi utilizzato per FISH per etichettare le diffusioni cromosomtiche.
Il protocollo LCM può essere suddiviso in tre fasi complessive: 1) Trovare cromosomi di interesse e preparare la regione per iltaglio (Figura 2A),2) Taglio e catapultazione della regione cromosomica di interesse tramite laser (Figura 2B) e 3) Controllo per determinare se il campione è effettivamente catapultato in tappo adesivo(Figura 2C). Il processo di LCM utilizzato sui cromosomi politene a tensione An. gambiae Sua è mostrato nel Video 1. Il video descrive in dettaglio l'intero processo dall'avvio del programma, incluse importanti funzioni software e suggerimenti.
I kit WGA a cella singola GenomePlex e REPLI-g utilizzati in questo protocollo differiscono notevolmente per le dimensioni del prodotto risultanti e la resa complessiva. La figura 3 mostra i risultati dell'elettroforesi del gel eseguito per i kit GenomePlex e REPLI-g, nonché la quantificazione dei campioni da parte di Nanodrop.
Il materiale microdissecato è stato utilizzato per creare sonde FISH che prendono di mira le regioni eunucomatiche di un cromosoma. La figura 4 mostra FISH di cinque sonde generate da materiale microsacrato su cromosomi di politene di An. gambiae. Quattro bracci autosomici sono stati etichettati con tre fluorofori usando il kit WGA3: il cromosoma 3R è etichettato in verde (fluoresceina), il cromosoma 3L è in una miscela di rosso (Cy-3) e giallo (Cy-5), il cromosoma 2R è in giallo (Cy-5) e il cromosoma 2L è in rosso (Cy-3). Il cromosoma X è stato etichettato in arancione (Cy-3) usando la nick-traduzione del materiale REPLI-g in un esperimento separato. Per stabilire la corrispondenza tra porzioni eunucomatiche di bracci cromosomici politene e mitotici, le vernici cromosomiche sono state ibridate per interfase, propase, prometafase e cromosomi metafase di An. gambiae (Figura 5). Per visualizzare l'organizzazione 3D di un singolo braccio cromosomico di politene nel nucleo cellulare, l'intero supporto FISH è stato eseguito su cellule di infermiera ovarica ceppo An. gambiae Sua (Video 2). Territori del braccio cromosomico distinti sono chiaramente visti nei nuclei con cromosomi interfase(Figura 5D)e politene (Video 2).
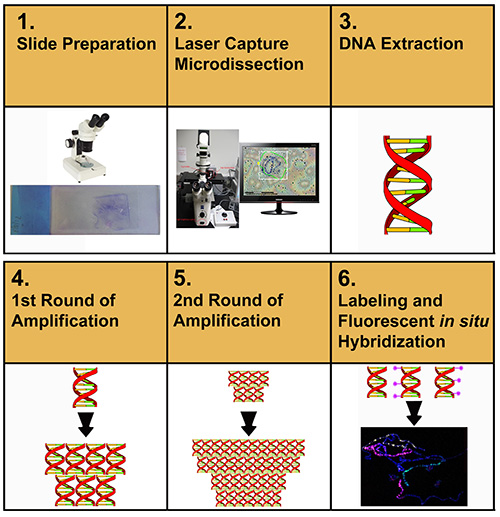
Figura 1. Rappresentazione schematica delle procedure sperimentali verso la preparazione delle vernici cromosomtiche. Clicca qui per visualizzare l'immagine più grande.

Figura 2. I passi principali nella microdisezione cromosomica. A) Taglio laser-assistito della regione cromosomica di interesse attraverso la membrana. B) La membrana con un foro dopo la catapultazione. C) La vista del pezzo catapultato della membrana con un segmento cromosomico in esso attaccato al cappuccio adesivo. La freccia indica l'eterocromatina del cromosoma X che è rimasta sulla diapositiva. L'asterisco mostra un pezzo di un altro cromosoma che è rimasto sulla diapositiva. Clicca qui per visualizzare l'immagine più grande.
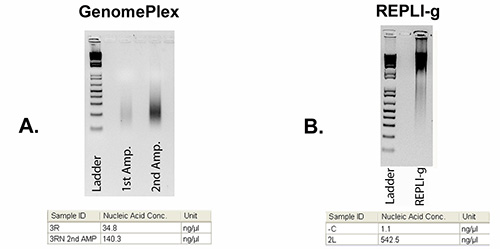
Figura 3. Immagini in gel di agarosio che mostrano il DNA dopo la WGA. A) Dna a basso peso molecolare (200-500 bp) dal braccio 3R dopo aver utilizzato i kit GenomePlex WGA4 e WGA3. B) DNA ad alto peso molecolare (10-20 kb) dal braccio 2L dopo l'amplificazione REPLI-g. La scala da 100 bp è mostrata nelle corsie di sinistra. Le tabelle seguenti mostrano le concentrazioni di DNA misurate da Nanodrop. Clicca qui per visualizzare l'immagine più grande.
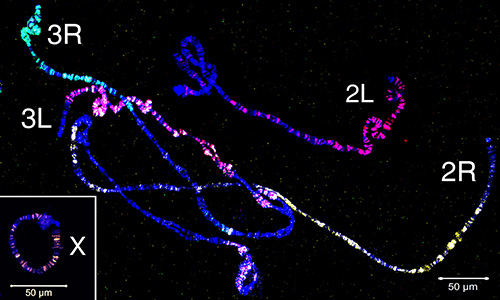
Figura 4. Pittura di cromosomi politene da cellule di infermiere ovarica di An. gambiae utilizzando quattro sonde generate da materiale microdissecato. Il cromosoma X è etichettato in arancione (Cy-3) mediante nick-traduzione del materiale REPLI-g. Il braccio 2R è etichettato in giallo (Cy-5); il braccio 2L è in rosso (Cy-3); il braccio 3R è etichettato in verde (fluoresceina); il braccio 3L è etichettato in una miscela di rosso (Cy-3) e giallo (Cy-5). Gli autosomi sono etichettati con il kit di amplificazione WGA3. La cromatina è macchiata di blu (DAPI). I nomi cromosomici sono posizionati vicino alle regioni telomeriche. Clicca qui per visualizzare l'immagine più grande.
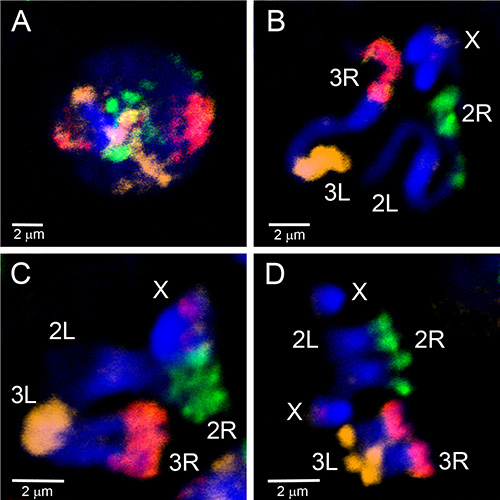
Figura 5. Verniciatura di cromosomi interfase (A), prophase (B), prometafase (C) e metafase (D) da dischi imaginali larvali del ceppo An. gambiae Mopti utilizzando tre sonde generate da materiale microdissecato etichettato da WGA3. Il braccio 2R è etichettato in verde (fluoresceina); il braccio 2L non è etichettato; il braccio 3R è in rosa, una miscela di rosso (Cy-3) e arancione (Cy-5); il braccio 3L è etichettato in arancione (Cy-5). Il cromosoma X ha un'etichetta rossa corrispondente alla sonda rDNA 18S. La cromatina è macchiata di blu (DAPI). Le regioni dei cromosomi macchiate brillantemente corrispondono all'eterocromatina. Clicca qui per visualizzare l'immagine più grande.
Video 1. Il processo di LCM dei cromosomi Politene An. gambiae. Clicca qui per visualizzare il video 1.
Video 2. Intero supporto 3D FISH eseguito su cellule infermiere ovare An. gambiae. La sonda è etichettata in Cy-3 (raffigurata in blu) ed è stata realizzata con un braccio cromosomico 2R microdissecato. La cromatina era macchiata di DAPI ed è raffigurata da pseudocolorazione ciano (azzurro). Clicca qui per visualizzare il video 2.
Discussione
Ci sono più passaggi fondamentali per amplificare con successo il DNA da campioni cromosomici di politene microdissecati. Il protocollo utilizza l'uso di LCM, un metodo che aumenta l'efficienza complessiva e riduce l'esposizione al DNA estraneo rimuovendo l'interazione degli strumenti fisici con il campione. Tuttavia, l'amplificazione del DNA estraneo è ancora la più grande insidia potenziale di questo esperimento. Pertanto, durante l'intero processo, è essenziale proteggere i campioni dalla contaminazione. Durante le fasi di preparazione dello scivolo e microdisezione, è essenziale lavare aghi di dissezione di lavaggio dell'etanolo, scivoli, scivolamenti di copertura e spazio di lavoro. Si consiglia inoltre ai raggi UV di trattare tutte le apparecchiature applicabili (aghi, scivoli, coverlips) prima dell'uso.
La membrana sulle diapositive di dissezione rende molto difficile la diffusione dei cromosomi. È importante utilizzare più ovaio (da metà a un paio completo di ovaie) quando si fanno queste diapositive, per fornire una maggiore possibilità di trovare un nucleo ben diffuso. Si consiglia inoltre di utilizzare tessuti freschi durante la creazione di diapositive, poiché i tassi di amplificazione sembrano scendere man mano che i tessuti hanno 49 anni e la diffusione cromosoma diventa più impegnativa. La preparazione delle diapositive per la microdisezione è il passaggio più dispendioso in termini di tempo in questo protocollo. I cromosomi devono essere ben diffusi per evitare l'acquisizione accidentale di materiale indesiderato. La colorazione Giemsa consente all'utente di controllare la qualità della diffusione con un microscopio a contrasto di fase prima di utilizzare il sistema di microdisezione.
La combinazione di microdissezione e amplificazione offre l'opportunità di estrarre e analizzare frammenti cromosomici di dimensioni che vanno da piccole regioni di interesse alla maggior parte delle braccia. Questo protocollo consente all'utente di ottenere DNA da regioni morfologicamente distinte come inversioni, specifiche bande e uchromatiche e interbandi, eterocromatina telomerica, centromerica e intercalare. L'utente può applicare le sonde di pittura generate all'esame dei cromosomi aberranti, allo studio dell'omologia tra specie in particolari loci o alla caratterizzazione dell'organizzazione spaziale dei cromosomi in un nucleo 3D intatto. Per lo sviluppo di vernici cromosomiche, abbiamo selezionato segmenti eucromatici per evitare l'ibridazione di DNA ripetitivo con più regioni cromosomiche. Di conseguenza, abbiamo ottenuto una pittura specifica per braccio senza usare un concorrente, come il DNA genomico totale o la frazione di DNA C0t-1.
Abbiamo scelto di utilizzare i kit GenomePlex WGA e REPLI-G basati su recensioni che hanno confrontato l'efficienza e il tasso di abbandono di più kit di amplificazione 40,44. Entrambi i kit hanno ottenuto il meglio tra i metodi disponibili in entrambi i drop-out rate (GenomePlex ha avuto un tasso del 12,5% rispetto al 37,5% di REPLI-g) e percentuale di marcatori amplificati (GenomePlex aveva un tasso di amplificazione del 45,24% rispetto al 30,0% di REPLI-g) 40. Il kit GenomePlex ha anche fornito una maggiore quantità di DNA, e quindi lo ha reso un candidato migliore per più tecniche a valle. È disponibile anche un kit di ri-amplificazione per il sistema GenomePlex, che consente un'ulteriore amplificazione del DNA. Tuttavia, è importante notare che l'amplificazione non è perfetta. Resta la possibilità che un'amplificazione riuscita possa introdurre errori o avere un pregiudizio verso loci specifici nel DNA bersaglio. È importante considerare la dimensione finale del frammento dei metodi di amplificazione del genoma disponibili. La frammentazione GenomePlex si traduce in una libreria con frammenti che vanno da 200-500 bp, mentre il kit REPLI-g produce frammenti di circa 10-20 kb di dimensioni. L'applicazione a valle prevista di questo protocollo è FISH, rendendo così il kit GenomePlex un'opzione più fattibile, in quanto forniva la dimensione del frammento desiderata e la capacità di etichettare i frammenti di DNA direttamente attraverso WGA. Le molecole di DNA lunghe prodotte dall'amplificazione REPLI-g devono essere frammentate nella reazione di etichettatura a valle della traduzione.
Questo protocollo è stato adattato per amplificare con successo il DNA da un singolo braccio cromosomico di politene. Altri protocolli richiedono la messa in comune di molti frammenti cromosomici (tipicamente 10-30) al fine di amplificare con successo il campione 7,11,28,40. Sebbene la messa in comune di cromosomi multipli sia possibile utilizzando il nostro metodo, l'aumento della probabilità di contaminazione del campione sottolinea l'importanza di iniziare l'esperimento con il minor numero possibile di cromosomi. Se i cromosomi politene non sono disponibili, il nostro protocollo potrebbe essere adattato per l'uso nei cromosomi mitotici. Può essere necessario, tuttavia, mettere in comune 10-15 cromosomi mitotici prima dell'amplificazione per il successo FISH 11. La distorsione di amplificazione è inferiore con elevate quantità di DNA modello iniziale 50. I cromosomi polytene forniscono circa 512 copie di una singola sequenza di DNA e 1024 copie di due sequenze di DNA omologhe. Pertanto, mettere in comune i cromosomi mitotici aiuterà ad aumentare la qualità complessiva del prodotto del DNA dopo l'amplificazione.
Questa procedura ha molti usi potenziali negli studi citogenetici e genomici. Qui, abbiamo usato vernici cromosomiche per stabilire la corrispondenza tra segmenti eunuromatici di politene e bracci cromosomici mitotici in An. gambiae. Le stesse sonde pittoriche possono essere applicate alla caratterizzazione citogenetica delle linee cellulari di An. gambiae. Ampi riarrangiamenti genomici e cambiamenti nei numeri cromosomici sono caratteristiche comuni delle linee cellulari 51,52. Riarrangiamenti aneuploidici, poliploidi e cromosomici come traslocazioni, inversioni, derelezioni e cromosomi ad anello sono stati rilevati in diverse linee cellulari di zanzara 53,54. Le osservazioni citogenetiche classiche 55 e la mappatura fisica 56 hanno dimostrato la presenza di traslocazioni cromosomiche a braccio intero nell'evoluzione delle zanzare della malaria. Pertanto, il materiale microdissecato può essere utilizzato in combinazione con esperimenti FISH per confrontare l'omologia delle regioni cromosomiche tra le specie. Abbiamo eseguito con successo 3D FISH con la sonda di verniciatura 2R sui cromosomi di politene in cellule infermieristiche ovariane a montaggio intero. Questo metodo faciliterà il tracciamento delle traiettorie cromosomici e lo studio dell'architettura nucleare in Anopheles. Tecniche come il genotipizzazione del DNA 57,58, il sequenziamento del genoma di nuova generazione 26,27, lo sviluppo fisico e della mappa di collegamento e la generazione di sonde per la pittura cromosomica 33,59 possono tutti beneficiare della microdisezione specifica del braccio e della regione. Combinando la tecnologia LCM e avanzando il WGA a una cellula, dimostriamo un metodo efficiente e pratico per produrre quantità ragionevoli di DNA da un singolo braccio cromosomico di politene.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Questo lavoro è stato sostenuto dalla sovvenzione dei National Institutes of Health 1R21AI094289 a Igor V. Sharakhov
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Acido acetico | Fisher Scientific | A491-212 | |
| Metanolo | Fisher Scientific | A412-4 | |
| Acido propionico | Sigma-Aldrich | 402907 | |
| Vetrini a membrana 1.0 PET | Zeiss | 415190-9051-000 | |
| Compresse tampone " GURR" | Life Technologies | 10582-013 | |
| KaryoMAX Giemsa Stain | Life Technologies | 10092-013 | |
| Sistema di denaturazione/ibridazione dei vetrini ThermoBrite | Abbott Molecular | 30-144110 | |
| Concentratore sottovuoto a vuoto | Eppendorf | 22820001 | |
| Spectroline Crosslinker UV controllato da microprocessore XL-1000 | Fisher Scientific | 11-992-89 | |
| Thermo Scientific | Nano Drop Fisher Scientific | ND-2000 | |
| REPLI-g Kit a cellula singola | Qiagen | 150343 | |
| GenomePlex Kit a cellula singola (WGA4) | Sigma-Aldrich | WGA4-10RXN | |
| GenomeKit di riamplificazione Plex WGA (WGA3) | Sigma-Aldrich | WGA3-50RXN | |
| MZ6 Leica stereomicroscopio | Leica | VA-OM-E194-354 | È possibile utilizzare uno stereomicroscopio diverso |
| Microscopio di fase Olympus CX41 | Olympus | CX41RF-5 | È possibile utilizzare un microscopio di fase diverso |
| Microscopio per microdissezione laser PALM MicroBeam | Zeiss | ||
| Thermomixer | Eppendorf | 22670000 | |
| 10x PBS | Invitrogen | P5493 | |
| 50x Denhardt& rsquo; s soluzione | Sigma-Aldrich | D2532 | |
| 99% Formamide | Fisher Scientific BP227500 | ||
| destrano solfato sale sodico | Sigma | D8906 | |
| 20x tampone SSC | Invitrogen | AM9765 | |
| ProLong Gold reagente antifade con DAPI | Invitrogen | P-36931 | |
| dATP, dCTP, dGTP, dTTP | Fermentas | R0141, R0151, R0161, R0171 | |
| Cy3-dUTP, Cy5-dUTP | GE Healthcare | PA53022, PA55022 | |
| BSA | Sigma-Aldrich | A3294 | |
| DNA polimerasi I | Fermentas | EP0041 | |
| DNasi I | Fermentas | EN0521 | |
| Spermina | Sigma-Aldrich | S3256-1G | |
| Spermidina | Sigma-Aldrich | S0266-1G | |
| Cloruro di potassio (KCl) | Fisher Scientific | BP366-500 | |
| Cloruro di sodio (NaCl) | Fisher Scientific | BP3581 | |
| EGTA | Sigma-Aldrich | E0396-25G | |
| TUBI | Sigma-Aldrich | P6757-25G | |
| EDTA | Fisher Scientific | S311-500 | |
| Digitonin | Sigma-Aldrich | D141-100MG | |
| Triton-X100 | Fisher Scientific | BP151-100 | |
| AdhesiveCap 500 trasparente | Zeiss | 415190-9211-000 | |
| QIAamp DNA Micro Kit (50) | Qiagen | 56304 | |
| Kit per la pulizia e il concentratore del DNA genomico | Zymo Research | D4010 | |
| 37% Paraformaldeide | Fisher Scientific | F79-500 |
Riferimenti
- Ried, T., Schrock, E., Ning, Y., Wienberg, J. Chromosome painting: a useful art. Human molecular genetics 7. , 1619-1626 (1998).
- Yang, F., et al. Reciprocal chromosome painting illuminates the history of genome evolution of the domestic cat, dog and human. Chromosome Res. 8, 393-404 (2000).
- Badenhorst, D., Dobigny, G., Robinson, T. J. Karyotypic evolution of hapalomys inferred from chromosome painting: a detailed characterization contributing new insights into the ancestral murinae karyotype. Cytogenet Genome Res 136. , 83-88 (2012).
- Trifonov, V. A., et al. Chromosomal evolution in Gekkonidae. I. Chromosome painting between Gekko and Hemidactylus species reveals phylogenetic relationships within the group. Chromosome Res. 19, 843-855 (2011).
- Nie, W., et al. Chromosomal rearrangements and karyotype evolution in carnivores revealed by chromosome painting. Heredity (Edinb. , 108-1017 (2012).
- Guan, X. Y., et al. Detection of chromosome 6 abnormalities in melanoma cell lines by chromosome arm painting probes). Cancer Genet Cytogenet. 107, 89-92 (1998).
- Guan, X. Y., et al. Characterization of a complex chromosome rearrangement involving 6q in a melanoma cell line by chromosome microdissection. Cancer genetics and cytogenetics 134. , 65-70 (2002).
- Breen, M., et al. Detection of equine X chromosome abnormalities in equids using a horse X whole chromosome paint probe (WCPP). Vet J. 153, 235-238 (1997).
- Kokhanenko, A. A., Anan'ina, T. V., Stegniy, V. N. The changes in chromosome 6 spatial organization during chromatin polytenization in the Calliphora erythrocephala Mg. (Diptera: Calliphoridae) nurse cells. Protoplasma 250. , 141-149 (2013).
- Timme, S., et al. Nuclear position and shape deformation of chromosome 8 territories in pancreatic ductal adenocarcinoma. Anal Cell Pathol (Amst. 34, 21-33 (2011).
- Drosopoulou, E., et al. Sex chromosomes and associated rDNA form a heterochromatic network in the polytene nuclei of Bactrocera oleae (Diptera: Tephritidae). Genetica. 140, 169-180 (2012).
- Pazian, M. F., Shimabukuro-Dias, C. K., Pansonato-Alves, J. C., Oliveira, C., Foresti, F. Chromosome painting of Z and W sex chromosomes in Characidium (Characiformes). Crenuchidae). Genetica. 141, 1-9 (2013).
- Howe, E. S., Murphy, S. P., Bass, H. W. Three-dimensional acrylamide fluorescence in situ hybridization for plant cells. Methods Mol Biol 990. , 53-66 (2013).
- Lysak, M. A., Mandakova, T. Analysis of plant meiotic chromosomes by chromosome painting. Methods Mol Biol 990. , 13-24 (2013).
- Ji, Z., Zhang, L. Chromosomics: detection of numerical and structural alterations in all 24 human chromosomes simultaneously using a novel OctoChrome FISH assay. J Vis Exp. 10, (2012).
- Idziak, D., et al. Painting the chromosomes of Brachypodium: current status and future prospects. Chromosoma. 120, 469-479 (2011).
- Fuchs, J., Kuhfittig, S., Reuter, G., Schubert, I. Chromosome painting in Drosophila. Chromosome Res. 6, 335-336 (1998).
- Zhimulev, I. F. Morphology and structure of polytene chromosomes. 34, Academic Press. 1-490 (1996).
- Sharakhov, I. V., Sharakhova, M. V. in Chromosome Mapping Research Developments eds. J.F. Verrity & L.E. Abbington) (Nova Science. , Publishers, Inc. (2008).
- Coluzzi, M., Sabatini, A., Torre, della, Di Deco, A., A, M., Petrarca, V. A polytene chromosome analysis of the Anopheles gambiae species complex). Science. 298, 1415-1418 (2002).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malaria mosquitoes. Genetika. 23, 821-827 (1987).
- Stegnii, V. N. Systemic reorganization of the architectonics of polytene chromosomes in the onto- and phylogenesis of malarial mosquitoes. II. Species specificity in the pattern of chromosome relations with the nuclear envelope of nutrient ovarian cells. Genetika. 23, 1194-1199 (1987).
- Bonaccorsi, S., Santini, G., Gatti, M., Pimpinelli, S., Colluzzi, M. Intraspecific polymorphism of sex chromosome heterochromatin in two species of the Anopheles gambiae complex. Chromosoma. 76, 57-64 (1980).
- Zhimulev, I. F. Polytene chromosomes, heterochromatin, and position effect variegation. Adv Genet. 37, 1-566 (1998).
- Seifertova, E., et al. Efficient high-throughput sequencing of a laser microdissected chromosome arm. BMC Genomics. 14, 1471-2164 (2013).
- Weise, A., et al. High-throughput sequencing of microdissected chromosomal regions. European journal of human genetics. EJHG. 18, 457-462 (2010).
- Murphy, S. J., et al. Mate pair sequencing of whole-genome-amplified DNA following laser capture microdissection of prostate cancer. DNA research : an international journal for rapid publication of reports on genes and genomes 19. , 395-406 (2012).
- Moshkin, Y. M., et al. Microdissection and sequence analysis of pericentric heterochromatin from the Drosophila melanogastermutant Suppressor of Underreplication. Chromosoma. 111, 114-125 (2002).
- Decarlo, K., Emley, A., Dadzie, O. E., Laser Mahalingam, M. capture microdissection: methods and applications. Methods Mol Biol 755. , 1-15 (2011).
- Iyer, E. P., Cox, D. N. Laser capture microdissection of Drosophila peripheral neurons. J Vis Exp. 10, (2010).
- Kubickova, S., Cernohorska, H., Musilova, P., Rubes, J. The use of laser microdissection for the preparation of chromosome-specific painting probes in farm animals. Chromosome Res. 10, 571-577 (2002).
- Fukova, I., et al. Probing the W chromosome of the codling moth, Cydia pomonella, with sequences from microdissected sex chromatin. Chromosoma. 116, 135-145 (2007).
- Thalhammer, S., Langer, S., Speicher, M. R., Heckl, W. M., Geigl, J. B. Generation of chromosome painting probes from single chromosomes by laser microdissection and linker-adaptor PCR. Chromosome Res. 12, 337-343 (2004).
- Sims, C. E., Allbritton, N. L. Analysis of single mammalian cells on-chip. Lab on a chip 7. , 423-440 (2007).
- Hutchison, C. A., 3rd,, Venter, J. C. Single-cell genomics. Nature biotechnology. 24, 657-658 (2006).
- Lasken, R. S., Egholm, M. Whole genome amplification: abundant supplies of DNA from precious samples or clinical specimens. Trends in biotechnology 21. , 531-535 (1016).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in the grasshopper Eyprepocnemis plorans. Cytogenet Genome Res. 125, 286-291 (2009).
- Liu, J. D., et al. Sex chromosomes in the spiny eel (Mastacembelus aculeatus) revealed by mitotic and meiotic analysis. Cytogenet Genome Res. 98, 291-297 (2002).
- Harvey, S. C., et al. Molecular-cytogenetic analysis reveals sequence differences between the sex chromosomes of Oreochromis niloticus: evidence for an early stage of sex-chromosome differentiation. Cytogenet Genome Res. 97, 76-80 (2002).
- Hockner, M., Erdel, M., Spreiz, A., Utermann, G., Kotzot, D. Whole genome amplification from microdissected chromosomes. Cytogenet Genome Res. 125, 98-102 (2009).
- Kitada, K., Taima, A., Ogasawara, K., Metsugi, S., Aikawa, S. Chromosome-specific segmentation revealed by structural analysis of individually isolated chromosomes. Genes Chromosomes Cancer. 50, 217-227 (2011).
- Ma, L., et al. Direct determination of molecular haplotypes by chromosome microdissection. Nature methods. 7, 299-301 (2010).
- Teruel, M., et al. Microdissection and chromosome painting of X and B chromosomes in Locusta migratoria. Chromosome Res. 17, 11-18 (2009).
- Treff, N. R., Su, J., Tao, X., Northrop, L. E., Scott, R. T. Single-cell whole-genome amplification technique impacts the accuracy of SNP microarray-based genotyping and copy number analyses. Molecular human reproduction 17. , 335-343 (2011).
- Rutten, K. B., et al. Chromosomal anchoring of linkage groups and identification of wing size QTL using markers and FISH probes derived from microdissected chromosomes. in Nasonia(Pteromalidae : Hymenoptera). Cytogenetic and Genome Research 105. , 126-133 (2004).
- Post, R. J., Kruger, A., Somiari, S. B. Laser-assisted microdissection of polytene chromosomes from Diptera for the development of molecular markers. Molecular Ecology Notes. 6, 634-637 (2006).
- George, P., Sharakhova, M. V., Sharakhov, I. V. High-throughput physical mapping of chromosomes using automated in situ hybridization. Journal of visualized experiments : JoVE. 10, (2012).
- Timoshevskiy, V. A., Sharma, A., Sharakhov, I. V., Sharakhova, M. V. Fluorescent in situ Hybridization on Mitotic Chromosomes of Mosquitoes. J Vis Exp. 10, (2012).
- Frumkin, D., et al. Amplification of multiple genomic loci from single cells isolated by laser micro-dissection of tissues. BMC biotechnology. 8, 10-1186 (2008).
- Raghunathan, A., et al. Genomic DNA amplification from a single bacterium. Applied and environmental microbiology 71. , 3342-3347 (2005).
- Cassio, D. Long term culture of MDCK strains alters chromosome content. BMC Res Notes. 6, 162-1610 (2013).
- Landry, J. J., et al. The Genomic and Transcriptomic Landscape of a HeLa Cell Line. G3. , Bethesda. (1534).
- Steiniger, G. E., Mukherjee, A. B. Insect chromosome banding: technique for G- and Q-banding pattern in the mosquito Aedes albopictus. Can J Genet Cytol. 17, 241-244 (1975).
- Brown, S. E., et al. Toward a physical map of Aedes aegypti. Insect Mol Biol. 4, 161-167 (1995).
- Green, C., Hunt, R. Interpretation of variation in ovarian polytene chromosomes of Anopheles funestus Giles. A. parensis Gillies, and A. aruni? Genetica. 51, 187-195 (1980).
- Sharakhova, M. V., Xia, A., Leman, S. C., Sharakhov, I. V. Arm-specific dynamics of chromosome evolution in malaria mosquitoes. BMC evolutionary biology. 11, 10-1186 (2011).
- Gu, L. H., et al. DNA genotyping of oral epithelial cells by laser capture microdissection]. Fa yi xue za zhi 22. , 196-197 (2006).
- Rook, M. S., Delach, S. M., Deyneko, G., Worlock, A., Wolfe, J. L. Whole genome amplification of DNA from laser capture-microdissected tissue for high-throughput single nucleotide polymorphism and short tandem repeat genotyping. The American journal of pathology 164. , 23-33 (2004).
- Houen, A., Field, B. L., Saunders, V. A. Microdissection and chromosome painting of plant B chromosomes. Methods in cell science : an official journal of the Society for In. Vitro Biology. 23, 115-124 (2001).
Ristampe e permessi
