Un intero test marcatura già cella con Burkholderia sartisoli RP037-Mche è stato sviluppato per rilevare frazioni di un contaminante organico (cioè, fluorene) disponibile per la degradazione batterica dopo trasporto attivo da miceli ponte pori pieni d'aria in un sistema modello insaturo acqua.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
A Whole marcatura già cellulare approccio per valutare i trasporti e la biodisponibilità di contaminanti organici in acqua insaturi Sistemi
In questo articolo
Sommario
Abstract
La biodisponibilità dei contaminanti è un prerequisito per la loro efficace biodegradazione nel suolo. La concentrazione apparente media di un contaminante, tuttavia, non è una misura appropriata per la sua disponibilità; La biodisponibilità dipende piuttosto dall'interazione dinamica del potenziale trasferimento di massa (flusso) di un composto verso una cellula microbica e dalla capacità di quest'ultima di degradare il composto. Nelle parti del suolo insature d'acqua, è stato dimostrato che i miceli superano i limiti di biodisponibilità trasportando e mobilizzando attivamente i composti organici nell'ordine dei centimetri. Mentre l'entità del trasporto a base di miceli può essere facilmente quantificata con mezzi chimici, la verifica della biodisponibilità dei contaminanti per le cellule batteriche richiede un metodo biologico. Per risolvere questo limite, abbiamo scelto il fluorene IPA (FLU) come composto modello e abbiamo sviluppato un microcosmo modello insaturo acquoso che collega una sorgente puntiforme di FLU spazialmente separata e il batterio bioreporter degradante FLU Burkholderia sartisoli RP037-mChe da una rete miceliale di Pythium ultimum. Poiché il bioreporter esprime eGFP in risposta al flusso di IPA alla cellula, l'esposizione e la degradazione dell'influenza batterica possono essere monitorate direttamente nei microcosmi tramite microscopia confocale a scansione laser (CLSM). Le analisi CLSM e di immagine hanno rivelato un aumento significativo dell'espressione di eGFP in presenza di P. ultimum rispetto ai controlli senza miceli o FLU, indicando così la biodisponibilità di FLU per i batteri dopo il trasporto mediato da miceli. I risultati della CLSM sono stati supportati da analisi chimiche in microcosmi identici. Il microcosmo sviluppato si è dimostrato adatto per studiare la biodisponibilità dei contaminanti e per visualizzare contemporaneamente le interazioni batteri-miceliali coinvolte.
Introduzione
Suolo è densamente popolato da una vasta gamma di microrganismi come batteri 1,2. Tuttavia, le condizioni in questo habitat sono impegnativi, soprattutto in termini di disponibilità di acqua 3. I batteri in modo permanente devono cercare le condizioni ottimali in ambienti eterogenei 4, ma l'assenza di film d'acqua continuo si traduce in mobilità limitata 5 ostacolando loro di diffondersi liberamente. Inoltre, i tassi di diffusione di soluti (ad esempio, nutrienti) sono abbassati in condizioni insaturi 6. Così, batteri e sostanze nutrienti sono spesso separati fisicamente e l'accessibilità dei nutrienti è limitato a 3. Di conseguenza, un vettore di trasporto per i composti chimici che non richiede un acqua-fase continua potrebbe contribuire a superare queste limitazioni. In realtà, molti microrganismi, come funghi e oomiceti hanno sviluppato una forma di crescita filamentosa che permette loro di crescere attraverso pori pieni d'aria e raggiungere in tal modo mobilizing anche fisica nutrienti 7 e 8 sostanze carboniose separato su lunghe distanze. Essi possono anche fungere da vettori di trasporto biologici che forniscono zuccheri e altre fonti di energia ai batteri 9. Assorbimento e trasporto in organismi miceliari è stato anche dimostrato di inquinanti organici idrofobici come gli idrocarburi policiclici aromatici (IPA) in Pythium ultimum 10 o nei funghi micorrizici arbuscolari 11. Dal PAH sono contaminanti solubili in acqua onnipresenti e scarsamente 12 nel suolo, trasporti miceli mediata potrebbe contribuire ad aumentare la biodisponibilità dei contaminanti per i potenziali degraders batteriche. Considerando che l'importo totale del trasporto inquinante può essere quantificato direttamente chimica significa 10, la biodisponibilità dei contaminanti trasportati da miceli a batteri degradanti e altri organismi non può essere valutata facilmente.
Il protocollo che segue presenta un metodo per valutare l'impatto di MyCelia sulla biodisponibilità contaminante degraders batteriche in modo diretto; permette la raccolta di informazioni sull'impatto spazio-temporale dei contaminanti sugli ecosistemi microbici. Descriviamo come impostare un elaborato sistema di microcosmo insaturo imitando interfacce aria-acqua nel suolo collegando una sorgente puntiforme PAH separati fisicamente con PAH-degradanti marcatura già batteri tramite vettori di trasporto miceliari. Poiché è escluso il trasporto aereo, l'effetto del trasporto miceliale basata sulla PAH biodisponibilità dei batteri può essere studiata in modo isolato. Più in dettaglio, tre anelli PAH fluorene, l'organismo miceliale Pythium ultimum e la marcatura già batterio Burkholderia sartisoli RP037-Mche 13 sono stati applicati nelle configurazioni microcosmo descritti. Il batterio B. sartisoli RP037-Mche è stato originariamente costruito per studiare flussi fenantrene alla cella 14 ed esprime migliorati proteina fluorescente verde (eGFP) per effetto del flusso di PAHla cella, mentre il rosso fluorescente mCherry è espressa costitutivamente. Informazioni dettagliate sulla costruzione giornalista è data da Tecon et al. 13 Nei test preliminari, il batterio non ha rivelato alcuna nuoto e solo molto lenta capacità sciamatura. Era in grado di migrare lentamente ife di Pythium ultimum quando applicato come una sospensione densa sopra il ife. Poiché i batteri sono stati incorporati in agarosio nella seguente protocollo, migrazione ife non si è verificato.
Utilizzando microscopio confocale a scansione laser (CLSM), i batteri marcatura già possono essere visualizzati direttamente in microcosmi ed espressione di eGFP possono essere quantificati in relazione alla quantità di cellule (proporzionale al segnale mCherry) con l'aiuto del ImageJ software. Questo permette di confrontare biodisponibilità qualitativamente in diversi scenari (cioè, superiore o inferiore). FLU è risultato essere biodisponibile dopo trasporto micelio di P. ultimum (cioè,era superiore a quello di un controllo negativo). Inoltre, il protocollo descrive come quantificare l'ammontare totale del trasporto miceli mediato tramite mezzi chimici e verificare la biodisponibilità dei contaminanti con fibre di vetro siliconato (fibre SPME) in microcosmi identici. I risultati con questa configurazione microcosmo sono stati pubblicati e discussi per la combinazione di P. ultimum, fluorene e B. sartisoli RP037-Mche 15. Qui, l'attenzione si concentra sulla descrizione metodo dettagliato e l'individuazione di potenziali insidie del protocollo di fornire questa conoscenza per i potenziali ulteriori applicazioni. Ulteriori applicazioni possono coinvolgere vari fungine, specie batteriche (ad esempio, da siti contaminati), e altri contaminanti (ad esempio, i pesticidi) o contaminante di alimentazione (ad esempio, i terreni di età).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
1. Preparazione di piatti, Scivoli e incubazione Chambers
- Preparare il seguente materiale per ogni microcosmo: un grande plastico Petri fondo piatto (d = 10 cm), uno modificato (vedi punto 1.2) piccolo plastica Petri fondo piatto (d = 5 cm) con coperchi e un conteggio vetrino da camera con tre cavità.
- Prendete il numero desiderato di Petri parti inferiori piatto (d = 5 cm). Rimuovere parte della tesa con una sega per adattarsi esattamente una diapositiva (26 mm di bordo). Per sterilizzare il sistema, immergere Petri fondo piatto e coperchi in etanolo al 70% O / N e asciugare per almeno 2 ore in un armadio di flusso ai raggi UV. Conservare le piastre di Petri in un contenitore di plastica ermeticamente sigillato, che era stato anche esposto a luce UV per 2 h.
- Pulire il numero desiderato di diapositive con il 70% di etanolo e asciugare all'aria. Avvolgere diapositive in carta stagnola e metterli in un forno a muffola per 5 ore a 450 ° C per rimuovere eventuali contaminazioni.
- Preparare camere di incubazione di vetro con coperchi. Pulire con il 70% di etanolo e esporre le camere aperte a luce UV per almeno 2 ore in un armadio di flusso.
NOTA: grandi essiccatori (diametro circa 30 cm) con coperchi può essere utilizzato per questo scopo; ogni essiccatore può ospitare fino a dieci configurazioni microcosmo.
2. Preparazione di mezzi e culture
- Per eseguire 20 microcosmi paralleli, ottenere 100 ml di modifica medio triptone-lievito (MTY) 14, circa 150 ml di 21C minima media 16 (MM), 5 ml di minima agar (MMA, 0,5%, w / v), tre piastre di agar destrosio di patata (PDA, 1,5%, w / v) per P. ultimum, quattro piastre vuote, una piastra PDA contenente 2 mg L -1 cicloeximide, quattro piastre di agarosio (3%, w / v) contenente 0,3 g ml -1 carbone attivo e 40 mg di influenza in 2 porzioni mg.
- Preparare Mty contenente 50 mg L -1 di kanamicina (kanamicina è required a mantenere il eGFP giornalista plasmide) e MM contenente acetato di 10 mm per la coltivazione batterica. Utilizzare MM, senza acetato per preparare 0,5% MMA per l'immobilizzazione dei batteri nei microcosmi e versare piastre (ogni 20 ml) di 1,5% PDA per la coltivazione di Pythium ultimum e microcosmo configurazioni.
- Seminare alcuni ife di P. ultimum su tre piastre PDA freschi e incubare al buio a 25 ° C per circa 72 ore. Allora sì che le piastre sono ricoperte completamente di micelio fresco e soffice.
- Inizia due culture di B. sartisoli RP037-Mche in 50 ml di MTY da un stock di glicerolo. Incubare a 30 ° C con 230 giri movimento pallone rotante O / N.
- Densità cultura Misura ottica (OD) a 578 nm e centrifugare a 1000 xg per 10 minuti (per B. sartisoli RP037-Mche, l'OD atteso 578 è di circa 1,0 e le cellule sono in fase esponenziale). Gettare il surnatante e risospendere le cellulein una quantità appropriata di MM raggiungere un OD 578 di 0,4. Seminare 20 ml di MM contenenti 50 mg L -1 kanamicina con 400 ml di cellule risospese. Incubare a 30 ° C con 230 giri movimento pallone rotante O / N.
- Misura 578 OD della cultura in MM (per B. sartisoli RP037-Mche, l'OD atteso 578 è di circa 0,2 e le cellule sono in fase iniziale esponenziale). Cultura Centrifugare a 2.000 xg per 10 min e risospendere le cellule in una quantità appropriata di MM a raggiungere un diametro di 0,4. Mescolare 50 ml di sospensione cellulare con 500 ml di caldo, liquido MMA in 2 ml provette e conservare a 50 ° C fino utilizzo. Utilizzare 150 ml di cellule in MMA per ogni microcosmo.
- Versare in piastre di gel di agarosio contenente carbone attivo. Melt agarosio (3%; w / v) in acqua bidistillata. Mescolare accuratamente con carboni attivi (0,3 g ml -1) e versare la miscela in piastre di Petri di plastica(D = 10 cm).
3. Microcosmo di montaggio
NOTA:. L'impostazione microcosmo completo è illustrato schematicamente nella figura 1, fare riferimento alla Figura 1 per tutti i successivi singoli passi. Le seguenti operazioni descrivono la preparazione di un campione (SAM) con i vettori di trasporto miceliari e tre differenti configurazioni di controllo (CON AIR, CON NEG, CON POS). Una sintesi di tutte le diverse configurazioni si trovano nella tabella 1.
- Prendere numero desiderato di piastre di Petri e scivoli ed esporli ai raggi UV sotto un armadietto di flusso per 30 min.
- Posizionare la piccola scatola di Petri all'interno della grande e adattare la diapositiva attraverso la fessura della piccola scatola di Petri. Prendere un campione di sospensione cellulare caldo in MMA e aggiungere 150 ml nella cavità centrale di una diapositiva. Ripetere questa operazione fino a quando le cavità centrali di tutte le diapositive sonopieno di MMA. Attendere 5 min per il MMA solidificare.
- Utilizzare da 1 cm sonda di carotaggio a pugni le patch circolare da una piastra PDA vuoto. Collocare un cerotto ad una distanza di 2 mm accanto MMA all'interno del piccolo piatto Petri. Aggiungere questo per promuovere la crescita del micelio nella configurazione (PDA 3 nella figura 1).
- Tagliare patch curve PDA come barriere meccaniche. Utilizzare una parte inferiore piccola scatola di Petri pulita e sterile e premere in un piatto di PDA. Utilizzare una spatola per tagliare un altro anello più piccolo ad una distanza di 0,5 cm in agar che si traduce in un PDA-ring.
- Tagliare un pezzo, che si inserisce esattamente nella fessura del piccolo piatto Petri nella configurazione microcosmo e posizionarlo all'interno del gap superiore della diapositiva. Assicurarsi che la distanza tra il MMA e la barriera PDA circolare è circa 2 mm. Chiudere il coperchio della piccola scatola di Petri premendo delicatamente nella barriera PDA.
- Ripetere i punti 3.4 e 3.4.1 con un piatto PDA contenente 2 g L -1di cicloesimide.
NOTA: Questa è l'impostazione di controllo per il trasporto per via aerea (CON AIR) verso le cellule marcatura già, poiché miceli sono inibiti dal cicloeximide e non invadere MMA.
- Utilizzare da 1 cm sonda di carotaggio a pugni le patch circolari di un piatto PDA vuoto. Utilizzare un altro 0,5 centimetri sonda di carotaggio per tagliare la metà del primo patch. Posizionare la risultante piccola PDA-ring ad una distanza di 1 mm vicino alla barriera PDA (PDA 1 nella Figura 1).
- Aggiungere 2 mg di influenza nel foro di PDA 1. Utilizzare da 1 cm sonda di carotaggio per tagliare le patch circolari da lastre PDA ricoperte di P. ultimum e mettere un cerotto (PDA 2 in Figura 1) inferiore verso il basso sull'anello PDA in modo che il tappetino del micelio sia rivolta verso i cristalli influenza.
- Ripetere il passaggio precedente, senza l'aggiunta di cristalli di influenza.
NOTA: Questa è l'impostazione di controllo negativo (CON NEG) per determinare sfondofluorescenza delle cellule marcatura già.
- Ripetere il passaggio precedente, senza l'aggiunta di cristalli di influenza.
- Utilizzare da 1 cm sonda di carotaggio a pugni le patch circolari dal agar contenente carbone attivo. Mettere quattro patch in ogni configurazione microcosmo di diminuire ulteriormente la concentrazione FLU gassosa (Figura 1).
- Preparare un controllo positivo (CON POS). Aggiungere alcuni cristalli FLU a 200 ml di sospensione cellulare MMA e metterlo in una cavità di una sagoma vuota.
- Inserire un piatto Petri (d = 10 cm) con una certa polvere di carbone attivo sul fondo della camera di incubazione per minimizzare la concentrazione FLU gassosa nella camera. Inoltre, posizionare 04:56 50 ml bicchieri con acqua sterile sul fondo per mantenere alta umidità nella camera.
- Trasferire configurazioni microcosmo in camere di incubazione e incubare a 25 ° C per 96 ore. I campioni in modo casuale nelle diverse camere di crescita per escludere effetti di localizzazione.
NOTA: Questa volta ap incubazioneveli alla oomicete P. ultimum. Potrebbe essere diverso per altri organismi.
- Trasferire configurazioni microcosmo in camere di incubazione e incubare a 25 ° C per 96 ore. I campioni in modo casuale nelle diverse camere di crescita per escludere effetti di localizzazione.
4. Microscopia confocale a scansione laser
- Idealmente utilizzare un setup CLSM con il microscopio in posizione verticale.
NOTA: Può essere equipaggiato con i laser tradizionali offrendo ad esempio, 488, 561 e 633 linee di nm per l'eccitazione o con una sorgente laser sintonizzabile bianco. - Utilizzare le seguenti impostazioni per la raccolta di immagini: Eccitazione: 490 nm (eGFP) e 585 nm (mCherry) presso l'intensità del laser appropriata (eccitazione simultanea); gamme di emissione: da 500 a 550 nm (eGFP) e 605-650 nm (mCherry); obiettivo obiettivo: 63X NA 0.9 immersible acqua (a causa della sua lunga distanza di lavoro); passo per z-stack: 0.5 micron.
- Configurazione aperta microcosmo e usare un bisturi per rimuovere PDA 1, 2, 3 e la barriera PDA. Mettere un vetrino di vetro sulla parte superiore del MMA e premerlo delicatamente per rimuovere le bolle d'aria. Mount vetrino sul palco microscopio. Aggiungere una goccia d'acqua sopra thcopertura e di slittamento e utilizzare le impostazioni mCherry per trovare le cellule marcatura già nel campione.
- Prendi una rapida panoramica del campione e ottimizzare rapporto segnale-rumore con un bagliore-over-under tabella di ricerca per il rosso (mCherry) e verde (eGFP) del canale. Scegliete una posizione casuale sul campione da analizzare marcatura già fluorescenza.
NOTA: ife può mostrare autofluorescenza nel range di emissione di marcatura già (ad esempio, l'autofluorescenza verde) 17. Assicurarsi di selezionare le aree senza ife se questo è il caso. - Definire e registrare z-stack per ogni posizione nel verde (eGFP) e la (mCherry) canale rosso. Evitare sbiancamento del campione dalla lunga esposizione alla luce epifluorescenza o luce laser.
- Ripetere il passaggio precedente per dieci casuali, posizioni uniformemente distribuiti.
- Ripetere tutti i passi con le stesse impostazioni per tutti i campioni della pista di prova (SAM), CON AIR, CON NEG e CON POS.
Analisi 5. Immagine
NOTA: Per analizzare rosso (mCherry) e verde (eGFP) fluorescenza nelle z-stack registrati, tra le altre opzioni del software ImageJ free 18 (http://rsb.info.nih.gov/ij/download.html) può essere utilizzato.
- Assicurarsi di installare il plugin logi_tool (http://downloads.openmicroscopy.org/bio-formats/4.4.10/).
- Apri il file in ImageJ. Selezionare "canali Split" e vicino canale verde. Utilizzare la macro 'zona mCherry' fornito come file di codice aggiuntivo per quantificare area di fluorescenza rossa in z-stack. Regolare le impostazioni preferite nella macro (indicata in grassetto).
- L'uscita è una tabella con i pixel misurati sopra soglia (e la dimensione minima sopra definita) nello stack z.
NOTA: La somma di tutti i valori è il numero totale di pixel rossi (area) nello stack.
- L'uscita è una tabella con i pixel misurati sopra soglia (e la dimensione minima sopra definita) nello stack z.
- Apri il file in ImageJ. Selezionare "canali Split" e vicino canale rosso. Utilizzare la macro 216; eGFP int 'fornito come file di codice aggiuntivo per quantificare l'intensità di fluorescenza verde in pila z. Regolare le impostazioni preferite nella macro (indicata in grassetto).
- L'uscita è un tavolo con intensità media e l'area di tutti gli oggetti verdi sopra soglia (e soprattutto la dimensione minima definita) in z-stack. Per calcolare l'intensità totale di pixel verdi in pila, moltiplicare ciascuna intensità per la superficie corrispondente significa.
- Calcolare l'induzione relativo eGFP (eGFP rel):
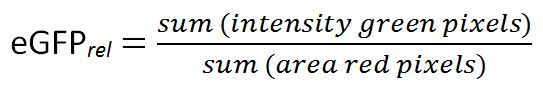 (1)
NOTA: Poiché mCherry è espresso costitutivamente, il valore risultante di eGFP rel è una misura relativa per la quantità di eGFP espressa da una certa quantità di cellule. Si prega di fare riferimento anche alla Tabella 3 per ulteriori informazioni sul calcolo di eGFP rel.
NOTA: impostazioni Microcosmo possono anche essere utilizzati per eseguire la quantificazione chimica degli importi INFLUENZA traslocati con o senza un dissipatore contaminante abiotico.
- Avvolgere 15 fiale ml in vetro, 1 ml GC fiale / MS e inserti in alluminio. Riempire evaporazione piatti con Na 2 SO 4; posizionare tutti in muffola per 5 ore a 450 ° C per rimuovere possibili contaminazioni. Conservare il Na 2 SO 4 all'interno di un essiccatore attivato.
- Tagliare PDMS fibre di vetro rivestito in 0,5 cm di lunghezza. Lavare fibre agitando quattro volte 2 ore in metanolo fresco. Ripetere il lavaggio passaggi altre quattro volte con acqua ultrapura e memorizzare fibre pure in acqua ultrapura in un flaconcino di vetro sigillato.
- Preparare 1,5 L di toluene / acetone (3: 1, v / v) contenente 10 mg L -1 fenantrene-d 10.
- Eseguire i passaggi 1, 2 e 3 del protocollo. Preparare microcosmi senza BIORcellule eporter per studiare il trasporto FLU (SAM (-) e CON AIR (-)) e con le cellule di marcatura già (SAM) per verificare il degrado FLU.
- Opzionali (senza celle marcatura già): Luogo tre PDMS rivestite in fibra di vetro (di solito utilizzati per esperimenti SPME) come artificiale e quantificabile lavandino contaminante all'interno MMA di SAM (-) utilizzando una pinza sottile.
- Rimuovere fibre di vetro con una pinza sottile e trasferire ognuno in un GC / MS flacone con inserto.
- Aggiungere 200 ml di toluene e scuotere verticalmente O / N e analizzare mediante GC / MS. Utilizzare le impostazioni di cui alla tabella 2.
- Trasferire MMA dalla cavità centrale in un flaconcino di vetro da 15 ml e aggiungere circa tre spatole di Na 2 SO 4. Mescolare bene con una spatola e aggiungere 10 ml di solvente. Vortex la miscela e agitare orizzontalmente O / N nel buio.
- Trasferire 1001; l di campione in GC / MS flacone con inserto. Aggiungere 10 ml di acenaftilene-D 08 (10 mg L -1) e analizzare tramite GC / MS con lo stesso programma, come descritto al punto 6.4.3.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
I risultati presentati qui sono già stati pubblicati in precedenza 15. Consultare l'articolo per la discussione dettagliata meccanicistica e ambientale.
Dopo la registrazione dell'immagine mediante CLSM, una sporgenza massima intensità può essere effettuato utilizzando il rispettivo software microscopio o ImageJ per ottenere una prima impressione visiva del campione ei controlli (Figura 2). Più tardi, i set di dati possono essere proiettati in modo diverso...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
La configurazione microcosmo presentato dimostrato adatto per studiare la biodisponibilità di sostanze chimiche spazialmente separate per degradare organismi dopo l'assorbimento e il trasporto da miceli. Potenziale di trasporto del gas in fase di composti volatili parzialmente è impedito e le cellule di marcatura già batteriche può essere visualizzato senza preparazione del campione elaborato e quindi con il minimo disturbo del sistema sensibile. Allo stesso tempo, l'analisi chimica del campione può essere facil...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori dichiarano di non avere alcun interesse finanziario concorrente.
Ringraziamenti
Il finanziamento da parte della Fondazione tedesca per l'ambiente (DBU) è riconosciuto. Gli autori ringraziano Ute Kuhlicke per l'aiuto tecnico con l'analisi CLSM e Birgit Würz, Rita Remer e Jana Reichenbach per l'aiuto sperimentale qualificato. Gli autori desiderano ringraziare in particolare il Prof. Jan Roelof van der Meer e il Dr. Robin Tecon per la fruttuosa discussione e per aver fornito il ceppo bioreporter. Contribuisce al programma di ricerca "Chemicals in the Environment" (CITE) dell'Associazione Helmholtz.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Microscopio confocale | Leica | TCS SP5X, LAS AF - Versione 2.6.1; o equivalente CLSM | |
| GC HP 7890 Series GC e Agilent 5975C MSD | Agilent | un equivalente GC/MS può essere utilizzato | |
| capillare GC J& W 121-5522 | Agilent | ||
| Cork trivella | Fisher Scientific | 12863952 | o qualsiasi altro |
| Vetrino coprioggetti | Marienfeld | 107222 | Alte prestazioni, No.1.5H |
| GC/MS inserti | WICOM | WIC 47080 | |
| GC/MS flaconi 2 ml | WICOM | WIC 41150 | |
| Coperchi / setti per fiale con tappo a vite | DIONEX | 49463 / 049464 | |
| Coperchi per fiale GC/MS | WICOM | WIC 43948/B | |
| Vetrini obiettivo | Menzel | ordinari | |
| PDMS rivestiti in fibre di vetro | Polymicro Technologies, Inc. | V (PDMS) = 13,55 ± 0,02 µ l m-1 | |
| Petri Piastre piccole / grandi | Greiner | 633-102 / 628-102 | |
| Fiale con tappo a vite 40 ml | DIONEX | 48783 | altre fiale di vetro possono essere utilizzate |
| Fiale con tappo a vite 60 ml | DIONEX | 48784 | altre fiale di vetro possono essere utilizzate |
| Acenaphthylene d08 | Dr. Ehrenstorfer | C 20510100 | |
| Acetone | Carl Roth | 9372.2 | |
| Carbone attivo | Sigma-Aldrich | 242276-1kg | |
| Agarosio | Carl Roth | 2267.4 | |
| Fluorene | Fluka | 46880 | |
| Kanamicina solfato | Carl Roth | T832.2 | 50 mg L-1 |
| Metanolo | Carl Roth | P7171 | |
| Minimal Medium: 100 ml Solution 1 + 25 ml Solution 2 + 5 ml Solution 3 ad. 1.000 ml aqua dest | |||
| Solution 1 | |||
| Ammonium sulfate | Carl Roth | 3746.1 | 5 g L-1 |
| Cloruro di magnesio x 6 H2O | Carl Roth | 2189.1 | 1 g L-1 |
| Nitrato di calcio x 4 H2O | Carl Roth | P740.1 | 0.5 g L-1 |
| Solution 2 | |||
| Fosfato disodico | Carl Roth | P030.1 | 55.83 g L-1 |
| Fosfato monopotassico | Carl Roth | 3904.1 | 20 g L-1 |
| Solution 3 (pH 6,0) | |||
| EDTA disodico | MERCK | 1084180250 | 0,8 g L-1 |
| Cloruro di ferro (II) x 4 H2O | MERCK | 1038610250 | 0,3 g L-1 |
| Cloruro di cobalto(II) x 6 H2O | Carl Roth | T889.3 | 4 mg L-1 |
| Cloruro di manganese (II) x 1 H2O | Carl Roth | 4320.2 | 10 mg L-1 |
| Rame(II) solfato | Carl Roth | P023.1 | 1 mg L-1 |
| Molibdato di sodio x 2 H2O | Carl Roth | 0274.1 | 3 mg L-1 |
| Cloruro di zinco | MERCK | 1088160250 | 2 mg L-1 |
| Litio cloruro | Carl Roth | P007.1 | 0,5 mg L-1 |
| Cloruro di stagno (II) x 2 H2O | Carl Roth | 4473,1 | 0,5 mg L-1 |
| Acido borico | Riedel-de-Haen | 11606 | 1 mg L-1 |
| Bromuro di potassio | Carl Roth | A137.1 | 2 mg L-1 |
| Ioduro di potassio | Carl Roth | 6750.1 | 2 mg L-1 |
| Cloruro di bario | Carl Roth | 4453.1 | 0,5 mg L-1 |
| MMA | Terreno minimo + agarosio 0,2% | ||
| Fenantrene d10 | Dr. Ehrenstorfer | C 20920100 | |
| Potato Dextrose Agar: 24 g L-1 brodo + bacto-agar 1,5%; pH 6,8 | |||
| Potato Dextrose broth | Difco/ Beckton Dickinson | 254920 | |
| Bacto-agar | Difco/ Beckton Dickinson | 214040 | |
| Acetato di sodio x 3 hydr. | Carl Roth | 6779.1 | |
| Solfato di sodio | MERCK | 1066495000 | |
| Toluene | MERCK | 1083252500 | |
| mTY medium: 3 g L-1 estratto di lievito, 5 g L-1 bacto triptone e 50 mM NaCl | |||
| estratto di lievito | Merck | 1037530500 | |
| Tryptone | Serva | 4864702 | |
| Cloruro di sodio | Carl Roth | 3957.1 | |
| ImageJ con logi tool plugin | http://rsb.info.nih.gov/ij/download.html e http://downloads.openmicroscopy.org/bio-formats/4.4.10 | ||
| Pythium ultimum ceppo 67-1 | Ottenuto dal laboratorio del Dr. Christoph Keel; Dipartimento di Microbiologia Fondamentale, Università di Losanna, Svizzera | ||
| Burkholderia sartisoli RP037-mChe | Ottenuto dal laboratorio del Prof. Jan Roelof van der Meer; Dipartimento di Microbiologia Fondamentale, Università di Losanna, Svizzera |
Riferimenti
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
