Una piattaforma di singola molecola magnetico pinzette per manipolare G-quadruplex è segnalata, che permette per lo studio della stabilità di G4 e regolamento di varie proteine.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Manipolazione di singola molecola di G-quadruplex di pinzette magnetiche
* These authors contributed equally
In questo articolo
Sommario
Abstract
Non-canonico dell'acido nucleico struttura secondaria che g-quadruplex (G4) sono coinvolti in diversi processi cellulari, come ad esempio la replicazione del DNA, trascrizione, elaborazione del RNA e l'allungamento dei telomeri. Durante questi processi, varie proteine legano e risolvere strutture G4 per svolgere la loro funzione. Come la funzione di G4 spesso dipende dalla stabilità della sua struttura piegata, è importante studiare come G4 proteine regolano la stabilità di G4. Questo lavoro presenta un metodo per modificare singole molecole di G4 usando la pinzetta magnetica, che permette studi del regolamento delle proteine leganti G4 su una singola molecola di G4 in tempo reale. In generale, questo metodo è adatto per un ampio campo di applicazioni negli studi per interazioni proteine/ligandi e regolamenti su varie strutture secondarie del DNA o RNA.
Introduzione
Quattro-stranded DNA o RNA G4 strutture svolgono un ruolo critico in molti processi biologici importanti1. Molte proteine sono coinvolte nel legame G4 e regolamento, comprese le proteine obbligatorie del telomero (telomerase, POT1, RPA, TEBPs, TRF2)1,2, fattori di trascrizione (nucleolina, PARP1)3, RNA, proteine (hnRNP A1, di elaborazione hnRNP A2)4, elicasi (BLM, Pif1, FANCJ, RHAU, WRN, Dna2)5e replicazione del DNA relative proteine (Rif1, REV1, PrimPolymerase)6. Legame con le proteine può stabilizzare o destabilizzare G4 strutture; regolando le successive funzioni biologiche. La stabilità del G4 è stata misurata da thermal fusione utilizzando raggi ultravioletti (UV) o di metodi di dicroismo circolare (CD)7. Tuttavia, tali condizioni non sono fisiologiche rilevanti e sono difficili da applicare per lo studio degli effetti di binding proteine7.
Il rapido sviluppo delle tecnologie di manipolazione di singola molecola ha permesso studi di chiusura e apertura di una biomolecola, ad esempio un DNA o una proteina, a livello di singola molecola con risoluzione nanometrica in tempo reale8. Microscopia a forza atomica (AFM), pinzette ottiche e magnetiche pinzette sono i più comunemente usati metodi di manipolazione di singola molecola. Rispetto a AFM e pinzette ottiche9, magnetiche pinzette permettono misurazioni stabili di chiusura-apertura dinamica di una singola molecola nei giorni utilizzando una tecnica anti-drift10,11.
Qui, una piattaforma di singola molecola manipolazione usando pinzetta magnetica per studiare la regolazione della stabilità di G4 da proteine leganti è segnalato12,13. Questo lavoro delinea gli approcci di base, tra cui campione e flusso preparazione di canale, il programma di installazione di pinzette magnetiche e la calibrazione di forza. Il controllo di forza e i protocolli di antislittamento come descritto nel passaggio 3 consentono misure di tempo lungo sotto diversi controlli di forza, ad esempio costante forza (forza di bloccaggio) e carico costanti votare (forza-rampa) e forza-salto misura. Il protocollo di calibrazione forza descritto nel passaggio 4 consente forza calibrazione di < 1 µm cavezze breve sopra una vasta forza gamma pN fino a 100, con un errore relativo all'interno di 10%. Un esempio di regolazione della stabilità del RNA Helicase associato AU-rich element (RHAU) elicasi (alias DHX36, G4R1) che gioca un ruolo essenziale nella risoluzione di che RNA G4 viene utilizzato per illustrare le applicazioni di questa piattaforma13.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Ho >
- formazione Tether
- delicatamente il flusso in 200 X diluito M-280, paramagnetici perle nella soluzione di saggio (100 mM KCl, 2 mM MgCl 2, 10 mM Tris-pH 7,4 ) in un canale. Incubare per 10 minuti consentire le perline da associare alla biotina di molecole di DNA immobilizzati sulla superficie rivestita con SMCC fino alla fine del tiolo-etichettati. Delicatamente lavare via un-tethered perline utilizzando 200 µ l di soluzione di reazione standard.
Nota: Le perle di M-280 mostrano più basso legame non specifico alla superficie rispetto alle altre biglie magnetiche commerciali come M-270.
- delicatamente il flusso in 200 X diluito M-280, paramagnetici perle nella soluzione di saggio (100 mM KCl, 2 mM MgCl 2, 10 mM Tris-pH 7,4 ) in un canale. Incubare per 10 minuti consentire le perline da associare alla biotina di molecole di DNA immobilizzati sulla superficie rivestita con SMCC fino alla fine del tiolo-etichettati. Delicatamente lavare via un-tethered perline utilizzando 200 µ l di soluzione di reazione standard.
- Montare il canale sul palco microscopio. Ricerca per le perle sulla superficie inferiore usando 100 X obiettivo a immersione in olio.
- Selezionare una perlina di riferimento sulla superficie e una perlina tethered commovente. Compilare le librerie di immagine iniziale del branello di riferimento e perlina legato alle diverse defocus aerei.
- Calibrazione dell'immagine di perline
- prima di esperimenti, utilizzare un attuatore piezoelettrico oggettivi per ottenere immagini di riferimento e di perle legati al defocus diversi piani distanziati di 20-50 nm, che vengono archiviati come due immagine separata della perla librerie e sono rispettivamente indicizzati con la distanza di sfocatura ( Figura 2D).
- x, y, z posizione determinazione
- durante gli esperimenti, per determinare la posizione del tallone nel piano x-y il centroide della perla. Determinare la modifica dell'altezza del tallone tethered confrontando l'immagine corrente della perla con quelli memorizzati nella libreria. Utilizzare l'analisi della funzione di auto-correlazione dello spettro di potenza della trasformata di Fourier del branello immagini 16.
- Anti-drift feedback utilizzando perlina riferimento
- durante gli esperimenti, utilizzare il piezo a " blocco " la distanza tra l'obiettivo e un'immagine di perlina di riferimento specifici memorizzati nella libreria tramite una bassa frequenza feedback di controllo, affinché l'immagine di tallone bloccato ha la migliore correlazione con una specifica immagine memorizzata nella libreria ( Figura 2D).
- Determinare se il tether è una molecola singola dsDNA applicando ~ 65 pN forza determinare una molecola singola dsDNA se il tether subisce il DNA caratteristico overstretching transizione 17 , 18 , 19. Ripetere la procedura finché non viene trovato un singolo dsDNA tether. (Fare riferimento alla sezione successiva per forza calibrazione e DNA overstretching transizione).
4. Calibrazione di forza magnetica pinzette
- determinare direttamente la forza (fino a 100 pN) per lunghe molecole di DNA (48.502 bp λ-DNA) utilizzando fluttuazione tallone attraverso:
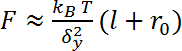
, dove k B è la costante di Boltzmann, T è la temperatura in Kelvin scala, δ 2 y è la varianza della fluttuazione della perla nella direzione perpendicolare al campo magnetico e la forza direzione. In questa direzione, il movimento del tallone può essere descritto come una fluttuazione di pendolo con una lunghezza di l + r 0, dove l è la distanza di end-to-end lungo la direzione della forza (estensione) del DNA, e r 0 è il raggio del branello 10 ( Figura 3A). - Determinare la curva di taratura per forza F in funzione dei magneti a distanza tallone d e F (d) per differenti perline usando il lungo λ-DNA. Di solito, la distanza tra il magnete e la lamella viene utilizzata come la lunghezza del legare di DNA può essere ignorata. Appoggiare la F-curva d dalla funzione decadimento doppio-esponenziale:
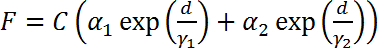
, dove il raccordo parametri α1, α2, γ1, γ2 sono determinati dalla pinzetta magnetica e il parametro C è determinato dalla proprietà eterogenea di biglie magnetiche. Spostando la C, la F-curva d ottenuto da differenti perline può essere sovrapposta 10 ( Figura 3B). - Esperimenti di calibrazione del parametro C per biglie magnetiche individuali per DNA breve.
- Per determinare la forza basata sulla fluttuazione richiede la posizione del tallone ad una frequenza superiore alla frequenza di angolo di registrazione:
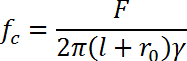
, dove γ è il trascinamento coefficiente del tallone. Per breve DNA a forza elevata, richiede più veloce di 100 Hz frequenza di registrazione, pertanto, la forza non può essere misurata direttamente basata sulla fluttuazione con la fotocamera. Tuttavia, il parametro C può essere determinato misurando la forza a bassa forza gamma (< 15 pN) utilizzando fluttuazione e montaggio i dati con un calibrato F-curva d per ottenere il parametro C 20. - In alternativa, per esperimenti con dsDNA, determinare il parametro C usando il DNA overstretching transizione una forza di ~ 65 pN ( Figura 3) 21 , 22 , 23 registrando la posizione d al salto di estensione ha mostrato quale dsDNA (0,6 X aumento di lunghezza di lunghezza di contorno). Dopo aver determinato il parametro C, calcolare la forza per le perline tethered.
- Per determinare la forza basata sulla fluttuazione richiede la posizione del tallone ad una frequenza superiore alla frequenza di angolo di registrazione:
- Controllare la velocità di caricamento di programmazione il movimento dei magneti attraverso la funzione inversa di F (d). Il magnete dovrebbe affrontare il campione doppio esponenzialmente.
Nota: L'errore relativo della forza determinata da un metodo di estrapolazione è ~ 10% ed è principalmente causata dalla perlina raggio eterogeneità 20.
5. Manipolazione di singola molecola del G4 in presenza ed assenza di Binding Proteins
- Force-rampa esperimenti
- dopo aver identificato la lombata di dsDNA, eseguire una scansione di forza-aumento ad un tasso di carico di 0,2 pN/s seguita da un scansione di forza-decesso a -0,2 pN/s. Dopo ogni ciclo di allungamento, tenere la molecola di DNA a 1 pN per 30 s per consentire il ssDNA a ripiegare a G4.
- Force-salto esperimenti
- ciclo la forza tra 54 pN per 30 s in base al quale un G4 piegato potrebbe essere spiegato e 1 pN per 60s, sotto il quale potrebbe ripiegare un piegato G4-15T.
- Soluzione proteica Flowing
- fluire la soluzione della proteina quando al ~ 20 pN forza per evitare allegato delle perline per il vetrino coprioggetti. Il helicase RHAU DEAH-box, che ha mostrato elevata specificità la struttura G4, è stato usato 24. Il ricombinante dell'elicasi RHAU (DmRHAU) di Drosophila melanogaster è stata espressa in Escherichia coli e purificata come descritto in precedenza 25. Il G4 svolgimento attività di DmRHAU è stata analizzata su un G4 DNA substrato 13 tetramolecolari.
- Analizzare la forza di spiegamento utilizzando un in-House scritti Matlab programma 14.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
qui per visualizzare la versione ingrandita di questa figura.
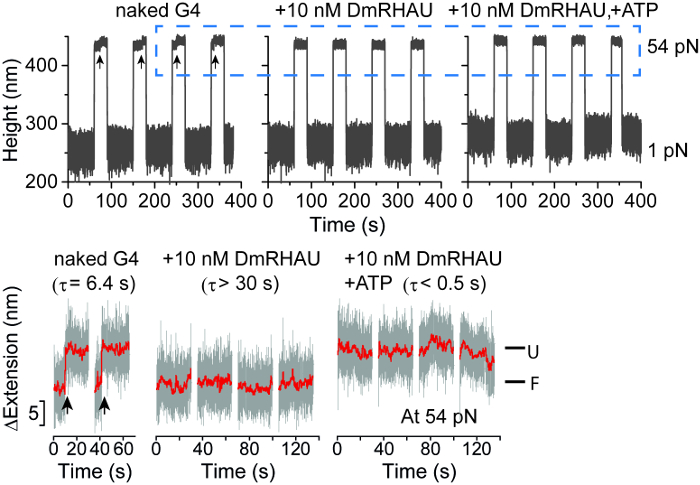
Figura 5: Misurazioni di forza-salto del G4 svolgimento.
(A) traccia di tempo rappresentativo del cambiamento di altezza tallone durante forza saltare cicli tra 1 pN e pN 54 misurata senza DmRHAU, con 10 nM DmRHAU ma senza ATP e con 10 nM DmRHAU e 1 mM ATP, come indicato nel pannello di figura....
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
Come descritto sopra, una piattaforma per lo studio della stabilità meccanica del G4 DNA e le interazioni della proteina a G4 utilizzando una pinzetta magnetica di singola molecola è segnalata. Accompagnando la piattaforma, sono sviluppati protocolli altamente efficienti di trovare G4 DNA tether e misura della chiusura-apertura dinamica e la stabilità della struttura G4 con risoluzione speciale nanometri. Il bloccaggio del piano focale consente controllo antislittamento altamente stabile, che è importante per la rilevazi...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla a rivelare.
Ringraziamenti
Gli autori ringraziano Meng Pan per la correzione del manoscritto. Questo lavoro è supportato da Singapore Ministero di formazione accademica ricerca fondo Tier 3 (MOE2012-T3-1-001) per J.Y.; la Fondazione di ricerca nazionali attraverso l'Istituto Mechanobiology da Singapore a J.Y.; il National Research Foundation, ufficio, Singapore del primo ministro, nell'ambito del programma Investigatorship NRF (NRF Investigatorship premio No. NRF-NRFI2016-03 al J.Y.; il fondo di ricerca fondamentale per le Università centrale (2017KFYXJJ153) di H. Y.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Primer per PCR del DNA | IDT | Preparazioni del DNA | |
| Prodotti chimici per PCR del DNA | NEB | Preparazioni del DNA | |
| enzima di restrizione BstXI | NEB | R0113S Preparazioni | del DNA |
| vetrini coprioggetti (#1.5, 22*32 mm e 20*20 mm) | BMH. BIOMEDIA | 72204 | preparazione del canale di flusso |
| Decon90 | Decon Laboratories Preparazione del canale di | flusso | |
| APTES | Sigma | 440140-500ML | Preparazione del canale di flusso |
| Sulfo-SMCC | ThermoFisher Scientific | 22322 | preparazione del canale di flusso |
| M-280, perle parammanetiche ThermoFisher | Scientific | 11205D | preparazione del canale di flusso |
| Microsfere di ammino Polybead 3.00 μ m | Polysciences, Inc | 17145-5 | preparazione del canale di flusso |
| 2-Mercaptoetanolo | Sigma | M6250-250ML | preparazione del canale di flusso |
| Microscopi Olympus IX71 | Olympus | IX71 | Configurazione delle pinzette magnetiche |
| Piezo-Z Stages P-721 | Physik Instrumente | P-721 | Configurazione delle pinzette magnetiche |
| Olympus Obiettivo MPLAPON-Oil 100X | Olympus | MPLAPON-Oil 100X | Configurazione pinzette magnetiche |
| Telecamera CCD/CMOS | AVT | Pike F-032B | Configurazione pinzette magnetiche |
| Traslazione tavolino lineare | Physik Instrumente | MoCo DC | Configurazione pinzette magnetiche |
| LED | Thorlabs | MCWHL | Configurazione pinzette magnetiche |
| Magneti cubici | Supermagnete | pinzette magnetiche | |
| Configurazione | delle pinzette magnetiche | National Instruments | |
| OriginPro/Matlab | OriginLab/MathWorks | Analisi dei dati |
Riferimenti
- Rhodes, D., Lipps, H. J. G-quadruplexes and their regulatory roles in biology. Nucleic Acids Res. 43 (18), 8627-8637 (2015).
- Brazda, V., Haronikova, L., Liao, J. C., Fojta, M. DNA and RNA quadruplex-binding proteins. Int J Mol Sci. 15 (10), 17493-17517 (2014).
- Gonzalez, V., Hurley, L. H. The C-terminus of nucleolin promotes the formation of the c-MYC G-quadruplex and inhibits c-MYC promoter activity. Biochemistry. 49 (45), 9706-9714 (2010).
- Wang, F., et al. telomerase-interacting protein that unfolds telomere G-quadruplex and promotes telomere extension in mammalian cells. Proc Natl Acad Sci U S A. 109 (50), 20413-20418 (2012).
- Mendoza, O., Bourdoncle, A., Boule, J. B., Brosh, R. M., Mergny, J. L. G-quadruplexes and helicases. Nucleic Acids Res. 44 (5), 1989-2006 (2016).
- Schiavone, D., et al. PrimPol Is Required for Replicative Tolerance of G Quadruplexes in Vertebrate Cells. Mol Cell. 61 (1), 161-169 (2016).
- Lane, A. N., Chaires, J. B., Gray, R. D., Trent, J. O. Stability and kinetics of G-quadruplex structures. Nucleic Acids Res. 36 (17), 5482-5515 (2008).
- Woodside, M. T., Block, S. M. Reconstructing folding energy landscapes by single-molecule force spectroscopy. Annu Rev Biophys. 43, 19-39 (2014).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nat Methods. 5 (6), 491-505 (2008).
- Chen, H., et al. Improved high-force magnetic tweezers for stretching and refolding of proteins and short DNA. Biophys J. 100 (2), 517-523 (2011).
- Chen, H., et al. Dynamics of equilibrium folding and unfolding transitions of titin immunoglobulin domain under constant forces. J Am Chem Soc. 137 (10), 3540-3546 (2015).
- You, H., Wu, J., Shao, F., Yan, J. Stability and kinetics of c-MYC promoter G-quadruplexes studied by single-molecule manipulation. J Am Chem Soc. 137 (7), 2424-2427 (2015).
- You, H., Lattmann, S., Rhodes, D., Yan, J. RHAU helicase stabilizes G4 in its nucleotide-free state and destabilizes G4 upon ATP hydrolysis. Nucleic Acids Res. 45 (1), 206-214 (2017).
- You, H., et al. Dynamics and stability of polymorphic human telomeric G-quadruplex under tension. Nucleic Acids Res. 42 (13), 8789-8795 (2014).
- Fu, H., Chen, H., Marko, J. F., Yan, J. Two distinct overstretched DNA states. Nucleic Acids Res. 38 (16), 5594-5600 (2010).
- Gosse, C., Croquette, V. Magnetic tweezers: micromanipulation and force measurement at the molecular level. Biophys. J. 82 (6), 3314-3329 (2002).
- Fu, H., et al. Transition dynamics and selection of the distinct S-DNA and strand unpeeling modes of double helix overstretching. Nucleic Acids Res. 39 (8), 3473-3481 (2011).
- Zhang, X., Chen, H., Fu, H., Doyle, P. S., Yan, J. Two distinct overstretched DNA structures revealed by single-molecule thermodynamics measurements. Proc Natl Acad Sci U S A. 109 (21), 8103-8108 (2012).
- Zhang, X., et al. Revealing the competition between peeled ssDNA, melting bubbles, and S-DNA during DNA overstretching by single-molecule calorimetry. Proc Natl Acad Sci U S A. 110 (10), 3865-3870 (2013).
- Chen, H., et al. Improved High-Force Magnetic Tweezers for Stretching and Refolding of Proteins and Short DNA. Biophys. J. 100 (2), 517-523 (2011).
- Fu, H. X., et al. Transition dynamics and selection of the distinct S-DNA and strand unpeeling modes of double helix overstretching. Nucleic Acids Res. 39 (8), 3473-3481 (2011).
- Zhang, X., Chen, H., Fu, H., Doyle, P. S., Yan, J. Two distinct overstretched DNA structures revealed by single-molecule thermodynamics measurements. Proc. Natl. Acad. Sci. U.S.A. 109 (21), 8103-8108 (2012).
- Zhang, X., et al. Revealing the competition between peeled ssDNA, melting bubbles, and S-DNA during DNA overstretching by single-molecule calorimetry. Proc. Natl. Acad. Sci. U.S.A. 110 (10), 3865-3870 (2013).
- Vaughn, J. P., et al. The DEXH protein product of the DHX36 gene is the major source of tetramolecular quadruplex G4-DNA resolving activity in HeLa cell lysates. J Biol Chem. 280 (46), 38117-38120 (2005).
- Giri, B., et al. G4 resolvase 1 tightly binds and unwinds unimolecular G4-DNA. Nucleic Acids Res. 39 (16), 7161-7178 (2011).
- De Vlaminck, I., Dekker, C. Recent advances in magnetic tweezers. Annu Rev Biophys. 41, 453-472 (2012).
- Yan, J., Skoko, D., Marko, J. F. Near-field-magnetic-tweezer manipulation of single DNA molecules. Phys Rev E Stat Nonlin Soft Matter Phys. 70 (1 Pt 1), 011905(2004).
- Le, S., et al. Disturbance-free rapid solution exchange for magnetic tweezers single-molecule studies. Nucleic Acids Res. 43 (17), e113(2015).
- Neidle, S. Quadruplex Nucleic Acids as Novel Therapeutic Targets. J Med Chem. 59 (13), 5987-6011 (2016).
- Simone, R., Fratta, P., Neidle, S., Parkinson, G. N., Isaacs, A. M. G-quadruplexes: Emerging roles in neurodegenerative diseases and the non-coding transcriptome. FEBS Lett. 589 (14), 1653-1668 (2015).
- Balasubramanian, S., Hurley, L. H., Neidle, S. Targeting G-quadruplexes in gene promoters: a novel anticancer strategy? Nat Rev Drug Discov. 10 (4), 261-275 (2011).
- Amato, J., et al. Toward the Development of Specific G-Quadruplex Binders: Synthesis, Biophysical, and Biological Studies of New Hydrazone Derivatives. J Med Chem. 59 (12), 5706-5720 (2016).
- Wells, R. D. Non-B DNA conformations, mutagenesis and disease. Trends Biochem Sci. 32 (6), 271-278 (2007).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
