Questa revisione mira a esplorare il ruolo meccanicistico del potenziale transitorio ankyrin 1 (TRPA1) nella patogenesi del CIPN e a valutarne il potenziale come bersaglio terapeutico per interventi immunomodulatori e antinfiammatori.
Articolo di revisione
TRPA1 nella neuropatia periferica indotta dalla chemioterapia: un bersaglio promettente per l'immunomodulazione e la terapia antinfiammatoria
In questo articolo
Sommario
Abstract
La neuropatia periferica indotta dalla chemioterapia (CIPN) è una condizione clinica comune e grave che si verifica quando un agente chemioterapico danneggia il sistema nervoso periferico ed è solitamente caratterizzata da un dolore anomalo agli arti distali e da una maggiore sensibilità agli stimoli caldi e freddi. Tuttavia, sono disponibili pochi trattamenti clinici per la CIPN, quindi è fondamentale identificare modalità di trattamento efficaci. Il potenziale transitorio ankirina 1 (TRPA1), un recettore da lesione, può essere attivato dallo stress ossidativo, da mediatori infiammatori e da condizioni di ipotermia durante la patogenesi e la progressione del CIPN. TRPA1 modula la via infiammatoria a valle e promuove il rilascio di fattori infiammatori e neuropeptidi, causando una regolazione immunitaria anoma, che a sua volta porta a una risposta infiammatoria neurogena e a una segnalazione del dolore. In questo studio viene esaminato il ruolo di TRPA1 nella patogenesi del CIPN, si verifica la possibilità di indirizzare TRPA1 per trattare il CIPN inibendo la neuroinfiammazione e si esplorano le prospettive di utilizzare antagonisti di TRPA1 e erbe naturali per il trattamento clinico del CIPN.
Introduzione
Il cancro rimane una delle principali sfide globali per la salutepubblica 1. Sebbene la chemioterapia svolga un ruolo cruciale nel migliorare la sopravvivenza al cancro, spesso è accompagnata da gravi effetti collaterali, tra cui il CIPN è una delle complicazioni più comuni e complesse. Il CIPN è clinicamente caratterizzato da dolore simmetrico, parestesia e sensibilità anomala al freddo o al calore nelle estremità distali2, e alcuni pazienti possono anche sperimentare una compromessa della coordinazione motoriafine 3. L'incidenza riportata di CIPN varia ampiamente, variando da circa il 50% al 90%, e circa il 30%-40% dei casi può evolvere a complicazioni neurologichecroniche 2, riducendo significativamente la qualità della vita dei pazienti e la conformità al trattamento. Il rischio di sviluppare CIPN è influenzato da molteplici fattori, tra cui la modalità di somministrazione (dose singola, dose cumulativa o durata del trattamento), i farmaci concomitanti, l'età, l'anemia, un indice di massa corporea (BMI) più alto e la neuropatiapreesistente 2,4,5. Gli agenti antineoplastici riportati come induzionisti di diversi gradi di neurotossicità includono composti a base di platino, taxani, alcaloidi di vinca, inibitori del proteassoma (come il bortezomib), farmaci epigenetici o immunomodulatori (come talidomide e lenalidomide) e inibitori dei microtubuli (come l'eribulina)6.
Attualmente, le opzioni farmacologiche per la gestione del CIPN rimangono limitate. L'American Society of Clinical Oncology (ASCO) raccomanda la duloxetina come unico intervento farmacologico con supporto basato su evidenze per il trattamento CIPN. Studi clinici hanno dimostrato che la duloxetina è efficace nell'alleviare il dolore correlato al CIPN, con il suo beneficio terapeutico più marcato nella neuropatia indotta da agenti chemioterapeutici a base di platino, in particolare l'ossalaliplatino (OXA), mentre la sua efficacia nel CIPN causata da altri agenti, come taxani e alcaloidi di Vinca, sembra essere più variabile tra gli studi7. Nonostante la sua dimostrata efficacia analgesica, il beneficio clinico complessivo della duloxetina è moderato, poiché fornisce principalmente sollievo sintomatico piuttosto che prevenire il CIPN o invertire i cambiamenti patologici sottostanti. Inoltre, sebbene la duloxetina sia generalmente ben tollerata, il trattamento può essere accompagnato da effetti avversi da lievi a moderati, tra cui stanchezza, insonnia e nausea, che possono limitare l'aderenza a lungo termine in alcuni pazienti. Altri agenti comunemente usati, come gabapentin e pregabalin, sono impiegati per la gestione sintomatica ma hanno mostrato risultati terapeutici incoerenti o insoddisfacenti nel CIPN 8,9. Pertanto, rimane urgente la necessità di sviluppare strategie preventive più efficaci e di identificare nuovi target terapeutici per il CIPN.
Negli ultimi anni, con la comprensione più approfondita della patogenesi della CIPN, molteplici meccanismi come la risposta infiammatoria, lo stress ossidativo e le alterazioni nella plasticità neurale hanno gradualmente attirato un'attenzione crescente 10,11,12. Tra questi, lo stress ossidativo e la neuroinfiammazione sono considerati contributori centrali all'inizio e alla progressione della lesione neuronale nella CIPN. È importante sottolineare che il canale TRPA1, un canale ionico sensibile al redox abbondantemente espresso nei neuroni sensoriali, è emerso come un mediatore molecolare chiave che collega lo stress ossidativo e la segnalazione infiammatoria all'ipereccitabilità neuronale e all'ipersensibilità aldolore 13,14. Distinto da TRPV1, che rileva principalmente il calore nocivo, e TRPM8, che rileva stimoli freddi, TRPA1 si caratterizza per la sua elevata sensibilità a vari metaboliti ossidativi ed elettrofili come il 4-idrossinonenale (4-HNE)15. L'attivazione di TRPA1 comporta tipicamente la modifica covalente dei residui critici dicisteina 16, un meccanismo unico che posiziona TRPA1 come un ponte molecolare cruciale che collega lo stress ossidativo e da perossidazione lipidica indotto dalla chemioterapia allo sviluppo di ipersensibilità al dolore. Inoltre, diversi studi su animali hanno dimostrato un coinvolgimento funzionale di TRPA1 nel dolore neuropatico indotto dalla chemioterapia. In particolare, nei modelli di neuropatia indotta da OXA, l'ablazione genetica o il blocco farmacologico di TRPA1 alleviano notevolmente l'allodinia fredda e meccanica, indicando un contributo cruciale di TRPA1 alla patogenesi di CIPN17,18.
In particolare, TRPA1 è un canale ionico sensibile al redox altamente espresso nei neuroni nocicettivi periferici. Gli agenti chemioterapici inducono frequentemente disfunzioni mitocondriali, stress ossidativo e perossidazione lipidica nei neuroni, portando a un eccessivo accumulo di specie reattive dell'ossigeno (ROS) e prodotti di perossidazione lipidica come la 4-HNE. Queste molecole reattive possono modificare covalentemente i residui chiave di cisteina di TRPA1 o alterarne la soglia di attivazione, causando apertura dei canali, afflusso di Ca²⁺ e depolarizzazione neuronale, amplificando così la trasmissione del dolore e la segnalazioneinfiammatoria 19,20,21. Studi precedenti hanno inoltre dimostrato che TRPA1 è sensibile al freddo e può essere attivata da mediatori infiammatori endogeni, contribuendo allo sviluppo di ipersensibilità al dolore indotta dalfreddo 22. Inoltre, è stato dimostrato che TRPA1 agisce come un canale ionico meccanosensibile la cui attività è modulata dallo stato redox cellulare, partecipando a dolori meccanici anomali eipersensibilità 22,23. Oltre ai neuroni, TRPA1 è espresso anche in molteplici tipi di cellule immunitarie, dove la sua attivazione modula il rilascio di citochine e le cascate infiammatorie, amplificando ulteriormente la neuro-infiammazioneperiferica 24. Collettivamente, la sensibilità al freddo, la meccanosensibilità e la reattività redox di TRPA1 stabiliscono un chiaro legame meccanicistico tra lo stress ossidativo indotto dalla chemioterapia e i processi patologici del dolore che ne derivano, contribuendo così all'innesco e al mantenimento della CIPN. Di conseguenza, mirare a TRPA1 per interrompere il circolo vizioso di stress ossidativo e tossicità neuroinfiammatoria può rappresentare una strategia terapeutica promettente per la gestione del dolore neuropatico periferico indotto dalla chemioterapia. In studi esistenti, le strategie di intervento mirate a TRPA1 sono state validate in più sistemi modelli. In vitro, colture di neuroni DRG combinate con imaging calcio sono comunemente utilizzate per verificare l'impatto dell'attivazione di TRPA1 sull'eccitabilità neuronaleindotta dalla chemioterapia 25. In vivo, il CIPN viene tipicamente indotto nei roditori usando OXA, paclitaxel o bortezomib, seguito da inibizione farmacologica o genetica di TRPA1 e successive valutazioni comportamentali come ipersensibilità al freddoe meccanica 17,26,27. A livello terapeutico, gli antagonisti di TRPA1 hanno dimostrato efficacia nell'alleviare il dolore neuropatico nei modellipreclinici 28,29. Collettivamente, questi risultati forniscono una solida base sperimentale per la ricerca traslazionale che mira a TRPA1 come strategia terapeutica per il CIPN.
Le ricerche attuali hanno già rivelato una possibile connessione tra TRPA1 e CIPN. Tuttavia, questi studi si sono concentrati principalmente sull'impatto diretto di TRPA1 sulla trasmissione del segnale di dolore e sul suo ruolo locale nella risposta infiammatoria. Tuttavia, manca ancora una ricerca sistematica e un'esplorazione approfondita dei meccanismi attraverso cui TRPA1 modula le risposte immunitarie per influenzare il processo patologico complessivo del CIPN. Pertanto, questo articolo discute i potenziali meccanismi del CIPN, con particolare attenzione all'esplorazione del ruolo di TRPA1 nella patogenesi del CIPN. Lo stato attuale delle ricerche sugli antagonisti di TRPA1 e sulle erbe naturali viene inoltre riassunto per validare la fattibilità di inibire TRPA1 e produrre effetti immunitari antinfiammatori per il trattamento del CIPN. L'innovazione di questo articolo risiede nello studio sistematico del ruolo di TRPA1 nella patogenesi del CIPN da una prospettiva immuno-regolatoria, superando le precedenti limitazioni della ricerca che si concentravano esclusivamente sui suoi effetti nelle cellule nervose o sull'infiammazione locale. Inoltre, fornisce nuovi obiettivi e supporto teorico per lo sviluppo di farmaci per il trattamento del CIPN, con grande importanza scientifica e valore di applicazione clinica.
Revisione e prospettiva
1. Meccanismi potenziali per il CIPN
Il meccanismo patologico del CIPN è complesso e associato a disfunzioni mitocondriali indotte da farmaci chemioterapici, stress ossidativo, anomalie del sistema immunitario, disregolazione dei canali ionici, danni ai neuroni del ganglio della radice dorsale (DRG) e alterazione del citoscheletroneuronale 2,30,31,32,33,34,35,36,37. 38,39,40,41,42. La Tabella 1 fornisce una panoramica dei meccanismi patogeni specifici coinvolti nel CIPN.
- Disfunzione mitocondriale e stress ossidativo
Gli agenti chemioterapici inducono alterazioni morfologiche mitocondriali, disturbi bioenergetici e una produzione eccessiva di ROS, portando a danni strutturali mitocondriali, compromissione funzionale e stressossidativo12,43. Questi eventi attivano le cellule immunitarie, aumentano i livelli di citochine proinfiammatorie e attivano vie di segnalazione infiammatorie, contribuendo infine allo sviluppo della CIPN. In particolare, gli agenti chemioterapeutici a base di platino formano addotti di DNA platino che si accumulano nel DRG, dove si legano al DNA nucleare (nDNA) e al DNA mitocondriale (mtDNA). Questo promuove il reticolamento, altera la struttura e la sintesi del DNA nucleare, induce danni al DNA/mitocondriali, aumenta la produzione di ROS, attiva i canali correlati ai recettori di lesione e induce l'apoptosi neuronale. Ci sono anche evidenze che l'OXA induce dolore neuropatico attivando gli astrociti e regolando al rialzo le citochine proinfiammatorie nella via della proteina chinasi attivata dal mitogeno (MAPK).
Oltre ai composti a base di platino, altri agenti chemioterapici possono compromettere l'integrità mitocondriale attraverso diversi meccanismi. Il pacillixaselo interferisce sia con il trasporto assonale che con quello mitocondriale, portando all'apertura del poro di transizione della permeabilità mitocondriale (mPTP). Questo evento comporta la perdita del potenziale della membrana mitocondriale, l'eccessiva generazione di ROS, l'esaurimento di ATP, il fuoriversamento di calcio e il gonfiore mitocondriale. Il bortezomib, invece, inibisce l'attività proteasomica e disturba l'omeostasi delle proteine cellulari, inducendo così danni strutturali mitocondriali e compromissione funzionale. Queste alterazioni si manifestano come gonfiore mitocondriale e vacuolizzazione, disregolazione del calcio, soppressione della catena respiratoria, riduzione della produzione di ATP e accumulo di ROS. Inoltre, la vincristina (VCR) inibisce la polimerizzazione dei microtubuli, che compromette il trasporto mitocondriale lungo gli assoni e porta successivamente a una riduzione del potenziale di membrana, omeostasi del calcio disturbata e eccitabilità neuronale anomala. Collettivamente, questi agenti evidenziano il ruolo centrale della disfunzione mitocondriale negli effetti neurotossici dei farmaci chemioterapeutici 41,44,45,46,47.
Analogamente, la disfunzione mitocondriale funge da regolatore centrale della segnalazione proinfiammatoria, mentre l'infiammazione, a sua volta, aggrava i danni mitocondriali, creando così un circolo vizioso dineurotossicità 30,31. In particolare, il ROS generato durante questo processo attiva direttamente il canale ionico sensibile al redox TRPA1, inducendo l'afflusso di calcio, l'ipereccitabilità neuronale e sintomi caratteristici associati al CIPN come allodinia da raffreddore e meccanica. Pertanto, lo stress ossidativo agisce come un nexus fondamentale che collega il danno mitocondriale, l'attivazione di TRPA1 e la patogenesi del CIPN. La Figura 1 illustra i meccanismi attraverso cui la disfunzione mitocondriale e lo stress ossidativo contribuiscono allo sviluppo del CIPN. - Anomalie nel sistema immunitario
- Interazioni neuroimmuni
Le interazioni neuroimmuni svolgono un ruolo cruciale nello sviluppo e nella persistenza del CIPN. Ogni numero di evidenze suggeriscono che la comunicazione tra il sistema nervoso e quello immunitario contribuisce in modo significativo alla sua patogenesi. Gli agenti chemioterapici inducono stress cellulare e lesioni assonali, portando al rilascio di pattern molecolari associati al danno (DAMP) che attivano la segnalazione del recettore Toll-like 4 (TLR4) su macrofagi e cellule gliali. Questa attivazione favorisce la polarizzazione dei macrofagi M1 e la secrezione di chemochine come CCL2 e CXCL10, che reclutano linfociti T CD4+ e CD8+ e cellule B nella DRG, riducendo al contempo il numero di cellule T antinfiammatorie 48,49,50,51. Sebbene i neutrofili siano altamente suscettibili agli effetti citotossici della chemioterapia, che portano a neutropenia sistemica, diversi studi hanno riportato un aumento dell'attivazione e dell'infiltrazione dei neutrofili nel sistema nervoso periferico e nella DRG durante la neuropatia indotta dallachemioterapia 32. I mastociti (MC) regolano ulteriormente le risposte proinfiammatorie reclutando cellule immunitarie e rilasciando una varietà di citochine infiammatorie. Inoltre, le citochine proinfiammatorie possono sopprimere l'attività delle cellule natural killer (NK), aggravando la neuroinfiammazione e lo stress ossidativo e favorendo così la progressione delCIPN 52.
Gli agenti chemioterapeutici possono anche alterare l'espressione di geni associati alle funzioni immunitarie e neuronali nei neuroni sensoriali. Ad esempio, il VCR regola al rialzo l'espressione del fattore di trascrizione attivante 3 (Atf3) e della neurotensina (Nts), modulando così il rilascio di chemochine e promuovendo il reclutamento delle cellule immunitarie nella DRG, che a sua volta influenza la risposta neuroinfiammatoria. OXA regola l'espressione della prostaglandina-H2D-isomerasi (Ptgds) e del piccolo gene nucleolare 1 dell'ospite (Snhg1), che sono coinvolti nella sintesi dei mediatori infiammatori e nella modulazione della plasticità neuronale, influenzando così l'eccitabilità neuronale e la trasmissione dei segnali di dolore. Al contrario, il cisplatino (CDDP) altera l'espressione della lipocalina-2 (Lcn2) e dell'homeobox 2 del dito di zinco (Zfhx2), disturbando l'omeostasi metabolica neuronale e la regolazione trascrizionale, e di conseguenza promuovendo neuroinfiammazione e disfunzioneneuronale 53. Collettivamente, la disregolazione di questi profili di espressione genica sotto stress chemioterapico rivela la complessa interazione tra lesione neuronale e attivazione immunitaria durante la patogenesi del CIPN.
Inoltre, TRPA1 si esprime non solo nei neuroni sensoriali ma anche nelle cellule immunitarie come macrofagi e MC, dove media il rilascio di citochine proinfiammatorie. Questa doppia espressione neuronale e immunitaria di TRPA1 può rappresentare un collegamento molecolare chiave che guida la diafonia neuroimmune e l'infiammazione alla base del CIPN. - Esacerbazione della neuroinfiammazione
Gli agenti chemioterapici modulano l'attivazione e la secrezione dei mediatori immunitari dalle cellule gliali satellitari (SGC) nella DRG, dalla microglia e dagli astrociti nel midollo spinale, e dalle cellule di Schwann negliassoni 54. L'attivazione delle cellule immunitarie aumenta i livelli di citochine proinfiammatorie, come il fattore di necrosi tumorale alfa (TNF-α), l'interleuchina-1 beta (IL-1β), l'interleuchina-6 (IL-6), l'interleucina-8 (IL-8), l'interleucina-20 (IL-20), che favoriscono la neuroinfiammazione e la sensibilizzazione neuronale; al contrario, l'espressione di citochine antinfiammatorie come l'interleuchina-10 (IL-10) e l'interleuchina-4 (IL-4) viene soppressa, compromettendo la risoluzione dell'infiammazione. Parallelamente, chemiocine come CCL2, CXCL1, CXCL12, CX3CL1 e CCL3 contribuiscono al reclutamento delle cellule immunitarie e alle interazioni gliale-neuronali. Questi cambiamenti attivano collettivamente vie chiave di segnalazione infiammatoria, come MAPK e il fattore nucleare kappa-light-chain-enhancer delle cellule B attivate (NF-κB), che aumentano ulteriormente la produzione di citochine e l'ipereccitabilitàneuronale 54,55,56,57,58,59. La Figura 2 illustra i meccanismi con cui la disregolazione del sistema immunitario induce il CIPN.
È importante sottolineare che studi recenti hanno dimostrato che TRPA1 agisce come un effettore critico a valle e amplificatore di queste cascate infiammatorie. Le citochine proinfiammatorie e i mediatori ossidativi possono sensibilizzare o attivare direttamente i canali TRPA1 sui neuroni sensoriali, collegando così la neuroinfiammazione a una maggiore eccitabilità neuronale e all'ipersensibilità al dolore in CIPN60,61.
- Interazioni neuroimmuni
- Disregolazione dei canali ionici
- Canali di potassio
Gli agenti chemioterapeutici inducono una risposta neuroinfiammatoria, portando all'espressione aberrante dei canali Kir4.1, che favorisce l'attivazione degli SGC, la regolazione all'alto della proteina gliale fibrillaria acida (GFAP) e il rilascio di citochine proinfiammatorie (ad esempio, TNF-α e IL-6). Questo aggrava l'eccitabilità dei neuroni DRG e induce CIPN33. - Canali TRP
I canali TRP sono coinvolti nella risposta infiammatoria e nel dolore neuropatico associati al CIPN e possono essere attivati dallo stress ossidativo indotto dalla chemioterapia. Tra questi, il canale TRPA1, prevalentemente localizzato nei neuroni sensoriali, media l'infiammazione neurogena rilasciando neuropeptidi come il peptide legato al gene calcitoninico (CGRP) e la sostanza P (SP), che favoriscono il reclutamento delle cellule immunitarie nei siti di lesione. Nel frattempo, TRPA1 è espresso anche nelle cellule gliali e immunitarie, dove la sua attivazione stimola il rilascio di citochine e chemiochine proinfiammatorie, potenziando ulteriormente il reclutamento delle cellule immunitarie e amplificando la risposta infiammatoria. Collettivamente, TRPA1 funge da ponte cruciale tra il sistema nervoso e quello immunitario, contribuendo all'aumento dell'infiammazione e dell'ipersensibilità neuronale nel CIPN. Pertanto, l'antagonismo di TRPA1 può alleviare il dolore attraverso la duale modulazione neuro-immunitaria inibendo il rilascio di CGRP e SP, riducendo l'infiammazione neurogena e il reclutamento delle cellule immunitarie, e abbassando i livelli di citochineproinfiammatorie 62.
Singh et al. hanno riferito che il trattamento con OXA ha aumentato la coespressione del potenziale recettore transitorio vanilloide 1 (TRPV1) e del potenziale recettore transitorio M8 (TRPM8) con TRPA1 nei DRG dei ratti, portando a comportamenti dolorosi neuropatici aumentati. In particolare, TRPA1 e TRPV1 condividono la diafonia funzionale nella segnalazione del dolore indotta dalla chemioterapia; tuttavia, le applicazioni cliniche attuali si concentrano principalmente sull'agonista di TRPV1 capsaicina, che allevia il dolore neuropatico desensibilizzando i nocicettori34 espressori di TRPV1. Questo fornisce una prospettiva per lo sviluppo futuro di strategie analgesiche mirate a TRPA1. Collettivamente, TRPA1 agisce come un integratore fondamentale dello stress ossidativo, dell'attivazione immunitaria e della segnalazione del dolore, rendendolo un bersaglio promettente sia per terapie analgesiche che antinfiammatorie nel CIPN.
- Canali di potassio
- Lesione neuronale della DRG
- Danno Neuronale Diretto
La DRG è il sito principale interessato dalla CIPN, ma i meccanismi di danno neuronale differiscono tra gli agenti chemioterapici. La Figura 3 mostra le vie distinte coinvolte nella lesione neuronale della DRG indotta da vari farmaci. Ad esempio, il PTX promuove l'infiltrazione dei macrofagi nella DRG, che successivamente riduce il numero di fibre nervose intraepidermiche (IEF) e accelera la progressione della CIPN35. Gli agenti a base di platino si accumulano nei neuroni DRG, causando disfunzione mitocondriale, eccessiva produzione di ROS e apoptosi neuronale. La talidomide può indurre direttamente danni neuronali DRG. Inoltre, diversi agenti chemioterapici alterano l'espressione e la funzione dei canali ionici sodio, potassio e calcio, portando all'ipereccitabilitàneuronale 36,37. La rottura delle strutture microtubulari nella DRG compromette ulteriormente il trasporto assonale e scatena la degenerazione walleriana, portando infine alla perdita delle fibre nervose e a una compromessa trasmissioneneurale 38. - Danno indiretto mediato dal sistema immunitario
Oltre alla tossicità neuronale diretta, gli agenti chemioterapici possono danneggiare indirettamente i neuroni DRG tramite l'attivazione della segnalazione immunitaria innata. Il danno cellulare causato da questi agenti rilascia DAMP, che a loro volta attivano i recettori di riconoscimento dei pattern (PRR) come TLR4 e il recettore per i prodotti finali di glicazione avanzata (RAGE). L'attivazione di questi recettori induce cascate neuroinfiammatorie, amplifica l'eccitabilità neuronale e aggrava il doloreneuropatico 39. Collettivamente, questi risultati suggeriscono che gli agenti chemioterapici inducono lesioni DRG sia attraverso meccanismi citotossici diretti sia vie immunitarie mediate indirettamente, contribuendo così all'insorgenza e alla progressione della CIPN.
- Danno Neuronale Diretto
- Disturbo del citoscheletro neuronale
Studi precedenti hanno dimostrato che la depolimerizzazione dei microtubuli indebolisce direttamente l'integrità strutturale dei neuroni e ne compromette la capacità di allungamento assonale. Lo smontaggio del citoscheletro causa irregolarità sulla superficie neuronale, e queste alterazioni meccaniche possono fungere da segni fisici distintivi del CIPN40. Un altro studio di Chine et al. è stato il primo a dimostrare che Hsp27 può prevenire il CIPN proteggendo la struttura assonale. A differenza dei meccanismi antinfiammatori tradizionali, Hsp27 esercita effetti neuroprotettivi regolando le vie apoptotiche e mantenendo la stabilità delcitoscheletro 46.
Gli alcaloidi di Vinca (come la vincristina, il VCR) si legano specificamente alle estremità della β-tubulina, bloccando la formazione del fuso e il trasporto assonale, portando alla depolimerizzazione dei microtubuli e a difetti nella crescita delleneuriti 40. Al contrario, il paclitasso stabilizza i microtubuli e ne impedisce la depolimerizzazione, interrompendo così la trasmissione del segnale elettrico e il trasporto mitocondriale all'interno degli assoni, inducendo così la demielinizzazione delle fibre nervoseperiferiche 41. Il bortezomib, attraverso una via non proteasomale, induce un'eccessiva polimerizzazione dei microtubuli, inibisce l'estensione delle neuriti e innesca la degenerazioneassonale 42.
Questi farmaci congiuntamente portano a compromissione del trasporto assonale, apoptosi neuronale e perdita della conduzione neurale, formando la base patologica centrale del CIPN. Inoltre, l'attivazione della via di segnalazione RhoA/ROCK/LIMK/cofilin impedisce la rimodellazione dei filamenti di actina, inbenendo ulteriormente la rigenerazioneassonale 63. La rottura del citoscheletro interagisce anche con difetti di trasporto mitocondriale e attivazione della calpaina, formando un ciclo feroce di "struttura-energia-apopttosi" che accelera la progressione di CIPN64.
2. Meccanismi del CIPN associati a TRPA1
TRPA1 è un canale cationico non selettivo che tipicamente esiste come omotetramero nella membrana cellulare. Contiene sei segmenti transmembrana (S1-S6) caratteristici dei canali TRP. Tra questi, S1-S4 formano il dominio simile al sensore di tensione (VSLD), mentre S5 e S6 modellano il poro attraverso cui gli ioni passano. Queste regioni sono essenziali per l'attivazione del canale e il suo ruolo nel rilevare stimoli dolorosi, termici echimici 65. La lunga regione N-terminale di TRPA1 contiene molteplici domini di ripetizione anchirinica (ARD), che mediano le interazioni con altre proteine e contribuiscono alla regolazione dei canali. Questa regione funge anche da sito chiave per la modulazione da parte delle chinasi coinvolte nella segnalazione del dolore66,67. Al capolinea C, il dominio simile a TRP si collega alla regione transmembrana e svolge un ruolo centrale nel channel gating. Il movimento di questo dominio, insieme ai riarrangiamenti di S5 e S6, è alla base dell'apertura dei canali e dell'afflusso di Ca2+, che attiva le vie di segnalazione a valle coinvolte in infiammazione e dolore68,69. Nel complesso, gli ARD, le eliche transmembrana (S1-S6) e il dominio simile a TRP sono le principali caratteristiche strutturali che determinano l'attivazione di TRPA1 e il suo ruolo nel dolore e nella segnalazione infiammatoria. La Figura 4 illustra i principali domini strutturali di TRPA1 rilevanti per la sua attivazione da parte di agenti chemioterapeutici, mentre la Tabella 2 riassume i meccanismi del CIPN associati a TRPA1 61,62,70,71,72,73,74,75,76,77,78,79 ,80,81,82,83.
- Attivazione da TRPA1 mediata dallo stress ossidativo in CIPN
- Lo stress ossidativo è un fattore importante sia all'efficacia antitumorale sia alla neurotossicità dei farmacichemioterapici 84. TRPA1 funziona come un canale ionico sensibile a redox ed elettrofilo che si attiva in condizioni di elevato stress ossidativo durante la chemioterapia. I fosfolipidi ossidati (OxPAPC) e altri elettrofili derivati da specie reattive dell'ossigeno (ROS) modificano covalentemente i residui di cisteina nel dominio N-terminale di TRPA1, attivando così il canale e favorendo l'afflusso di calcio. Questa attivazione porta al rilascio di neuropeptidi e mediatori infiammatori come CGRP e SP, che mediano la trasmissione anomala del dolore e l'infiammazione neurogena nella patogenesiCIPN 61,70. Nel frattempo, l'infiammazione periferica scatenata dai farmaci chemioterapeutici provoca una generazione eccessiva e accumulo di ROS nei gangli sensoriali, che attivano e regolano ulteriormente TRPA1, formando un circolo di retroazione positivo ROS-TRPA1 che amplifica l'ipersensibilità infiammatoria emeccanica 85.
Anche il CIPN indotto da CDDP si basa su questo meccanismo, poiché il CDDP promuove la produzione di ROS nei tessuti orali, attivando TRPA1 e portando a dolore orofaccialepersistente 86. Analogamente, OXA modula l'attività di TRPA1 attraverso molteplici meccanismi. Da un lato, OXA attiva direttamente TRPA1 tramite un meccanismo sensibile al glutatione, portando all'acidificazione citoplasmatica nei neuroniDRG 71,87. D'altra parte, OXA inibisce la prolil idrossilasi (PHD), impedendo così l'idrossilazione dei residui di prolina nella regione N-terminale di TRPA1, il che aumenta la sensibilità del canale alla ROS e ne incrementa notevolmente la reattività agli stimolifreddi 71. Inoltre, OXA attiva la via di segnalazione p38 MAPK, promuovendo ulteriormente l'ipersensibilità al freddomediata da TRPA1 88.
Gli studi sugli animali hanno fornito solide prove a sostegno di questi meccanismi. Nei topi selvatici trattati con OXA, sono state osservate pronunciate allodine meccaniche e ipersensibilità al freddo, mentre queste risposte sono state significativamente attenuate nei topi knockoutTRPA1 89. Sono stati inoltre ottenuti risultati coerenti in un modello larvale di CIPN a base di pesce zebra, in cui l'attivazione di TRPA1 ha aumentato la produzione di ROS promuovendo lo stress ossidativo e la trasduzione del segnale di dolore, sostenendo così la risposta al dolore90. Collettivamente, questi risultati indicano che TRPA1 funziona come un nexus critico che collega il rilevamento ROS all'amplificazione del dolore, formando una via centrale attraverso la quale lo stress ossidativo media il dolore neuropatico nella CIPN.
- Lo stress ossidativo è un fattore importante sia all'efficacia antitumorale sia alla neurotossicità dei farmacichemioterapici 84. TRPA1 funziona come un canale ionico sensibile a redox ed elettrofilo che si attiva in condizioni di elevato stress ossidativo durante la chemioterapia. I fosfolipidi ossidati (OxPAPC) e altri elettrofili derivati da specie reattive dell'ossigeno (ROS) modificano covalentemente i residui di cisteina nel dominio N-terminale di TRPA1, attivando così il canale e favorendo l'afflusso di calcio. Questa attivazione porta al rilascio di neuropeptidi e mediatori infiammatori come CGRP e SP, che mediano la trasmissione anomala del dolore e l'infiammazione neurogena nella patogenesiCIPN 61,70. Nel frattempo, l'infiammazione periferica scatenata dai farmaci chemioterapeutici provoca una generazione eccessiva e accumulo di ROS nei gangli sensoriali, che attivano e regolano ulteriormente TRPA1, formando un circolo di retroazione positivo ROS-TRPA1 che amplifica l'ipersensibilità infiammatoria emeccanica 85.
- Il ruolo di TRPA1 nella regolazione immunitaria e nel dolore infiammatorio
TRPA1 è un canale cationico non selettivo, sensibile al redox, espresso sia nel sistema nervoso sensoriale periferico sia in vari tipi di cellule immunitarie. Può essere attivato da stress ossidativi, nitrativi e aldeideci indotti da farmaci chemioterapici, così come da mediatori infiammatori ed stimoli elettrochimici, svolgendo così un ruolo fondamentale nelle risposte infiammatorie e nella sensibilizzazione al dolore durante il CIPN24,91,92.- TRPA1 regola la neuroinfiammazione mediata dalle cellule immunitarie
Nel sistema nervoso periferico, TRPA1 è meglio caratterizzata nei neuroni sensoriali DRG, dove funge da mediatore chiave della nocicezione. Durante la chemioterapia, livelli elevati di ROS, specie reattive di azoto (RNS) e metaboliti aldeidici, provenienti principalmente da neuroni danneggiati e dalle cellule di Schwann circostanti, possono attivare direttamente TRPA1 neuronale, portando a un'eccitabilità neuronale aumentata e a una ipersensibilità al dolore93. Nel frattempo, nei neuroni sensoriali, è stato dimostrato che la segnalazione TLR4 aumenta l'espressione di TRPA1 nei neuroni DRG, aumentando così l'ipersensibilità al dolore94.
Oltre ai neuroni, le cellule di Schwann esprimono anche TRPA1, che può essere attivata dallo stress ossidativo. Le cellule di Schwann attivate amplificano i segnali ROS e rilasciano mediatori infiammatori, formando un circuito di feedback "cellula di Schwann-neurone-TRPA1" che sostiene la neuroinfiammazione e contribuisce allo sviluppo di CIPN72,73. Studi su animali hanno dimostrato che la riduzione dei macrofagi residenti nel nervo sciatico attenua notevolmente il dolore cancro indotto dall'attivazione delle cellule di Schwann TRPA1 e dallo stress ossidativo, evidenziando l'interazione tra cellule di Schwann e cellulemieloidi 73.
Oltre ai neuroni sensoriali, TRPA1 è espresso funzionalmente in diverse popolazioni di cellule immunitarie, tra cui macrofagi, cellule T, cellule NK e MCs 24,74,95. ROS, RNS e metaboliti generati durante la chemioterapia possono attivare TRPA1 in queste cellule, portando a risposte immunitarie diverse a seconda del tipocellulare 91. Nei macrofagi, TRPA1 sopprime l'attivazione proinfiammatoria, promuove un fenotipo antinfiammatorio e limita l'infiltrazione dei macrofagi, esercitando così effetti antinfiammatori e protettividei tessuti 14,96. Nei linfociti, l'attivazione di TRPA1 sopprime l'attivazione delle cellule T e le funzioni degli effettori, regolando negativamente le risposte immunitarie mediate dalle celluleT 97, mentre l'influsso di Ca 2+ mediato da TRPA1 può aumentare la citotossicità delle cellule NK, modulando le risposte neuroinfiammatorie dopo lesioninervose 52,74. Nei mastocitici, l'attivazione di TRPA1 è stata implicata nella degranulazione indotta dallo stress e nella segnalazione proinfiammatoria, contribuendo all'amplificazione dell'infiammazione allergica eneurogena 24,75.
Insieme, queste osservazioni suggeriscono che TRPA1 funga da hub di segnalazione che collega neuroni, cellule di Schwann e cellule immunitarie, con un'elevata attivazione di TRPA1 in ciascun tipo cellulare che contribuisce all'innesco e al mantenimento del CIPN. La Figura 5 mostra i meccanismi proposti per la diafonia neuroimmune mediata da TRPA1 e la segnalazione del dolore nel CIPN. - TRPA1 nel dolore infiammatorio e nella nocicezione correlata al CIPN
Nel sistema nervoso sensoriale, TRPA1 è prevalentemente localizzato nei neuroni sensoriali primari della DRG, nei gangli trigeminali (TG) e nei gangli vagali (VG). I prodotti dello stress ossidativo, i mediatori infiammatori e la segnalazione della proteina chinasi (PKA/PKC) indotti da agenti chemioterapici aumentano la fosforilazione e l'attività dei canali diTRPA1 26. L'attivazione del canale aumenta l'afflusso intracellulare di Ca2+ , scatenando il rilascio di neuropeptidi come SP, neurokinina A (NK-A) e CGRP, che promuovono vasodilatazione, estravasazione plasmatica e reclutamento delle cellule immunitari, inducendo così infiammazione neurogena e sensibilizzazione aldolore 62.
In condizioni infiammatorie, livelli elevati di citochine proinfiammatorie (famiglia IL-1, TNF-α, IL-6, IL-8) e chemiocine (CXCL5/CXCR2) aumentano ulteriormente la produzione di ROS e l'attivazione di TRPA1, portando alla depolarizzazione della membrana e all'ipereccitabilità dei neuroni DRG, contribuendo infine al dolore neuropatico. Inoltre, mediatori infiammatori come NGF aumentano l'espressione di TRPA1, formando un circolo di feedback positivo che mantiene infiammazione edolore 14,98,99,100. TRPA1 partecipa anche sia alla sensibilizzazione periferica che a quella centrale, amplificando così la trasmissione del dolore101.
Inoltre, TRPA1 promuove la segnalazione nocicettiva modulando le vie correlate all'infiammazione. Il TRPA1 alzante aumenta l'afflusso di Ca2+ e attiva la via della pannexina-1 (PANX1), aumentando il rilascio di trifosfato di adenosina (ATP). L'ATP extracellulare, agendo come neurotrasmettitore, contribuisce ulteriormente all'ipersensibilità al dolore102. Gli agenti chemioterapici possono anche sensibilizzare TRPA1 tramite l'attivazione dei recettori della bradicinina B2 e la segnalazione a valle di PLC/PKCε nei mastociti, aggravando il dolore correlato alCIPN 103. Al contrario, è stato dimostrato che composti oppioidi come la loperamide sopprimono l'attività di TRPA1 e dei canali di sodio dipendente dal voltaggio (VGSC), inibissero l'attivazione microgliale e lo stress ossidativo, e di conseguenza alleviano l'iperalgesia in CIPN104,105.
In sintesi, TRPA1 funge da bersaglio molecolare chiave che collega lo stress ossidativo e la segnalazione infiammatoria nel CIPN. Coordinando le interazioni bidirezionali tra cellule immunitarie e neuroni sensoriali, TRPA1 non solo innesca e propaga l'infiammazione, ma amplifica anche il dolore, fungendo da ponte fondamentale tra la regolazione immunitaria, la neuroinfiammazione e l'ipersensibilità nocicettiva. - Diafona tra canali ionici mediati da TRPA1 e sensibilizzazione neuronale DRG
TRPA1 è fortemente espressa nei neuroni sensoriali lesi, in particolare nel DRG, e agisce come canale ionico chiave che media il CIPN. Modula l'eccitabilità neuronale e favorisce la trasmissione del segnale nocicettivo attraverso l'interazione con più canali ionici. Ad esempio, l'attivazione di TRPV1 può aumentare la sensibilità a TRPA1, e entrambi i canali sono spesso co-espressi, contribuendo sinergicamente allodinia fredda e iperalgesiameccanica 76,106. Inoltre, TRPA1 mostra funzioni complementari con il canale sensibile al freddo TRPM8: TRPM8 media sensazioni innocue di raffreddamento nell'intervallo di 25-28 °C, mentre TRPA1 viene attivato sotto i 17 °C ed è responsabile del rilevamento di stimoli intensi e nocivi al freddo. L'attivazione anomala di entrambi i canali è stata implicata nell'ipersensibilità al freddo comunemente osservata nei pazienti conCIPN 77. Lo stress ossidativo indotto dalla chemioterapia e l'aumento dell'attività dei canali Ca2+ possono attivare ulteriormente i canali TRPA1, portando a frequenti attivazioni del potenziale d'azione dipendenti dai canali Na+ voltage-dipendenti (Nav1.7)78,79. Inoltre, Zn2+ può attivare direttamente TRPA1 per promuovere il rilascio del CGRP80, mentre i canali K+ voltage-dependent (Kv7) esercitano un effetto regolatore negativo su questoprocesso 81. Collettivamente, l'interazione cooperativa tra TRPA1 e altri canali ionici, inclusi TRPV1, TRPM8, Ca2+, Na+, K+ e Zn2+, amplifica l'eccitabilità neuronale e la trasmissione nocicettiva nel CIPN.
Inoltre, l'omeostasi intracellulare del pH può modulare l'attività di TRPA1. Lo scambiatore Na+/H+ 1 (NHE1) influenza la sensibilità di TRPA1 regolando il pH intracellulare. In condizioni di lesione indotte da infiammatori o chemioterapiche, TRPA1 e NHE1 interagiscono nei neuroniDRG 87,107, e l'acidificazione intracellulare aumenta la reattività di TRPA1, portando a un aumento della frequenza del potenziale d'azione e a un rilascio elevato di neurotrasmettitori come glutammato e CGRP82,83. Questo processo contribuisce al dolore infiammatorio e all'ipersensibilità al freddo e alimenta ulteriormente la neuroinfiammazione. Al contrario, l'inibizione dell'espressione o della funzione di TRPA1 nei neuroni DRG attenua notevolmente la trasmissione nocicettiva e le risposteneuroinfiammatorie 108.
In sintesi, TRPA1 funge da hub molecolare centrale che collega lo stress ossidativo e la segnalazione dei canali ionici in CIPN. Attraverso un'estesa comunicazione incrociata con molteplici canali ionici e meccanismi regolatori intracellulari, TRPA1 promuove l'ipereccitabilità dei neuroni sensoriali e l'ipersensibilizzazione del dolore, rappresentando un bersaglio molecolare critico per il trattamento del dolore associato al CIPN. La Figura 6 mostra il meccanismo con cui TRPA1 modula l'eccitabilità neuronale e potenzia la segnalazione nocicettiva attraverso interazioni con vari canali ionici.
- TRPA1 regola la neuroinfiammazione mediata dalle cellule immunitarie
3. Potenziale di targeting di TRPA1 per il trattamento CIPN
Nella sezione precedente, abbiamo chiarito come TRPA1 sia un bersaglio chiave per alleviare il CIPN innescendo una risposta a cascata neuroinfiammatoria. Il meccanismo d'azione di TRPA1 è duplice: da un lato, TRPA1 è direttamente modulata dalla cascata neuroinfiammatoria e partecipa al processo patologico di CIPN; d'altra parte, TRPA1 interagisce con i segnali infiammatori, che a loro volta mediano risposte neurotossiche e aggravano i danni neuronali. Pertanto, l'inibizione mirata di TRPA1 può ridurre lo stress ossidativo e le risposte neuroinfiammatorie, attenuare la segnalazione del dolore e, in ultima analisi, migliorare i sintomi correlati al CIPN. La Figura 7 mostra i meccanismi proposti attraverso cui l'inibizione di TRPA1, sia da parte di specifici antagonisti sia da agenti naturali a base di erba, mitiga il dolore neuropatico associato al CIPN.
- Antagonista di TRPA1
TRPA1 può essere attivato da sostanze esogene (ad esempio, olio di senape e cinamaldeide) e da sostanze endogene (ad esempio, prodotti da stress ossidativo e mediatori infiammatori)62 per causare dolore, prurito einfiammazione. Per questo motivo, TRPA1 è stato riconosciuto come un bersaglio terapeutico con ampio potenziale di applicazione, inclusi la gestione del dolore, le malattie infiammatorie e i disturbi neurologici. Pertanto, la ricerca e lo sviluppo degli antagonisti di TRPA1 sono fondamentali.
Diversi antagonisti di TRPA1 hanno dimostrato potenziale valore terapeutico nell'alleviare CIPN109,110,111,112,113,114,115,116,117. I loro meccanismi principali coinvolgono la soppressione delle risposte da stress ossidativo mediate da TRPA1, dell'afflusso di calcio e della segnalazione neuroinfiammatoria, esercitando così effetti antagonisti sull'attività di TRPA1. Negli studi preclinici, il bloccante selettivo TRPA1 HC-030031 ha significativamente alleviato l'ipersensibilità meccanica e al freddo indotta daODOR e CDDP 28. Nel frattempo, antagonisti di nuova generazione come GRC-17536 e LY-3526318 sono passati a studi clinici di fase II per la neuropatia diabetica, la tosse cronica e il dolore neuropatico correlato all'osteoartrite, mostrando buona tollerabilità ed efficaciapreliminare 109,113.
La Tabella 3 fornisce un riassunto dello stato attuale di sviluppo e delle applicazioni cliniche degli antagonisti rappresentativi di TRPA1. Questi studi forniscono evidenze cliniche a supporto del potenziale traslazionale degli antagonisti di TRPA1 nel trattamento del dolore neuropatico. Tuttavia, la maggior parte degli antagonisti di TRPA1 è ancora limitata dalla bassa biodisponibilità e dai potenziali effetti fuori bersaglio 115,118,119, e non è ancora stata sottoposta a valutazione clinica specifica per CIPN. Le ricerche future dovrebbero concentrarsi sull'ottimizzazione della selettività dei composti e delle proprietà farmacocinetiche, oltre alla progettazione di studi clinici specificamente rivolti al CIPN, per validare la rilevanza terapeutica dell'inibizione di TRPA1 in questo contesto.
Oltre all'antagonismo diretto, la modulazione dell'attività di TRPA1 attraverso altri bersagli molecolari ha mostrato potenzialità anche in CIPN. I recettori Sigma-1 esercitano funzioni regolatorie su una varietà di canali ionici, e è stato dimostrato che gli antagonisti dei recettori Sigma-1 inibiscono significativamente l'espressione e la funzione della membrana plasmatica dei canali TRPA1, impedendo così la progressione dei sintomi dolorosi nei topi modelloCIPN indotti da OXA. Uno studio di Trevisan et al. ha dimostrato che i sintomi dell'ipersensibilità alla CIPN indotti dal bortezomib potevano essere efficacemente prevenuti e alleviati dall'uso concomitante dell'antagonista TRPA1 HC-030031 o dell'acido antiossidante α-lipoico prima o al momento dellachemioterapia 120. Inoltre, nel contesto della neurotossicità indotta da farmaci chemioterapici, gli inibitori di TRPA1 sono in grado di mitigare i danni neurologici riducendo la segnalazione proinfiammatoria dipendente dal calcio.
In sintesi, gli antagonisti di TRPA1 svolgono ruoli importanti nella prevenzione e nel trattamento del CIPN modulando la funzione e inibendo l'attività di questo canale, tra gli altri meccanismi, per attenuare l'ipersensibilità al dolore e alleviare i danni ai nervi. - Modulatori dell'attività di TRPA1 come nuove opzioni per il trattamento CIPN
TRPA1 è coinvolto nei processi patologici della CIPN attraverso la risposta a cascata neuroinfiammatoria e la lesione neurotossica e potrebbe essere un nuovo bersaglio per il trattamento della CIPN.
Diversi studi hanno dimostrato che alcune erbe naturali e i loro componenti attivi sono strettamente associati alla regolazione dell'attività dei canali TRPA1 e mostrano effetti biologici come azioni antinfiammatorie e analgesiche, fornendo così strategie potenziali per la prevenzione e il trattamento del CIPN. Ad esempio, la liquiritina ha dimostrato di possedere significative proprietà antinfiammatorie121, mentre l'allicina mostra potenziale analgesico grazie alle sue caratteristiche antiossidanti e antinfiammatorie122; entrambi i composti sono coinvolti nella modulazione dell'attività del canale TRPA1. Sulla base di questi risultati, si ipotizza che questi composti naturali possano alleviare la percezione del dolore legata al CIPN e le risposte neuroinfiammatorie attraverso la regolazione dell'attività di TRPA1, esercitando così potenziali effetti terapeutici. Ulteriori studi hanno rivelato che il mentolo mostra un effetto regolatore bidirezionale sui canali TRPA1, attivando TRPA1 a basse concentrazioni mentre ne inibisce l'attività a concentrazioni più elevate. L'uso appropriato del mentolo può quindi modulare l'attività di TRPA1 per ottenere effetti analgesici e antinfiammatori nei pazienti con CIPN123. Allo stesso modo, la cannella, tradizionalmente usata come terapia di riscaldamento per favorire la circolazione sanguigna, contiene la cinamaldeide come principale componente attivo. Li et al. hanno riferito che la cinnamaldeide attiva i recettori TRPA1, promuovendo la termogenesi nel tessuto adiposo marrone e così aiutando a mantenere la temperatura corporea e ad alleviare la sensibilità al freddo124. Inoltre, la cinamaldeide potenzia la risposta antiossidante attivando il fattore nucleare eritroide correlato 2 (Nrf2)125. Collettivamente, il mentolo, iniibando TRPA1 a concentrazioni più elevate, può alleviare l'allodinia meccanica e fredda caratteristica del CIPN, mentre il cinnamaldeide, attraverso i suoi meccanismi antiossidanti attivanti da TRPA1 e mediati da Nrf2, può contrastare lo stress ossidativo indotto dalla chemioterapia e migliorare l'intolleranza al freddo nei pazienti con CIPN. Inoltre, è stato dimostrato che il monoidrato di bergenina, ligustrazina, saikosaponina e estratti acquei di Notopterygium incisum riduce il dolore neuropatico126,127,128,129.
Tabella 4 riassume le fonti naturali erboristiche dei liganti TRPA1 e i loro possibili meccanismi nell'alleviare il CIPN. Questi risultati evidenziano il potenziale dei componenti della MTC nel mitigare la neurotossicità nel CIPN. Sebbene una varietà di composti naturali siano stati identificati come modulatori TRPA1 con potenziali effetti terapeutici, la maggior parte di essi rimane nel in vitro e le fasi della ricerca sugli animali, e le evidenze della loro efficacia nel CIPN derivano principalmente da modelli preclinici. Al contrario, solo il mentolo ha prove umane limitate di prova di concetto e studi clinici registrati in corso130. Questi risultati suggeriscono complessivamente che, sebbene i prodotti naturali rivolti a TRPA1 mostrino grandi potenzialità nell'alleviare la neurotossicità correlata al CIPN, sono necessari ulteriori studi clinici ben progettati per convalidarne il potenziale traslazionale e l'efficacia terapeutica.
I modulatori naturali di TRPA1 identificati dagli estratti vegetali non solo offrono nuove prospettive terapeutiche per la gestione del dolore, ma rappresentano anche potenziali fonti naturali per il trattamento del CIPN. Sempre più evidenze indicano che i composti naturali possono alleviare i sintomi neurotossici indotti dalla chemioterapia sopprimendo la sovraattivazione di TRPA1 o esercitando effetti regolatori bidirezionali sul canale, ottenendo così sia risultati analgesici che antinfiammatori. Tuttavia, nonostante il loro promettente potenziale preclinico, la validazione clinica sistematica rimane insufficiente. Inoltre, questi composti tipicamente mostrano caratteristiche regolatorie multi-bersaglio e multi-percorso, rendendo difficile definire il contributo specifico della modulazione TRPA1 ai loro effetti terapeutici complessivi. Gli studi futuri dovrebbero concentrarsi sull'elucidazione dei meccanismi molecolari attraverso cui i modulatori naturali di TRPA1 influenzano il CIPN, sull'esplorazione delle interazioni sinergiche tra TRPA1 e altri canali ionici o vie di segnalazione, e sulla conduzione di studi clinici ben progettati per confermarne efficacia e sicurezza. Tali sforzi saranno essenziali per tradurre gli agenti naturali che mirano a TRPA1 in strategie pratiche per la gestione del CIPN.
4. Discussione
Secondo le ultime statistiche dell'Agenzia Internazionale per la Ricerca sul Cancro (IARC), nel 2022 ci saranno quasi 20 milioni di nuovi casi di cancro, e circa il 50% di questi pazienti morirà infine a causa del cancro o delle sue complicazioni. Le proiezioni IARC indicano inoltre che il numero di nuovi casi di cancro all'anno supererà i 35 milioni nel 2050. Il cancro è quindi una delle principali preoccupazioni di salute pubblica a livello mondiale e uno dei principali contributori al carico globale dellamalattia 1. Sebbene le terapie innovative per il cancro (ad esempio, terapie mirate e immunoterapie) continuino a essere ricercate e sviluppate, la chemioterapia continua a svolgere un ruolo centrale nel trattamento del cancro. Il CIPN è un effetto collaterale comune della chemioterapia e influisce sul corso del trattamento e sulla sua efficacia. Tuttavia, la patogenesi del CIPN non è chiara ma potrebbe essere correlata a disfunzioni mitocondriali, stress ossidativo, anomalie del sistema immunitario, disregolazione dei canali ionici e danni ai neuroniDRG 2. Attualmente, solo la duloxetina è stata raccomandata dall'ASCO per la gestione del dolore nei pazienti con CIPN. Nonostante la sua efficacia analgesica dimostrata, il beneficio clinico complessivo della duloxetina è moderato, poiché fornisce principalmente sollievo sintomatico piuttosto che prevenire la CIPN o invertire i cambiamenti patologicisottostanti. Pertanto, esplorare i potenziali obiettivi del CIPN è importante per lo sviluppo di farmaci e la terapia di precisione.
I canali TRP, che sono mediatori chiave della segnalazione nocicettiva, stanno ricevendo una crescente attenzione nel contesto dello sviluppo delle terapie CIPN. Tra i canali TRP, è stato suggerito che TRPA1 sia un fattore chiave nell'induzione dell'ipersensibilità al dolore da parte di una varietà di agentichemioterapici 131. Pertanto, questo studio si concentra sul ruolo di TRPA1 nella patogenesi della CIPN e chiarisce ulteriormente i meccanismi con cui essa media il dolore neuropatico, come illustrato nella Figura 8. Questo canale è attivato dallo stress ossidativo per provocare dolore meccanico anomalo e ipersensibilità alfreddo 61,70,71 ed è coinvolto nella nocicepzione infiammatoria modulando le cellule immunitarie per mediare la neuroinfiammazione 62,72,73,74,75. Inoltre, i canali TRPA1 interagiscono con TRPV1, TRPM8 e canali a tensione come Ca2+, Nav1.7, Zn2+ e Kv7. Queste interazioni amplificano le risposte neuropatiche e infiammatorie al dolore 76,77,78,79,80,81. Tale modulazione sinergica ha significative implicazioni cliniche. Poiché TRPA1, TRPV1 e TRPM8 sono co-espressi nei neuroni sensoriali e possono regolare reciprocamente l'attività, inibitori a doppio o più bersaglio sono in grado di produrre effetti analgesici più pronunciati rispetto a quelli che mirano da soli a TRPA1. Inoltre, questa interazione sinergica permette a ciascun composto di raggiungere un'efficacia analgesica comparabile a dosi più basse, riducendo così i potenziali effetti avversi. Analogamente, la DRG, bersaglio della neurotossicità CIPN, è influenzata da TRPA1. L'attivazione di TRPA1 aumenta l'eccitabilità dei neuroni DRG, il che a sua volta favorisce il rilascio di neurotrasmettitori dalla DRG, portando a un'ipersensibilità aumentata ai sintomi nocicettivi82,83. In conclusione, TRPA1 può aggravare il dolore neuropatico nei pazienti con CIPN inducendo una risposta a cascata neuroinfiammatoria. Pertanto, antagonizzare TRPA1 può alleviare efficacemente i sintomi infiammatori e dolorosi del CIPN, il che suggerisce anche che l'applicazione di antagonisti TRPA1 ed erbe naturali sia cruciale.
L'efficacia degli antagonisti di TRPA1 è stata efficacemente dimostrata nei modelli animali. Ad esempio, nei topi TRPA1 KO e con l'applicazione di antagonisti TRPA1 (ad esempio, HC-030031), i sintomi del dolore neuropatico indotti da farmaci chemioterapici sono significativamenteattenuati 86,89. Tuttavia, ci sono ancora limitazioni nell'applicazione degli antagonisti di TRPA1, poiché non sono ancora stati condotti studi clinici su pazienti con CIPN, suggerendo che la sicurezza e l'efficacia degli antagonisti di TRPA1 negli esseri umani debbano essere ulteriormente valutate e confermate. Ad esempio, differenze nei modelli di espressione di TRPA1 e nella sensibilità agli antagonisti tra roditori e umani possono portare a discrepanze tra esiti preclinici e clinici. Inoltre, la conversione delle dosi sperimentali da animali a esseri umani rimane incerta, aumentando ulteriormente la complessità dello sviluppo di farmaci.
Inoltre, i meccanismi precisi con cui TRPA1 funziona come bersaglio terapeutico nel CIPN non sono ancora stati completamente chiariti, e i suoi ruoli specifici per tessuto richiedono ulteriori indagini. Data l'ampia espressione di TRPA1 nei neuroni sensoriali, nelle cellule di Schwann e nelle cellule immunitarie, delineare le sue funzioni specifiche in diversi contesti cellulari rimane una sfida. La maggior parte degli studi esistenti si basa su antagonisti sistemici di TRPA1, rendendo difficile attribuire con precisione gli effetti osservati a specifici compartimenti cellulari. Va sottolineato che TRPA1 espresso nei neuroni sensoriali media direttamente la segnalazione nocicettiva, mentre TRPA1 nelle cellule di Schwann e nelle cellule immunitarie regola principalmente processi infiammatori e microambientali che modulano secondariamente la sensibilità al dolore. Pertanto, la delezione specifica per tessuto di TRPA1 fornirebbe importanti intuizioni meccanicistiche. La perdita neuronale specifica di TRPA1 potrebbe chiarire il suo ruolo diretto nell'eccitabilità dei nocicettori e nella trasmissione del dolore, mentre la delezione specifica delle cellule di Schwann potrebbe chiarire come lo stress ossidativo guidato da TRPA1 e le interazioni gliale-neuronali promuovano una neuroinfiammazione sostenuta. È importante sottolineare che i modelli di knockout TRPA1 specifici per cellule immunitarie (ad esempio, nei macrofagi o nelle cellule T) aiuterebbero a definire il contributo della segnalazione TRPA1 immunitaria alla diafonia neuroimmune e alla regolazione infiammatoria nella CIPN. Tali approcci approfondirebbero sostanzialmente la nostra comprensione delle funzioni specifiche di tessuti e cellule di TRPA1 e faciliterebbero lo sviluppo di strategie terapeutiche più precise. Nel frattempo, molti aspetti dell'antagonismo TRPA1 nel trattamento del CIPN restano da approfondire. Ad esempio, se TRPA1 mostri ruoli funzionali differenziali nel CIPN indotti da agenti chemioterapeutici distinti, e come la sua attività possa essere modulata con maggiore precisione per raggiungere un'efficacia terapeutica ottimale, restano questioni irrisolte di rilievo.
In questo contesto, l'uso combinato di antagonisti di TRPA1 con composti naturali a base di erbe o formulazioni di medicina tradizionale cinese rappresenta un approccio terapeutico promettente. Tale terapia combinata può non solo ridurre la tossicità correlata al farmaco, ma anche aumentare l'efficacia attraverso effetti sinergici multi-bersaglio. In generale, TRPA1 antagonizzante può modulare le risposte immunitarie e interrompere le cascate neuroinfiammatorie, mitigando così efficacemente la neurotossicità e i danni neuronali, offrendo nuove intuizioni e potenziali strategie per la gestione clinica della CIPN.
Conclusioni
Questa revisione esplora in modo approfondito la relazione complessa tra TRPA1 e CIPN, nonché i potenziali effetti antinfiammatori dell'antagonismo di TRPA1 nel suo trattamento. Studi preclinici hanno dimostrato che l'inibizione farmacologica o la delezione genetica di TRPA1 può sopprimere la neuroinfiammazione, ridurre l'eccitabilità neuronale e mitigare la neurotossicità, produendo così effetti antinfiammatori e analgesici che possono aiutare ad alleviare i sintomi del CIPN. Tuttavia, ci sono ancora alcune limitazioni nelle ricerche attuali. Studi futuri dovrebbero approfondire i meccanismi molecolari specifici alla base del coinvolgimento di TRPA1 nel CIPN, ottimizzare le strategie di targeting e condurre studi clinici su larga scala per verificare la sicurezza e l'efficacia degli antagonisti di TRPA1. Questo fornirà opzioni di trattamento più precise ed efficaci per i pazienti con CIPN.
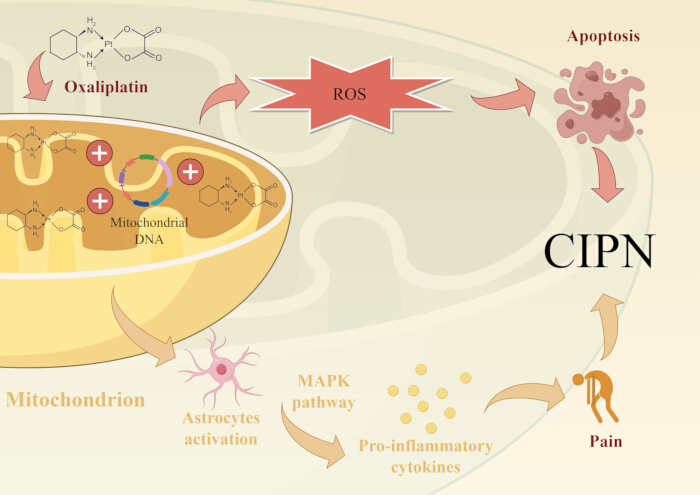
Figura 1: Disfunzione mitocondriale e meccanismi CIPN indotti dallo stress ossidativo. Gli agenti chemioterapici a base di platino formano addotti di DNA di platino che si accumulano nel DRG, dove si legano al nDNA e al mtDNA. Questo induce danni al DNA/mitocondriali, aumenta la produzione di ROS e induce l'apoptosi neuronale. Ci sono anche evidenze che OXA induca dolore neuropatico attivando gli astrociti e regolando al rialzo le citochine proinfiammatorie nella via MAPK. Clicca qui per visualizzare una versione più grande di questa figura.
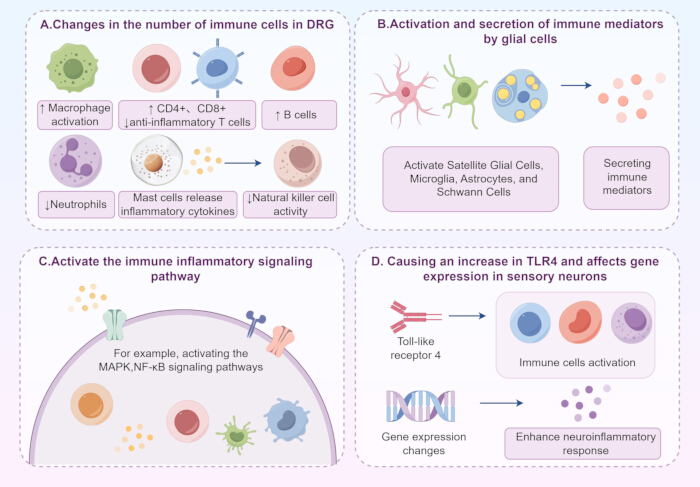
Figura 2: Meccanismi di induzione del CIPN da anomalie nel sistema immunitario. (A) Gli agenti chemioterapici portano all'attivazione dei macrofagi, all'aumento del numero di linfociti T (CD4+), citotossici T (CD8+) e B nel DRG, e a una diminuzione del numero di cellule T antinfiammatorie e neutrofili. Le MC contribuiscono alla progressione del CIPN reclutando cellule immunitarie e rilasciando una varietà di citochine infiammatorie nel CIPN, diminuendo così l'attività delle cellule NK, il che a sua volta aggrava neuroinfiammazione e stress ossidativo. (B) Gli agenti chemioterapici modulano l'attivazione e la secrezione dei mediatori immunitari tramite SGC nel DRG, microglie e astrociti nel midollo spinale e cellule di Schwann negli assoni, causando un'eccitabilità aumentata dei neuroni sensoriali e un'ipersensibilità al dolore intensificata nel CIPN. (C) L'attivazione delle vie di segnalazione immuno-infiammatorie, come MAPK e NF-κB, svolge anch'essa un ruolo importante nell'aggravare le risposte neuroinfiammatorie. (D) Gli agenti chemioterapici possono anche attivare le cellule immunitarie e potenziare le risposte neuroinfiammatorie aumentando il TLR4 e scatenando la disregolazione genica associata. Clicca qui per visualizzare una versione più grande di questa figura.
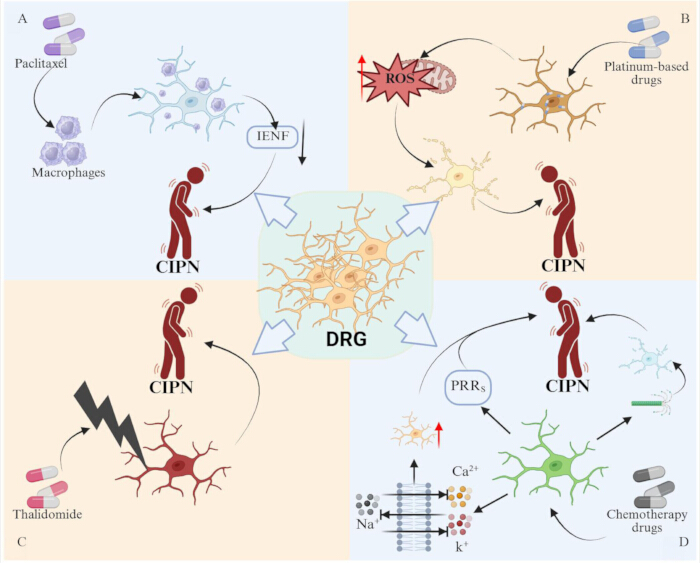
Figura 3: La DRG è un bersaglio principale per gli agenti chemioterapici che attivano il CIPN. (A) Il PTX può portare all'infiltrazione di macrofagi nel DRG, che a sua volta provoca una diminuzione del numero di IEN. (B) I farmaci di platino si accumulano nel DRG, portando a disfunzioni mitocondriali e a un aumento dei livelli di ROS, che a loro volta favoriscono l'apoptosi neuronale. (C) La talidomida può danneggiare direttamente la DRG. (D) Gli agenti chemioterapici possono anche danneggiare i neuroni DRG alterando i canali ionici sodio, potassio e calcio, disturbando la struttura dei microtubuli e attivando i PRR. Clicca qui per visualizzare una versione più grande di questa figura.
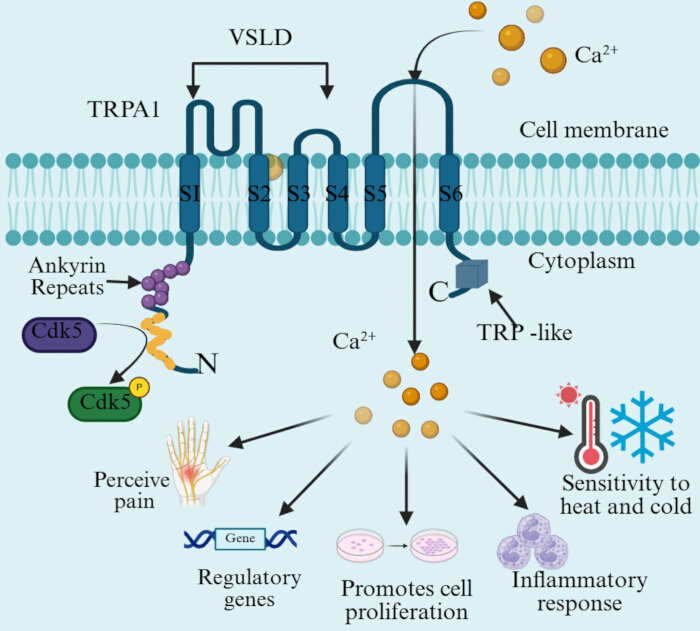
Figura 4: I domini strutturali chiave di TRPA1 rilevanti per la sua attivazione da parte di agenti chemioterapeutici. Il canale TRPA1 contiene sei frammenti transmembrana α-elicoidale (S1-S6). Tra questi, S1-S4 costituiscono il VSLD, mentre S5 e S6 formano una struttura ad anello concavo dei pori. Sia l'estremità NH2 che quella COOH del canale TRPA1 si trovano nel citoplasma. Uno dei terminali NH2 più lunghi contiene ARDs e il sito Cdk5, mentre il C-terminale di TRPA1 contiene un dominio simile a TRP ed è collegato al dominio strutturale transmembrana. L'attivazione dei canali può causare l'afflusso di Ca2+ , che a sua volta attiva una serie di vie di segnalazione cellulare, come quelle che regolano l'espressione genica, promuovono la proliferazione cellulare e inducono risposte infiammatorie. La struttura di TRPA1 determina la sua funzione nel rilevare dolore e sensibilità al calore/freddo. Clicca qui per visualizzare una versione più grande di questa figura.
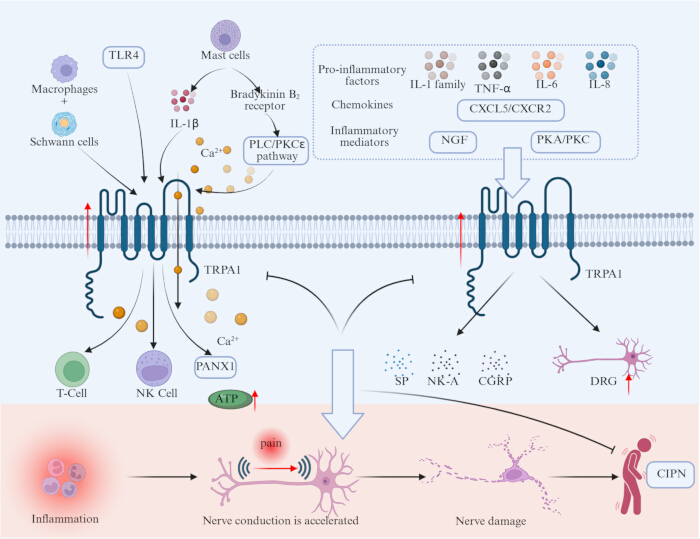
Figura 5: TRPA1 regola la nocicezione neuroinfiammatoria mediata dalle cellule immunitarie. Le cellule immunitarie (macrofagi, cellule di Schwann e MC), fattori proinfiammatori (famiglia IL-1, TNF-α, IL-6, IL-8), chemiocine (CXCL5/CXCR2), mediatori infiammatori (NGF, PKA/PKC) e TLR4 possono attivare i canali TRPA1. L'attivazione dei canali TRPA1 può aumentare la concentrazione intracellulare di Ca2+ , che favorisce il rilascio di SP, NK-A e CGRP, agisce sulle cellule immunitarie (cellule T, cellule NK) e modula le vie correlate all'infiammazione (via PANX1), aumentando così l'eccitabilità dei neuroni DRG e mantenendo la neuroinfiammazione e il dolore persistente. Clicca qui per visualizzare una versione più grande di questa figura.
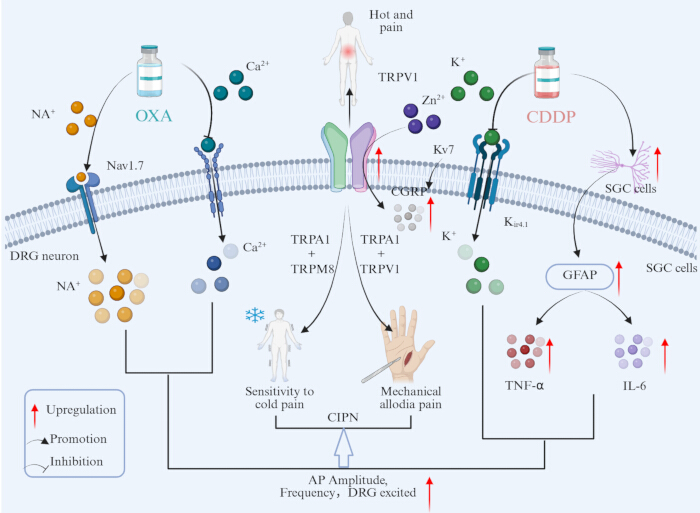
Figura 6: TRPA1 modula i canali ionici per accelerare la segnalazione del dolore. TRPA1 e TRPM8 sono coinvolti nell'ipersensibilità al freddo, mentre TRPA1 e TRPV1 sono coinvolti nell'allodinia meccanica. Inoltre, i canali TRPA1 con canali Ca2+, Nav1.7, Zn2+, Kv 7 e Kir4.1 dipendenti dalla tensione promuovono il rilascio di mediatori infiammatori (ad esempio, CGRP, GFAP) e fattori proinfiammatori (ad esempio, TNF-α, IL-6), scatenando l'ipereccitabilità dei neuroni DRG, che a sua volta esercita un effetto sinergico nell'aggravare il dolore neuropatico e infiammatorio. Clicca qui per visualizzare una versione più grande di questa figura.
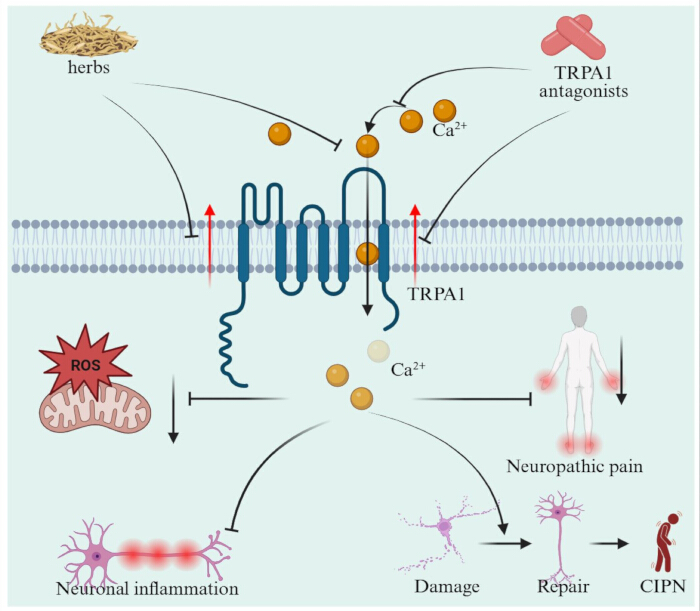
Figura 7: Potenziale di targeting di TRPA1 per il trattamento CIPN. L'uso di antagonisti TRPA1 e erbe naturali può inibire l'attività dei canali TRPA1, riducendo così il flusso di Ca2+ e lo stress ossidativo, che a sua volta sopprimono le risposte neuroinfiammatorie e riducono il dolore neuropatico, riducendo infine i danni nervosi e migliorando i sintomi correlati al CIPN. Clicca qui per visualizzare una versione più grande di questa figura.
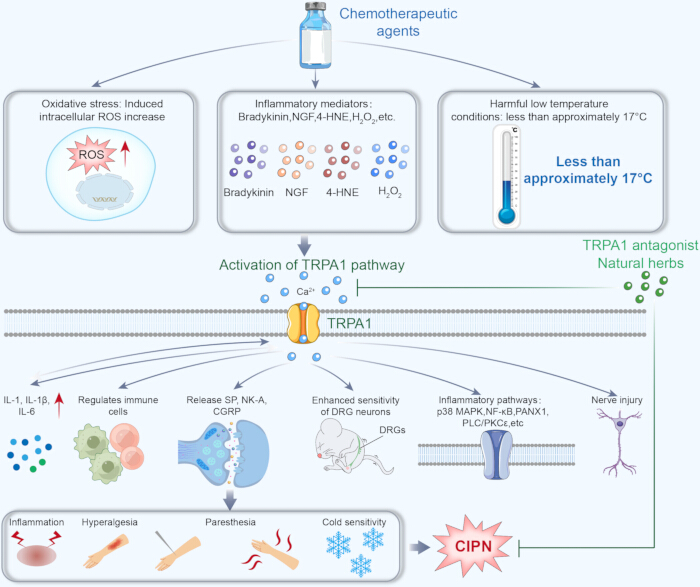
Figura 8: Inibizione del TRPA1. Una strategia terapeutica per il CIPN. L'attivazione di TRPA1 stimola infiammazione e ipersensibilità nella CIPN; la sua inibizione da parte di antagonisti o erbe può ridurre l'infiammazione neurogena, la sensibilizzazione nocicettiva e i sintomi del CIPN. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella 1: Potenziali meccanismi alla base del CIPN. Gli agenti chemioterapeutici contribuiscono al CIPN attraverso molteplici vie patologiche, tra cui disfunzione mitocondriale e stress ossidativo, anomalie del sistema immunitario, disregolazione dei canali ionici, lesioni neuronali DRG e alterazione del citoscheletro neuronale. Questi meccanismi portano collettivamente a neuroinfiammazione, neurotossicità e dolore neuropatico. Clicca qui per scaricare questa tabella.
Tabella 2: Meccanismi del CIPN associati a TRPA1. TRPA1 contribuisce al CIPN attraverso molteplici processi patologici, tra cui l'attivazione indotta dallo stress ossidativo, la modulazione e infiammazione immunitaria, le interazioni dei canali ionici e il danno neuronale del DRG. Questi meccanismi aumentano collettivamente l'eccitabilità neuronale e promuovono dolore e ipersensibilità neuropatiche. Clicca qui per scaricare questa tabella.
Tabella 3: Stato attuale di sviluppo e indicazioni cliniche degli antagonisti rappresentativi di TRPA1. Questa tabella riassume i principali antagonisti di TRPA1 studiati in studi preclinici e clinici, inclusi i loro meccanismi d'azione, le indicazioni terapeutiche e le fasi di sviluppo del farmaco. Questi agenti inibiscono l'attività dei canali TRPA1, riducendo così lo stress ossidativo, l'infiammazione e il dolore neuropatico associato al CIPN e ad altre condizioni patologiche. Clicca qui per scaricare questa tabella.
Tabella 4: Fonti naturali erboristiche dei liganti TRPA1 e i loro potenziali meccanismi nell'alleviare il CIPN. Questa tabella riassume composti naturali rappresentativi ed estratti erboristici che modulano l'attività di TRPA1, incluse le loro fonti, tipi chimici, condizioni sperimentali e bersagli molecolari. Questi agenti naturali esercitano effetti neuroprotettivi e antinfiammatori regolando TRPA1 e le vie di segnalazione correlate, alleviando così lo stress ossidativo, la neuroinfiammazione e l'ipereccitabilità neuronale associata al CIPN. Clicca qui per scaricare questa tabella.
Dichiarazioni
Non ci sono conflitti di interesse finanziari da divulgare.
Ringraziamenti
Gli autori desiderano esprimere la loro gratitudine a tutti i membri del gruppo di Mingzhu Li per il loro supporto e supporto. Questo manoscritto è stato sostenuto dalla China National Natural Science Foundation (82104838), dal China Promotion Foundation Spark Program (XH-D001) e dal Liaoning Provincial Key Research and Development Programme (2024JH2/102500062), che è stato riconosciuto con gratitudine. La Figura 1 e la Figura 2 sono state disegnate usando FigDraw.
Riferimenti
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).