フローサイトメトリーは、特定の細胞集団を単離して解析するための強力なツールです。本プロトコルでは、新生仔トランスジェニックマウスの蝸牛組織からLacZ発現細胞を単離する手順について説明します。単離した蝸牛細胞を、フローサイトメトリーによる分離に先立ち、蛍光標識されたβ-galactosidase基質を用いて標識しました。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
特定の細胞タイプを単離することで、幹細胞や前駆細胞のような希少な細胞集団を分析することが可能になります。内耳組織を研究する上でこのようなアプローチをとる場合、標的となる細胞数が極めて少なく、またトランスジェニック・リポーターマウスモデルも少ないため、特有の困難が伴います。本稿では、蛍光標識プローブを用いて、新生児の蝸牛からLacZ陽性細胞を選択的に標識するプロトコールについて説明します。
感音難聴の最も一般的な潜在的病理は、音波を神経衝動に変換するために不可欠な蝸牛感覚有毛細胞の不可逆的な損傷および喪失です。近年のエビデンスにより、マウスの聴覚および前庭器官には再生能を持つ可能性のある幹細胞/前駆細胞が存在することが示唆されています1,2。これらの知見は、幹細胞/前駆細胞の特性を持つ特定の細胞型の同定を含む、さらなる調査を正当化するものです。Wntシグナル伝達経路は、いくつかの器官系において幹細胞/前駆細胞集団を維持するために重要な役割を果たすことが実証されています3-7。我々は最近、新生児の蝸牛においてWnt応答性のAxin2発現細胞を同定しましたが、その機能はほとんど分かっていません8。
これらのWnt応答性細胞のin vitroにおける挙動をより詳細に理解するため、我々はAxin2-LacZレポーターマウス9の蝸牛からAxin2発現細胞を単離する方法を開発しました。フローサイトメトリーを用いて新生児蝸牛からAxin2-LacZ陽性細胞を単離することで、生細胞を用いて様々な実験を行い、幹細胞または前駆細胞としての挙動を解析することが可能となりました。本稿では、新生児蝸牛の微小解剖、組織の分散、蛍光基質を用いたLacZ陽性細胞の標識、および細胞ソートの手順について詳細に説明します。蝸牛を単一細胞に分散させ、フローサイトメトリーによって蝸牛細胞を単離する手法は既に報告されていますが2,10-12、我々はこれらの手法に修正を加え、新生児蝸牛からLacZ発現細胞を単離するための新規プロトコルを確立しました。
プロトコル
1. 蝸牛のマイクロダイセクション
- 70%エタノールで表面を拭き、氷ブロックを配置して、フード内で解剖顕微鏡を準備する。
- 無菌条件下で35 mmペトリ皿を10〜15枚準備し、滅菌済みのカルシウム含有ハンクス平衡塩溶液(HBSS)を半分(約2 ml)まで満たす。
- 無菌条件下で35 mmペトリ皿を2枚準備し、滅菌済みの1xリン酸緩衝生理食塩水(PBS)を半分(約2 ml)まで満たす。
- 50 mlコニカルファルコンチューブに入れた70%エタノールでマイクロピンセットを滅菌する。
- 滅菌フードとは別の部屋で、アイリスシザーを用いて生後(P)0〜3日のAxin2LacZ/+レポーターマウス12〜15匹を斬首し、頭部を氷ブロック上の60 mmペトリ皿に置く。
- #5 Dumontピンセットとアイリスシザーを用いて、下顎と舌を摘出し、口蓋のレベルで頭蓋底を切断する。
- 頭蓋冠の表皮を除去し、大後頭孔の下部から口蓋の中央に向かってシザーを挿入し、頭蓋底を切断する。
- アイリスシザーを用いて、口蓋の切断端から頭蓋冠の上端に向かって両側を切開する。この際、耳胞を損傷しないように注意する。
- 大後頭孔の上端から始まり、硬口蓋の冠状切断線まで至る45度の角度の切開を2箇所行い、側頭骨の単離を完了させる。
- 単離した側頭骨を、氷ブロック上のHBSSを含む35 mmペトリ皿に入れる。
- 安楽死させた約12〜15匹の動物から側頭骨を回収し、計24〜30個の側頭骨を揃える。
- 単離した側頭骨が入ったペトリ皿を、あらかじめ準備した滅菌解剖フード(1.1)に移す。
- 4個の側頭骨を、準備済みのHBSSを含む35 mmペトリ皿(1.2)にそれぞれ移し、氷ブロック上に置く。
- 2本の#55ピンセットを用いて、耳胞上の側頭骨にある皮質、脳幹、および小脳を慎重に取り除き、顕微解剖を開始する。
- 耳胞を完全に取り除かず、前庭蝸牛神経が耳胞に入る箇所から蝸牛被膜の一部を削り取る。
- 蝸牛の底部を露出させた後、蝸牛と周囲の組織を慎重に引き出す。底部から始まり、残っている螺旋神経節と血管条を除去する。
- 蝸牛を、氷ブロック上のPBSを含む35 mmペトリ皿に移す。
- 組織の生存能を最適にするため、解剖の総時間は60 min未満とする必要がある。
- Axin2-LacZマウスのコントロールとして、野生型(WT)のP0-P3マウス3〜5匹についても上記の手順を繰り返す。
2. 細胞解離(既報の方法を改変)2,10
- コートされていない6ウェル培養皿のウェル中央に、滅菌PBSを50 μl分注する。
- 各50 μlのPBSドロップに、最大20個のAxin2LacZ/+蝸牛を移す。20個を超える蝸牛を使用する場合は、新しい50 μlのPBSドロップを使用すること。
- 0.125%トリプシンの50 μl分注液を、37°Cのウォーターバスで約2分間予熱する。
- 蝸牛を含むPBSに、予熱した0.125%トリプシンを50 μl加える。
- 6ウェル皿を37°Cで8分間静置する。この際、皿を揺らさないように注意すること。
- トリプシン処理を停止させるため、各100 μlのドロップに大豆トリプシンインヒビターを50 μl加える。
- さらに50 μlの完全培地(Full Media: FM)(DMEM/F12にIGF-1、EGF、bFGF、HS、アンピシリンを添加したもの)を加える2。
- p200ピペットマンを125 μlに設定し、300 μlの鈍端ピペットチップを用いて、気泡ができないように注意しながら、細胞を穏やかに80回トリチュレーション(撹拌)する。
- 各ドロップのトリチュレーション後、各ウェルにさらに200 μlのFMを加える。
- 40 μmの青色Falconセルストレーナーを用いて、細胞を新しいウェルにろ過する。
- 細胞を標準的なFalcon FACSチューブに移す(トリチュレーションおよびろ過後、約300 μlが残る)。
- 野生型蝸牛由来の細胞を3本のチューブに分け、各チューブで100 μlを300 μlのFMで希釈する。1本はブランクコントロールとして使用し、1本はプロピジウムイオダイド(PI, 1 μg/ml)のみで染色し(この段階では添加しない)、最後の1本はバックグラウンド蛍光を検出するために3-カルボキシウンベリル-β-D-ガラクトピラノシド(CUG、2.15参照)で染色する。
- Axin2-LacZ蝸牛由来の単離細胞を、各FACSチューブに400 μlずつ分注する。CUGのみのコントロールとして、10 μlの細胞を390 μlのFMで希釈する(ステップ2.15のチューブFを参照)。残りのチューブの液量を400 μlに調整する。
- 細胞を37°Cの加湿インキュベーターで10分間インキュベートする。
- CUG溶液を調製する:
- 染色が必要な各FACSチューブに対し、CUGを200 μlずつ調製する。
- 光への露出を最小限に抑えるため、遮光フード内でCUGをFMで1:50に希釈する。
- 希釈したCUGを37°Cで3〜5分間予熱する。
- 次に、該当する各FACSチューブに希釈CUGを200 μl加える。CUGを添加しない指定のチューブには、FMのみを加える(2.15参照)。
- この時点で、以下の内容を含む5つのカテゴリーのチューブが準備できているはずである(この段階でPIは添加しない):
- 野生型 - CUGおよびPIなし(補正用、ステップ3.5-6参照)
- 野生型 - PIのみ(補正用)
- 野生型 - CUGおよびPIあり(Axin2-LacZ細胞に対するコントロール用)
- Axin2-LacZ - CUGのみ(補正用)
- Axin2-LacZ - CUGおよびPIあり(実際のセルソーティング用)
- Axin2-LacZ - CUGおよびPIあり(イベント解析用)
- すべてのチューブを遮光し、37°Cの加湿インキュベーターで25分間インキュベートする。
- インキュベーション後の反応停止に使用する、新鮮なHEPES + 胎牛血清(FBS)溶液を調製する:
- 15 mlのFalconチューブ内で、解凍したばかりのFBS 400 μlを、滅菌10 mM HEPES(PBS中)10 mlに希釈する。
- 2.16が完了するまで、チューブを氷上に置く。
- 光への露出を最小限にするため、滅菌フード内で消灯した状態で、各FACSチューブに氷冷したHEPES溶液を1.8 ml加える。
- 細胞を1200rpmで5分間遠心分離する。
- 上清を除去し、細胞を300 μlのFMで再懸濁する。ソーティング用サンプル(CUGおよびPIで染色したAxin2-LacZ)については、すべての分注液をプールする。
- 各チューブにPIを加え、最終濃度が1 μg/mlとなるようにする。
- 細胞を氷上に置き、遮光して保存する。
3. フローサイトメトリー
- 488-nm、633-nm、および407-nmレーザーを搭載したBD Aria IIを使用します。Stanford Shared FACS Facilityにて、CUGの検出には407-nmバイオレットレーザーを、PIの検出には488-nmブルーレーザーを使用しました。
- 熟練したフローサイトメーター操作員が必要です。レーザーのウォームアップを行い、製造元の指示に従ってサイトメーターの検出器を校正し、最適なソートパラメータを設定した後、次のステップに進んでください。我々の経験では、100 μmノズルの使用が、その後の実験における細胞生存率を最適化することがわかりました。
- 使用したパラメータは以下の通りです:閾値を5,000イベント、フローレートを3,000 events/second未満、前方散乱光(FSC)を125 V、側方散乱光(SSC)を250 Vに設定し、PIにはPE-Cy5チャネルを、CUGにはCascade Blueを使用しました。
- サイトメーターのチャンバーを70% ethanolで2回、次いでPBSで2回フラッシュします。
- 未染色の野生型細胞(ステップ2.15のチューブA)で解析を開始します。1,000イベントを収集し、FSC対SSCプロットにおける細胞分布を決定します。散乱光が適切でない場合は、FSCおよびSSCパラメータを調整してください。
- 未染色のWT(チューブA)、PI染色WT(チューブB)、およびCUG染色Axin2-LacZ(チューブD)細胞を用いてコンペンセーション(補正)を行います。コンペンセーションにより、異なるレーザー波長間でのより正確な信号識別が可能になります。
- PIおよびCUGで染色した野生型細胞(チューブC)で解析を開始し、以下のゲーティングパラメータを設定します:
- FSC対SSCプロットに基づくデブリの除外。
- FSC-height対FSC-areaプロットを用いたダブレットおよび凝集細胞の除外。
- FSC-area対PE-Cy5-areaプロットに基づく死細胞の除外。
- FSC-area対Cascade Blue-areaのプロットを作成し、任意にゲートを配置します。
- 次に、Axin2-LacZのPIおよびCUG染色細胞を含むソートサンプルチューブ(チューブF)から10,000イベントを解析します。
- 野生型細胞を用いて設定したすべてのゲートをここに適用します。
- 野生型細胞のプロットを用いて、全イベント数の1%未満となるCascade Blue-high細胞のゲートを作成します。
- このCascade Blue-highの同一ゲートにより、Axin2-LacZサンプル中の細胞の約15-20%が囲まれ、これらがAxin2-high細胞となります。
- Axin2-LacZ細胞の解析プロットを用いて、蛍光強度が最も低い15-20%の細胞のゲートを作成します。これを以降、Axin2-low細胞と呼びます。
- 前述のゲーティング戦略に基づき、500 μl FMを含むFACSチューブに細胞をソートします。Axin2-high用とAxin2-low用にそれぞれ1本ずつチューブを用意してください。ソート中は、回収チューブを4°Cに冷却されたチャンバー内に保持してください。
- 各集団について、フローサイトメーターでカウントされた細胞数を記録します。
4. 代表的な結果(図2を参照):
上記のプロトコルを用いることで、野生型およびAxin2LacZ/+の両方の蝸牛から、通常40-45%のデブリフリーな細胞を回収でき(図2AおよびB)、そのうち約70%がダブレットフリーでした(図2A'およびB'参照)。ソートされた細胞の大部分は生存しており、PIを取り込んでいませんでした(~95%)(図2A''およびB'')。平均して、上位~20%のCUG陽性細胞がAxin2-LacZ陽性細胞とみなされ(図2B''')、これは動物10-12匹あたり約15,000個のAxin2-LacZ高発現細胞に相当します。
Axin2-high細胞のフローサイトメトリーによる再ソート分析の結果、Cascade Blueチャンネルにおいて93%以上の純度が認められました。これらの細胞の同一性をさらに確認するため、Axin2-high細胞およびAxin2-low細胞の両方について抗β-ガラクトシダーゼ抗体を用いたソート後の免疫染色を行ったところ、Axin2-high細胞には約93.4%のβ-ガラクトシダーゼ陽性細胞が含まれており(1,500個以上の細胞を分析)、Axin2-low細胞には約4.8%のβ-ガラクトシダーゼ陽性細胞が含まれていることが判明しました。
図および表:

図1. 実験パラダイム。上の図は、プロトコルセクションで説明されている全体的な実験戦略および手法を示している。野生型およびAxin2LacZ/+マウスから蝸牛を採取して単一細胞に解離させ、次いでβ-ガラクトシダーゼの蛍光基質であるCUGで処理した。その後、フローサイトメトリーを用いてAxin2-LacZ-high細胞および-low細胞を分離した。ここをクリックして、この画像のフルサイズバージョンを表示してください。


図 2.ゲーティング戦略。この図は、使用したフローサイトメトリーのゲーティング戦略を示している。A) Axin2-LacZ細胞と同じ処理を施した解離野生型細胞を、計10,000イベントを用いて解析している。最初のパネルは、側方散乱光面積(SSC-A)対前方散乱光面積(FSC-A)を示している。ここでは、y軸に近いイベントよりもはるかにサイズの大きいイベントの明確なグループが存在する。これらのイベントを「デブリネガティブ」と定義する。次のゲートA'では、パネルAの「デブリネガティブ」細胞を解析しており、これは全イベント数の43.8%である(下の表を参照)。このパネルでは、前方散乱光高さ(FSC-H)対FSC-Aを用いてダブレットを除去している。プロットの予想される線形性から逸脱したイベントは除外される。この準備により、通常、指定されたゲート内に約70%のイベントが得られ、残りの細胞は除外される。パネルA''では、PE-Cy5チャネルで検出されるプロピジウムイオダイド(PI)を用いて死細胞(5.3%)を標識している。次のパネル(A''')では、Cascade blueチャネルを用いて蛍光基質CUGを検出している。ここでは、LacZ-highゲートは全イベントの1%未満である。B) CUGおよびPIで処理したAxin2-LacZマウス由来の解離細胞を、計10,000イベントを用いて解析している。パネルAと同一のゲートをここに適用している。B'は、細胞の29.5%がダブレットとして除外されたことを示し、B''は5.4%が生存していないことを示している。LacZ-high細胞およびLacZ-low細胞の初期ゲートはパネルB'''を用いて設定され、初期値はLacZ-highが19.7%、LacZ-lowが20.4%に設定されている。ここをクリックして、この画像のフルサイズバージョンを表示してください。
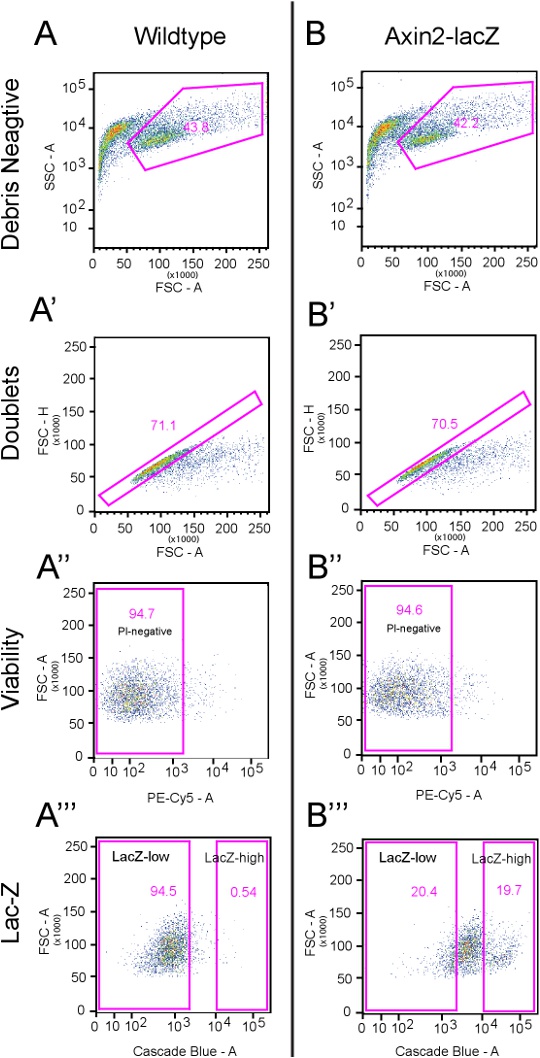
| イベント数 | パーセンテージ | ||
| A | 野生型解析 | 10,000 | |
| A' | デブリ陰性 | 4,381 | 43.80% |
| A'' | ダブルネガティブ | 3,116 | 71.10% |
| A''' | PI陰性 | 2,951 | 94.70% |
| LacZ高発現 | 16 | 0.54% | |
| LacZ低発現 | 2,790 | 94.50% | |
| B | Axin2-LacZ解析 | 10,000 | |
| B' | デブリネガティブ | 4,218 | 42.2% |
| B'' | ダブルネガティブ | 2,973 | 70.50% |
| B''' | PI陰性 | 2,813 | 94.6% |
| LacZ高発現 | 553 | 19.70% | |
| LacZ低発現 | 573 | 20.40% |
表 1. 図 2におけるゲーティング戦略の定量分析。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
独立した研究により、新生児の内耳蝸牛における再生能力は限定的であることが明らかにされています2,10,12,13。WhiteらによるGFPリポーターマウスおよびフローサイトメトリーを用いた研究では、特定の蝸牛支持細胞を単離し、それらが前駆細胞の特性を持つことを見出しました12。
標準的なWnt経路は、脳、乳腺、造血系、皮膚、胃腸の腸陰窩を含む複数の器官系において、幹細胞/前駆細胞集団を標識することが示されています。最近の研究では、新生児の蝸牛において、特性が十分に解明されていない細胞集団に活性化したWntシグナリングが存在することが見出されました8。Axin2-LacZレポーターマウス9は、他の系と同様に5,7、蝸牛における活性化したWntシグナリングの忠実なリードアウトを生成します8。このAxin2-LacZ陽性細胞集団の特性をより詳細に明らかにするため、我々はいくつかの確立された手法を修正および組み合わせて、新生児蝸牛における再生調節におけるWnt...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
利益相反はありません。
謝辞
有意義な議論にご協力いただいたS. Heller、K. Oshima、R. Nusse、Y. Zeng、および技術的な支援を提供してくださったC. Tang、A. Lee、E. Liaw、そしてスタンフォード大学共通FACS施設スタッフに感謝いたします。本研究は、Howard Hughes Medical Institute Medical Research Training Fellowship、スタンフォード大学Medical Scholarsプログラム(ともにT.A.J.へ)、スタンフォード大学Dean's Fellowship(R.C.へ)、American Otological Society、Triological Society、Percy Memorial Award、Akiko Yamazaki and Jerry Yang Faculty Scholar Fund、およびNIDCD/NIH K08 DC011043(すべてA.G.C.へ)の支援を受けて行われました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| シャーレ、ポリスチレン製、滅菌済み Geriner Bio-one 35 x 10 mm | VWR international | 82050-540 | |
| BD Falcon セルストレイナー、滅菌済み、BD Biosciences、ブルー、40μm μm | VWR international | 21008-949 | |
| ハンクス’ 平衡塩溶液 (HBSS)。カルシウムおよびマグネシウム含有、フェノールレッド不含、滅菌済み溶液 | VWR international | 45000-456 | |
| Cellstar 遠心チューブ、ポリプロピレン製、滅菌済み、Greiner Bio-One、50 ml | VWR international | 82050-346 | |
| Cellstar 遠心チューブ、ポリプロピレン製、滅菌済、greiner bio-one、15 ml | VWR international | 82050-278 | |
| B-27 無血清サプリメント (50x)、液体 | Invitrogen | 17504-044 | |
| N-2サプリメント (100倍濃縮)、液体 | Invitrogen | 17502-048 | |
| bFGF, ヒト塩基性線維芽細胞増殖因子 | Sigma-Aldrich | F0291 | |
| IGF-1、マウス由来インスリン様成長因子-1 | Sigma-Aldrich | I8779 | |
| EGF, ヒト上皮成長因子 | Sigma-Aldrich | E9644 | |
| ダルベッコ’修飾イーグル’培地/Ham’F-12 50/50 Mix:1X、L-グルタミンおよび15 mM HEPES含有 | VWR international | 45000-350 | |
| BD Falcon ラウンドボトムチューブ、使い捨て、ポリスチレン製、12x75 | VWR international | 60819-295 | |
| トリプシン, 0.25% (1X) EDTA 4Na含有, 液体 | Invitrogen | 25200-056 | |
| ep Dualfilter TIPS 300uL, 960本入り | Eppendorf | 22491245 | |
| 大豆トリプシンインヒビター、精製済み | Worthington Biochemical | LS003570 | |
| BD Falcon 40um セルストレーナー | BD Biosciences | 21008-949 | |
| マルチウェルプレート、ポリスチレン製、Greiner Bio-One、未処理プレート、6ウェル | VWR international | 82050-846 | |
| マーカー遺伝子 FACS Blue LacZ β-ガラクトシダーゼ検出キット | マーカー遺伝子技術 | M0255 |
参考文献
- Li, H., Liu, H., Heller, S. Pluripotent stem cells from the adult mouse inner ear. Nat. Med.. 9, 1293-1299 (2003).
- Oshima, K. Differential distribution of stem cells in the auditory and vestibular organs of the inner ear. J. Assoc. Res. Otolaryngol. 8, 18-31 (2007).
- Barker, N. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449, 1003-1007 (2007).
- Jaks, V. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat. Genet. 40, 1291-1299 (2008).
- Kalani, M. Y. Wnt-mediated self-renewal of neural stem/progenitor cells. Proc. Natl. Acad. Sci. U.S.A. 105, 16970-16975 (2008).
- Willert, K. Wnt proteins are lipid-modified and can act as stem cell growth factors. Nature. 423, 448-452 (2003).
- Zeng, Y. A., Nusse, R. Wnt proteins are self-renewal factors for mammary stem cells and promote their long-term expansion in culture. Cell Stem Cell. 6, 568-577 Forthcoming.
- Chai, R. Dynamic Expression of Lgr5, a Wnt Target Gene, in the Developing and Mature Mouse Cochlea. J. Assoc. Res. Otolaryngol. , Forthcoming.
- Lustig, B. Negative feedback loop of Wnt signaling through upregulation of conductin/axin2 in colorectal and liver tumors. Mol. Cell Biol. 22, 1184-1193 (2002).
- Diensthuber, M., Oshima, K., Heller, S. Stem/progenitor cells derived from the cochlear sensory epithelium give rise to spheres with distinct morphologies and features. J. Assoc. Res. Otolaryngol. 10, 173-190 (2009).
- Savary, E. Cochlear stem/progenitor cells from a postnatal cochlea respond to Jagged1 and demonstrate that notch signaling promotes sphere formation and sensory potential. Mech. Dev. 125, 674-686 (2008).
- White, P. M., Doetzlhofer, A., Lee, Y. S., Groves, A. K., Segil, N. Mammalian cochlear supporting cells can divide and trans-differentiate into hair cells. Nature. 441, 984-987 (2006).
- Zhang, Y. Isolation, growth and differentiation of hair cell progenitors from the newborn rat cochlear greater epithelial ridge. J. Neurosci. Methods. 164, 271-279 (2007).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
