私たちは、 緑膿菌からの排出ポンプのin vitroでの調査のためのプロトコルを提示する。このプロトコルは、リポソーム膜内で、堅牢で可逆的、かつ調整可能なプロトン勾配の生成を可能にし、ひいてはprotomotive力によって通電任意の膜タンパク質に適応可能である必要があります。
この記事について
サマリー
要約
膜タンパク質の輸送を監視するための信頼性の高いツールのための新たな科学的な必要性が存在する。私たちは、交通機関の彼らの活動の正確な調査が可能にバイオミメティック環境におけるグラム陰性菌、緑膿菌から排出ポンプの再構築につながる方法論を提示する。三つの前提条件が満たされている:脂質環境、交通機関に関連するインデックスを使用し、プロトン勾配の生成に区画化。膜タンパク質の輸送体は、バクテリオロドプシン、堅牢なだけでなく、可逆的かつ調整可能であるプロトン勾配を発生させる光活性プロトンポンプと一緒にリポソームに再構成されている。タンパク質の活性はpyranin、pH依存性蛍光プローブを用いて、リポソーム内で起こるpH変化から推定される。我々は、膜タンパク質の精製、リポソーム形成、タンパク質の再構成、およびトランスポートaを段階的な手順を記載nalysisが対処している。それらは具体的にRND輸送のために設計されたが、記載された方法は、潜在的プロトン勾配によって付勢任意の他の膜タンパク質トランスポーターでの使用に適合させることができる。
概要
内在性膜タンパク質は、真核生物ゲノムにコードされた遺伝子の最大30%を占める。彼らはそのようなゲートキーピング(受容体)、栄養素、イオンや有害化合物(トランスポーター)を輸送、またはすべての生きている細胞の中で1膜二重層(チャンネル)間で透過性の維持などの重要な役割を共有しています。流出は、抗生物質治療2に対する抵抗において中心的な役割を持っているポンプ。グラム陰性細菌では、外膜で保護されている緑膿菌は 、排出トランスポーターはMexB、内膜に位置排出ポンプは、MEXA、ペリプラズム蛋白質、およびOprMとと連携して動作し三者のシステムとして構成され外膜チャンネル。細胞質内膜タンパク質は、広い基質特異性を有するエネルギー依存性ポンプとして作用する。三つ目は、ペリプラズム空間に位置し、複合体全体を安定化すると考えられ、一方、外膜タンパク質は、ポーリンとして作用する 3まで。以下では、MEXA MexBアセンブリのための機能的アッセイの設計に焦点を当てる。
構造情報は、 大腸菌(Escherichia coli)4-7からの相同タンパク質AcrBのX線測定への最後の5年間のおかげにわたり蓄積してきた。それは明らかに、ダイナミックかつ動態データと結合、そのような情報は重要ですが、この輸送のための機能的アッセイを設計することは本当の挑戦8です。実際に、膜タンパク質は、膜環境に維持しなければならず、閉鎖コンパートメントが達成される基板のベクトル輸送のために維持されなければならない。
プロテオリポソームへの膜タンパク質の再構成は、広範囲(リゴーとレビー第9を参照)に提示し、検討されている。そのようなプロトコルは、リポソーム膜を通過して基板に従うことによって、例えば、膜タンパク質の活動を監視する、可能にする。この場合の制限は、Aから発生する滴定基質の可用性は(蛍光、放射性、 等 )及び非常に多くの場合、これらの基板は、疎水性であるとにかかわらず、輸送体の存在の膜を通過する傾向があることから。代替として、一方が輸送の結果として起こる化学変化に敏感なレポーティング色素の分光変動に追従することができる。上述したように、陽子はMexBを介してトランスポートを付勢。従って、関連するオプションは、プロトン駆動型基板搬送によるpH変動に追従するpH感受性色素の報告の分光変化を監視することである。蛍光色素の選択は、基板の疎水性の性質に起因するいかなる人工的な効果を避けることができます。
さらなる困難は、プロトン勾配の生成である。いくつかのプロトコルは、文献に見出すことができる。中でも、バリノマイシン技術の使用が普及しているが、我々はそれが10-11を行うことが面倒であることが示された。また、それは再現性がないと、それは元に戻すことはできません。私たちは、バクテリオロドプシン(BR)、Halobacterハロバクテリウム属からの光活性化プロトンポンプ、好塩性海洋グラム陰性偏性好気性古細菌の使用に頼っている。このタンパク質は、照明の際、BRは、リポソームの内部にプロトンをポンプ、したがって、基板12から13を輸送するタンパク質が必要とする(内部の酸性)のΔpHを作成し、MexBとリポソームにcoreconstitutedとされている。
プロトコル
1。タンパク質生産および精製
- MEXA、 緑膿菌からMexB
- EにMEXAとMexB遺伝子を保有するプラスミドを変換大腸菌産生株( 例えば C43 DE3)。 LB寒天上で平板培地適切な抗生物質を補充した。そのO / N前培養に接種するために、単一のコロニーを採取。翌朝、LB 1Lに前培養に接種し、攪拌(240回転)の下で37℃で成長する。
- 細胞が対数期に達したら(OD 600 = 0.6〜0.8)が1 mMのIPTGで誘導する。撹拌下に30℃で2〜3時間の誘導を行う。
- 遠心分離機細胞(20分間9000×g)で、および30ミリリットルのトリス-HCl 20 mMの、pHが8、NaClを150 mMの中で再懸濁します。
- フレンチプレス(10,000 psiで、4パス)を使用して、細胞を破砕。 20分間9000×gで遠心分離することにより、破壊されていない細胞と封入体を捨てる。
- を100,000×gとrのペレット膜を1時間30ミリリットルのBis-Tris、10mMのpH7.4の、グリセロール20%(w / v)の、10mMのイミダゾール、500mMのNaClを各ペレットをesuspend。
- BCA比色アッセイを用いて総膜タンパク質濃度を決定し、そのように決定洗剤が最終容積の2%ドデシルマルトシド(DDM)を有する膜O / Nを可溶化:タンパク質は、(w / w)で1:1.5である。
- 非可溶化および凝集物質を廃棄する1時間、100,000×gで超遠心機。
- ニッケル樹脂(MEXA精製)又はビス - トリス、10mMのpH7.4の、グリセロール5%で平衡化したコバルト樹脂(MexB精製)を用いて4℃で2時間、上清をインキュベート(w / v)と、イミダゾールが10mM、NaClが500 mMの、DDM 0.2%。
- 空の列に樹脂を注ぐ。通る流れを収集します。
- 次いで、ビス - トリス、10mMのpH6の25mlで、グリセロールを20%(w / v)と、イミダゾールが10mM、NaClが500 mMの、DDM、0.2%のBis-Tris、10mMのpH7.4の50mlで樹脂を洗浄し、グリセロール5%(w / v)の、10mMのイミダゾール、500mMのNaClを、0.2%DDM。
- Pを溶出5%グリセロール、300mMのイミダゾール、500mMのNaClを、DDM、0.2%(w / vの)を20mlのBis-Tris、10mMのpH7.4のでrotein。
- イミダゾールを含まない緩衝液で平衡化した脱塩カラム上の3ミリリットルと負荷まで限外濾過装置でタンパク質を濃縮。ただ再構成する前に(下記参照)、可溶化したタンパク質、脂質および非可溶化タンパク質を取り除くために(20分を100,000×g)を超遠心。その後、0.3ミリリットル再びタンパク質を濃縮。
- Halobacterサリナリウムからバクテリオロドプシン
- NaClの4M、MgSO 4で 150 mMのクエン酸塩を10mM、KClを30mMの、酵母エキス5gの/のL、ペプトンを5g / Lを含有する液体増殖培地中で10日間、37℃、照明下Halobacterハロバクテリウム属の細胞を増殖させる
- 脱イオン水に対して透析することによって細胞を破壊。
- 百分の30から40に紫膜(w / v)のショ糖勾配(17時間を100,000×g)を精製する。
- 2%の膜懸濁液を可溶化octylgluc37℃(:タンパク質比2:1(w / w)の洗剤で膜を再懸濁するために、可溶化のためのボリューム)で24時間オシド。 ε(570ナノメートル)= 54,000 M -1 cm -1のを使用して可溶化、BRの濃度を推定。ただ再構成する前に(下記参照)、脂質および非可溶化タンパク質を取り除くために、可溶化し、BR(20分を100,000×g)を超遠心。
注:さらなる精製が必要とされないので、本来の膜は、自然に、BRに富んでいる。
2。プロテオリポソームの調製
- リポソーム形成:ガラスビーカーにクロロホルムに溶解DOPCの400μL(25 mg / mlの)を入れて、粉末として格納されているコレステロール1.5ミリグラムを追加します。ガラスビーカー内の少なくとも1時間だけ窒素や真空の蒸気の下で操作する前にそれらを乾燥させます。 DOPC:コレステロールのモル比は3.3:1である。
- 彼らは乾燥した後に、HEPES 25 mMのpHを7 1mlで脂質を水和、K 2 SO 4の100mM、MgCl 2を 2 mMの、ピラニン2mmである。サスペンションは、この段階で濁っ表示されます。
- 37℃で10分間この溶液を加熱30秒パルスに40 W、RTで30秒休止サイクルで10分間超音波処理する。サスペンションは、この段階で明確に表示されます。
- リポソームの単分散集団を得るためには、押出成形の2つのサイクルを実行し、各サイクルのために、少なくとも11Xのフィルターを通してリポソーム懸濁液を渡します。最初のサイクルのために、200nmの膜の孔サイズを使用し、第二サイクルのために、100nmの膜の孔サイズを使用する。動的光散乱測定は、懸濁液の均質性を確認するために、このステップで行うことができる。
- タンパク質混入
原理:膜タンパク質はリポソーム中に界面活性剤の可溶化効果のおかげで再構成することができる。界面活性剤で可溶化リポソームは、Pの界面活性剤で可溶化膜タンパク質及び形成をインキュベートするroteoliposomesはポリスチレンビーズ9の洗剤の迅速な排除によってトリガされます。- トリトンX-100(最終0.56%)28mgのを追加し、4°C(可溶化温度はタンパク質が研究さに適合させることができる)でO / Nインキュベートする。
- 可溶化したリポソームに界面活性剤で可溶化タンパク質(BR、MexBとMEXA)を追加し、4℃で15分間インキュベート脂質/ MexB = 20、MexB / MEXA = 2.5、および脂質/ BR = 30:次の比(W / W)で可溶化リポソーム懸濁液にタンパク質を追加します。
- 穏やか下、室温で(理由のBr)(精製タンパク質を添加した洗剤など、洗剤の総重量を考慮し、W / W)、洗剤比と5時間インキュベートする、暗闇の中で:30:1ビーズでポリスチレンビーズを追加攪拌する。この手順に先立ち、メタノール、エタノール、インキュベーションとバイオビーズを活性化させ、広範囲に水で洗い流してください。
- PD-10を使用したプロテオタンパク質と無料の基質を浄化HEPES 25mMのpHが7、K 2 SO 4を 100 mMおよびMgCl 2を 2 mMので平衡化した脱塩カラム。
- 最長2〜3週間、暗所で18℃でプロテオリポソームを保存する。
- ショ糖勾配上で再構成有効性の評価。
MexBとBRの両方が、リポソーム中に再構成されていることを確認するには、不連続ショ糖勾配上のプロテオリポソーム懸濁物を浄化する。- 穏やかにスクロースの五層勾配プロテオリポソームを決済(60%、20%、10%、5%、2.5%、w / v)である。
- (最小限の加減速レートで)を100,000×gで17時間超遠心機。
- 慎重に様々勾配画分(ショ糖の各層の間に、特にインターフェイス)を収集し、クマシー染色やウエスタンブロット法を用いてSDS-PAGE(10%)上でそれらを分析。 nonincorporated、界面活性剤で可溶化タンパク質はの先頭に記述されている間に凝集したタンパク質は、チューブの底で発見されたチューブ。プロテオおよびリポソームは、その本質的な密度に対応してショ糖界面で発見された。空のリポソームは、プロテオよりも勾配で遠くまで回復している。
3。蛍光測定
- 二重波長測定を可能にする分光蛍光計(Xeランプ、150 W)を使用して25.0℃で蛍光測定を行う。代替の照明期間(550Å/ 550 nmの励起/発光波長を有するBRをアクティブにする)と、ピラニン蛍光を測定するための2秒間は455nm / 509 nmの励起/発光波長を有する蛍光測定。 5 nmの励起および発光帯域幅を設定します。逆膜電位ΔΨの形成を防止するために、50 nMのバリノマイシンの存在下で測定を実施。
注:確かに、BRは、プロトンポンプので、外側よりもリポソームの内部より多くの正電荷が存在する。この電荷勾配は、K +選択性イオノフォアである、バリノマイシン使用して廃棄することができる。一度リポソームサスペンションバリノマイシンに追加、疎水性分子として、受動的にK +を輸送するため、膜電位ΔΨを放散、リポソーム膜に挿入されます。
結果
アッセイは、プロトン勾配が生成されている間、時間の関数としてピラニンの蛍光をモニターすることからなる。その目的のために、試料は、照明、あるいは受ける(BRによるひいてはプロトンポンプが起動された)、その後ピラニンの励起および発光波長を用いて蛍光測定を(λEX = 455 nmおよびλEMが 509ナノメートル=)。
図1は、BRにより生成されたプロトン勾配が可逆的であることを検証すること、MEXA / MexBの非存在下で、アッセイを用いて得られた代表的な制御を示す。酸性化の1サイクルの後、プロテオリポソームは、プロトンを(陽子がその濃度の勾配次脂質二重層全体にゆっくりと受動的に拡散する)、ポンプを停止するために、BRためには45分間の暗所に保存されています。この回復時間の後に、BRの活性化は、もう一度同じ懸濁液に照射することによって、可能である。
図2実際の輸送の測定に対応します。タンパク質を含まないリポソームと陰性対照は、予想通り、pHが( 図2Aおよび2B、オレンジ色の丸)照明の際に一定であることを示している。しかしながら、それらの膜中にBRを 含有するプロテオリポソームは、このように減少し、安定した勾配内部pHが( 図2Aおよび2B、紫色の正方形)に構築され、プロトンポンプない。グレーの三角形と赤のダイヤモンド( 図2A)が 、それぞれの存在下で、またはヘキスト33342が存在しない場合に、BRおよびMexBを含むプロテオリポソームの内部のpHを表す。私たちは、プロトン勾配が部分的にしかMexBカウンター輸送により放熱される基板に依存しない作用を観察します。私たちは、MexBの基礎活性にこの観察を属性。
MexBの活性に対するMEXAの効果を試験するために、MEXA(第1の基板のいずれかの非存在下で、再構成に加え、 図2B、ブルーダイヤモンド)。ここでも、BRによって生成されたプロトン勾配は、部分的にしか消費されます。実際の輸送の測定は非常に同じ試料上で実現される。あらかじめ、プロトン勾配を再初期化する必要があり、基板は、タンパク質中の結合部位に到達するために、懸濁液中に追加する必要があります。その目的のためにその懸濁液を45分間基質の存在下で暗所でインキュベートする。その後の照明の際、1は、ポンプによる基板搬送の結果として、BRによって生成されたプロトン勾配は、現在完全にMexAB( 図2B、緑の三角形)によって消費されていることがわかります。
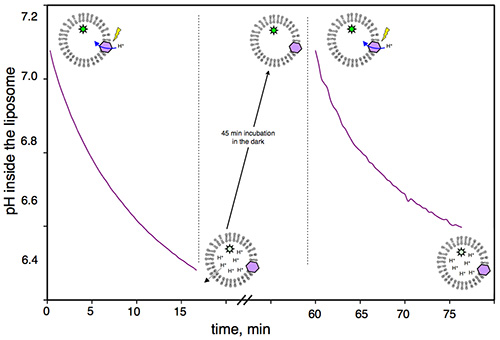
図1のBR照明により構築されたプロトン勾配の可逆:ピラニンFL時間の関数として測定のBRプロテオのuorescence。 0-15分から、BRは、光活性化の結果として、プロトンポンプ。 15〜60分間から、プロテオリポソームは、暗所でインキュベートされ、小胞内のpHおよび胞外pHが等しくなるまでこの期間中に、受動的にプロトンがリポソームの外に移動する。 60〜75分で、BRはまだ機能しており、照明の際、プロトンポンプ。
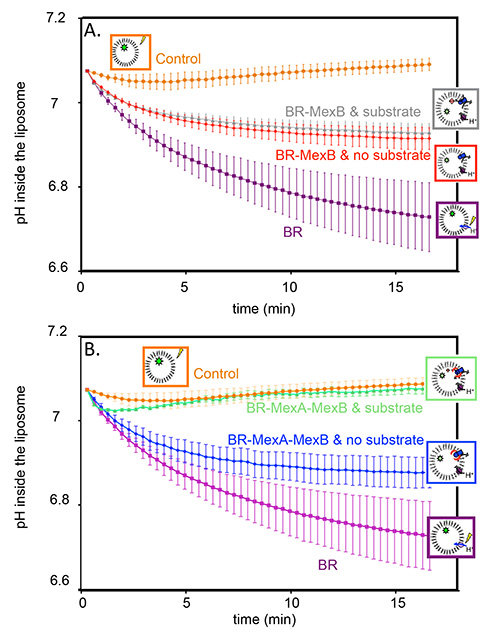
。。図2トランスポートアッセイ:ピラニン蛍光は、時間の関数対照リポソーム(オレンジの円)の内側A)のpHが、対応するpH変化に変換し 、膜中のBR(紫の四角)を含むプロテオの内部pHは、pHが内部ヘキスト33342(レッドDせずに膜中のBr、およびMexBを含むプロテオリポソームの。iamonds);ヘキスト33342(灰色の三角)、B対照リポソーム(オレンジの円)の内側)のpHを有する膜中のBRとMexBを含むプロテオリポソームの内部のpH、膜(紫四角)で、BRを含むプロテオリポソームの内部のpH、pHは内部ヘキスト33342(緑の三角形)と膜中のBr、MexBとMEXAを含むプロテオリポソームの内部のpH、ヘキスト33342(青菱形)することなく、膜中のBr、MexBとMEXAを含むプロテオリポソーム。
ディスカッション
我々は、膜タンパク質の輸送をアッセイするために設計された再構成手順が記載されている。いったん確立、タンパク質再構成の手順は非常に再現性があるの測定につながる。しかし、タンパク質を再構成するための正確な条件は、1タンパク質から他に異なります。多くのケアは、次のパラメータの最適化に注意する必要があります。 精製 (純度および凝集物質が存在しない場合) の ⅰ) 品質と、ii) 界面活性剤の効率は、彼らが得ることが容易であるため、可能な限り低CMCの洗剤が優先されるべきステップ ( 可溶化 )を外し、 洗剤 iii)の脱離 (それは透析工程を有するポリスチレンビーズの使用を組み合わせることが、これは脱離速度、タンパク質のその後の活性のために重要なパラメータに影響を与えることが、例えば可能である、リファレンスを[参照9])と、iv) 脂質再構成 (脂質の化学的性質、タンパク質比、さらなるamphiphの存在に脂質諸島)は、多様かつ最適化されなければならない重要なパラメータである。添加温度およびインキュベーション時間内にすべてのこれらの問題に影響を与える。
品質管理は、再構成手順の各段階でこのように原始である。それは、迅速な非破壊的であるため、このような観点から、光散乱が非常に便利な技術であり、それはマイクロモル範囲の濃度で20μlのサンプルを必要とする。定性的(タンパク質が実際にリポソーム膜に埋め込まれている)だけでなく、定量的(何タンパク質1リポソーム中):プロテオが形成されると、それが再構成の体系的な検証に向けた道を開くため、ショ糖勾配が大きな助けにもなります。後者は、正確にタンパク質および脂質濃度を測定することによって対処されるであろう。
我々のアッセイは、基板自体の滴定に依存しない、これは可能性のある人為的受動拡散に関する不安の考慮を回避膜内の疎水性のパーティション分割による分子。アッセイは、pH変化をモニターするための信頼性の高い定量的なプローブとして、ピラニンの特性を利用するものである。我々の結果は、プロトン勾配の形成が10バリノマイシンを用いて実施した別の手順で得られた結果と一致しているが、それはより堅牢で再現性のある勾配11を可能にする。また、プロトン勾配を正確に単に(さらなる詳細はVerchere ら 12を参照されたい)緩衝液の濃度を変えることによって、調整することができる。
対照測定は、第1基板の非存在下で行われる手順では(これは、タンパク質の受動的な活性へのアクセスを与える)。基板は同じキュベットに追加された後、実際の膜タンパク質トランスポーター活性を測定する。実験は本物の、非あいまいな、基板に誘導される成果とみなすことができるので、これは本当に資産です。
試料を照射すると、反応をトリガーするためENTは ">プロトコルは高中スループット(例えば96ウェルの測定値)自動化に適応させることができた。自動化と並列化プロテオの大きなバッチの製造において、および96にアリコートを分配することからなるだろうウエルプレート。基質(および可能インヒビター)を添加され、そして45分間、暗所でのインキュベーション後にプレートをマイクロプレートリーダーで照明/ピラニン蛍光測定サイクルに供されるであろう。プロトコルの詳細については、読者はVerchere らを読むために招待されています。12,13
開示事項
開示することは何もありません。
謝辞
この研究は、通信社国立·デ·ラ·ルシェルシュ(プロジェクトANR-2010-BLAN-1535)により、地域イルドフランス(DIM-Malinf 110058)のからの助成金によってサポートされていました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| DOPC (1,2-ジオレオイル-sn-グリセロ-3-ホスホコリン) | Avanti Polar Lipids | 850375C | |
| コレステロール | Sigma Aldrich | C8667 | |
| Hoechst 33342 | Sigma Aldrich | B2261 | |
| Triton X-100 | Sigma Aldrich | 93427 | |
| Valinomycin | Invitrogen | V-1644 | |
| Pyranine (8-ヒドロキシピレン-1,3,6-トリスルホン酸) | Invitrogen | H-348 | |
| DDM (n-ドデシル-&β;-D-マルトピラノシド) | Affymetrix | D310LA | |
| 押出機キット (押出機、Hamilton ガスタイトシリンジ) | Avanti Polar Lipids | 610000 | |
| Biobeads SM-2 吸着剤 | Bio-Rad | 152-3920 | |
| Econo-Pac クロマトグラフィー エンプティカラム | Biorad | 732-1010 | |
| 脱塩カラム | Bio-Rad | 54805 | |
| 動的光散乱装置 | Wyatt Technology | DynaPro NanoStar | |
| Fluorometer JASCO FP-6200 | JASCO | 6816-J002A |
参考文献
- Granseth, E., et al. Membrane protein structural biology - How far can the bugs take us? (Review). Molecular Membrane Biology. 24 (5-6), 329 (2007).
- Nikaido, H. Multidrug resistance in bacteria. Annu Rev Biochem. 78, 119 (2009).
- Pos, K. M. Drug transport mechanism of the AcrB efflux pump. Biochim Biophys Acta. 1794 (5), 782 (2009).
- Murakami, S., et al. Crystal structures of a multidrug transporter reveal a functionally rotating mechanism. Nature. 443 (7108), 173 (2006).
- Seeger, M. A. Structural Asymmetry of AcrB Trimer Suggests a Peristaltic Pump Mechanism. Science. 313 (5791), 1295 (2006).
- Sennhauser, G., Bukowska, M. A., Briand, C., Grutter, M. G. Crystal structure of the multidrug exporter MexB from Pseudomonas aeruginosa. J Mol Biol. 389 (1), 134(2009).
- Su, C. C., et al. Crystal structure of the CusBA heavy-metal efflux complex of Escherichia coli. Nature. 470 (7335), (2011).
- Nikaido, H., Takatsuka, Y. Mechanisms of RND multidrug efflux pumps. Biochim Biophys Acta. 1794 (5), 769 (2009).
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Methods in enzymology. 372, 65 (2003).
- Aires, J. R., Nikaido, H. Aminoglycosides are captured from both periplasm and cytoplasm by the AcrD multidrug efflux transporter of Escherichia coli. J Bacteriol. 187 (6), 1923 (2005).
- Picard, M., Verchere, A., Broutin, I. Monitoring the active transport of efflux pumps after their reconstitution into proteoliposomes: caveats and keys. Anal Biochem. 420 (2), 194 (2012).
- Verchere, A., Dezi, M., Broutin, I., Picard, M. Basic Methods in Protein Purification and Analysis, edited by iConcept Press. , (2012).
- Verchere, A., Broutin, I., Picard, M. Photo-induced proton gradients for the in vitro investigation of bacterial efflux pumps. Sci Rep. 2, 306 (2012).
再版と許可
タグ
