心筋細胞では、管状の膜構造は、細胞内のネットワークを形成している。私たちは、品質管理、最先端の蛍光顕微鏡用ii)の生細胞染色を含むマウスの心臓から心筋細胞のi)の単離のためのプロトコルを最適化について説明し、およびiii)直接画像解析は、コンポーネントの複雑さおよび細胞内膜の可塑性を定量化するネットワーク。
方法論記事
心房と心室から心筋細胞における管状膜ネットワークの解析
* These authors contributed equally
この記事について
サマリー
要約
心筋細胞では、膜細管の複雑なネットワークである横軸尿細管システム(TATS)が細胞内の深いシグナル伝達機能を制御しています。外面メンブレンと関連するTATSメンブレン成分は連続しているように見えますが、脂質とタンパク質の含有量には大きな違いがあります。心室筋細胞(VM)では、特定のTATS成分が非常に豊富に存在し、直線尿細管ネットワークと規則的な分岐3Dアーキテクチャに貢献しています。末梢のTATS成分は、細胞表面から数千の遠隔細胞内筋小胞体(SER)膜接触ドメインに活動電位を伝播し、それによって細胞内Ca2+放出単位(CRU)を活性化すると考えられています。VMとは対照的に、心房筋細胞(AM)におけるTATSメンブレンの組織化と機能的役割は大きく異なり、あまり理解されていません。まとめると、健康な筋細胞と罹患した筋細胞におけるTATS膜ネットワークの定量的な構造特性評価は、機能的な可塑性と病態生理学的再編成をよりよく理解するための重要な前提条件です。ここでは、生きているVMおよびAMにおけるTATS膜ネットワークの直接定量分析のためのプロトコルの戦略的な組み合わせを紹介します。このために、マウスVMおよび/またはAMの初代細胞単離には、TATSメンブレンの蛍光イメージングのための重要な品質管理ステップと直接膜染色プロトコルを伴います。共焦点または超解像TATS画像処理に最適化されたワークフローを使用して、TATSネットワークとそのコンポーネントの定量分析のために、二値化およびスケルトン化データが生成されます。これまでに発表された間接的な局所凝集画像解析戦略とは異なり、当社のプロトコルは、ハイスループットでオープンアクセスのソフトウェアツールにより、生きた筋細胞のTATS膜ネットワークの特定の成分を直接特性評価し、複雑な生理学的特性を導き出すことができます。要約すると、この組み合わせプロトコル戦略は、生理学的筋細胞の適応や疾患の変化、異なる心筋または骨格筋細胞の種類の比較、トランスジェニックモデルの表現型決定、および薬理学的または治療的介入における定量的なTATSネットワーク研究に容易に適用できます。
概要
健康的な横紋筋細胞では、メインセル軸に垂直な「横」配向(T管)を有する管状の膜構造が豊富である。したがって、T-細管深くセルの中心に向かって細胞質ゾルに侵入筋細胞メイン「横方向」表面膜(筋細胞膜)の連続的な拡張、として特徴付けられている。外表面膜を有する連続T管の生理的役割は、電位活性化L型Caのナノメートルの近接結合による比較的大きな心筋細胞の体積全体のSERオルガネラコンタクトドメインによって形成された遠隔細胞内区画の急速な電気的結合2+チャンネル隣接するリアノジン受容体(RyR2の)SERのCa 2 +放出を活性化電流(I Ca)の内向き(Cav1.2)。心室筋細胞(VMS)、接合部のSERドメインとTとの間の非連続膜に接触する(「ジャンクション」)では、-tubulesは、各セル1に個別の細胞内Ca 2 +放出のナノドメインの数千を制御すると考えられている。
任意の連絡先ドメインでは、並置された膜部分T管と周辺(接合部)SERのそれぞれが、それ故にナノドメインとして定義され、互いに近接15nm程度である。これにより、非常に小さな個別の細胞質の部分空間は、準細胞自律的コンパートメントの動作を可能にする分離される。着信活動電位が作動すると、現在の内向きのVM、比較的小さいのCa 2 +の T管におけるCav1.2チャンネルが急速にattoliterサイズのナノドメイン1での[Ca 2 +]、Sの部分空間のCa 2 +濃度が増加します。次に、の[Ca 2 +] Sの増加は、並置されたSER膜接合にナノメートル近傍内のCa 2 + -gatedリアノジン受容体(RyR2の)を活性化し、この結合プロセスは、すべての電気的に結合を通して起こるd個の筋細胞ナノドメイン。 RyR2sは5-10のRyR2チャネル2用の1 Cav1.2チャネルの推定化学量論と同様に、高密度のマルチチャンネルクラスターを発生する。 SER対細胞質ゾル以来の[Ca 2 +]勾配は(比率10 4:1)非常に急峻で定量的に大規模な内CaのRyR2活性化の結果、およびRyR2s機能機能的に結合されたクラスタ内の高コンダクタンスのCa 2 +の放出チャンネル2 + T管からの放出電流は1〜2ミリ秒3,4内は100μM以上にローカル部分空間の[Ca 2 +] Sを増やす接合SERドメインを結合されている。この心臓信号増幅動作は、のCa 2 +誘発性のCa 2 +放出(CICR)と呼ばれる。まとめると、T管は急速に興奮収縮(EC)カップリングの間接合ナノドメインのSERの接点を介してのCa 2 +の放出信号を活性化し、細胞全体のCICR 不可欠膜構造である。
T-細管に加えて、軸方向の尿細管メイン(縦)細胞軸に有意差が平行な配向での(A-細管)は、電子顕微鏡(EM)、共焦点及び2光子顕微鏡研究によって実証されている。例えば、サルコメアのZラインに近いT管と相互接続筋原線維間に、尿細管の細胞全体の継続的な格子は、細胞外トレーサーと固定モルモットのVM 5のEMイメージングによって示された。細胞外デキストラン連動フルオレセイン染色を使用し、ラットVMの2光子イメージングを生きる、複雑な網状3D細管ネットワークは〜60%のT管と約40%のA-細管6からなる可視化した。本研究では、豊富なA-細管の3D可視化するだけでなく、EMの可視化のために、切片は、本質的に横軸細管システム(タッツ)のような複雑で動的な膜ネットワークの解析のために制限されているという認識につながっただけでなく、。したがって、直接ジ8 ANNEPSで染色タッツ膜の共焦点生細胞イメージングを開発した。生細胞の場合タッツネットワークは、フーリエ変換によって分析され、サルコメアZ-ライン近傍の空間におけるT-細管成分の定期的な外観は、横紋信号7の領域からのアンサンブルパワースペクトルによって反射される。この間接的な分析戦略は、疾患モデル7におけるタッツコンポーネントの規則でセル全体の地域の変化を検出するために使用されている。例えば、shRNAを仲介junctophilin-2のノックダウンは、心不全やアイソフォーム特異的なタンパク質欠損はナノドメインのCa 2 +の放出機能障害8とT管の再編成をもたらしました。私たちは最近、直接、定量的なアプローチを通じて、さらに誘導放出枯渇(STED)ナノスコピー9を用いて、マウスのVM内の個別タッツ·コンポーネントの生細胞の超解像顕微鏡によってタッツ膜ネットワークの解析を高めています。横の50:50分布に近似より小さい個別のタッツ·コンポーネントの直接分析のために許可されたナノメートル画像の解像度、アキシャル細管の向きに対して、定量的に健康なマウス心臓9内の2つの豊富な、まだ差別的指向の個別のタッツ·コンポーネントを確認した。これらの戦略は、さらに以下のプロトコルのセクションで説明されます。
成体心臓に豊富A-細管部品の生理的役割は謎のままであったが、EM研究は、モルモットとラットのVM 5,10において内因性のCa 2 +の放出ナノドメインを示唆し、細管に関連したSER膜構造を報告している。 Cav1.2及びRyR2の共焦点分析は、A-細管ジャンクション10で共局在度の高い発見した。 VMがT管は一般的に発生するZ線の条線から比較的離れて発信したラットに自発のCa 2 +スパークの〜20%以来、1番目の引数は、細管に関連するナノドメインが実際に存在し、機能し得ることであったのCa 2 +の放出サイトなど11,12。興味深いことに、T-細管形成及び成熟OCP5での前駆筋細胞膜陥入の萌芽と未熟を通じてのみ生後CURSおよび心臓細胞の増殖に匹敵する、 例えば 、マウス13でP10でタッツネットワークアセンブリを分岐した。これは、遅れたのCa 2 +放出および未熟A-細管支配のアーキテクチャと一致して病的なタッツ組織につながるSER接合部にT管膜の固着を防止するshRNAノックダウンするのでJunctophilin-2は生後タッツ·ネットワーク·成熟のために特に重要であると思われる仮想マシン13。これらの観察結果は、最終的には、概念実証T管の追加やさえ代替細胞内のメカニズム14を通じてモーフィングも、細管のに対し、膜陥入過程を通じて形成につながる可能性があります。
心臓病でのタッツの膜の変化の特徴付け病態生理学的な質問のための重要な研究領域となっています。ペーシング誘発性の心臓の犬モデルにおける初期のレポートfailu再T-細管およびCav1.2電流(I Ca)の 15の損失を示した。虚血性心筋症のブタモデルは、T管の密度の低下を示した、細胞内のCa減少同期は16をリリース2+。心不全の自然発症高血圧ラット(SHR)モデルを用いて、T管の損失は「孤立のRyR2」の提案されたメカニズムによってCav1.2及びRyR2の減少したナノドメイン結合と関連していた7。 T-細管の損失はまた、虚血性拡張型心筋症、および肥大型心筋症試料17からのヒトのVMに示されている。さらに、細管の増加は、ヒト拡張型心筋18の組織切片で報告された。心筋梗塞の後、私たちは、細管部品9の増加するとは対照的に、T管の有意な低下とマウスのVMにおけるタッツ再編の差動機構を示した。重要なことは、改良されたローカルの膜コントラストは、生細胞superreを通じて達成ソリューションSTED顕微鏡タッツネットワーク長の全体的な増加にA-細管の有意な増殖を示したと複雑9分岐直接的な測定を通じて、詳細な定量的な成分分析を可能にした。また、心筋梗塞19の後および心臓再同期療法が心房tachypacing誘起心不全20の犬にT管のリモデリングを逆転させる可能性があることをラットでのT管リモデリングを逆転得るよう運動トレーニングを示された。プロトコールに概説され、以下のセクションで結果としてまとめると、病気のヒトおよび動物のVMだけでなく、潜在的な治療的介入の両方の研究は間違いなく高品質の細胞単離手順や詳細な定量分析戦略の恩恵を受ける。
KATPチャネルのタッツの膜輸送は21アイソフォームに対するさらに、側面が最近実証されるように、心房メートルを考慮することが重要であるyocytes生物学的に明確なだけでなく、仮想マシンに対する比較心臓細胞モデルとして(AMS)。 T管は、最近羊と人間のAM 22に記載されていた。現在の証拠は、いくつかのT管は23羊と人間のような大型哺乳動物におけるではなく、小型げっ歯類、典型的には、AM細胞に存在し、ことを示唆している。仮想マシンとは対照的に、AMは細胞内のCa 2 +放出は、マークの空間的および時間的のCa 2 +の勾配23を生じる細胞の中心に向かって拡散により細胞表面を伝搬するから生じるように見える。この枠組みの中で、このような心房細動24などの一般的な病気の形態のための細胞内Ca 2 +シグナル伝達の不安定性の機構を解明することが重要と思われる。要約すると、健康で病気の心のために両方のAMとVM細胞単離、それぞれが一般的なプロトコルを採用している。十分な細胞品質の顕微鏡の資料によって判断されるように細胞の単離が適切に行われている場合にのみ、AMおよびVMサンプルはCAであるべき定量的タッツ分析のために前進rried。従って、以下のプロトコルのセクションでは、マウスまたは無傷タッツ膜を分析するために、生細胞顕微鏡に続く他の種から分離された高品質のセルに決定的に依存している。以前に指摘したように、タッツ膜の特性評価は、固定と準備アーティファクト6、浸透圧の変更に起因する膜の変化、および従来の光学顕微鏡9の分解能の限界のための傾向と挑戦的な研究領域である。私たちは、Ca 2 +イメージングとパッチクランプ用の細胞培養のためのラットのVMの人間のAMの単離のための最近の最先端のプロトコルが以前にこのジャーナル25,26に掲載されていることに注意してください。
プロトコル
注:すべての動物の手順は、実験動物の人道的な管理と使用を遵守して検討し、大学医療センターゲッティンゲンの施設内動物管理使用委員会によって承認された。
マウス心臓から心房および心室筋細胞の単離
- できるだけ穏やか動物を処理し、一般的には、ストレスを最小限にするために、具体的には孤立した心臓細胞での神経ホルモンの過剰からの潜在的に強力な不注意の影響を回避するために、承認されたプロトコルに従って。加えて、ヘパリン(500 IU / kg体重の皮下注射)を大幅単離の間心臓細胞の収量および完全性を損なう可能性が血液凝固とマイクロ塞栓を防ぐために、前に心臓の抽出には、少なくとも20分間、各マウスを注入します。
- イソフルラン吸入により12週歳以上のマウスを麻酔、疼痛の引っ込め反射がないことを確認し、頚椎脱臼により動物を安楽死させる。
- 以前に確立された専門家のプロトコールに従って迅速に心臓を抽出し( 例えば 、ケストナーら 26 Louch ら 27 参照 )。不要な圧搾により心房への不注意による損傷を避けるためか、ストレッチ。
- 慎重に成功したカニュレーションや心臓の灌流のために重要である大動脈の血管壁を通して連続横方向の刃先を確立するために、切り株の鉗子とストレートハサミを使用して、近位上行大動脈の組織を維持する。
- (ソリューションは、表1を参照)の氷冷にすぐに、名目上のCa 2 +フリーの灌流液を切除し、心臓を転送します。心が完全に水没するまでの不注意空気塞栓症を回避するためにバッファに空気を介して転送中にクランプされた大血管にしてください。心臓の収縮を抑制するためにバッファし、氷冷した溶液中のBDMを使用してください。
- 十分な3次元ILLUMで双眼ズーム顕微鏡を使用して、ination。
- 完全にバッファで満たされている必要があります。スムーズで、心臓のパノラマステレオビジョンの下で大動脈にカニューレを挿入、表面は21のGカニューレ(正常なマウス心臓重量のため、外径0.81ミリメートル)を研磨する。迅速なソリューションのフロー制御を可能にする2ウェイルアー弁を介して近位溶液リザーバ( 例えば 、注射器)を接続することにより、カニューレ内に気泡がないことを確認します。
- カニューレが大動脈弁および冠動脈枝より約1mmである大動脈の内側に正しく配置されていることを両眼倍率で確認してください。絶対に(これは恒久的に大動脈弁閉鎖を破壊し、その結果、心臓の灌流を中断されます)のいずれかを通過またはカニューレと大動脈弁の不注意な穿孔を避ける。
- 2絹縫合糸を使用してカニューレの終わり近くに、カスタムメイド、周方向に配向滑り止めの溝に優しく大動脈を接続します。冠動脈arteriをフラッシュしないでください任意の時点で強制的にES。修正されたランゲンドルフセットアップ別名カスタマイズされたと予め較正灌流システム、(;も以下の議論の項を参照のどちらかを一定圧力または一定の流れを使用して)のしっかりとフィッティング流出コネクタに大動脈や心臓に縛らソリューション満たされたカニューレを接続します。
- 37°C(:4ml /分の目標灌流速度)での酸素化灌流緩衝液を用いて4分間できるだけ早く心臓を灌流する。 37℃で8〜10分間、消化緩衝液(600 U / mlコラゲナーゼタイプII)を含むコラゲナーゼへの灌流を切り替えることにより、消化を開始する。見かけの心臓表面全体に不透明さ、柔らかさ、そして弛緩を増やすなど、類似の組織変化を確認することにより組織消化の進行状況を監視します。
- 必要に応じて、以下の消化などの心室を解剖。双眼顕微鏡下でカニューレを挿入し、心臓を置き、後部心臓壁を視覚化する。残余の非心臓組織、例えば 、肺aを解剖図1に示すように、ndは容器部品は、マイクロ剪刀(8ミリメートル直線ブレードを有する、例えば 、ばねはさみ)を使用して消化緩衝液中の細胞の汚染を回避する。
- 左および/ または右心房に、無料の左および/ または右心室壁、および/ または心室中隔:特定のチャンバー、領域、および/ または心臓が収穫されるべきで消化されたコラゲナーゼの細胞( 図1)は 、チェックリストに従ってください。
- 特定の心臓組織の切開、シリコーン可塑性エラストマーの数mmの厚さの層でコーティングされた、比較的広く平坦な解剖槽を使用しています。下部エラストマー層に細かい虫スチールピンで心尖を修正しました。
- 右心耳をそらすだけ房室弁上記の右心房を解剖。左心房との解剖を続行します。解剖と繊維状弁装置を廃棄する。最後に、左、右心室自由壁と中隔および/または小を分析必要に応じて小胞体組織部分。
- 研修生のためにのみ注:練習を得るために、非消化したマウス心臓で始まる。解剖の向きを容易にするために、 図1に示すように両眼視の下の3D解剖学、手作業たら。両眼視下にあるすべての連続した解剖の手順を含む組織の取り扱いを練習し、解剖の手順は十分に精通している、コラゲナーゼを続けるようにマウス心臓を消化上記で概説した。
- 心室筋細胞(VM)細胞単離の場合:新鮮な消化緩衝液2.5mlの中に心室組織を移す。いくつかの器官の部分、 例えば 、心房と心室からの同時の細胞単離が試みられると、二人目は、細胞解離手順の一方の脚を引き継ぐことができるの両方を最小化し、複数の心臓組織の協調処理を介してマウスの使用を最適化する。ステップ1.9.1-1.9.4、その後1.10に進みます。
- 全体心室組織のいずれかを分析またはその特定の部分( 例えば 、左心室、右心室、自由壁および/ または隔膜)60ミリメートルペトリ皿に鋭いハサミ(8ミリメートルストレートブレードを有するなど 、春のはさみ)を使用して、2.5ミリリットル消化緩衝液中で約1mm 3片に。
- 静かにホールピペットで組織片のゆっくりと粉砕することにより、細胞懸濁液にVMを解離する。細胞懸濁液中に空気バブリングを避けてください。
- VMの細胞懸濁液に停止緩衝液を8mlを加え、15 mlコニカルチューブに細胞懸濁液を移す。残りの組織片は、約15秒間底に沈降させたが、サスペンションに留まる単離された細胞のために十分に短い。次に、新しい15mlチューブに上清ボリュームの移動を介して仮想マシンのサスペンションを収穫。過度の組織片が存在する場合、あるいは最小限に200μmの間隔を置いたナイロンを使用して、細胞懸濁液から組織片を分離するためにメッシュ。
- VMの細胞懸濁液を15mlの同時の底に沈降しましょ8分間の重力によってnicalチューブ。
- 洗浄ステップ:上清を除去し、穏やかに灌流緩衝液10ml中に残っているVMのペレットを懸濁します。繰り返し洗浄ステップ1.9.5(オプション:必要に応じて徐々のCa 2 +濃度を上昇させるために、追加の洗浄工程を追加)。
- 10ミリリットルの灌流液に定住したVMペレットを再懸濁し、1.5 mlのマイクロチューブ(チューブ当たり約50,000のVM細胞)内の残りの細胞懸濁液体積を配布します。
- 心房筋細胞(AM)細胞単離の場合:新鮮な消化緩衝液1mlに消化/解剖し心房組織を移す。
- 小さ なペトリ皿( 例えば 、直径60mm)で、マイクロはさみを使用して、1ミリリットル消化緩衝液中で約1mm 3の断片に部分的に消化された心房組織をカット。穏やかに損傷流体ジェットを回避するために、切断先端で1mlのプラスチックピペットで摩砕を用いて細胞懸濁液中に消化された組織片からAM細胞を解離する。間に粉砕して、厳密に細胞懸濁液中に空気バブリングを避ける。細胞懸濁液の残りのコラゲナーゼ活性を阻止するために、機械的攪拌の後、停止緩衝液4mlの(10%BCS、50μMのCaCl 2)を追加します。
- を15mlコニカルチューブにAMの細胞懸濁液を移す。残りの組織片は、約15秒間底に沈降させたが、サスペンションに留まる単離された細胞のために十分に短い。新しい15mlチューブに溶液移送を介して自由AM細胞を含む上清容積を収穫する。
- RTでのAMの細胞懸濁液、 例えば 、20×gで2分間遠心または-好ましくは、膜の研究のために-細胞は15ミリリットルコニカルチューブ内で20分間、重力によってゆっくりと落ち着くしましょう。
- 洗浄ステップ:上清を破棄し、静かに5ミリリットルの灌流液にAMペレットを懸濁します。 1.10.4を繰り返します。
- 再懸濁AM細胞を穏やかに5ミリリットル灌流バッファー中。を1.5mlマイクロ遠心槽中の細胞懸濁液の体積を配布ES(チューブあたり約1,000 AM細胞)。
- 分析し、トリパンブルー染色を用いて細胞収量を含む各心臓に単離された細胞集団の品質を文書化します。
- 1ミリリットルカットピペットチップを使用して、トリパンブルー溶液(最終濃度0.02%)と1容量/容量:このためには、1のように細胞懸濁液を500μlを希釈。非常にピペッティングアップ/スローダウンにより穏やかに細胞やパンブルーを混ぜる。すぐにサイトメーター改善ノイバウアー型への細胞懸濁液を含有するトリパンブルーを適用し、倒立顕微鏡を用いて無傷の筋細胞を数える。
- 見かけの損傷を持つ細胞を排除、膜ブレブは、( 図2)は、細胞内トリパンブルーを蓄積条線、拘縮、および細胞を破壊した。また、その後の細胞死を受けやすい自発的に収縮する細胞を、除外する。懸濁液中で無傷の細胞の数を評価するために、全体のパンブルーを排除し、正規条線のみ心筋細胞を使用細胞容積。
- 透過光顕微鏡による個別の心房および心室筋細胞の整合性を判断する。文書化とさらなる分析のためtifファイルのファイルとして明視野像を保存します。
- 心臓細胞の完全性の分析のために以下の基準を使用します。
- 目に見える細胞容積全体に規則的な条線の存在を確認する。
- 両方の細胞側の側面膜筋フィラメントに平行に連続的に整合性を確認する。
- 特定の表面の膜構造の完全性を反映して、両方の細胞側の介在板で鋭い鋸歯を視覚化する。そして
- 次の基になる細胞特異的な明視野像の形態( 例えば 、オーバーレイ複合IMAGとしてImageJので両方の画像を結合への局在化相関は、セクション3に記載したようにタッツ膜の蛍光シグナル(または免疫標識カベオリン3タンパク質または他の膜マーカー)を可視化する電子)。
- 明視野画像から筋節の長さを決定します。平均筋節の長さについては、順次整列サルコメア条線までの距離を測定し、筋節数で距離を分割。細胞当たり少なくとも2箇所測定する。 ImageJのと商用ソフトウェアまたはオフラインでの解析を実行します。
注:脱共役剤で処理した場合、マウスの心臓から無傷リラックスしたVMは〜1.9μmで28の平均筋節の長さを示している。
- 心臓細胞の完全性の分析のために以下の基準を使用します。
- 透過光顕微鏡画像から形態や個人の心房および心室筋細胞の大きさを定量化する。 AMおよびVM細胞のサイズが大きく異なることを考慮してください。セル長さ、幅、面積を測定し、長さを計算:幅の比。
- コマンドの多角形選択ツールを使用して、ImageJの透過光画像から2Dセル寸法を分析し、ROIマネージャーに追加し、 図3に類似する。形態学C場合はhangesは、全てのセルのためのさらなるドキュメントの特定のマウス系統、年齢、性別、心臓の大きさ、およびその後のデータ分類のための任意の特定の介入研究の文脈内で期待されている。
リビング心房および心室筋細胞におけるタッツ膜の2。染色
- 42ミリメートルのガラス製カバースリップで画像化チャンバ( 例えば 、POC-R2)をロードします。カバーガラスへの安定した筋細胞の添付ファイルの場合は、生理的な灌流液(最終濃度0.2 mg / ml)をラミニンのストックの1:10希釈によってラミニン溶液20μlを準備します。カバーガラス上に均一にラミニン溶液20μlを広げる。
- 灌流緩衝液中の50μMのジ-8-ANEPPS液の800μlのを準備します。このために、2 mMの780μlの生理的緩衝液中のジ-8-ANEPPS原液20μlを希釈する。
- VMを染色し、細胞を1.5ml反応チューブ内で8分間、重力によって沈降させ。のAMを染色、どちら重力沈降またはSPを使用するには、2分間細胞懸濁液に(1.10.3参照)。細胞ペレットの不必要な撹拌を避けながらのAMとVMの両方について、慎重に上清を除去し、穏やかに800μlの溶液(50μM)を含むジ - 8 - ANEPPSに細胞ペレットを懸濁します。すぐに画像化チャンバ内ラミニン被覆カバースリップの上に、ジ-8-ANEPPS /筋細胞懸濁液を移す。
- 暗所で室温、15分間のVMサスペンションを染色。
- ゆっくり手動ピペットで画像化チャンバの両側に上向きの流体メニスカスを経由して余分なボリュームを削除します。大多数のジ - 8 - ANEPPS染色筋細胞がしっかりとラミニンコートカバースリップに付着したままで、空気にさらされるとはならないことを確認してください。次に、ゆっくりと非接着細胞を含む任意の過剰な流体を除去することにより、灌流緩衝液1mlを添加することにより、一度取り付けられた筋細胞懸濁液を洗浄する。
- 慎重に、ゆっくりと、tの側から灌流緩衝液1mlで染色し、表面付着した筋細胞をオーバーレイ彼は室内を撮影する。顕微鏡ステージ上で画像化チャンバを配置します。
リビング心房および心室筋細胞におけるタッツ膜構造の3イメージング
- 一般的に、慎重にタッツ膜イメージングのための利用可能な最善の蛍光顕微鏡オプション(複数可)を選択します。共焦点イメージングのために、最近の世代の、最適化されたPMTアレイ検出器および蛍光シグナル強度を最大フォトンリサイクル経路を備えたモダンな蛍光顕微鏡を考える。タッツの小さい細部の共焦点イメージングのための膜構造は、63X 1.4 NA油客観的またはを使用する-可用性に応じて- 。高の一般的な原則については、コール首相ら 34による筋固有のアプリケーションのためにレビューとして最小のタッツの詳細については、STEDの超解像顕微鏡を使用解像度の蛍光顕微鏡では、議論のセクションを参照してください。
- 、理想的にはすべてのジ - 8 - ANEPPS染色細胞内のMEMをほとんどを検出するために撮像パラメータを設定する指定された筋細胞撮像面の内側ブレーン。最大レーザーパワーの3%で、励起458 nmの例 ;:共焦点レーザー走査顕微鏡法のための出発点として以下のパラメータを使用550 nmおよび740 nmの放射された信号を検出。検出器利得( 例えば 、マスタ指令800); 900nmでの光学的スライス厚とピンホール1 AU。信号対雑音を最適化するためにこれらのパラメータを調整する。
- 適切な( 図4Aおよび4B)無傷のAMまたはVMのセルを選択するために、明視野モードを使用します。要約するようにセルを選択するセルの整合性をどのように判断するか、関連する基準について1.12ポイントを参照してください:セル全体の定期的なストライエーションと同等の筋節の間隔、シャープなサーフェスエッジとセレーションすべての4つの細胞側の、横方向の表面膜を連続的に整合性、の欠如任意の膜ブレブ。
- 中央の細胞内筋区間のサンプル画像を取る。 ROIを調整するには、「クロップ」機能を使用する→;最終的なピクセルサイズが100nm×100ナノメートルを測定する→トリミングウィンドウを調整する。筋細胞の主要な(軸/縦)軸に対応するようにクロップウィンドウのx軸を調整します。
- 最終的な撮像面を選択します。手動でz方向に適切な撮像面を選択するには、単一の画像フレームを使用してください。 T管とA細管コンポーネントを含むタッツ膜は、焦点面において視覚的に明らかであることを確認します。典型的な細胞内の撮像面は、細胞内の基準点として核を含んでいてもよいことに留意されたい。 図4Aおよび4Bの例を参照してください。
注:一般に、できるだけ短いレーザー光への細胞の暴露を続ける。可能な場合は、心筋細胞における最適な焦点面を決定するために、単一の画像フレームを使用しています。 - 約0.5秒に画素滞留時間を調整します。 16倍速平均化を選択して、スナップショットとして画像を記録する。適切な撮像面aを確立する画像スナップショットステップを繰り返し必要に応じて3.5タッツ膜構造体について概説した。■。
- 最終的な画像を保存し、ファイルをそのターゲットフォルダに保存されたことを確認します。一般的に、解析ソフトウェアを均一に塗布するために同じ形式( 例えば 、LSM)内のすべての画像ファイルを保存します。任意の画像分析の前に、再びオフラインに十分な細胞の完全性を確認する(ステップ1.12.1の下にリストされている基準を考慮)と分析から任意の損傷を受けた細胞を排除。 図4Cおよび図4Dの例を参照してください。
タッツメンブレンネットワークとそのコンポーネントの4。分析
タッツ膜成分の直接分析のための次の画像処理ステップは、 図5Aおよび図5Bにおけるトップダウンワークフロー図のように要約される。
- フィジー(http://fiji.sc/)に不可欠な分析プラグインが含まれているのImageJの自由に利用可能な変形では、筋細胞を染色し、ジ-8-ANEPPSの画像ファイルを開きます画像処理。詳細についてはSchindelin ら 29を参照してください。
- 名前を付けて保存→tifファイル→画像→ファイルを保存します。
- 、タッツ膜成分を分析し、外表面膜シグナルを除いた適切なROIを選択し、次に示すように、ROIの境界線は、外表面膜(筋細胞膜)を除くとタッツ膜の細胞内部分を含む線引きする「多角形選択」ツールを使用するには図5A(ROI)。 →ツール→ROI Managerを分析適用することにより、「ROIマネージャ」を選択されたROIを追加します。
- タッツコンポーネントの方位解析のために特定のROIを選択するには、並列に主縦セル軸と画像のx軸を整列。セルがわずかに湾曲している場合は、いくつかのROIを選択して、個別に各ROIの位置を合わせます。分析からの核を除外します。 Rの正確な位置合わせのための分析からの過度に湾曲した細胞を排除日和見はますます困難になると分析中にオリエンテーション·エラーが増加します。
- 外表面膜からの不要な信号情報を削除します。編集→クリア外"選択されたROI」( 図5A)を生成する。選択されたROIのみタッツネットワークに対応する細胞内膜部分が含まれていることを確認してください。
- 図5Aに記載されているように、その後の定量分析の前に画像処理ステップ(コマンド)の次のチェーンを実行します。
- 減算背景→→プロセスをクリックします。 5ピクセルにローリングボール半径を設定します。
注:分析される画像は、Xが100nm 100nmのピクセルサイズを有する場合、5画素にローリングボールの半径を設定する。他の画素サイズの場合約500nmの物理的半径に対応する画素数に転がりボール半径を設定します。 - ローカルコントラストを高める→→プロセスをクリックして(CLAHE)。 49にブロックサイズを設定し、256ヒストグラムビン、3への最大傾斜、および "none"にマスク。
- スムーズ→プロセス→をクリックします。
- →プラグイン→セグメンテーション→統計地域マージをクリックします。表示平均をクリック→Q100にパラメータを設定してください。
- 新しい画像フレームの自動プレゼンテーションで示された統計地域併合の完全な処理を確認していることを確認してラベル "= 100のSRM Q」が表示されます。このイメージファイルを使用して次のステップを続けます。 →画像→タイプ→8ビットをクリックします。
- →イメージ→→しきい値を調整をクリックします。低信号強度のタッツ·コンポーネントの特定の回避排除における理想的にすべてのタッツ構造、(出発点として40のしきい値を使用します)、ほとんどを検出するのに十分に低いしきい値を選択してください。詳細なデータ出力のための「代表的な結果」セクションと、図6の例を参照してください(255の上限しきい値)。しきい値パラメータの最終的な選択を文書化します。しきい値の正しい選択が原因で、バックグラウンドノイズにのみ特定のタッツ膜構造体ではなく、偽陽性シグナルを生成する必要があることに注意してください。
- 骨格構造の(dis-)継続性を一致させる必要があり、中間および高い蛍光信号レベルのため、特に、抽出スケルトンデータ、対タッツ画像細部の正しい重ね合わせを確認してください。適切なしきい値は、識別されると、分析中にすべての画像に同じしきい値を適用し、一貫して、バイアスのこの潜在的な供給源を最小限にするためにスケルトンデータに対する元の信号の重ね合わせ比較を繰り返します。
- →適用]をクリックしてください。「しきい値」の下に、図5に示すように画像データがバイナリになります。
- →をクリックしてプラグイン→スケルトン→骸骨になる(2D / 3D)。 tifファイルによりファイルとして( 図5に示すように)スケルトン2D画像を保存する→tifファイルとして保存→ファイル→をクリック。 →プラグイン→スケルトン(2D / 3D)を分析クリックすることにより、定量的なデータ出力用のスケルトン画像ファイルを分析します。なし:プルーンサイクル方法を選択します。結果のデータ·テーブルの自動生成を確認します。
- txtファイルとして自動的に生成されたデータテーブルを保存します。 図7の例示的なデータによって示されるように、関連する定量的なパラメータ、 例えば 、分岐点の総数または平均枝長を選択します。Excelや、必要に応じて同様の補完的な/サポートするソフトウェア·ツールとのさらなるデータ分析を考えてみましょう。
- 減算背景→→プロセスをクリックします。 5ピクセルにローリングボール半径を設定します。
- 個別の画像および/または画像バッチ間の分析を調和させる4.5の下に記載されているすべての必要なステップを含め、可能な限り自動化された画像処理ルーチンを使用することを検討してください。フィジーのためにプログラムの画像処理マクロを(必要に応じてプログラミングを調整)を含む例補足コードファイルを使用します。
- 中を分析全部またはフィジーのプラグイン「方向性」によって骨格化画像データからタッツネットワークコンポーネントを選択するdividual向き。それぞれの軸方向に細管を指向または横方向に指向T管の成分が0°または90°のビンで表されている方向性ヒストグラムを生成します。画像の向きの正しい参照に注意してください、それは、図8および代表的な結果に示されるように、VMセルの要(縦)0°軸と密接に対応して、画像のx軸のために重要であること。
- →方向性→メソッドを指定する分析→をクリックしてください。フーリエ成分、Nbins 180、ヒストグラム開始-45→ディスプレイテーブルをクリックしてください。
- txtファイルとして関連付けられたヒストグラムデータを含め、新たに生成され、表示される結果のテーブルを保存します。 Excelのような、必要な、無料のソフトウェアツールによって、txtファイルデータのさらなる分析を考えてみましょう。
- のサブクラスを生成するにはすべて同じ条件で処理した細胞(および潜在的に他の条件)がグループ化されたデータセットなどのデータなどは 、分析が必要に応じて、関連するすべての画像に対して4.1から4.7を繰り返し繰り返します。平均値を導出するために、1つ組み合わせたExcelファイルにすべての画像からスケルトンデータパラメータをインポートします。加えて、計算して平均方向性ヒストグラムを生成するために結合されたExcelファイルに同じグループ化されたデータセットからすべての方向ヒストグラムデータをインポートします。必要に応じて、個別の又は異なる治療群間の利息の追加のタッツネットワークパラメータを分析するためにグループ化されたデータセットの後続の処理を検討する。
結果
加えて、細胞内Ca 2 +イメージング、パッチクランプ電気生理学、または薬理学的用量反応試験は、心房または心室からの高品質な一次細胞単離に決定的に依存するか、選択するように一般的に使用される細胞生物学の多くの技術タッツ膜ネットワーク分析へ成熟した差別化、構造的にも生理的な無傷の心筋細胞の特徴付けを可能にするために心臓組織の一部。したがって、セクション1に記載された午前とVM細胞の分離と品質評価は、無傷の膜と細胞の完全性に決定的に依存ここで説明タッツネットワーク解析、など、さまざまな質問については、最終的には便利です。
図1は 、マウスの心臓内の心房室から始まる心臓組織切開を続行するにはどのように画像の段階的なマニュアルを提供しています。その後、心室と中隔を準備する必要に応じて解剖しdを。正しい組織部分の正確な選択および調製は、確実に十分な細胞純度AMおよびVMアイソレーションを確立することが重要である。コラゲナーゼ消化後には、心房および心室組織との間の解離の正しい行を識別することは比較的困難である可能性が、まだAMおよびVM細胞が細胞懸濁液中に制御不能に混合されると、それは混合細胞集団を逆転することは不可能である。したがって、解剖学的向き、3次元組織の可視化、消化された組織の処理、特定の組織の部分の正確な同定とその解剖ラインと十分な経験は、すべての細胞単離の成功に貢献していきます。
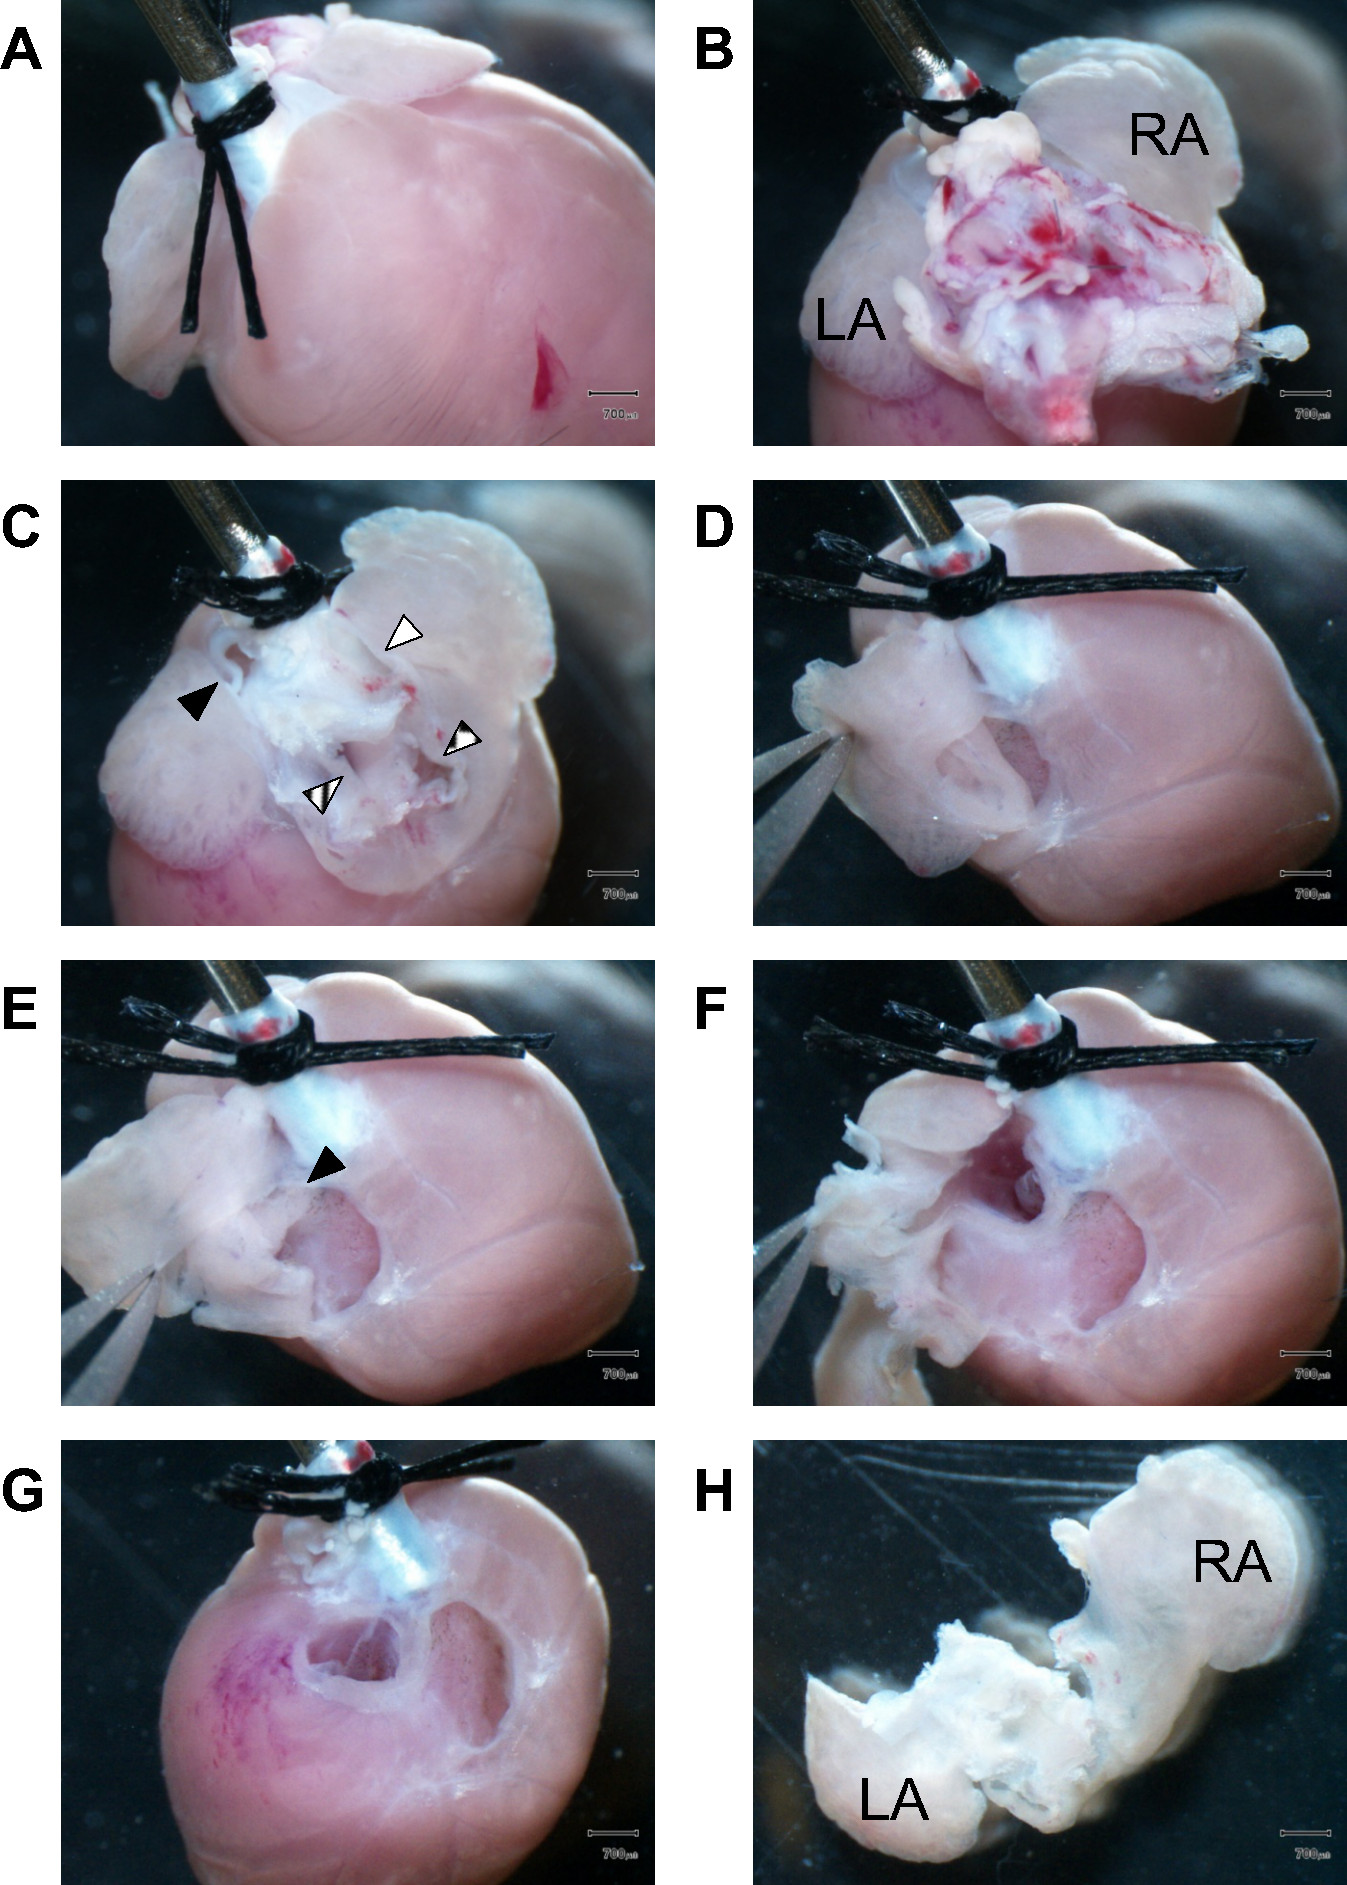
心房組織図1.Dissection。 (A)は 、心臓の前方部分に面し、2外科のuturesは21のG鋼カニューレの切り株端に近位大動脈に固定してください。解剖時の心房ビューを妨害肺組織を、残りの心臓の基礎ショーに向けて、(B)ビュー。 LA、左心房; RA、右心房(C)残りlungtissueおよび大血管、心房室にアクセスするために除去した。充填黒い三角形、肺動脈;横紋三角形、肺静脈;満たされた白い三角形、上大静脈;箱入りの三角形、下大静脈。鉗子心耳を保持しながら、(D)まず、右心房壁を切開しています。(E)、右心房の空洞に表示します。黒い三角形が無傷の心房中隔をマークします。(F)解剖は、左心房の空洞に入ることを継続する。(G)、左右の心房の完全な解剖の後、房室弁が見えるようになる。繊維状の弁装置を切開し、subseqために廃棄されているuentlyのみ心室筋組織を採取する。孤立左右の心房の(H)の後面図を。 LA、左心房; RA、右atrium.Scaleバー:700μmの。
細胞単離の品質を決定するために、 図2は、典型的なロッドやレンガの収率および生存率の両方のAMやVMの形の横紋筋細胞、無傷の評価中に典型的な細胞の例を示します。セクション1.11に記載されているように異常な過度に湾曲した形態、または異常球状細胞リトル損傷し、視覚的に目立たないだけでなく、深刻な損傷を受けた細胞は、容易にパンブルー排除などの識別することができる。ブルー細胞外パンにさらされたときに、完全な筋細胞が明るく均一に横紋残っていますが、損傷を受けた細胞は通常、複数の膜ブレブを示し、かつ/または迅速に細胞内膜損傷を示すパンブルーを蓄積する。しかし、それだけでパンブルーはunnecessariを通して細胞に損害を与える可能性がLY長い潜伏し、即時の細胞質の評価ですので必須です。筋フィラメント拘縮又は重大な表面損傷損なう細胞の完全性のような細胞の損傷のより明白な形の例を 、 図4Cおよび4Dに示されている。 この図の拡大版をご覧になるにはこちらをクリックしてください。

図2にトリパンブルー排除細胞染色。絶縁(A)AM及び(B)VM細胞はトリパンブルーで懸濁液中で混合し、40Xmagnificationに示す倒立光学顕微鏡によって可視化する。 leaka indicatesmembraneパンブルーを取り上げthatabnormal球状(A)中の細胞および(B)、注意してくださいGeおよび構造上の損傷。示すように対照的に、無傷の膜とcentralAMとVM細胞がトリパンブルーを排除する。さらに、無傷のAMおよびVM細胞が筋節両側面でのそれらの細胞容積、nomembraneブレブ、および鋭いエッジ全体にストライエーションとの両方介在板を示していることに注意してください。スケールバー:20μmである。
成功した分離に続いて、10 6〜5×10 5からVMの細胞収率は、単一のマウス心臓消化から期待することができる。のAMの収率は、3×10 3〜3×10棒状、トリパンブルー排除細胞の順に有意に低い。 VMとは対照的に、アイソレーションが時折あっても経験豊富な手の中に失敗しています。ステップ1.11懸濁液中で孤立した健康な細胞の収量を推定する方法の手順をまとめたものです。個別のAMまたはVM細胞分離株については、図3に示すように加えて、ステップ1.13を通して平均セル寸法を決定またはVM細胞集団のサイド·バイ·サイド(必要に応じて)対AMを比較する。 この図の拡大版をご覧になるにはこちらをクリックしてください。
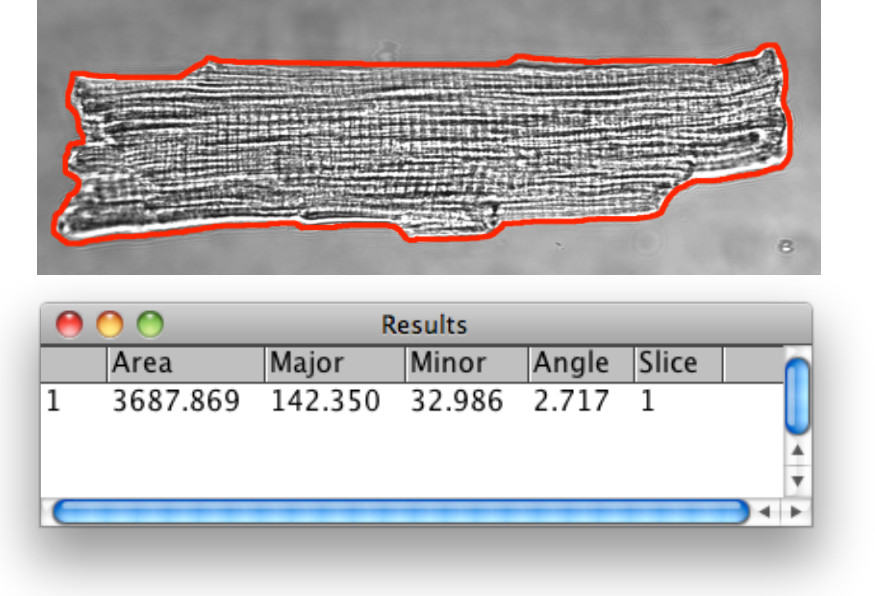
心筋細胞の3.Brightフィールド形態計測分析図。仮想マシンの輪郭は、ステップ1.13の下に記載された画像解析ツールによって検出された。マークを視覚的に分析するための外側表面膜によって定義されたセル外枠線を定義するために多角形選択ツールを使用します。広告のROIマネージャに関心領域(ROI)の選択された領域は、1次元の距離測定が続く。幅の比率:VM寸法対AMの比較研究のためには、セル長さ、幅、面積を文書化、および長さを計算することが有用である。

無傷の心房および心室ミオの4.Live膜染色図cytes。リビングジ-8-ANEPPSの透過光と、共焦点画像を対応するには、無傷の(A)AM及び(B)VM細胞を染色した。対照的に、1.2μmのサルコメア長部分的に収縮し、潜在的に損傷を受けたAMは、(C)に示されている。収縮した筋細胞は、典型的には、従って、さらなる分析から除外異常に短くなり、歪んタッツ構造を示している。細胞膜の欠陥のための別の重要な指標でVM(D)に示すように、膜ブレブ(赤三角)である。膜ブレブは、小疱で損傷した表面の膜構造、細胞はさらにタッツ分析から除外すべきで表す。さらに、VMは明らかに(アスタリスクでマークされている)、その左下部の全部分が欠落して総ダメージを示しています。要約すると、透過光および共焦点画像を比較することにより、細胞の形態および表面完全性が文書化されて、蛍光信号情報と組み合わせる。 'N'マークNUタッツ膜染色の分析から省略CLEI。黄色のバーは、上に示した、同じ共焦点画像から、拡大された関心領域を示している。スケールバー:10μmで、この図の拡大版をご覧になるにはこちらをクリックしてください。
図4Aおよび図4Bに示されるように、十分な信号対雑音比を有するタッツ膜の共焦点画像をさらに定量分析のために受け入れられている。タッツ膜の分析は、蛍光直進信号成分に由来する骨格化データに基づいている。 図5のステップ4.3〜4.5により詳細に記載されている個別画像処理ステップのワークフロー図を示している。これらのステップは、細胞(Fiを提供して 、各孤立VM( 図5A)について示されるように直線タッツ膜ネットワークを表すスケルトン画像を生成し、AMグレ5B)。
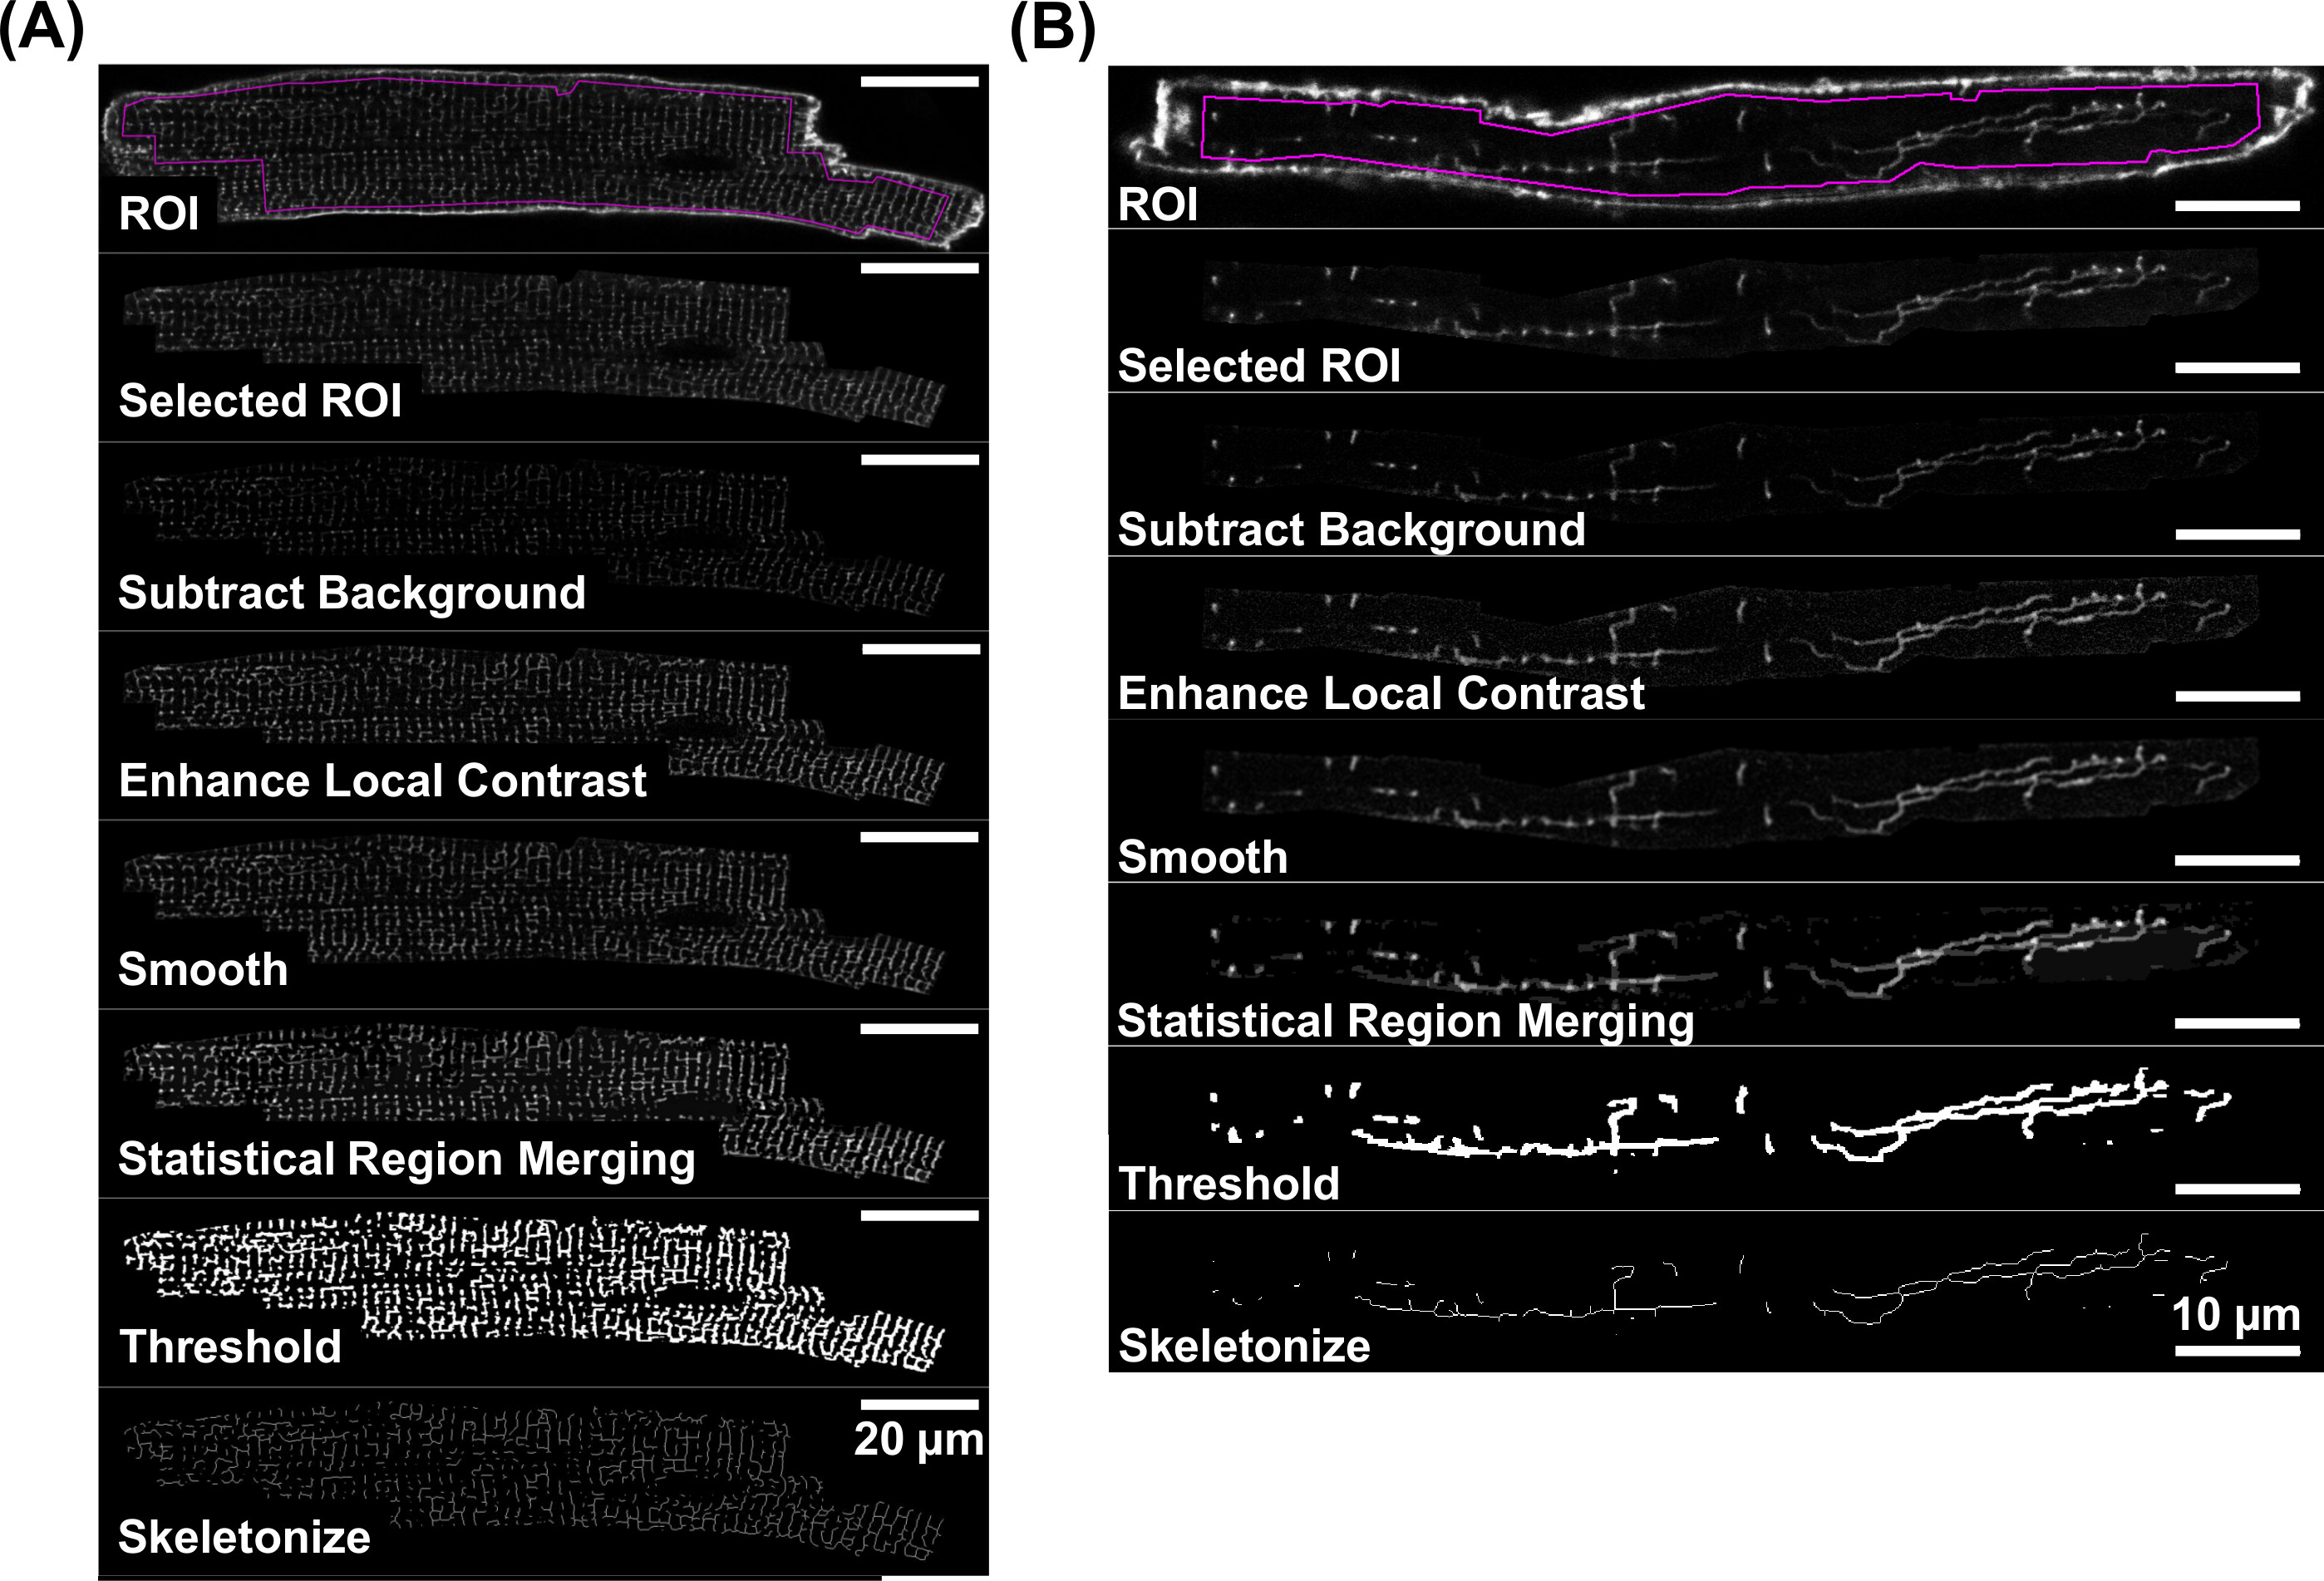
タッツ·ネットワークの骨格化イメージにつながる。図5.Workflow蛍光タッツ画像の細線化のための画像処理ステップが個別のステップバイステップの画像の例により、両方のジ- 8 - ANEPPSのために表現されるには、VM(A)と、AM染色(B)。個別の画像処理ステップについては、第4章を参照してください。スケールバーの違いに注意してください:20μmの(A)および10μM(B)を この図の拡大版をご覧になるにはこちらをクリックしてください。
4.5節で説明したように、画像処理中の重要なステップは、データ値化のための適切なしきい値を決定する。6。結果のバイナリイメージはタッツネットワークからの唯一の真の膜シグナルではなく、バックグラウンド信号ノイズから誤った閾値処理によって導出偽構造体を含める必要があります。しかし、それは閾値が真タッツ成分が誤って画像解析の間に失われないようにすべての真タッツ構造を検出するのに十分低いことが重要である。 図6は、データの二値化の際に閾値を選択するための方法のプロセスを示す。 40の閾値は、図6(b)に示すように6Cは個別にすべての真タッツ構造を検出することが適切であると思わながら黄色の三角形によって示されるように、より高い閾値を選択すると、 例えば 、 図6(a)に示すように60は暗い軸方向の膜構造(のAT)を検出しない。で示されるように対照的に、 図6Dに示すように20、 例えば、低い閾値を選択すると、偽陽性タッツ構造としてバックグラウンドノイズの誤検出につながる黄色の三角形。
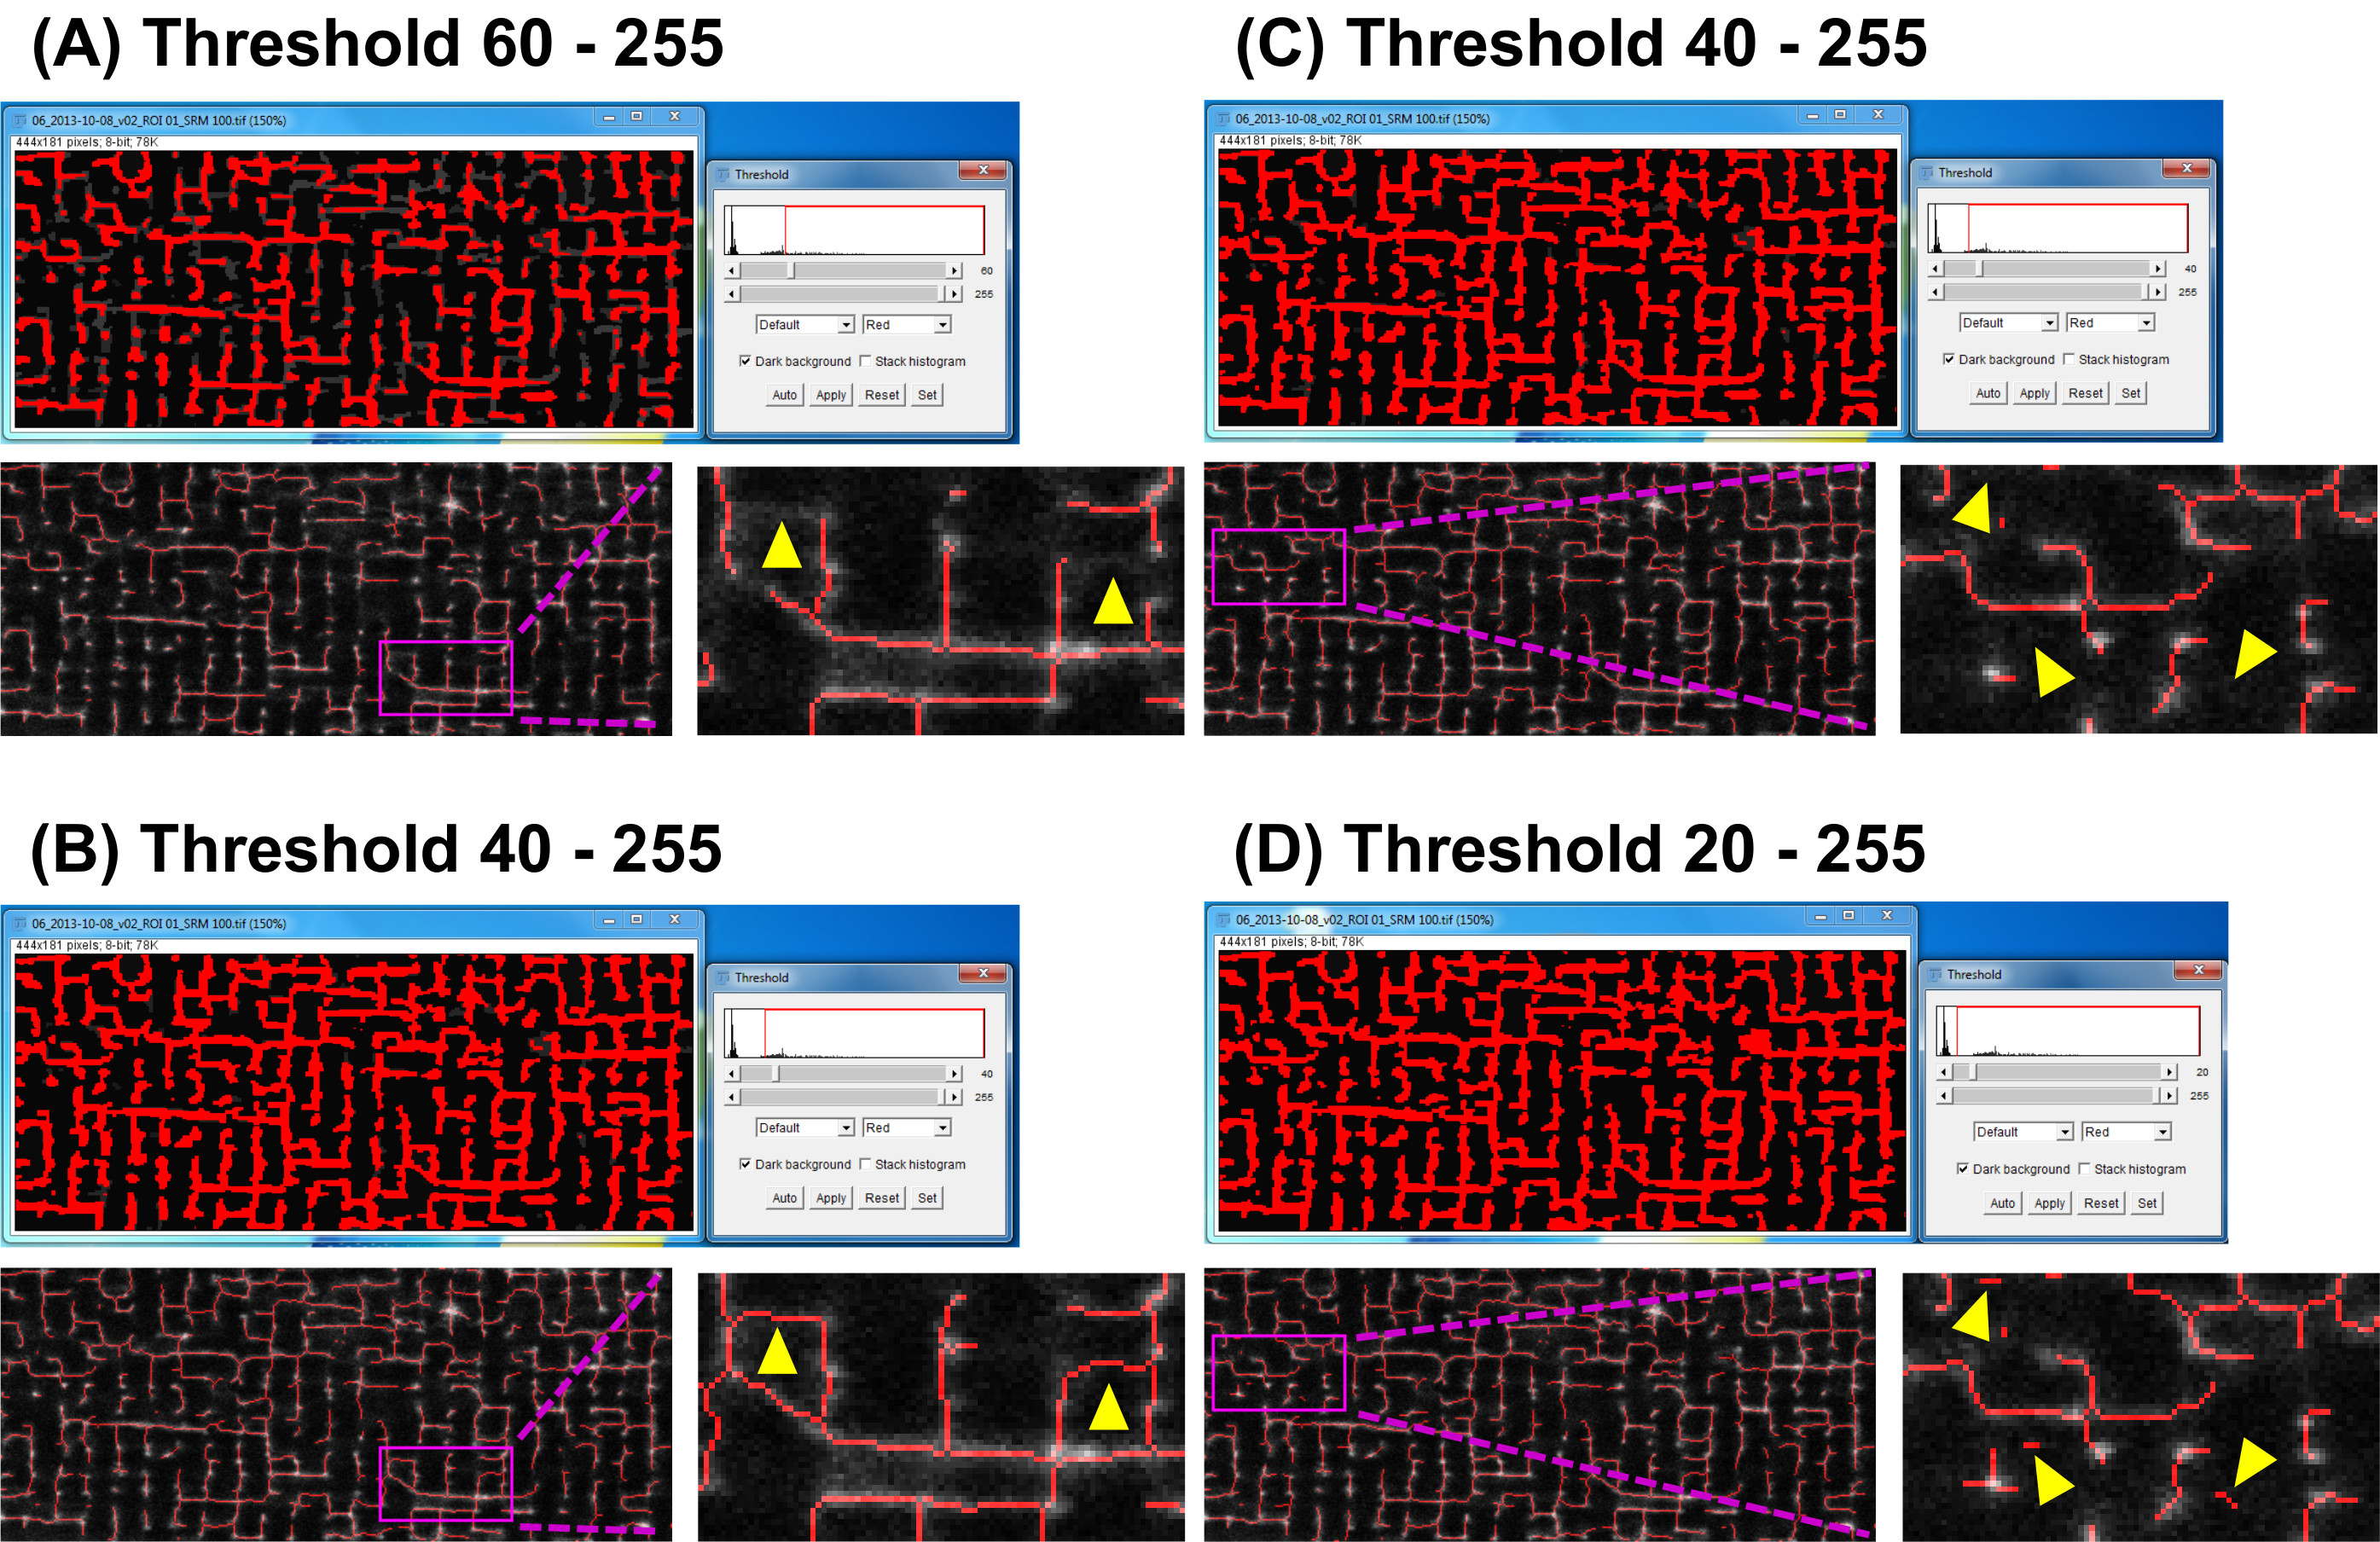
図6.Howはタッツ画像データのスケルトンの間に信号閾値を決定することができる。例としては、それぞれが(ステップ4.5で説明した)データ値化中に異なるしきい値のために生成タッツスケルトンを示しています。アッパーの画像:フィジーを使用して、しきい値の調整を示している。下段の画像:示されているように対応する入力蛍光画像、拡大領域をもつスケルトン画像の重ね合わせ。高閾値などに適用される60(A)は 、拡大されたセクション内の黄色の三角形で示したように、すべての真のタッツ構造を検出するために、明らかに適切ではありません。 (B)および(C)において適用40の閾値が低閾値などのに対し、バックグラウンドノイズを検出しないすべて正しくタッツ構造を検出し、、(D)20が誤ってタッツ構造としてバックグラウンドノイズを識別し、それによって非既存の膜構造の偽陽性信号を生成する。偽陽性シグナルが拡大挿入図に黄色の三角形で示されます。 この図の拡大版をご覧になるにはこちらをクリックしてください。
「スケルトン(2D / 3D)を分析し、「プラグインはスケルトンタッツ構造の詳細な分析をサポートしています。 #branches、#junctions、#エンドポイントのボクセル、平均枝長、#tripleポイント、#quadrupleポイント、最大分岐長:一度実行されると、プラグインは以下のスケルトンパラメータを使用してデータテーブルを作成します。すべての可能な出力パラメータの詳細についてはtohttp参照してください。//fiji.sc/wiki/index.php/AnalyzeSkeletonと関連する記事29-31。典型的なデータテーブル出力は、 図7Aに示されている。
ROIごとの合計のスケルトンの長さ:
Σ(#branches xの平均枝長)= 5155ピクセル= 515.5であっ
骨格の全長は画像領域に正規化することができる。例えば図7に0.64μm/μm2での正規化されたスケルトンの長さを示し、以下に示すように、すべての接合部の合計が計算されます。
正規化されたスケルトンの長さ:
515.5ミクロン/ 803.6μm2で= 0.64ミクロン/μm2で
接合部の正規化数:
155ジャンクション/ 803.6μm2で/μm2で
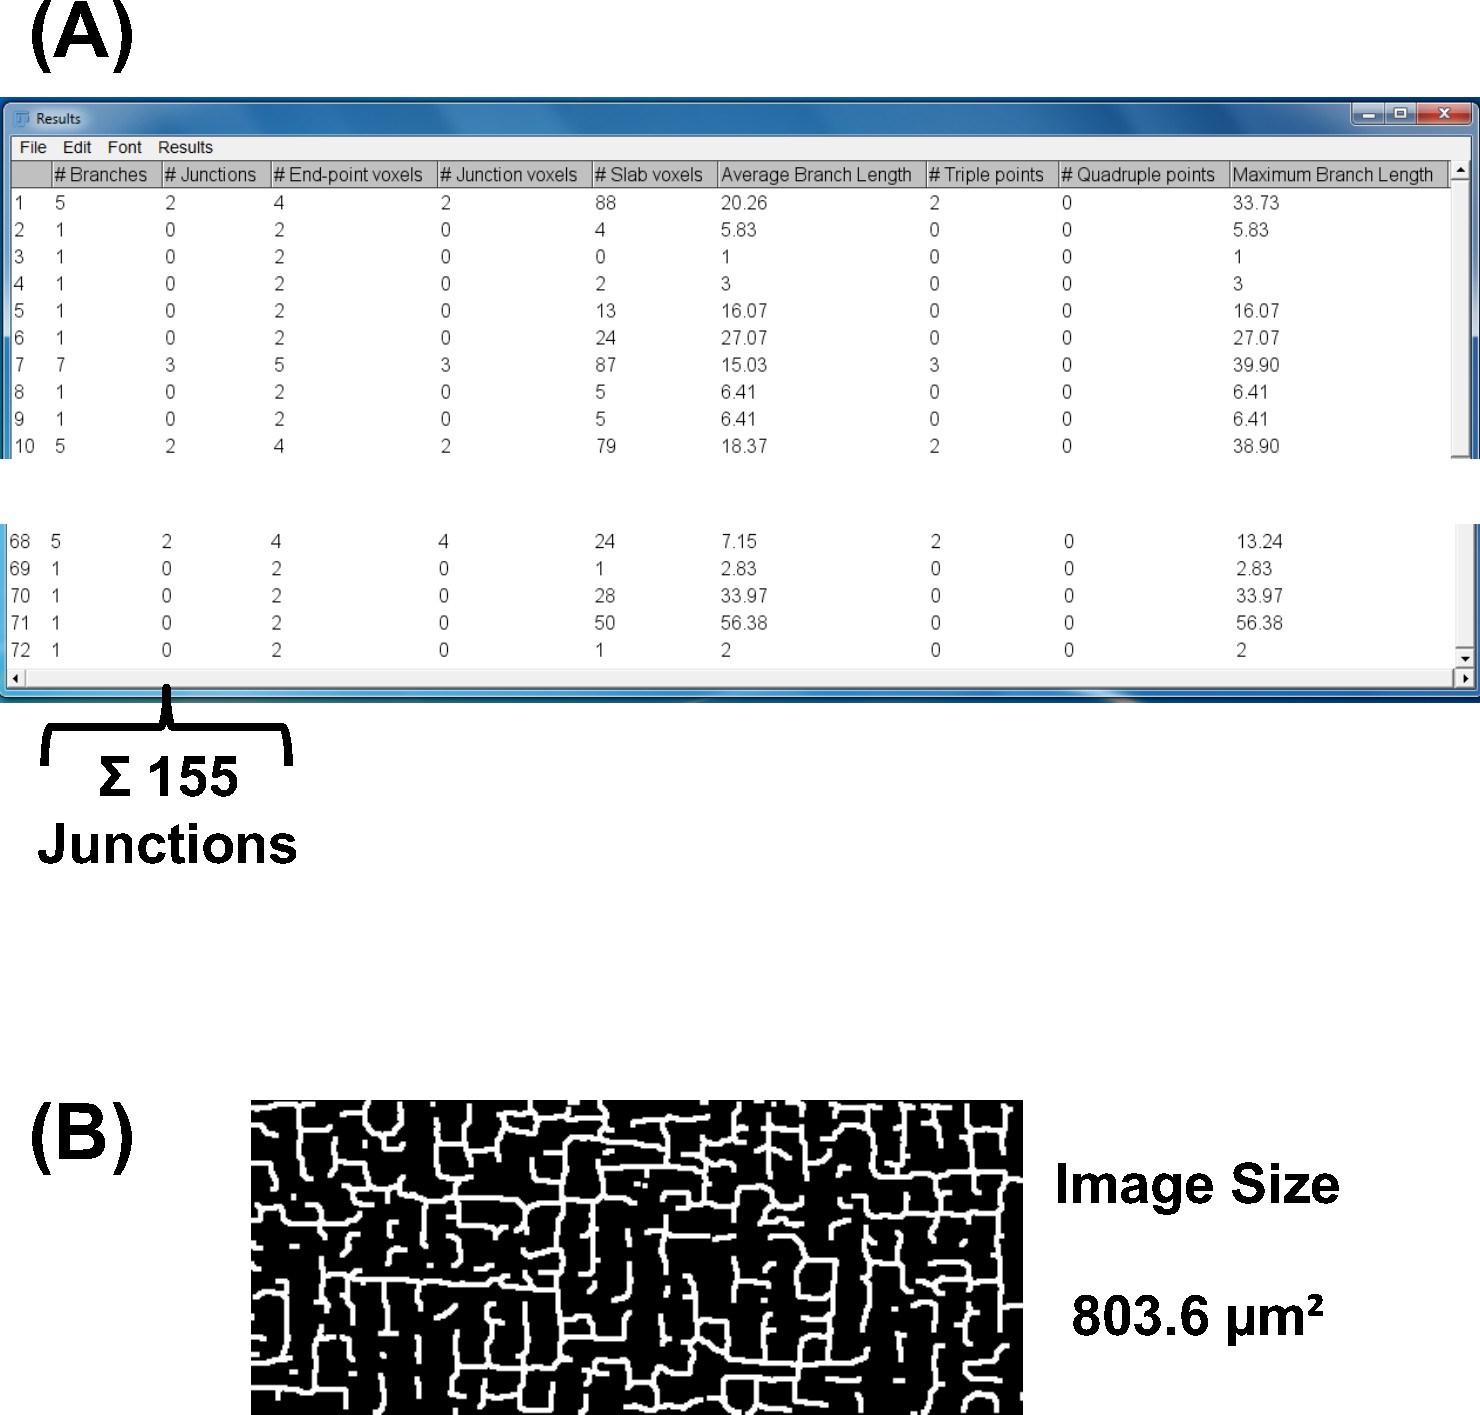
スケルトン画像から7.Automatedデータ出力図。 (A)(B)に示すスケルトン画像から「スケルトンの分析(2D / 3D) 'プラグインによって生成された典型的なデータのスプレッドシート。可能な出力パラメータの詳細については、を参照してくださいhttp://fiji.sc/wiki/index.php/AnalyzeSkeleton 。 この図の拡大版をご覧になるにはこちらをクリックしてください。
図5に4.5で説明したと示した画像処理ステップは補足コードファイルとして提供フィジーマクロを使用して自動化することができます4.3および4.4を介して生成される入力画像のスタックを完了するために適用することができる。マクロは、マクロコマンドを使用して自動分析のための独立した各処置群について、各入力画像スタックを調製することによって、例えば、完全なデータセット群の分析に有利であり得る。
概説ソフトウェア戦略は、さらにすべてのコンポーネントのタッツネットワーク方位解析を可能にします。このために、すべてのタッツコンポーネント方位の方位分布を示すヒストグラムデータを生成する「方向性」のプラグイン(http://fiji.sc/Directionality)29,31を使用しています。入力画像のx軸は、所定のAMまたはVM細胞の主軸に対応する場合、横方向成分は90 - で表されるのに対し、軸方向(長手方向)タッツ成分は、0°ビンによって表される#176;ビン。 図8は、例示的な方向性は、AM(8B)のセルに対するVM(8A)のためのスケルトンタッツ画像からヒストグラムを示しています。典型的なVMの方向ヒストグラムが0°と90°の二重ピーク分布を示しているが、AMヒストグラムは0°で単一の支配的なピークを示す。これらの例は、AMの中タッツ成分は、主に、細管で構成することができるのに対し、VMの個別タッツ成分がほぼ等しく、T-細管およびA-細管間に分布していることが以前の観察と一致している。
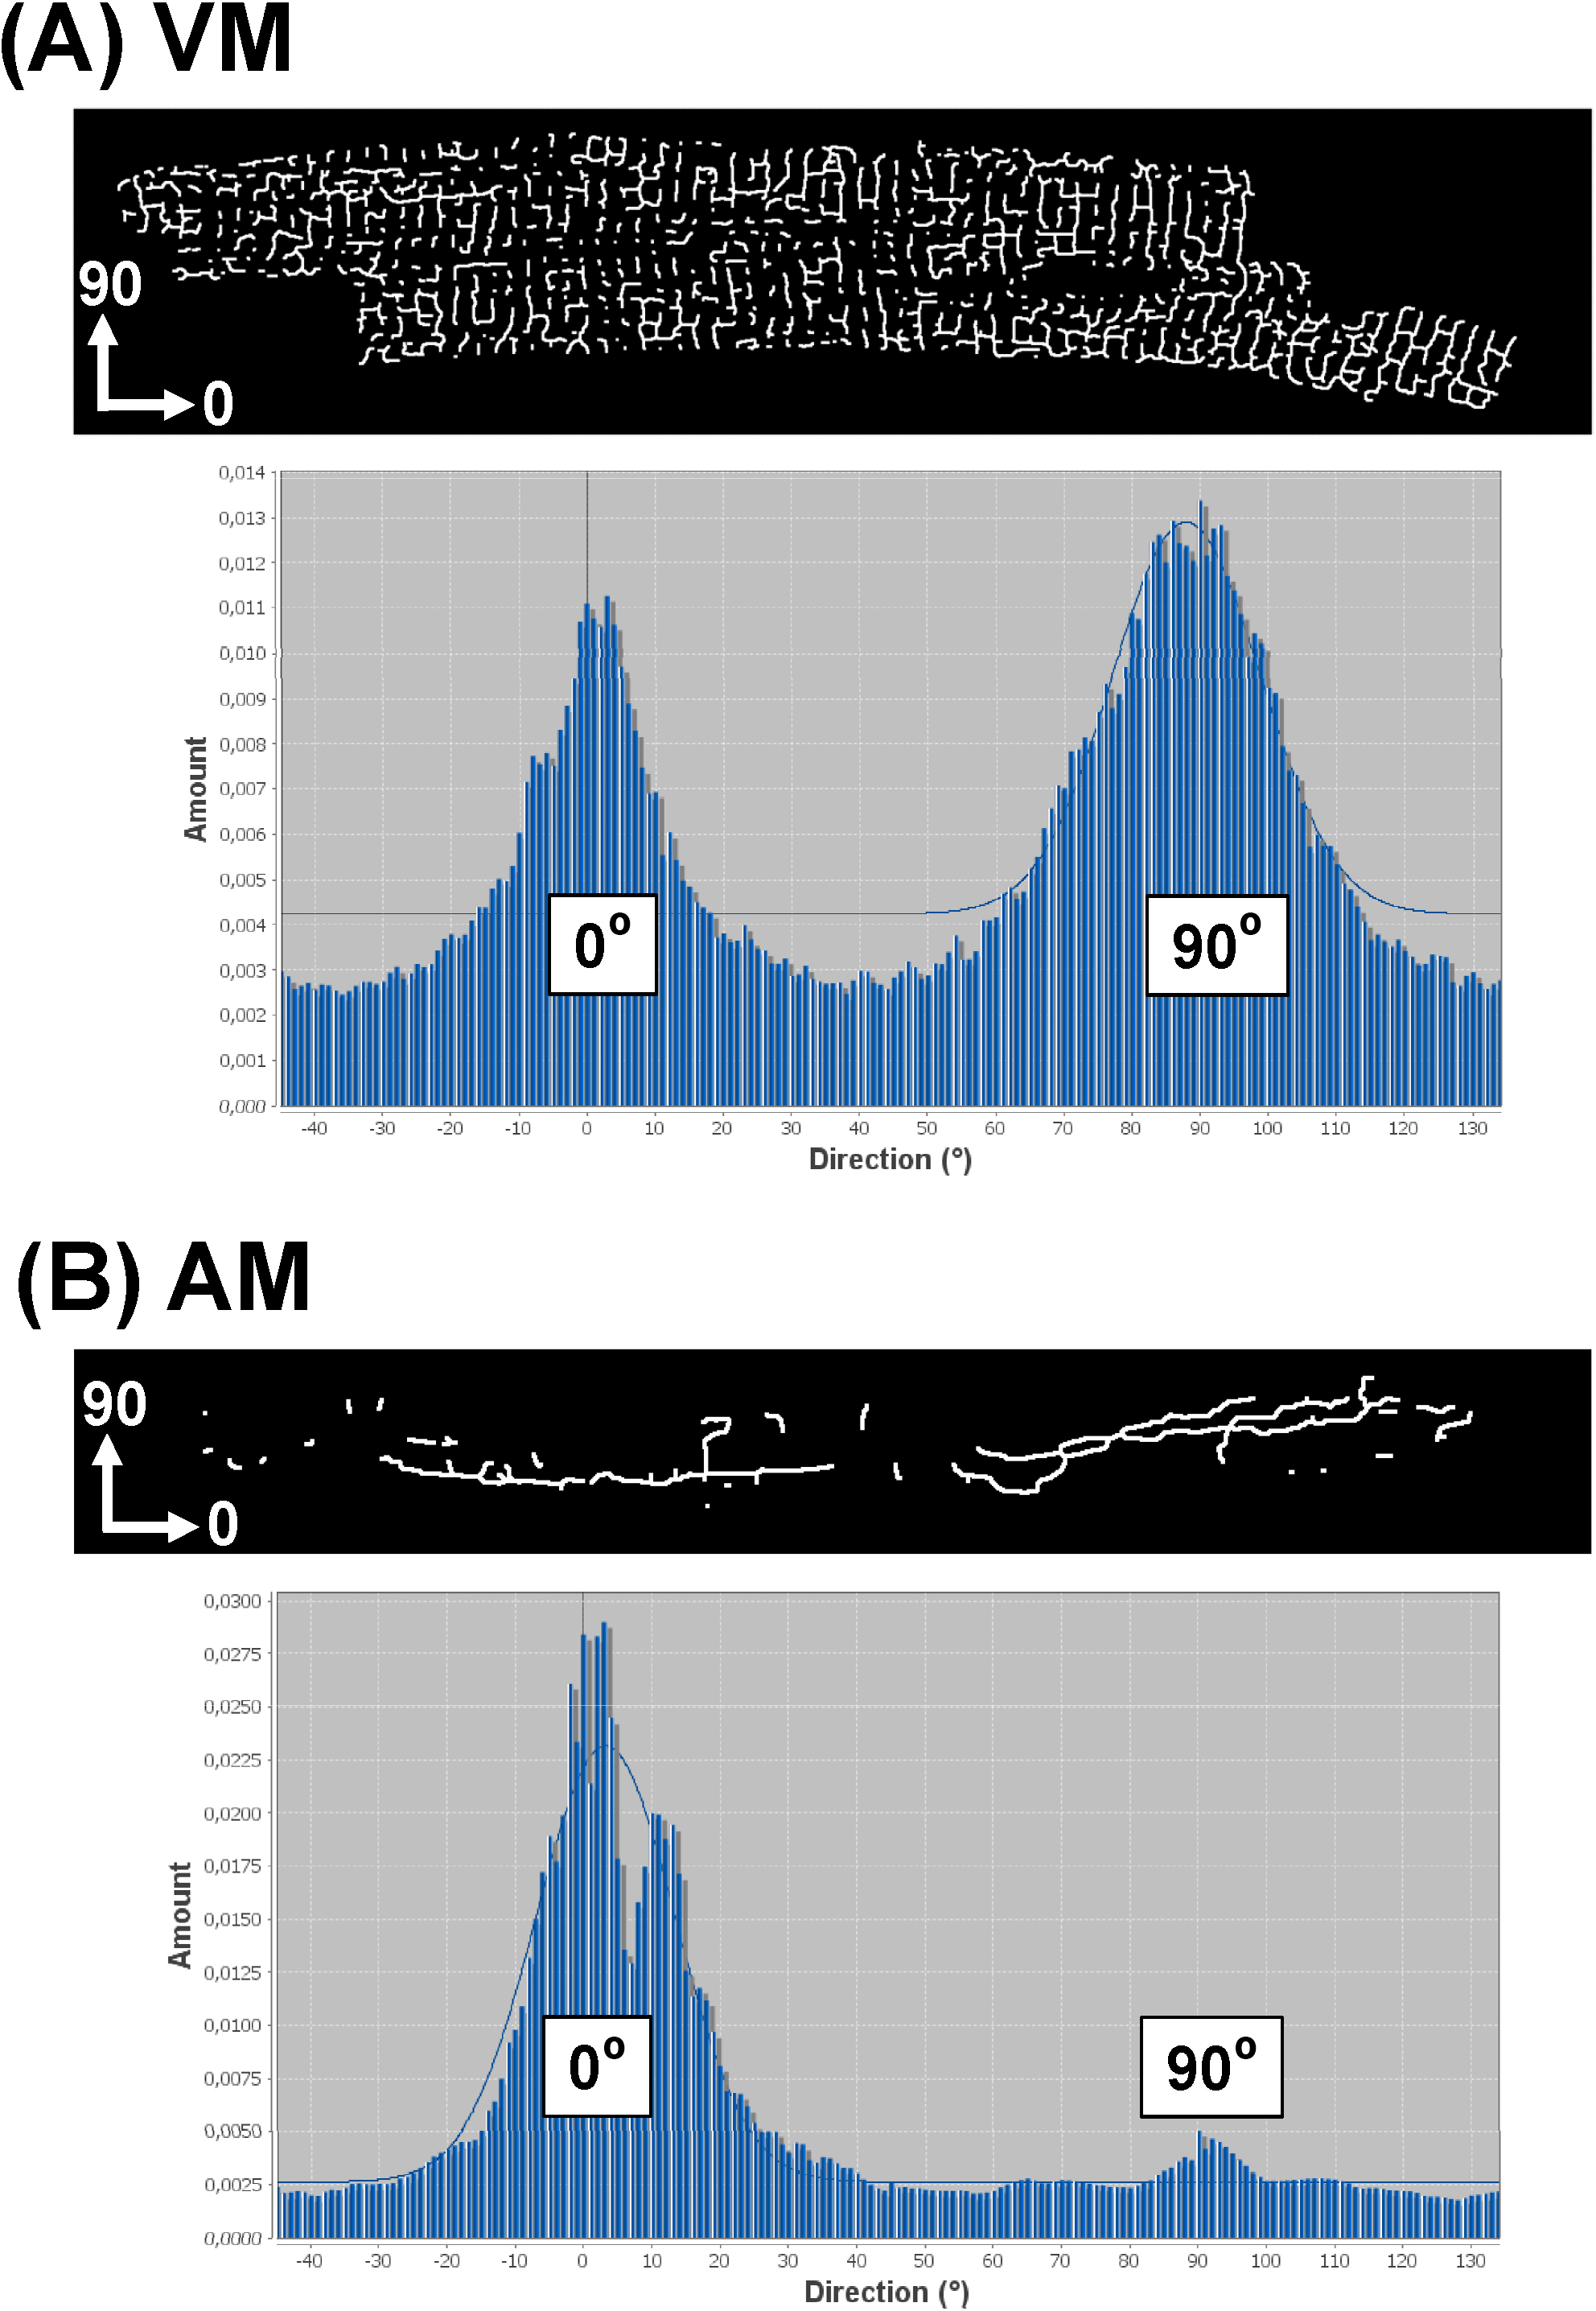
個別のセルのタッツ·ネットワークから図8.Representative指向ヒストグラム。方向性ヒストグラムをAM(Bに対して個別のVM(A)の骨格化画像から生成された強い>)タッツ·ネットワーク。 T-細管成分は90°ビンによって表され、一方、解析された画像のx軸は、図示のように、筋細胞のメイン(縦)軸に対応すると仮定すると、A-細管のコンポーネントは、0°ビンによって表される。ガウスは、バックグラウンドのグラフのような主要なヒストグラムpeakasshownにフィットします。 この図の拡大版をご覧になるにはこちらをクリックしてください。
| 灌流液 | mMの |
| NaClを | 120.4 |
| 塩化カリウム | 14.7 |
| KH 2 PO 4 | 0.6 |
| のNa 2 HPO 4 | 0.6 |
| 硫酸マグネシウム | 1.2 |
| HEPES | 10 |
| 炭酸水素ナトリウム | 4.6 |
| タウリン | 30 |
| 2,3-ブタンジオン - モノオキシム | 10 |
| グルコース | 5.5 |
| pHは7.4 | |
| 消化緩衝液 | mMの(指定されていない場合) |
| NaClを | 120.4 |
| 塩化カリウム | 14.7 |
| KH 2 PO 4 | 0.6 |
| のNa 2 HPO 4 | 0.6 |
| 硫酸マグネシウム | 1.2 |
| HEPES | 10 |
| 炭酸水素ナトリウム | 4.6 |
| タウリン | 30 |
| 2,3-ブタンジオン - モノオキシム | 10 |
| グルコース | 5.5 |
| コラゲナーゼII型 | 600単位/ ml |
| pHは7.4 | |
| 停止緩衝液 | mMの(指定されていない場合) |
| NaClを | 120.4 |
| 塩化カリウム | 14.7 |
| KH 2 PO 4 | 0.6 |
| のNa 2 HPO 4 | 0.6 |
| 硫酸マグネシウム | 1.2 |
| HEPES | 10 |
| 炭酸水素ナトリウム | 4.6 |
| タウリン | 30 |
| 2,3-ブタンジオン - モノオキシム | 10 |
| グルコース | 5.5 |
| 塩化カルシウム | 0.0125 |
| ウシ胎児血清 | 10% |
| pHは7.4 | |
表1.Buffer solutイオンは、細胞単離およびイメージングのための3つの異なる生理学的緩衝液の内容が要約されている。
ディスカッション
心筋細胞を単離し、何十年も32のために研究されてきたが、最近のレビューは、一貫した高品質の筋細胞単離が27厳しい状況と結論付けた。これは、プライマリ心筋細胞の単離のための比較的複雑なプロトコル向かい合っ共通の標準的なアプローチの欠如、共有メタデータ、および透明セルの品質のドキュメントを反映している。細胞単離プロトコルは、通常、個別のグループによってカスタマイズされて、細胞は分離株の、変数結果をもたらす個別のモデルの設定( 例えば 、種、年齢、共存する心臓の状態)に依存し、通常、特定の実験条件に合わせて調整されています。ここで紹介する定量的タッツ膜研究やプロトコルの文脈の中で、品質評価およびドキュメントの基本的なレベルは、代謝および分離プロトコルに依存した変化を起こしやすい個別の細胞膜構造の共焦点または超解像顕微鏡に関するもので、両方AMまたはVM内。重要なことは、細胞の単離物の高収量が健康無傷の心筋細胞を提案しても、研究者は、文書化し、批判的に起因する、異なるタイプに固有の変更に対する単離法への非特異的な損傷に対する表面とタッツ膜の完全性の形態学的基準に照らして慎重にそれぞれの個別のセルを判断する必要があります対照条件と比較して介入。心臓細胞単離の間の重要な変数は、指定されたコラゲナーゼのロットの特定の活動である。コラゲナーゼの新しいロットを選択するには、いくつかのコラゲナーゼの試料の酵素活性は、心筋細胞の収量と品質を評価し、製造者の指示に従ってによってお互いにテストする必要があります。理想的には、コラゲナーゼの新しいロットが前の正常に使用ロットに似コラゲナーゼ活性と同一視されている(可能な酵素活性の拡張評価のための材料および方法表中の「コラゲナーゼロット選択ツール」を参照してください)。 T一緒aken、タッツ膜の可視化の定量的アプローチは、細胞単離の品質と、その逆の、単離手順の重要なレビューと修正をトリガーするタッツ顕微鏡によって文書化されているように非特異的膜損傷につながる心臓細胞単離に決定的に依存している。細胞単離の品質とタッツ膜の可視化と定量化は本質的にリンクされているので、この記事で説明したプロトコルは、継続的な戦略として、すべての主要な側面をカバーしています。
新たな課題と心臓の研究の共通の課題、細胞の損傷および/ または細胞の損失心筋梗塞9以下、代謝などの介入を損なうことに起因し発生し、まだ細胞単離の間見過ごされて空気塞栓以下、潜在的な偶発的な損傷などに対して判断する必要がある。病気の心臓から心筋細胞の単離は、追加、有意な細胞の損失につながると細胞収量を減少させたことがあります。したがって、comparは細胞の単離とカウントを一貫して標準化されたプロトコルを介して印加された場合の制御と疾患の心の間で分離された完全な細胞の総数のISONは、意味のあることができます。したがって、可能な限り最高の筋細胞単離の品質を反映した適切な対照群を介して、細胞の完全性を判断することが重要である。重要なことは、誤って単離手順によって損傷を受けた筋細胞に対する罹患対個体の細胞質および健康の生細胞の顕微鏡検査は、有意にタッツ膜ネットワークの分析に影響を与え得る。したがって、ここで紹介するプロトコルは、細胞単離と無傷の膜の生細胞顕微鏡検査の際に生理的な膜成分の整合性と安定性を重視しています。ワークフロー全体は、これらは、membran破砕膜細管状分離依存性膜のアーティファクトを示すことになることから、達成し、損傷した細胞を排除しながら、無傷タッツ膜成分を維持するために継続的な戦略として設計されていますEブレブ、および変更されたタッツネットワーク誤って制御条件の下で、さらなる定量分析を損なう。その逆に、同じ戦略はタッツ膜の変化との真の疾患細胞に対する真の健康な間で意味のある比較対照に決定的に依存しタッツ膜を、破壊する可能性を秘めた介入研究のために重要である。
さらに、当社は、AM細胞の技術的にはるかに困難な分離を実現するための手順に対応しています。進歩と改良されたプロトコルにもかかわらず、それがVMとのAM用としても信頼性の低い高品質の細胞単離を再現するのは簡単ではないことを強調することが重要である。これは、VM細胞の損傷の軽度の度合いが比較的高い細胞に細胞懸濁液中のあまり明らかであるかもしれないのに対し、細胞単離の間に、小さなエラーや変動が午前細胞単離の完全な故障につながる可能性があり、AM細胞の全体的に低い収量に起因している番号がAMと比較。 AM細胞は、cになる場合がありますのでステップ4.3の下で概説したように単離した後urved、いくつかのROIを通じて分析が有利であり得る。細胞単離ステップの詳細な手順に従うが、私たちは直接、内在性膜染色および共焦点またはVMとのAM用の両方タッツネットワークのSTEDの超解像イメージングのためのプロトコルを提供する。これらのプロトコルは、以前に確立されたパラメーターによってタッツ膜の選択成分の定量分析と分化の両方を可能にする。仮想マシンと比較すると、3次元組織とのAM心房タッツ·ネットワークの機能的な振る舞いは、現在、あまり理解されている。
生きた細胞の画像タッツ膜への手続きは、(3.1〜3.7ステップ)、市販の共焦点(材料/機器の表)と、カスタムメイドのSTED蛍光顕微鏡9を用いて開発された。蛍光画像生成および定量タッツ分析のための顕微鏡の設定を最適化するために、以下の点は、一般的な重要なものである:
- 客観的な
タッツ膜構造、細胞内の深いいくつかのマイクロメーターを中心に目的は、最高の画質を提供し、経験的にテストの細部を解決するために。特定の共焦点顕微鏡は、ここで使用される63X 1.4 NA油対物レンズとは対照的に、水またはグリセロール目的に良好に機能することができる。 100X倍率に目的ナノメートル分解能34小さな視野のトレードオフ、超解像STED顕微鏡に使用されます。 - 励起とゲイン
励起パワーと検出器利得の最適な設定は、顕微鏡の光路、レーザ性能、およびサンプルの性質に依存する。理想的には、レーザパワーと利得検出器の全範囲を利用する、まだ画像の飽和を回避するように調整される。商業用顕微鏡のソフトウェアパッケージは、通常、ダイナミックレンジの下限と上限を視覚化ルックアップテーブルを提供する。また、可能な限り低いLを採用する色素漂白を最小限にするためにまだ十分な構造タッツ膜の詳細を提供ASERパワー。また、励起パワーは、筋細胞拘縮や死に至る累積光損傷を避けるために十分に低くなければならない。 - 画素サイズ
ナイキストサンプリング、与えられた設定を使用して達成され、約半分の解像度と互換性のピクセルサイズを使用してください。共焦点イメージングのためには100nm×100程度の画素サイズはまた、漂白が制限され、互換性がある。超解像顕微鏡観察のために有意に小さい画素サイズは、STED顕微鏡9のために、例えば 、20ナノメートル×20程度使用される。 - 休止時間
共焦点顕微鏡は、平均化機能を提供する。一般に、シグナル平均化例と組み合わせて漂白を避けるために、可能な限り最短の画素滞留時間を使用して、ライン平均≥8は、信号対雑音比を改善する。 - メタデータを介して適用顕微鏡の設定を文書化
にどのように設定したらタッツ膜構造の画像の詳細は、特定の焦点顕微鏡上で安全に最適化されたおよび/または設定(プロトコルメタデータ)を文書化した。同じ目的、励起パワー、ゲイン、画素サイズ、画素滞留時間、および平均化機能を有する細胞の(または間)基(複数)内のすべての画像を取得する。イコール撮影条件は、細胞の(または間)基(複数)内の直接比較および定量を可能にします。 - 一般的なガイダンスおよび共焦点顕微鏡の原理及び用途についての詳細は生物共焦点顕微鏡(ポウリーJB、第3版 、2006年、シュプリンガー·サイエンス+ビジネスメディア、LLC)のハンドブックを参照してください。
ここで紹介する直接分析戦略、タッツ膜および疾患に関連する変化を記述する先の刊行物とは対照的に、フーリエTRANSFに基づく定量的な戦略16,17、または間接的な地域戦略としてT管密度の地域的集約読み出しを使用していたT管コンポーネント規則7を評価するために、横紋膜シグナルのormation分析。これとは対照的に、ここで説明する定量的なアプローチは、直接個別のタッツコンポーネントに関連して、膜ネットワークのプロパティと、細管の割合のような特定のコンポーネントを含む、多くの追加パラメータを提供します。さらに、タッツネットワーク密度は、ROI面積当たりの全体の抽出骨格の正規化された長さとして定量化することができる。 3個体の三重接合の数、連続的に接続された細管のコンポーネントはタッツ膜網の分岐の複雑さの尺度として用いることができる。当社は、最小のタッツのコンポーネントのいずれかの分析は染色手順に依存していることに注意してください。われわれの経験では、50μMのジ- 8 - ANEPPS液800μlの50,000 VMセル9を含む細胞ペレットに完全タッツ網を染色するのに十分である。しかし、細胞ペレットは心筋細胞のより低い番号が含まれている場合、強力な蛍光検出器が利用可能である場合、および最小の膜の詳細および量的変化に関心があるのではなく、全体のタッツのネットワーク配信の共焦点イメージング、低い染料濃度は、経験的なテストに基づいて使用してもよいかどう。最後に、記載の分析用に書かれたソフトウェアマクロは異なる治療群( 例えば 、薬物)、細胞型間の比較のために特に有用である大きなデータセットの分析を容易にする画像処理工程を自動化するために使用することができる( 例えば 、VMに対するAM )、および病態生理学的介入( 例えば 、心筋梗塞に対する偽)。
タッツネットワークの画像分析のために、原則として以下の一連のステップが適用される:1)ローリングボール背景減算(4.5.1)は、バックグラウンド強度の空間的変動を除去すること; 2)局所的コントラスト強調(4.5.2)。 3)画像の平滑化(4.5.3); 4)統計的な地域のマージ(4.5.4); 5)を定義する画像2値化のしきい値(4.5.6);および6)スケルトンデータの計算(4.5.8)。蛍光タッツ画像のスケルトン化の間の重要なステップは、 図6に示す画像2値化ある。関連する閾値化ステップは、最終的に真の膜構造は、バックグラウンドノイズからのエラーによって識別潜在的に誤った構造に対して、基礎となるタッツコンポーネントを表すために検出されるかを定義する。バイナリ画像解析のための正確な閾値の同定は、共焦点と超解像顕微鏡法のアプローチのための十分に高い信号対雑音(SNR)比それぞれに依存する真タッツ膜構造と対応すべきである。そのため、十分な画質が最初に確立し、続いて概説したように、明視野画像によるドキュメントを含む個別のセルの品質の重要な判断と組み合わせる必要がある。代替所与顕微鏡データ出力のための画像分割プロトコルを適応させるオプションおよび/または物理ポートiologicalの質問は、画像デコンボリューションとImageJのプラグインとして利用可能な「大津」や「磯·データ」のような他のしきい値処理手順を含む。かかわらず、最終的なセグメンテーション手順は、イメージオーバーレイによって抽出された生データとの比較必須の品質制御ステップを考える。要約すると、個別の単離された筋細胞、細胞内タッツ膜の十分な染色、蛍光イメージングのためのパラメータの最適化、及び抽出されたスケルトンデータのオーバレイ制御の形態学的および膜完全性は、全ての蛍光タッツ画像と定量結果の品質に貢献する。
マウスよりも大きな種は細胞単離のために使用される場合、プロトコルは、容易に適切に適合させることができる。次に大きな種については、ラットの心臓は鈍い14 Gカニューレ(外径2.1ミリメートル)でカニューレすることができ、/分8ミリリットルで灌流。大幅に古いまたは病気の心はさらに大きなカニューレのサイズが必要な場合があります。遺伝子で梅毒、心臓灌流は、リザーバと大動脈の間、または蠕動ポンプを用いて一定流量を1メートルの高さの水柱を使用して、一定の圧力、例えばいずれかによって行うことができる。コラゲナーゼ消化が最終的に一定流量プロトコルによってある程度制御される血管床を漏れるの過度の灌流速度につながる冠動脈抵抗血管が中断されているので、マウスやラット一定の流れのような小さな齧歯類の心からの細胞単離のために有利な場合がある。流速、正しい挿管の監視が変化した血管抵抗挙動による介入モデルに対するならびに細胞単離手順の訓練のために有利である優先度である場合とは対照的に、定圧潅流が有利である。
上記で概説したように、十分な細胞質は、内在性膜系の定量的研究のために非常に重要である。しかし、心臓の灌流およびコラゲナーゼ消化中に非常に多くの要因が、CRができるiticallyプロトコルの最適化やトラブル27を撮影中に過小評価してはならない細胞単離の品質に影響を与えます。特に、与えられたコラゲナーゼロットの活性は、研究の残りを通じて維持されるべき関心例えば 、心房又は単離条件を確立するために実験的な善意の研究の実行前に、心室の特定の組織のために決定されるべきである。また、灌流セットアップの水質、pH、温度、最適化、および洗浄は、汚染物質および塞栓から不注意による損傷のリスクを最小限にし、潜在的に追加の因子は、細胞単離の間に最適な恒常性の条件を確立するために監視されなければならない。 BDM(2,3 - ブタンジオン-モノオキシム)ミオシンの可逆的阻害剤のクロスブリッジATPアーゼは、一般に、細胞単離物の収率を増加させる心筋の弛緩を維持するために、組織の切開、消化中に使用される。それにもかかわらず、研究者らは、Tが必要ですO BDMはオフターゲット効果など 、一定の条件の下で33のNa + / Ca比2 +交換電流の阻害をもたらす非特異的ホスファターゼ活性を発揮し得ることに注意してください。いくつかの実験のために、心筋保護液、しかし、毒性、比較的高価であり、その他のオフターゲット効果を有することができるマイクロモル濃度でのミオシンに対して高い親和性を有する阻害剤としてブレビスタチンによってBDMを交換することが有利かもしれない。一休み健全な心筋細胞を、さらなる分析から除外すべき電気刺激およびそのような細胞の非存在下でのあらゆる収縮を示さないようにしてください。一方、生理的な細胞外Ca 2 +濃度における電気刺激に応答した心筋細胞の収縮と弛緩に、健康な対照に対する心臓疾患における機能性細胞質および/ または異常な挙動を評価するための追加対策として、通常の収縮挙動を確立するために使用することができ細胞。
要約すると、単一細胞の単離と、ここで説明定量的画像解析のためのプロトコルが正常にVM 9タッツ膜ネットワークの共焦点と超解像顕微鏡に適用し、AMれた細胞21だけでなく、微小管ネットワークの定量分析固定された心筋細胞(データは示さず)。プロトコルのこれらのおよび将来のアプリケーションは、ドメイン固有のシグナリングを、異なる発生段階のタッツ膜の特性評価や高度に局在化を発揮するタッツネットワークに連絡して、膜関連タンパク質または細胞小器官の構造の解析などの実験さまざまな質問のための道を開くことがありますAMおよびVM細胞内で機能します。
開示事項
著者らは、利益相反は存在しないと宣言します。
謝辞
この研究は、Deutsche Forschungsgemeinschaft SFB 1002 (S.E.L. のサブプロジェクト A05 と B05) と KFO 155 (S.E.L. のサブプロジェクト 4) を通じて支援を受け、E.W. を支援する S.E.L. へのハルバッハ財団賞、E.W. を支援する German Cardiac Society からの助成金、そしてメリーランド大学での訪問者として T.K. を支援する DAAD 交換プログラムを受けました。これらの結果につながる研究は、欧州共同体の第7次フレームワークプログラムFP7/2007-2013から助成金契約No.HEALTH-F2-2009-241526、EUTrigTreat(SELへ)。S.E.L.は、ドイツ心臓血管研究センター(DZHK)の主任研究者です。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Chemicals and Enzymes | |||
| 2,3-Butanedione monoxime | Sigma-Aldrich, Munich, Germany | B0753 | |
| ウシウシ血清 | Thermo Scientific, Schwerte, Germany | SH30073 | Triple 0.1 µm滅菌ろ過。 |
| CaCl2 | Sigma-Aldrich, Munich, Germany | 21115 | MQ水で1:10に希釈し、100 mM CaCl2 stock濃度を得る。 |
| コラゲナーゼII型 | Worthington via Cell Systems, Troisdorf, Germany | ご要望に応じて | 酵素活性は、個々のコラゲナーゼバッチに依存します。コラゲナーゼIIおよびその他の酵素活性(カゼインーゼ、クロストリパイン、トリプシン)は、「コラゲナーゼロット選択ツール」で評価できます。コラゲナーゼの新規ロットごとに、細胞の収量と品質を個別に測定します。 |
| グルコース | カール・ロート、カールスルーエ、ドイツ | HN06.1 | |
| ヘパリン | ・ロテックスメディカ、トリッタウ、ドイツ | PZN-03862340 | 0.9% NaCl で希釈し、腹部の皮膚に皮下注射しました。 |
| HEPES | Carl Roth, Karlsruhe, Germany | 9105.4 | |
| Forene 100% (V/V) | Abbott, Libertyville, IL, USA | B506 | 活性剤:イソフルラン、250 ml. 空気/酸素ディスペンサー器具で約2 Vol%を使用してください。 |
| KCl | Carl Roth, Karlsruhe, Germany | 6781.3 | |
| KH2PO4 | Carl Roth, Karlsruhe, Germany | 3904.2 | |
| Laminin (2 mg/ml) | BD Biosciences, Heidelberg, Germany | 354232 | ラミネート加工については、ステップ 2.1 で説明します。 |
| MgCl<サブ>2·6H2O | カール・ロス、カールスルーエ、ドイツ | 2189.2 | |
| MgSO4·7H2O | Carl Roth, Karlsruhe, Germany | 8283.2 | |
| Na2HPO4·2H2O | Carl Roth, Karlsruhe, Germany | 4984.2 | |
| NaHCO3 | Carl Roth, Karlsruhe, Germany | HN01.1 | |
| Taurin | Carl Roth, Karlsruhe, Germany | 4721.2 | |
| Dyes | |||
| Di-8-ANEPPS | Molecular Probes, Life Technologies, ダルムシュタット, ドイツ | D-3167 | DMSO |
| トリパンブルー | Sigma-Aldrich, Munich, Germany | T8154 | トリパンブルーは、チップカット1 mlプラスチックピペットで細胞懸濁液と1:1に穏やかに混合し、ノイバウアーサイトメーターで細胞をカウントします。 |
| Langendorff Perfusion Setup | |||
| >Circulation thermostat | Lauda, Lauda-Königshofen, Germany | Louch et al. (JMCC 2011)を参照されたい。灌流チューブのサーモスタットとバッファーを37°Cに加熱します。C使用の15分前。 | |
| VWR、ダルムシュタット、ドイツ | 224-2252 | フレキシブルシリコンチューブタイゴン | 定期的に交換する必要があります。 |
| サーモスタット用フレキシブルシリコンチューブタイゴン | VWR、ダルムシュタット、ドイツ | 228-4340 | |
| コイル周囲灌流チューブ | Rettberg、Göttingen、ドイツ | カスタムメイド | の加熱コイルとチューブは、使用後にMQ水で完全に洗浄する必要があります。洗剤は使用しないでください。ガラス部品は定期的に浴槽に入れる必要があります 10 mM NaOHで一晩。 |
| 蠕動ポンプ | Ismatec, Wertheim, Germany | ISM830 | |
| 三方停止コック Discofix C Luer Lock 10 cm | Braun, Melsungen, Switzerland | 16500C | |
| 三方停止コック Discofix 3SC | Braun, Melsungen, Switzerland | 4095146 | |
| Instruments | |||
| >42 mm ガラスカバースリップ | メンツェル・グラウムル;サーモサイエンティフィック経由、シュヴェルテ、ドイツ | ご要望に応じて | 厚さ 0.13-0.16 mm |
| カニューレ 21 G | Becton, Dickinson and Company, Franklin Lake, NY, USA | 304432 | ~5 mmの長さにカットし、サンドペーパーで粗くします。 |
| Neubauer cytometer 24 x 24 mm | Menzel Glä用カバースリップ;サーモサイエンティフィック経由のサービス、シュヴェルテ、ドイツ | リクエストに応じて | 0.38-0.42 mm 厚さ |
| グレーフェ鉗子、0.5 mm チップ、わずかなカーブ | ファイン サイエンス ツール、ハイデルベルク、ドイツ | 11151-10 | |
| LSM 710 NLO | カール ツァイス、イェーナ、ドイツ | 63X 1.4 NA オイル対物レンズ | |
| ノイバウアー改良型サイトメーター | Labor Optik、フリードリヒスドルフ、ドイツ | 1100000 | 計数手順:計数チャンバーに付属のサイトメーターとカバースリップを70%エタノールで拭きます。カバースリップを計数室にそっと押し込み、2つのガラス面が接触し、ニュートンのリングが観察されるようにします。続いて、10-20 & マイクロ;Lセル懸濁液は、毛細管現象によって空隙に吸い込まれるカバースリップの端に塗布することができます。100 nlを反映するサイトメーターグリッドの正方形を使用して、無傷の筋細胞と欠損筋細胞をカウントします。サイトメーターに設けられた2番目のグリッドでカウント手順を繰り返します。元の細胞懸濁液中の細胞の密度を計算するには、希釈とカウントのショートカットを考慮します。 |
| POC-R2イメージングチャンバー | Pecon、エルバッハ、ドイツ | 細胞懸濁液量:800 & マイクロ;l;所望のめっき密度: ~1,000 AM および ~10,000 VM | |
| スプリングはさみ、8 mm ブレード ストレート、鈍い | Fine Science Tools、ハイデルベルク、ドイツ | 15025-10 | |
| 学生 dumont #7 鉗子、inox | Fine Science Tools、ハイデルベルク、ドイツ | 91197-00 | |
| 学生用虹彩はさみ、湾曲、11.5 cm | Fine Science Tools、ハイデルベルク、ドイツ | 91461-11 | |
| 学生用虹彩はさみ、ストレート, 11.5 cm | Fine Science Tools, ハイデルベルク, ドイツ | 91460-11 | |
| Student surcigal はさみ, ストレート, シャープ, 12 cm | Fine Science Tools, ハイデルベルク, ドイツ | 91402-12 | |
| 組織鉗子, 1 x 2 歯, スリム, 10 cm | Fine Science Tools, ハイデルベルク, ドイツ | 11023-10 |
参考文献
- Prosser, B. L., Ward, C. W., Lederer, W. J. Subcellular Ca2+ signaling in the heart the role of ryanodine receptor sensitivity. J Gen Physiol. 136 (2), 135-142 (2010).
- Wehrens, X. H., Lehnart, S. E., Marks, A. R. Intracellular calcium release and cardiac disease. Annu Rev Physiol. 67, 69-98 (2005).
- Cheng, H., Cannell, M. B., Lederer, W. J. Propagation of excitation-contraction coupling into ventricular myocytes. Pflugers Arch. 428 (3-4), 415-417 (1994).
- Williams, G. S., Chikando, A. C., Tuan, H. T., Sobie, E. A., Lederer, W. J., Jafri, M. S. Dynamics of calcium sparks and calcium leak in the heart. Biophys J. 101 (6), 1287-1296 (2011).
- Sperelakis, N., Rubio, R. orderly lattice of axial tubules which interconnect adjacent transverse tubules in guinea-pig ventricular myocardium. J Mol Cell Cardiol. 2 (3), 211-220 (1971).
- Soeller, C., Cannell, M. B. of the transverse tubular system in living cardiac rat myocytes by 2-photon microscopy and digital image-processing techniques. Circ Res. 84 (3), 266-275 (1999).
- Song, L. S., et al. et al. ryanodine receptors in the failing heart. Proc Natl Acad Sci USA. 103 (11), 4305-4310 (2006).
- Oort, R. J., et al. Disrupted junctional membrane complexes and hyperactive ryanodine receptors after acute junctophilin knockdown in mice. Circulation. 123 (9), 979-988 (2011).
- Wagner, E., et al. Stimulated emission depletion live-cell super-resolution imaging shows proliferative remodeling of T-tubule membrane structures after myocardial infarction. Circ Res. 111 (4), 402-414 (2012).
- Asghari, P., Schulson, M., Scriven, D. R., Martens, G., Moore, E. D. Axial tubules of rat ventricular myocytes form multiple junctions with the sarcoplasmic reticulum. Biophys J. 96 (11), 4651-4660 (2009).
- Lukyanenko, V., Ziman, A., Lukyanenko, A., Salnikov, V., Lederer, W. J. Functional groups of ryanodine receptors in rat ventricular cells. J Physiol. 583 (Pt 1), 251-269 (2007).
- Shacklock, P. S., Wier, W. G., Balke, C. W. Local Ca2+ transients (Ca2+ sparks) originate at transverse tubules in rat heart cells. J Physiol. 487 (Pt 3), 601-608 (1995).
- Reynolds, J. O., et al. Junctophilin-2 is necessary for T-tubule maturation during mouse heart development. Cardiovasc Res. 100 (1), 44-53 (2013).
- Di Maio, A., Karko, K., Snopko, R. M., Mejia-Alvarez, R., Franzini-Armstrong, C. T-tubule formation in cardiac myocytes two possible mechanisms. J Muscle Res Cell Motil. 28 (4-5), 231-241 (2007).
- He, J., et al. Reduction in density of transverse tubules and L-type Ca(2+) channels in canine tachycardia-induced heart failure. Cardiovasc Res. 49 (2), 298-307 (2001).
- Heinzel, F. R., et al. Remodeling of T-tubules and reduced synchrony of Ca2+ release in myocytes from chronically ischemic myocardium. Circ Res. 102 (3), 338-346 (2008).
- Lyon, A. R., et al. Loss of T-tubules and other changes to surface topography in ventricular myocytes from failing human and rat heart. Proc Natl Acad Sci USA. 106 (16), 6854-6859 (2009).
- Crossman, D. J., Ruygrok, P. N., Soeller, C., Cannell, M. B. Changes in the organization of excitation-contraction coupling structures in failing human heart. PLoS One. 6 (3), e17901(2011).
- Kemi, O. J., et al. The effect of exercise training on transverse tubules in normal, remodeled, and reverse remodeled hearts. J Cell Physiol. 226 (9), 2235-2243 (2011).
- Sachse, F. B., et al. Subcellular structures and function of myocytes impaired during heart failure are restored by cardiac resynchronization therapy. Circ Res. 110 (4), 588-597 (2012).
- Arakel, E. C., et al. Tuning the electrical properties of the heart by differential trafficking of KATP ion channel complexes. J Cell Sciences. 127 (Pt 9), 2106-2119 (2014).
- Richards, M. A., et al. Transverse tubules are a common feature in large mammalian atrial myocytes including human. Am J Physiol Heart Circ Physiol. 301 (5), H1996-H2005 (2011).
- Trafford, A. W., Clarke, J. D., Richards, M. A., Eisner, D. A., Dibb, K. M. Calcium signalling microdomains and the t-tubular system in atrial mycoytes potential roles in cardiac disease and arrhythmias. Cardiovasc Res. 98 (2), 192-203 (2013).
- Greiser, M., Schotten, U. Dynamic remodeling of intracellular Ca2+ signaling during atrial fibrillation. J Mol Cell Cardiol. 58, 134-142 (2013).
- Voigt, N., Zhou, X. B., Dobrev, D. Isolation of human atrial myocytes for simultaneous measurements of Ca2+ transients and membrane currents. J Vis Exp. (77), 10-3791 (2013).
- Kaestner, L., et al. Isolation and genetic manipulation of adult cardiac myocytes for confocal imaging. J Vis Exp. (31), (2009).
- Louch, W. E., Sheehan, K. A., Wolska, B. M. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 51 (3), 288-298 (2011).
- King, N. M., et al. Mouse intact cardiac myocyte mechanics cross-bridge and titin-based stress in unactivated cells. J Gen Physiol. 137 (1), 81-91 (2011).
- Schindelin, J., et al. Fiji, an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., Fernandez-Gonzalez, R., Munoz-Barrutia, A., Ortiz-De-Solorzano, C. 3D reconstruction of histological sections Application to mammary gland tissue. Microsc Res Tech. 73 (11), 1019-1029 (2010).
- Liu, Z. Q. Scale space approach to directional analysis of images. Appl Opt. 30 (11), 1369-1373 (1991).
- Powell, T., Twist, V. W. A rapid technique for the isolation and purification of adult cardiac muscle cells having respiratory control and a tolerance to calcium. Biochem Biophys Res Commun. 72 (1), 327-333 (1976).
- Watanabe, Y., et al. Inhibitory effect of 2,3-butanedione monoxime (BDM) on Na(+)/Ca(2+) exchange current in guinea-pig cardiac ventricular myocytes. Br J Pharmacol. 132 (6), 1317-1325 (2001).
- Kohl, T., Westphal, V., Hell, S. W., Lehnart, S. E. Superresolution microscopy in heart - cardiac nanoscopy. J Mol Cell Cardiol. 58, 13-21 (2013).
再版と許可
