このプロトコルの目的は、人間の器官型の3D気管支および鼻組織モデルを、気液界面で主流のタバコの煙(CS)にさらすことです。次に、組織に対するCSの影響を、シトクロムP450活性アッセイ、繊毛拍動測定、およびシステム生物学的アプローチを使用して調査します。
この記事について
サマリー
要約
タバコの煙(CS)は肺の生物学に大きな影響を与え、慢性閉塞性肺疾患や肺癌などの肺疾患の発症を引き起こす可能性があります。疾患発症の根底にあるメカニズムを理解するためには、CS曝露が肺組織に直接及ぼす影響を調べることが重要になります。しかし、このアプローチは、肺組織のサンプリングが複雑で侵襲的であるため、疫学研究で実施することは困難です。あるいは、組織培養モデルにより、肺組織への曝露の影響の評価を容易にすることができます。この目的のために、正常なヒト気管支上皮(NHBE)細胞培養などの水中2D細胞培養が伝統的に使用されてきました。ただし、in vivo曝露状況と同様に、直接煙に曝露することはできません。最近開発された3D組織培養モデルは、気液界面(ALI)で培養できるため、in vivoの状況をよりよく反映できます。それらの基底面は培地に浸されています。一方、それらの頂端側は空気にさらされています。さらに、異なる種類の細胞を含む器官型組織培養物は、in vivoでの組織の生理機能をよりよく表しています。この研究では、in vitro曝露システムを利用して、ヒトの器官型気管支および鼻組織モデルを主流のCSに曝露することを実証します。毛様体拍動頻度とシトクロムP450s(CYP)1A1 / 1B1の活性を測定して、CSが組織に及ぼす機能的影響を評価しました。さらに、CSによる変化を分子レベルで調べるために、ばく露後の組織から遺伝子発現プロファイルを作製しました。CYP1A1/1B1活性のわずかな増加は、空気ばく露組織と比較して、CSばく露組織で観察されました。.ネットワークおよびトランスクリプトミクスに基づくシステムバイオロジーアプローチは、喫煙者から得られた気管支および鼻上皮細胞で観察されたものと同様のCS誘発性生体異物代謝の変化を実証するのに十分堅牢でした。
概要
肺は、汚染物質やタバコの煙(CS)の成分など、さまざまな毒物を含む可能性のある吸入空気に直接かつ常にさらされています。これらの毒物への曝露が呼吸器組織に与える影響を研究することは、in vivo 曝露に似た方法で行われた場合に最も有益です。従来の2D浸漬細胞培養(例:正常なヒト気管支上皮細胞(NHBE))と比較して、3D器官型組織モデルは、in vivoでのヒト気道上皮の形態学的、生理学的、および分子的側面をよりよく再現します1,2:3D組織モデルには、in vivoで観察された細胞タイプの多様性が含まれていますには、分化した上皮細胞、繊毛細胞および非繊毛細胞、杯細胞、および基底細胞が含まれます。それらは機能的なタイトジャンクションを持ち、粘液線毛表現型1-3を示します。さらに、培養物は、通気性のある多孔質膜上で、空気と液体の界面で増殖させることができ、頂端側でエアロゾルに直接さらすことができます(一方、基底側は培地に浸されます)3-5。Dvorakたちは、気管支組織モデルの遺伝子発現プロファイルが、ヒトの気管支ブラッシングから得られたものと類似していることを報告した3。さらに、Mathisらは、これらの組織モデルのCSに対する応答が、喫煙者から得られた気管支上皮細胞と非喫煙者から得られた細胞との間に観察された差と類似していることを示しました6。最後に、気管支組織モデルは最大数ヶ月間培養できるため4,5、試験項目の長期曝露の影響を調べるために使用できる可能性があります。
細胞毒性評価は、化学的損傷後に測定される、または特定の化合物または混合物の毒性を評価するための一般的なパラメータです。例えば、膜の完全性は発光アッセイによって測定することができ、細胞培養7に対する用量依存的な細胞傷害性効果の測定を可能にする。ただし、毒性の低い濃度での化合物の病態生理学的影響を評価するには、他のパラメーターを測定する必要があります。例えば、経上皮電気抵抗(TEER)アッセイを用いて決定された組織完全性は、タイトジャンクションの機能を確保し、上皮層8,9の破壊を監視する。毛様体拍動周波数により、呼吸器組織に対するCS関連の影響を測定することもできます。上気道と下気道に接する繊毛内層の正常な鼓動頻度は、気道感染症から保護するために重要です10。呼吸器上皮の繊毛円柱状上皮細胞の各々は、散在する杯細胞11によって放出された粘液中に閉じ込められた感染性病原体または吸入粒子状物質を排除するために、特定の頻度で200〜300本の繊毛が鼓動している。CSには、毛様体打診12を阻害する可能性のある化学物質が含まれており、気道の保護が低下します。この研究は、毛様体拍動が器官型組織モデルで測定できることを示しています。このアプローチにより、上皮細胞が器官型組織培養において正常な機能を示すかどうかの評価が可能になります。CSはまた、気道での生体異物代謝応答を活性化して、タバコの煙成分を代謝します13。組織モデルの第I相異種代謝酵素であるCYP1A1およびCYP1B1の活性を測定できます。さらに、以前に報告されたように、全体的な遺伝子発現は、器官型気管支組織モデル6,14,15で測定することができる。トランスクリプトームデータとネットワークベースのシステム生物学的アプローチを活用して、CSが生体異物代謝に与える影響を評価します15。
器官型の3D気管支および鼻組織モデルをin vitro曝露システムを使用して主流のCSに曝露し、この曝露に対する組織の反応を測定するために使用された方法論は、新鮮な空気への曝露(制御)と比較して詳細に説明されています。
プロトコル
器官組織気管支培養モデルの1。文化
注:再構成された組織モデルが使用する準備が整いましたインサートとして購入した。カープと同僚16による例で説明あるいは、培養物は、初代細胞から開発することができる。無菌包装における組織の受信に続いて、常に無菌状態で人間の器官の組織を処理します。
- ボンネットの下に新しい無菌の24ウェルプレートの各ウェルに予め温めた(37℃)アッセイ培地0.7 mlを加え。
- ボンネットの下に組織のパッケージを削除し、新たな準備24ウェルプレートに組織培養インサートを転送する(ステップ1.1に記載。上記)。
- 37℃(5%CO 2、湿度90%)インキュベーター中で組織を維持し、培養する。
- 2日ごとに培地を交換してください。
- 培地交換時には、彼らがcontaminatiであることを確認するために光学顕微鏡下の組織を調べる自由に媒体の漏れがないこと。
インビトロ露光装置を使用して2タバコ煙(CS)露出
- 暴露実験に先立って三日には、培養液の200μlの組織培養の頂端側を洗う。
- セクション3で説明したように露出の日に、繊毛運動の測定は、露光前に計画されている場合、繊毛運動測定のための組織を扱う。
- インビトロでの露光システム、37℃まで栽培ベースモジュールの気候室を予め温める。行当たりの培地17.5ミリリットルで栽培ベースモジュールを埋める。
- インキュベーターからの組織を除去し、in vitroでの露光システムの栽培ベースモジュールに培養プレートから組織培養インサートを転送するためにフードの下に置く。また、ガラス蓋で栽培ベースモジュールを覆う。
- in vitroでの露光systeの気候室に組織を転送主流のCSへの暴露のために、M。
- インビトロでの露光装置は、天秤が装備されている場合、セットアップ水晶振動子マイクロバランスを天秤ソフトウェアを使用して水晶に煙のリアルタイム粒子沈着を測定するために、露光を実行する前に。
- 希釈/配信システムの各行に接続されたマイクロバランスモジュール内の結晶を交換してください。
- 天秤ソフトウェアに天秤モジュールを接続します。ソフトウェアでゼロに測定のスケールを設定します。
- 実験手順に従って組織を露出( 例えば 、 図1のように)
注:前に露出、リファレンスタバコ(3R4F)は3402 17 ISO規格に従った22±1℃及び60±3%の相対湿度で制御された条件下で7と21日の間調整される。- たばこの煙を生成します( 例 。、3R4Fタバコから)30ポートカルーセル喫煙マッハを使用してINEカナダ保健省激しい政権によると:2秒以上の55ミリリットルのパフで約35ミリメートル、二回分8秒ポンプ排気時間、 すなわち 、標準バットの長さにタバコを吸う。
注意:必要に応じて投与量は毒性が強すぎるならないように、主流のCSを希釈。ここで報告された結果では、煙を16%(体積/体積)に希釈した。 - 対照試料(空気曝露)、60%の加湿された空気を使用してください。
- 6-7分間組織を露出インビトロ露光システムにおいて( すなわち 、1タバコまたは空気曝露)
- 1時間37℃(5%CO 2、湿度90%)に戻っインキュベーター内の組織を置く。
- 繰り返しますが2.7.3と2.7.4さらに3回繰り返します。
- たばこの煙を生成します( 例 。、3R4Fタバコから)30ポートカルーセル喫煙マッハを使用してINEカナダ保健省激しい政権によると:2秒以上の55ミリリットルのパフで約35ミリメートル、二回分8秒ポンプ排気時間、 すなわち 、標準バットの長さにタバコを吸う。
- 曝露実験の終わりに、天秤ソフトウェアを停止。ソフトウェアは、粒子の堆積のグラフィック表現と一緒にすべての測定を含むファイルを生成します。
- 栽培bから組織をバック転送培養プレートにアーゼモジュール。特定の露光後の時点で異なるエンドポイントの測定まで、37℃(5%CO 2、湿度90%)のインキュベーターには、組織を置きます。
繊毛運動の3測定
注:実験計画を1として(図1)、レコード毛様体は、露光前に直接曝露後に暴行。
- インキュベーターから組織培養プレートを取り外し、繊毛の鼓動を安定させるために室温で30分間ボンネットの下にそれらを残す。
- CiliaMetrixソフトウェアに接続し、光学顕微鏡下で組織を置きます。
- 繊毛運動の映画や(ヘルツ)周波数を記録します。 1分間の周波数ごとに3秒を測定します。
- バック37℃(5%CO 2、湿度90%)での培養器に組織を返します。
4.経上皮電気抵抗(TEER)測定
注:TEERの測定は、3日前に行われ、voltohmmeterに接続箸の電極(STX-2)を使用して、無菌状態の下でボンネットの下に暴露後48時間である。
- ヒト気管支組織の頂端表面に培養培地200μlを追加します。
- EVOMXマシンをオンにします。 70%エタノール溶液で電極を洗浄する。
- 培養液で電極を洗ってください。
- 組織に触れることなく、組織培養の頂端側培地中に電極を挿入することにより抵抗値(Ω)を測定します。
- 繰り返し手順4.4 5回五重測定値を取得する。
- 測定後、静かに吸引器を用いて組織培養の頂端側から培地を除去。
- 培養を37℃(5%CO 2、湿度90%)でのインキュベーターに組織培養物を返します。
5.チトクロームP450(CYP)1A1 / 1B1 ActiviTY
- 研究の開始前に、(製造業者の説明書に従って)、ルシフェリン検出試薬を含有する褐色瓶に適切な再構成バッファのボトルの全内容を転送することにより、ルシフェリン検出試薬を調製する。 1月の最大のために-20℃で2ミリリットルのストアアリコート。
- 48時間後に露光時間のために、37℃でのCS曝露後48時間組織をインキュベートする。
- RTにルシフェリン検出試薬を温め。
- 基礎的培養液中で(1:50に希釈)ルシフェリン-CEE基板との3時間またはO / Nのために組織の挿入をインキュベートする。
- RTで96ウェルの不透明な白色ルミノメータープレートに各組織インサートから転送培地を50μl。
- 発光反応を開始するために、各ウェルにルシフェリン検出試薬50μlのを追加します。
- 室温で20分間プレートをインキュベート。
- ルミノメーターを用いて発光をお読みください。
注:についてルミノメーターは、ガイドラインとしてウェルあたり0.25〜1秒の積分時間を使用しています。
6. RNA抽出。
- 3D器官組織インサートを収集する前に、ドライアイス、ブレード2)十分な量(3Dインサートごとに1つ)、3)冷PBS塩化カルシウム及び塩化マグネシウムなし、4)1つの25mlのガラスピペット、及び5)ボックス1を調製吸引用)滅菌ガラス針。
- ラベルチューブは固体細胞試料を均質化するためのセラミックビーズを充填し、Qiazolの700μlのを追加します。
- 吸引機の電源をオンにします。
- インキュベーターから3D器官組織インサートのプレートを収集します。
- 冷PBSでプレートに3回各挿入を洗ってください。洗浄の間に、ガラス針でPBSを吸引する。 3回目の洗浄後、PBSとカバープレートとの吸引は、挿入物の乾燥を防止する。
- プレートからの各挿入のために、membrまで(3D組織インサートが存在する)、インサート膜を切り出すANEは、ブレードを下に平らに。
- それを適切に標識された均質化チューブにブレードから(挿入膜と一緒に)組織を移し、チューブに蓋をネジ、それを振ると渦。
- -80℃のドライアイスや店舗でサンプルを凍結または抽出物にRNAを続ける。
注:前にRNAを抽出するために、無作為化設計(該当する場合)に応じて、すべてのチューブと列にラベルを付ける。製造業者の推奨に従って、すべての試薬を準備し、-80℃の冷凍庫からサンプルを取り出して、それらが完全に解凍されるまで氷上にそれらを解凍。
- 均質化
- 45秒間の6000 Hzの上の楽器を均質化するとグラインドサンプル。サンプルが適切に均質化していないし、室温で5分間のサンプルを残せば繰り返します。
- 10〜15秒のサンプルと渦に140μlのクロロホルムを追加します。
- 位相ロックチューブに均質化チューブから上清を移し、上振る1400 RPM、室温で2分間サーモ。
- さらに4℃で15分間、12000×gで室温で2分間、サンプルおよび遠心サンプルをインキュベートする。
- QIAcubeでRNA沈殿、洗浄、懸濁液および精製。
- 新しい2 mlチューブに上部の水相を転送します。
- メーカープロトコルシートに従って抽出ロボットにすべての必要な試薬をロードして、適切なプロトコルを選択し、溶出体積(30μl)を設定し、抽出ロボットを実行します。
- 実行が終了すると、ロータアダプタを削除し、さらなる分析のために、または長期保存のために-80℃で、4℃で直ちに溶出管を保持する。
- 単離されたRNAの品質管理
- 製造業者の説明書に従ってUVプレートリーダーを用いて、単離されたRNAの量を決定する。
- RNAの品質及びマイクロ流体ゲルベースのラボオンチップとUVプレートリーダーを用いてRNAの完全性を確認する、のAccメーカーの説明書をディング。
7.マイクロアレイワークフロー
注:以下に説明する処理は、RNAの調製物からの複合体の使用を開始するアフィメトリクス3 '遺伝子発現カートリッジ上でのハイブリダイゼーションのための標的の合成のために使用されているAffymetrix社のGeneChipハイスループット3'IVT Expressのキットのための方法に焦点を当て液体ハンドリングシステム( 例えば 、ピペッティング、分注、希釈、または統合)。
- 準備
- バッチ効果を回避するためにサンプルをランダム化。バッチで処理されたサンプルの数は1つの正の(市販のヒトユニバーサルリファレンスRNA)と負(RNaseを含まない水)バッチ当たりの制御を含む、1から96である。
- RNaseフリー水の3μlの全RNA 100ngのを使用して、ターゲット合成を開始します。 100ngの全RNAは、16時間のインキュベーション時間を使用する。
- RNA増幅
- Pを準備オリ-RNAスパイクインポリコントロール希釈バッファーを有するポリ-RNA株式の段階希釈による制御ソリューション:
- 希釈1の場合は、36μlの希釈緩衝液中2μlのポリA制御ストックを調製。
- 希釈2の場合は、希釈バッファーの98μlの希釈12μlのを準備します。
- 希釈3の場合は、希釈バッファーの196μlの希釈2の4μLを準備。
- 希釈4の場合は、希釈バッファーの180μlの希釈320μlのを準備します。
- 33.3 NG /μlの濃度を得るためにRNAseを含まない水にRNAを希釈します。
- 直接96ウェルプレート中の全RNAサンプルの3μlにポリA制御ソリューションの2を添加する。このステップは、液体ハンドリングシステムによって実行される。
- 液体ハンドリングシステムとターゲットの合成を準備する。ロボットにプレートを置きます。甲板上のすべての必要な試薬および実験器具を配置します。ロボットはappropriatを調製することにより手続きが開始されますeは、マスターミックスと自動化された遠隔制御のPCRブロックでサンプルをインキュベートする。
- 最初の品質管理チェック:増幅プロセスのコントロール
- aRNAの品質が許容可能である場合には、各サンプルにフラグメンテーション5X緩衝液8μlのを(このステップは、液体ハンドリングシステムによって実行される)を添加することにより断片化工程を行う。そうでなければ、再びRNAから始まる前の手順を実行します。 -20℃(または-70より長期の保存のため°C)で、直ちにまたはストア希釈されていないと断片化されたaRNA断片化されたaRNAを使用してください。
- 断片化の効率をチェックするためにマイクロ流体ゲルベースのシステム上のプレートと転送1μlのランダムに12のサンプルをピックアップして第二の品質管理分析を実行します。
- Pを準備オリ-RNAスパイクインポリコントロール希釈バッファーを有するポリ-RNA株式の段階希釈による制御ソリューション:
- ハイブリダイゼーション法
- チップバーコードをスキャンし、指示に従って、メーカーのソフトウェアで、各サンプルを登録する。
- などのハイブリダイゼーションミックスを調製単一反応のために、以下の断片化および標識aRNAを33μlにそれを追加します。コントロールオリゴヌクレオチドB2(3nMの)の4.2μL、20倍の真核生物のハイブリダイゼーションコントロールの12.5μlを、100%DMSO25μlの、2倍のハイブリダイゼーション緩衝液125μlのと216.7μlの最終容量のためのH 2 O50μlの
注:ハイブリダイズし、洗浄し、サンプルを処理する前に、正と負の対照をスキャンします。 - ハイウォッシュ&ステインキットに含まれるプレハイブリダイゼーション混合物200μlの持つ配列を予め湿ら。
- オーブン45℃に設定し、ハイブリダイゼーションにおけるチップと10分間60 RPMを置きます。
- 一方で、5分間99℃でPCRブロック中板(最終カクテルハイブリダイゼーション混合物を含む)を変性させ、5分間45℃。
- 配列からプレハイブリダイゼーション混合物を除去し、ハイブリダイゼーションカクテルターゲット(チップごとに1つのサンプル)を200μlと交換してください。
- ハイブリに配列を配置dizationオーブン60 RPMの回転速度で16時間、45°C(O / N)に設定する。
- 洗浄および染色
- ソフトウェアのメニューバーから「流体工学」を実行します。その後、すべてのモジュールにPrime_450プログラムを選択 - 流体工学]ダイアログボックスで、関心(4 1)のモジュールを選択します。ボトル(500ミリリットル)にミリQ水のと同様に、ボトル(200ミリリットル)中瓶(400ミリリットル)と洗浄緩衝液Bの中で洗浄バッファーAのチューブを置きます。
- その後、液晶画面の指示に従ってください。針を持ち上げ、600μlの染色カクテル1(SAPE溶液ミックス)と位置#1、#2でのマイクロチューブを含む600μlの染色カクテル2(抗体溶液ミックス)を配置し、位置#3の緩衝液を保持900μlの配列。
- オーブンでO / Nインキュベートした後、チップからカクテルを吸引して、各モジュールに右のチップを割り当てFS450-001プロトコルを選択し、それぞれのMOを実行250μlの洗浄バッファーAでマイクロアレイを埋めるduleは、画面の指示に従って。このプロセスは、90分続く。
- LCD画面が「取り出しカートリッジ "メッセージを示した後、チップを削除し、気泡がある場合は検査します。気泡が存在する場合は、アレイの保持バッファーで完全に配列を埋める。スキャナ内の任意の漏れを回避し、スキャナにロードする前に、マイクロアレイウィンドウをきれいにするセプタム上にステッカーを適用します。
- スキャン。
- スキャナをウォームアップ。スキャナのオートローダにチップをロードし、スキャンを開始。
注意:チップあたり〜12分後、チップ当たり.CELファイルが生成される。 - 画像を確認し、プローブ細胞を同定するためにスポットに(必要な場合)、グリッドの位置を合わせます。
注:データセットは、(受託コード= E-MTAB-1721)Arrayexpressに提出されました。
- スキャナをウォームアップ。スキャナのオートローダにチップをロードし、スキャンを開始。
影響評価8.ネットワークベースのシステム生物学の分析
- マイクロアレイデータ処理。
注:データは、処理Dスコアリング方法はR統計環境のバージョン2.14を使用して実装されました。- R 18セッションを開き、AFFY 19をロードし、gcrma、およびコマンドを実行してインストールaffyPLMパッケージ:ライブラリ(AFFY)>ライブラリ(gcrma)>ライブラリ(affyPLM)
- コマンドを実行している生データファイルを読む:data.affybatch <-ReadAffy(「CELファイルを保存されているフォルダへのパス ")
- コマンドを実行して、gcrmaパッケージを使用してプローブセット発現値を生成するために、バックグラウンド補正と分位ノルマルをSubstract:eset.norm <-gcrma(data.affybatch)
- 品質管理。
- コマンドを使用してRNA分解プロットを生成します度<-AffyRNAdeg(data.affybatch)
- コマンドを実行しているRNA分解スロープの係数を抽出します。スロープ=度の$スロープ
- 傾き係数をプロットし、可能な外れ値を識別します。
- 以下のコマンドを実行しているNUSEとRLEプロットを生成しますのPsetを< -fitPLM(data.affybatch)> RLE(のPset)> NUSE(のPset)。
- 生成された箱ひげ図の一部が外れ値であるかどうかを確認:配列が異常値と考えられる場合、他の配列から外れるの下に定義された3 QCメトリックの少なくとも2:
- 度の$スロープは平均度の$スロープとは異なります
- NUSEプロット:上位四分位点が0.95または1.05上記の低い四分位、 すなわち下回った場合、箱ひげ図が完全に1.05の上または完全に0.95を下回っている場合は、配列が外れ値と考えられている。。
- RLEプロット:RLE分布の中央値が0.1以上-0.1未満である場合は、配列がアウトライアと見なされる。 - アレイは外れ値として識別された場合、破棄し、ステップ8.1.2からやり直してください。
- 関心のある特定のコントラストのためのデータへの全体的な線形モデルをフィット( すなわち 、「治療」と「制御」の条件との比較)furtすることができ、マイクロアレイ上の各プローブセット、の生のP値を生成する彼女はLIMMAパッケージのBenjamini-Hochbergの手順を使用して調整。 20で説明したように、さらなる分析のための遺伝子の代表として維持するために、遺伝子ごとのプローブセットを選択します。
注:実験計画からブロック化因数(露光プレート)は、データ処理のためのモデルで会計処理された。
- ネットワークベースの分析。
注:ここで実装した方法は、Martinらに詳細に記載されている。 (BMCのバイオインフォマティクスにおける改正で)。- 対象となる各ペアごとの比較のために、計算された(log2-)からスタート(ステップ8.2から)ネットワークの下で各遺伝子の変化(対対照治療)を折る。
- 、記号は、(i〜j)はワット(i、j)はノードiとjの間の(i、j)の重みwのエッジがある場合 - Lによって定義されたネットワークの署名されたラプラシアン行列L(i、j)を計算する= L(i、j)は=度(i)はiとL(i、j)は= 0、他の加重程度である。重みwはiおよびjはバックボーンとw(i、j)はにある場合(i、j)は1に等しい= 1 / n iは、バックボーンノードとjである場合、そのn個のneighbの一つである転写層で和をとります。
- L3は、バックボーンノードにLの部分行列であり、L2は、バックボーン·ノードへのローの転写層のノードに対応し、列Lの部分行列ではf = L3-1L2Txによって骨格のスコアを計算する
- 全てのエッジ符号が逆になっているバックボーンネットワークによって定義されたネットワークの署名されたラプラシアン、Qを計算する。
- NPA = fTQfによってNPAスコアを計算します。
- 信頼区間は、バックボーン·エッジ·順列p値および転写層順列p値を計算する。
注:( 例えば 、実験群のサンプル間の生物学的変動)は、実験誤差を考慮NPAスコアの信頼区間に加えて、コンパニオン統計について生物学にNPAスコアの特異性を説明するために誘導されたネットワークで。 NPAは、倍率変化の二次形式であるため、その分散は変化倍率14:42:27に基づいて計算することができるariances。信頼区間は、その後、中心極限定理を用いて導出される。二つの順列試験をするときP図面に* Oで示さ(結果は順列P値をもたらす、モデル内の基礎となる証拠( すなわち 、遺伝子の倍数変化)に特異的であった場合に評価するために、21により最初に実施された - 値<0.05)。第二に、ネットワークの「効果を引き起こすアンド」層かどうかを評価するためには、有意(P値<0.05図にK *で示される)ネットワーク摂動の振幅に寄与した。 - 信頼区間はゼロを含むAND 2の順列p値<0.05をしない場合の処理によって影響を受けたようなネットワークを考慮する。
- NPAスコアの80%まで貢献してバックボーンの重要なノードとして定義されている主要なノードを計算します。
結果
以下に記載された結果では、器官、組織、初代ヒト上皮細胞、健康、禁煙、白人ドナーから単離され、線維芽細胞15を使用して再構成しただった。
3D気管支及び鼻の組織モデル
体外気管支及び鼻の器官のモデルでは 、細胞レベル、人間の気道上皮( 図2)に似ている。
CS暴露
器官気管支及び鼻組織モデルを繰り返し、空気 - 液体界面で主流CSに曝露することができる。ここに示された結果のために使用される煙曝露実験手順は、 図1に示されている。
繊毛運動の記録
繊毛の鼓動は、ビデオに示すように、空気に露出した組織で記録した。 CS露光は繊毛運動頻度の減少に関連した強いピークは周りを観察露出した偽および暴露前4ヘルツのCS曝露( 図3)の後にはもはや観察されない。この低減された周波数は、粘液と感染性物質22を除去することが少ない効率的な鼓動繊毛になるだろう。
TEER及びCYP1A1 / 1B1活性の測定
TEERは、組織がまだ機能していることを確認するために、最後の曝露の48時間後に測定した。 CYP1A1 / 1B1活性を図1に示すように、露光の終了の48時間後に測定した。CS曝露組織におけるTEER値は、煙の大 きな細胞毒性効果がないことを確認した空気に露出した組織と比較して有意差はなかったこの濃度で。 48時間の露光後に、組織のCYP1A1 / 1B1活性がわずかに露出( 図4)は、以下の組織防御機構の適度な増加を示し、増加した。
遺伝子発現プロファイルおよびネットワークベースのシステムは、双方向異物代謝の変化のCS曝露の影響を研究する学問のアプローチ
組織は48時間の露光後の時点で採取した。次いで、マイクロアレイ分析、遺伝子発現CS-のプロファイルと空気曝露組織を生成するために実施した。生体異物代謝にCS暴露の影響は、遺伝子発現プロファイルから、15以前報告されたように活用ネットワークベースのシステム生物学のアプローチを用いて調べた。ネットワークベースのシステム生物学のアプローチを使用して、生体異物の代謝ネットワークモデルにおけるバックボーンノードのレベルでのCS曝露の影響がうまく( 図5) のin vitroおよびin vivoの間でデータセットに相関していたことを示している。対照的に、各個々の遺伝子発現の変化のレベルで、貧弱な相関は、インビトロ (空気曝露対CS曝露)およびインビボ (非喫煙者対喫煙者)との間で観察された。
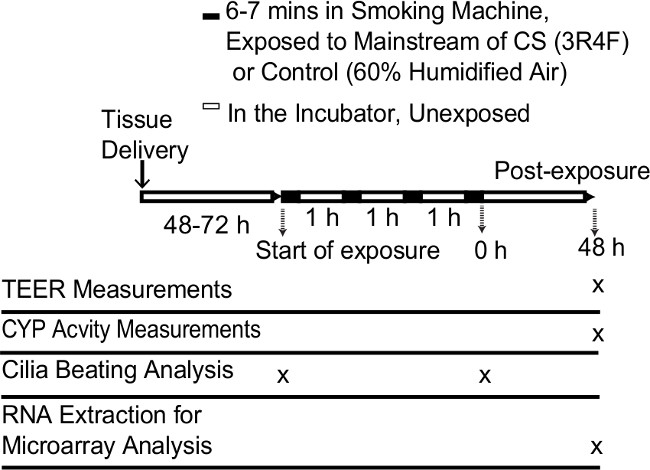
図1.器官気管支組織モデルへのCSの反復暴露の概略手順略語:。CYP、チトクロームP450の。 CS、たばこの煙。 TEER、経上皮電気抵抗。
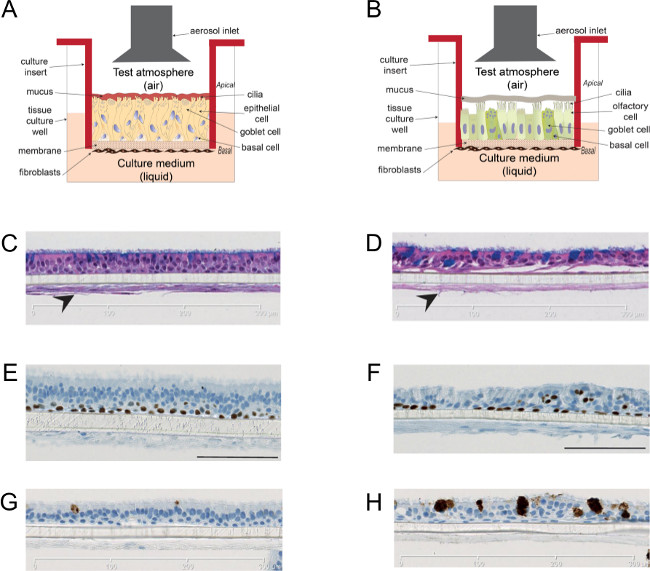
図2.器官気管支及び鼻上皮組織培養モデル。漫画気管支(A)を説明し、気液界面での鼻(B)組織培養インサート。以前に15報告されているようにin vitroモデルは、ヘマトキシリン&エオシン染色された細胞の先端層に示す繊毛細胞(気管支用のC、鼻用D)を含有していた。モデルは、重要である線維芽細胞と共培養した上皮細胞(矢印)の増殖および分化のために。気道系統マーカーの染色:以前に15報告されているようにP63(鼻用気管支ためのE、F)およびMUC5AC(気管支用のGは 、鼻用H)が示されている。 この図の拡大版をご覧になるにはこちらをクリックしてください。
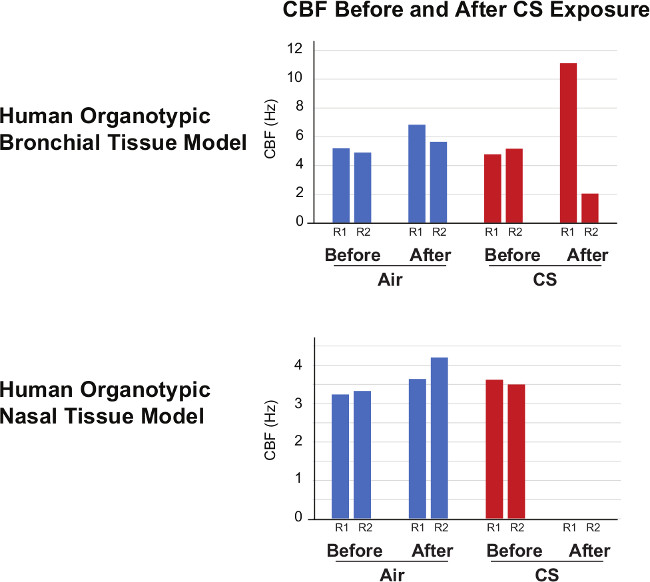
図3繊毛拍動頻度。繊毛ビート周波数(CBF)は、露光前後大気曝露および培養物中で測定した。 (2挿入から代表的な結果がレプリケート1(R1)として示され、2(R2)を複製している)CBFがCS暴露後に見られた減少した。
広告/ 52325 / 52325fig4.jpg "/>
図4. CYP1A1 / CYP1B1活性の測定とTEER。左pannelsは気管支(A)におけるCYP1A1 / CYP1B1の活動を示し、鼻(B)は、組織モデル。右のパネルは、気管支(C)および鼻(D)組織モデルにおけるTEER測定を示す。 ±SDが示されていることを意味します。略語:CS、たばこの煙。 CYP、チトクロームP450。 TEER、経上皮電気抵抗。 RLU、相対luminescenseユニット。
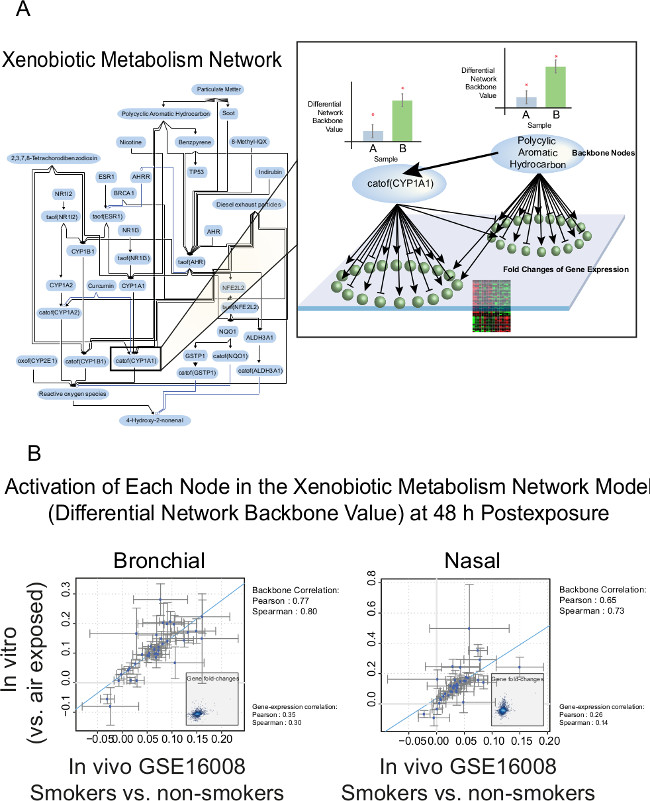
異物代謝の文脈におけるCS暴露の影響評価のために、図5のネットワーク·ベースのシステム生物学アプローチ。遺伝子発現レベルの変化は、生体異物の代謝ネットワークモデルのバックボーンノードの活性化(A)を計算するために使用された strong>の前の出版物15で報告されたように。右の図は、NPAアプローチを使用して "、差動ネットワークバックボーン値」としても知られ、バックボーンノードの定量化の概念を示す図である。青色の楕円は、バックボーン·ノードの活性を表す( すなわち 、機能層)および緑色ボールの遺伝子の発現を表す( すなわち 、転写層)。曝露後の48時間での器官型気管支組織におけるCS曝露の影響は、( 試験管内で、空気に露出対CS-露光)下甲(GSE16008をburshingことで気管支鏡検査と鼻上皮によって収集されたヒト気管支上皮に喫煙のものと比較した)( インビボ、喫煙者対非喫煙者)(B)。インセット、 インビトロおよびインビボのデータセット中の間の遺伝子発現の変化の相関。略語:CS、たばこの煙。 NPA、ネットワーク摂動振幅。ove.com/files/ftp_upload/52325/52325fig5large.jpg「ターゲット= "_空白">この図の拡大版をご覧になるにはこちらをクリックしてください。
ディスカッション
ここでは繰り返さCS暴露の影響を評価するために、人間の器官の気管支および鼻組織モデルの適用可能性を実証した。動物実験の代替として、露光システムの数は、インビトロでのエアロゾル暴露の毒性評価のために開発された( 例えば 、Vitrocell、Cultex、ALICE、等)。これらの露出モジュールはまた、本研究では等大気汚染物質、浮遊微小粒子、ナノ粒子の毒性学的評価のために利用することができ、我々は、大規模実験との間の低い変動性を考慮し、同時に48の異なるサンプルまで収容することができVitrocellシステムを使用しトリートメント。 インビトロでのすべてのエアロゾル暴露のために、組織培養の汚染の危険性は、その緩和の実験を通して組織培養物の慎重な取り扱いが要求される大きなリスク残る。
電子天秤の間にリアルタイムで粒子沈着を測定するxposure実験は、露光システムから生成されたCS用量は期待に適合していることを監視することができます。段取りオンライン測定を正確に露光する前には、 例えば 、critialなぜなら微量天秤(cm 2)との面積の差により、さらに0にスケールを設定し、測定された粒子の沈着の精度を確保するため組織培養インサート(0.33 cm 2)を 、我々は、培養インサートの領域に最終的な計算を調整する:天秤上の堆積のわずか33%が、培養インサートの実際の堆積を反映する。
タイトジャンクションのバリア機能を確認すると、上皮層の破壊を評価するためにTEERの測定は、私たちがここで報告された、実装するための比較的簡単な手順である。気管支および鼻組織モデルは、粘液産生散在杯細胞を含有してので、頂端洗浄TEER measの前に実行される必要があるurement。粘液層の存在およびその厚缶バイアスTEERの測定のばらつきは、CS暴露の影響をinterferringのでアピカル洗浄が重要である。この概念はのどぐろしたCaco-2細胞の透過性、粘液産生杯細胞株HT29 23との共培養によって影響された同僚によって報告されたものと一致している。粘液は、右露光前頂端洗浄CSに対する組織反応を妨害する可能性があるため、事前のTEER測定を洗い流される必要がある。したがって、測定は3日間の曝露の前に行われ、露光前、右されていません。
我々は、活性は軽度にしかCSによって増加したが、CYP1A1 / CYP1B1活性がCS曝露後の器官培養モデルから測定することができることを示した。この弱い信号のために、例えば、CYP1A1 / 1B1の基質( すなわち 、ルシフェリン-CEE)のより長いインキュベーションによって増幅することができる24時間後(データは示さず)。本研究におけるCYP活性測定の限界の一つは、CYPタンパク質のレベルまたは酵素活性に変化が影響を受けないことを保証するために、将来の研究のために考慮することができる細胞数に正規化が存在しないことであるタンパク質レベルまたは細胞数のいずれかの変化によって。
私たちは、CS曝露が鼻および気管支組織モデルの両方に繊毛運動を阻害したことを報告した。同様の観察は、多様な哺乳動物および非哺乳動物のモデル12で行った。繊毛運動の測定のために、組織は同様の方法で処理し、処理されることを保証することは培地交換が実施される場合、例えば、それは、すべてのサンプルに適用されるべき、重要である。 Suttoらは、pHが、周波数24を破って、哺乳動物の毛様体に影響を与えたことを報告した。したがって、異なるcompunds /混合物で処理した細胞との間の拍動頻度を比較した場合、pHは調整は、繊毛運動測定のばらつきを最小限にするために考慮されるべきである。繊毛運動の周波数は温度の低下と共に低下するとまた、測定を行う際の温度も重要である。本研究で使用した温度、CO 2、及び湿度制御が装備これらの変更、ステージトップインキュベーターによるばらつきを最小限にすることができる。それにもかかわらず、我々は、CS曝露後の気管支組織中の周波数を破っ繊毛の繊毛運動は、露光後の非常に乱れた権利であることを示唆している、高度に可変( すなわち一つのインサートが増加し、他のインサートの減少)であったことを観察した。対照的に、我々は、鼻組織の反応の感受性と一致していることを示唆し、CS曝露後鼻組織に測定可能な繊毛運動周波数が存在しないことを観察した。これは、鼻組織のように解毒する低い能力を有することを示した以前の出版物と一致している気管支25と比較した。
最後に、CSに曝露された器官の気管支および鼻組織モデルからの遺伝子発現プロファイリングは、生体異物代謝にCSの影響を実証することを示した。興味深いことに、CSに曝露しビトロモデルにおける器官気管支及び鼻内異物代謝において観察された変化は、以前の刊行物15に詳細に説明するように喫煙者におけるインビボの状況と似ている。遺伝子発現解析のために、ロボティック機器を使用するハイスループット分析を可能にする。また、自動ロボットハンドリングはさらに、遺伝子発現の結果の一貫性及び精度が向上する。それにもかかわらず、組織サンプルの迅速な収集はRNA抽出中にRNAの分解を避けるために重要であった。ここで説明するRNA処理とトランスクリプトームアプローチはまた、 インビボでの組織サンプルに適用することができる。
開示事項
この研究は、フィリップモリスインターナショナルによって資金を供給された。
謝辞
著者は、原稿の彼らのレビューのためにモーリス·スミスとマルヤTalikkaに感謝したいと思います。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| MucilAir-ヒト線維芽細胞-気管支上 | 皮Sárl, ジュネーブ, スイス | http://www.epithelix.com/content/view/122/19/lang,en/ | |
| MucilAir Culture Medium | Epithelix Sárl, Geneva, Switzerland | http://www.epithelix.com/content/view/84/16/lang,en/ | |
| VITROCELL | VITROCELL systems GmbH, Waldkirch, Germany | http://www.vitrocell.com/index.php?Nav_Nummer=2&R= | |
| 3R4F reference cigarette | ケンタッキー大学 | http://www2.ca.uky.edu/refcig/ | |
| 30-port carousel smoking machine SM2000 | Philip Morris, Int. | ||
| CiliaMetrixカメラとソフトウェア | La Haute & Eacute;cole de Gestion (HESGE), Geneva, Switzlerland | ||
| Leica DMIL microscope | ライカ、ヘールブルッグ、スイス | ||
| LED光源 | Titan Tool Supplies、バッファロー、NY | ||
| チョップスティック電極 STX-2 | World Precision Instruments | http://www.wpiinc.com/products/physiology/stx2-chopstick-electrode-set-for-evom2/ | |
| EVOMXTM Epithelial Voltohmmeter | ワールド精密機器 | http://www.wpiinc.com/products/physiology/evom2-evom2-epithelial-voltohmmeter-for-teer/ | |
| ルシフェリン検出試薬 | |||
| MagNAライザー装置 | ロシュ | http://www.roche.com/products/product-details.htm?region=us&type=product&id=66 | |
| クロロホルム | シグマ・アルドリッチ | http://www.sigmaaldrich.com/catalog/product/sial/288306?lang=en®ion= | |
| QIAcube | Qiagen | 9001882 | |
| NanoDrop | Thermo Scientific | http://www.nanodrop.com/ | |
| Agilent 2100 バイオアナライザー | Agilent | http://www.genomics.agilent.com/en/Bioanalyzer-System/2100-Bioanalyzer-Instruments/?cid=AG-PT-106 | |
| Affymetrix GeneChip ハイスループット 3'IVT Express キット | Affymetrix | http://www.affymetrix.com/catalog/prod370001/AFFY/High-Throughput-(HT)-Whole-Transcript-(WT)-Kit | |
| Scanner 3000 7G | アフィメトリックス | http://www.affymetrix.com/catalog/131503/AFFY/Scanner-3000-7G |
参考文献
- Pezzulo, A. A., et al. The air-liquid interface and use of primary cell cultures are important to recapitulate the transcriptional profile of in vivo airway epithelia. American Journal of Physiology - Lung Cellular and Molecular Physiolog. 300, L25-L31 (2011).
- Pampaloni, F., Reynaud, E. G., Stelzer, E. H. The third dimension bridges the gap between cell culture and live tissue. Nature reviews Molecular cell biolog. 8, 839-845 (2007).
- Dvorak, A., Tilley, A. E., Shaykhiev, R., Wang, R., Crystal, R. G. Do airway epithelium air–liquid cultures represent the in vivo airway epithelium transcriptome. American journal of respiratory cell and molecular biolog. 44, 465(2011).
- Wiszniewski, L., et al. Long-term cultures of polarized airway epithelial cells from patients with cystic fibrosis. American Journal of Respiratory Cell and Molecular Biolog. 34, 39-48 (2006).
- Balharry, D., Sexton, K., BéruBé, K. A. An in vitro approach to assess the toxicity of inhaled tobacco smoke components: nicotine, cadmium, formaldehyde and urethane. Toxicolog. 244, 66-76 (2008).
- Mathis, C., et al. Human bronchial epithelial cells exposed in vitro to cigarette smoke at the air-liquid interface resemble bronchial epithelium from human smokers. Am J Physiol Lung Cell Mol Physio. 304, L489-L503 (2013).
- Cho, M. -H., et al. A bioluminescent cytotoxicity assay for assessment of membrane integrity using a proteolytic biomarker. Toxicology in Vitr. 22, 1099-1106 (2008).
- Stewart, C. E., Torr, E. E., Mohd Jamili, N. H., Bosquillon, C., Sayers, I. Evaluation of Differentiated Human Bronchial Epithelial Cell Culture Systems for Asthma Research. Journal of Allerg. 2012, 11(2012).
- Blume, L. F., Denker, M., Gieseler, F., Kunze, T. Temperature corrected transepithelial electrical resistance (TEER) measurement to quantify rapid changes in paracellular permeability. Pharmazi. , 19-24 (2010).
- Chhin, B., et al. Ciliary beating recovery in deficient human airway epithelial cells after lentivirus ex vivo gene therapy. PLoS genetic. 5, e1000422(2009).
- Jiao, J., Meng, N., Wang, H., Zhang, L. Comparison of human nasal epithelial cells grown as explant outgrowth cultures or dissociated tissue cultures in vitro. Front Me. 7, 486-491 (2013).
- Talbot, P. In vitro assessment of reproductive toxicity of tobacco smoke and its constituents. Birth defects research. Part C, Embryo today : review. 84, 61-72 (2008).
- Port, J. L., et al. Tobacco smoke induces CYP1B1 in the aerodigestive tract. Carcinogenesi. 25, 2275-2281 (2004).
- Hoeng, J., et al. A network-based approach to quantifying the impact of biologically active substances. Drug Discov Toda. 17, 413-418 (2012).
- Iskandar, A. R., et al. Systems approaches evaluating the perturbation of xenobiotic metabolism in response to cigarette smoke exposure in nasal and bronchial tissues. Biomed Res In. 2013, 512086(2013).
- Karp, P. H., et al. An in vitro model of differentiated human airway epithelia. Methods for establishing primary cultures. Methods in molecular biolog. 188, 115-137 (2002).
- ISO 3402: Tobacco and tobacco products -- Atmosphere for conditioning and testing. , International Organization for Standardization. (1999).
- R: A Language and Environment for Statistical Computing. , The R Core Team. (2011).
- Gautier, L., Moller, M., Friis-Hansen, L., Knudsen, S. Alternative mapping of probes to genes for Affymetrix chips. BMC Bioinformatic. 5, 111(2004).
- Hermida, L., et al. Confero: an integrated contrast data and gene set platform for computational analysis and biological interpretation of omics data. BMC genomic. 14, 514(2013).
- Thomson, T. M., et al. Quantitative assessment of biological impact using transcriptomic data and mechanistic network models. Toxicology and applied pharmacolog. 272, 863-878 (2013).
- Teff, Z., Priel, Z., Gheber, L. A. The forces applied by cilia depend linearly on their frequency due to constant geometry of the effective stroke. Biophysical journa. 94, 298-305 (2008).
- Hilgendorf, C., et al. Caco-2 versus Caco-2/HT29-MTX co-cultured cell lines: permeabilities via diffusion, inside- and outside-directed carrier-mediated transport. J Pharm Sc. 89, 63-75 (2000).
- Sutto, Z., Conner, G. E., Salathe, M. Regulation of human airway ciliary beat frequency by intracellular pH. The Journal of physiolog. 560, 519-532 (2004).
- Zhang, X., et al. Similarities and differences between smoking-related gene expression in nasal and bronchial epithelium. Physiological genomic. 41, 1-8 (2010).
再版と許可
