バークホルデリアsartisoli RP037-MCHEと全細胞バイオレポーターアッセイは、水飽和モデル系内の空気で満たされた細孔を橋渡し菌糸体により能動輸送後の細菌による分解に利用可能な有機汚染物質( すなわち、フルオレン)の画分を検出するために開発されました。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
水不飽和システムにおける有機汚染物質の輸送および生物学的利用能を評価するために、全細胞バイオレポーターアプローチ
この記事について
サマリー
要約
汚染物質のバイオアベイラビリティは、土壌中での効果的な生分解の前提条件です。ただし、汚染物質の平均バルク濃度は、その可用性の適切な尺度ではありません。バイオアベイラビリティは、むしろ、化合物の微生物細胞への潜在的な物質移動(フラックス)の動的な相互作用と、微生物細胞が化合物を分解する能力に依存します。土壌の水が不飽和な部分では、菌糸体は、センチメートルの範囲で有機化合物を積極的に輸送および動員することにより、バイオアベイラビリティの制限を克服することが示されています。菌糸体による輸送の程度は化学的手段で容易に定量化できますが、細菌細胞への汚染物質のバイオアベイラビリティの検証には生物学的な方法が必要です。この制約に対処するために、モデル化合物としてPAHフルオレン(FLU)を選択し、空間的に分離されたFLU点源とFLU分解バイオレポーター細菌Burkholderia sartisoli RP037-mCheをPythium ultimumの菌糸体ネットワークでリンクする水不飽和モデル小宇宙を開発しました。バイオレポーターはPAHフラックスに応答してeGFPを発現するため、細菌のFLUへの曝露と分解は、共焦点レーザー走査型顕微鏡(CLSM)を介して小宇宙で直接監視できます。CLSMおよび画像解析により、菌糸体またはFLUを含まない対照と比較して、P. ultimumの存在下でのeGFP発現の有意な増加が明らかになり、菌糸体を介した輸送後の細菌に対するFLUのバイオアベイラビリティが示されました。CLSMの結果は、同一の小宇宙での化学分析によって裏付けられました。開発された小宇宙は、汚染物質のバイオアベイラビリティを調査し、それに付随して関与する細菌と菌糸体の相互作用を視覚化するのに適していることが証明されました。
概要
土壌は、高密度に細菌などの微生物1,2の広い範囲によって入力されます。しかし、この生息地の条件は特に水の利用可能3換算で、挑戦的である。細菌は、恒久的に異機種環境4に最適な条件を探索する必要がありますが、連続した水膜の不在は、自由に広げるために、それらを妨げる制限されたモビリティ5になるさ。また、溶質の拡散速度( 例えば、栄養素)は、不飽和条件6の下に低下する。そのため、細菌や栄養素は、多くの場合、物理的に分離され、栄養のアクセシビリティは3に制限されている。結果として、連続的な水相を必要としない化学化合物のための輸送ベクターは、これらの制限を克服するのに役立つ可能性がある。実際には、そのような真菌および卵菌などの多くの微生物がそれによって達するとmobiは空気で満たされた孔隙を通して成長できるようにすること糸状成長形を開発したlizingも物理的な長距離での栄養素7と炭素質8物質を分離した。彼らは細菌9に糖及び他のエネルギー源を提供し、生物学的輸送ベクターとして作用することができる。菌糸生物における取り込みと輸送はまた、このようなピシウムultimum 10またはアーバスキュラー菌根菌11で中の多環芳香族炭化水素(PAH)などの疎水性有機汚染物質のために示されている。 PAHは、ユビキタスと難水溶性汚染物質の土壌中の12であるため、菌糸体媒介輸送は、潜在的な細菌の分解者のための汚染物質の生物学的利用能を高めるために役立つかもしれない。汚染物質輸送の総量は化学によって直接定量することができるのに対し、分解細菌および他の生物に菌糸体によって輸送汚染物質の生物学的利用能を容易に評価することができない、10を意味する。
以下のプロトコルmyceの影響を評価するための方法を提示する直接的な方法で細菌の分解者への汚染物質の生物学的利用能にLIA。それは微生物の生態系への汚染物質の時空間への影響に関する情報を収集することができます。私たちは、菌糸輸送ベクターを経由してPAH分解バイオレポーター細菌と物理的に分離されたPAHの点光源をリンクすることによって土壌中の空気 - 水界面を模倣精巧な不飽和縮図システムを設定する方法について説明します。空中輸送が除外されているため、細菌PAHのバイオアベイラビリティに菌糸ベースの輸送の効果は、単離された方法で研究することができる。より詳細には、3環のPAHフルオレン、菌糸生物ピシウムultimumとバイオレポーター細菌バークホルデリアsartisoli RP037-MCHE 13を説明小宇宙の設定で適用した。細菌B. sartisoli RP037-MCHE、もともとセル14にフェナントレンフラックスを研究するために構築されたとするPAHフラックスの結果として、緑色蛍光タンパク質(eGFP)を発現増強赤の蛍光を発するmCherryをを構成的に発現される細胞。レポーター構築に関する詳細な情報はTecon らによって与えられている。予備試験では13、細菌は水泳とだけ非常に遅い群がる能力を認められなかった。それは、菌糸の上に高密度の懸濁液として適用された場合にピシウムultimumの菌糸にゆっくり移動することができました。細菌は以下のプロトコルでアガロースに包埋したので、菌糸上のマイグレーションが発生しなかった。
共焦点レーザー走査顕微鏡(CLSM)を用いて、バイオレポーター細菌はマイクロコズムで直接可視化することができるし、eGFPの発現は、ソフトウェアのImageJの助けを借りて(mCherryを信号に比例した)細胞の量に関連して定量することができる。これは、異なるシナリオに定性的生物学的利用能を比較することができ( すなわち、より高いまたはより低い)。 FLUはP.によって菌糸輸送後に生物学的に利用可能であることが見出されたultimum(すなわち、それは、)陰性対照よりも高かった。さらに、プロトコルは、化学的な手段を介して菌糸体媒介輸送の総量を定量化すると、同一のマイクロコズムにおけるシリコンコーティングされたガラス繊維(SPME繊維)を使用して、汚染物質の生物学的利用能を確認する方法について説明します。この小宇宙のセットアップを使用して結果が公表され、Pの組み合わせのために議論されてきたultimum、フルオレン及びB. sartisoli RP037-MCHE 15。ここでは、焦点は、潜在的なさらなる用途のためにこの知識を提供するために、詳細な方法の説明とプロトコルの潜在的な落とし穴の同定に位置しています。さらにアプリケーションは、さまざまな真菌、(汚染されたサイトからの例えば、)細菌種、および他の汚染物質( 例えば、殺虫剤)または汚染物質の供給( 例えば、高齢の土壌)を含むことができる。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
料理の調製、スライドとインキュベーションチェンバース
- 各小宇宙に次の材料を準備します。一つの大きなプラスチック製のペトリ皿の底部(D = 10cm)に、蓋と3空洞を有する1カウントチャンバースライドで(ステップ1.2を参照)、小さなプラスチック製のペトリ皿の底の(D = 5 cm)の修正1。
- ペトリ皿の底部の所望の数の(d = 5 cm)を取る。正確にスライド(26ミリメートルエッジ長)が合うようにのこぎりでつばの部分を削除します。システムを滅菌するため、70%エタノールのO / Nでペトリ皿の底と蓋を浸漬し、UV光下での流キャビネット中で少なくとも2時間のためにそれらを乾燥させる。また、2時間UV光にさらされていた密閉プラスチック容器、ペトリ皿に保管してください。
- 70%エタノールとを含むスライドの所望の数ワイプそれらを空気乾燥する。アルミホイルでスライドをラップし、可能な汚染を除去するために、450℃で5時間マッフル炉に入れます。
- 蓋付きガラスインキュベーション室を準備します。 70%エタノールで清掃し、流キャビネット内の少なくとも2時間のUV光にオープンチャンバーを公開。
注:蓋付き大型デシケーター(30 -1付近の直径)は、この目的のために使用することができる。各デシケーターは10縮図のセットアップまで収容することができる。
メディアと文化の調製
- 、3; 20並列小宇宙を実行するには、修正されたトリプトン-酵母培地(MTY)の100ミリリットル14、約150ミリリットル21Cの最小培地16(MM)、最小培地寒天(0.5%、w / vのMMA)の5ミリリットルを取得ポテトデキストロース寒天培地(PDA; 1.5%、w / v)のP.用ultimum 4つのブランクプレートを、2 mgのL -1シクロヘキシミド、4アガロースプレートを含むものPDAプレート(3%、w / v)と0.3を含むグラムml -1の活性炭および2mg部のFLU 40mgの。
- MTYはカナマイシン50 mgのL -1を含む準備(カナマイシンはrequirです細菌の培養のための10 mMの酢酸を含むのeGFPレポータープラスミドを維持するために編)およびMM。マイクロコズム中の細菌の固定化に0.5%のMMAを準備し、 ピシウムultimumと小宇宙のセットアップの培養に1.5%PDAのプレート(各20ml)に注ぎ、酢酸ずにMMを使用してください。
- P.のいくつかの菌糸を接種する3新鮮PDAプレート上のultimumとは、約72時間、25℃の暗所でインキュベートする。その後、プレートは新鮮でふわふわ菌糸体によって完全に生い茂っていることを確認してください。
- Bの二つの文化を開始グリセロールストックからMTYの50ミリリットルでsartisoli RP037-MCHE。 230 rpmで回転式フラスコ運動O / Nで30℃でインキュベートする。
- メジャー文化光学密度(OD)578 nmでの遠心10分間千×gで(B. sartisoli RP037-MCHEのために、期待されるOD 578が約1.0であり、細胞が対数期にあります)。上清を捨て、細胞を再懸濁OD 0.4の578に到達するMMの適切な量で存在する。再懸 濁した細胞の400μlの50 mgのL -1カナマイシンを含むMMの20ミリリットルを接種する。 230 rpmで回転式フラスコ運動O / Nで30℃でインキュベートする。
- MMにおける文化のOD 578を測定します(B. sartisoli RP037-MCHEのために、期待されるOD 578が約0.2であり、細胞が初期の指数期にあります)。遠心培養物を10分間2,000×gで0.4のODに達するためにMMの適切な量で細胞を再懸濁する。使用量になるまで50℃で2 mlチューブや店舗で暖かい、液体MMAの500μlの細胞懸濁液50μlを混ぜる。各小宇宙のためにMMAでの細胞の150μlのを使用してください。
- 活性炭を含むアガロースゲルのプレートを注ぐ。アガロース溶融(3%、w / v)の蒸留水で。活性炭(0.3グラムミリリットル-1)で十分に混合し、プラスチック製のペトリ皿に混合物を注ぐの(d = 10cm)に。
取付3.小宇宙
注:完全な縮図のセットアップを図1に概略的に示されている以下のすべての個々のステップについては図1を参照してください。。次の手順では、菌糸輸送ベクター3つの異なる制御のセットアップ(CONのAIR、CONのNEG、CONのPOS)を含むサンプル(SAM)の調製を記載している。すべての異なる設定の概要を表1に見出すことができる。
- ペトリ皿およびスライドの所望の数を取り、30分間流キャビネットの下UV光にそれらをさらす。
- 大きなものの中に小さなペトリ皿を置き、小さなペトリ皿の隙間を通ってスライドに合わせて。 MMAで暖かい細胞懸濁液の1サンプルを取り、1スライドの中央空洞に150μlを添加する。すべてのスライドの中央空洞があるまで、この手順を繰り返しますMMAでいっぱい。 MMAが固化するために、5分待ってください。
- 空白のPDAプレートから円形のパッチをパンチアウトするために1cmのコルクボーラーを使用してください。小さなペトリ皿の内側MMAの隣に2ミリメートルの距離で1パッチを置きます。 ( 図1のPDA 3)セットアップ中に菌糸の成長を促進するために、これを追加します。
- 機械的な障壁として湾曲したPDAのパッチをカット。清潔で無菌の小さなペトリ皿の底の部分を使用し、PDAプレートにそれを押してください。 PDA-リングになり寒天に0.5センチメートルの距離で別の小さいリングをカットするヘラを使用してください。
- 正確に小宇宙のセットアップの小さなペトリ皿の隙間に収まる部分を、切り出し、スライドの上にギャップ内に配置。 MMAと円形のPDAバリア間の距離は約2mmであることを確認してください。優しくPDA障壁にそれを押すと、小さなペトリ皿の蓋を閉じます。
- 繰り返します2グラムLを含むPDAプレートと3.4と3.4.1のステップ-1シクロヘキシミドの。
注:菌糸がシクロヘキシミドによって阻害され、MMAを過剰成長しないので、これは、バイオレポーター細胞に対して空中輸送のための制御設定(CONのAIR)です。
- 空白のPDAプレートの円形のパッチをパンチアウトするために1cmのコルクボーラーを使用してください。最初のパッチの真ん中をカットするために別の0.5cmのコルクボーラーを使用してください。 PDA関門( 図1のPDA 1)の隣に1ミリメートルの距離で生じた小さなPDAリングを置きます。
- Pと生い茂ったPDAプレートから円形のパッチをカットするPDA 1.の穴に1cmのコルクボーラーをFLU 2mgのを追加します。 ultimumと菌糸マットはFLU結晶を向くようにPDAリングにダウンボトムを( 図1のPDA 2)1パッチを配置。
- FLU結晶を追加することなく、前の手順を繰り返します。
注:これは、バックグラウンドを決定するために、負の制御設定(CON NEG)であるバイオレポーター細胞の蛍光。
- FLU結晶を追加することなく、前の手順を繰り返します。
- 活性炭を含む寒天から円形のパッチをパンチアウトするために1cmのコルクボーラーを使用してください。さらにガス状のFLU濃度( 図1)を減少させるために各小宇宙セットアップで4つのパッチを配置します。
- ポジティブコントロール(CONのPOS)を準備します。 MMAの細胞懸濁液の200μlにいくつかのFLU結晶を追加し、空のスライドの1のキャビティに入れて。
- チャンバ内の気体のFLUの濃度を最小限にするために、インキュベーションチャンバーの底部に、活性炭のいくつかの粉末とペトリ皿の(d = 10 cm)を置く。また、チャンバー内の高湿度を維持するために、底に滅菌水で四から五50ミリリットルビーカーを置く。
- インキュベーション室に縮図のセットアップを移し、96時間、25℃でインキュベートする。ランダムに異なる成長チャンバー内の場所サンプルは場所の影響を除外します。
注:このインキュベーション時間のAP卵菌Pにプライultimum。これは、他の生物のために異なる場合があります。
- インキュベーション室に縮図のセットアップを移し、96時間、25℃でインキュベートする。ランダムに異なる成長チャンバー内の場所サンプルは場所の影響を除外します。
4.共焦点レーザー走査顕微鏡
- 理想的には正立顕微鏡とCLSMのセットアップを使用しています。
注:これは、励起のためのまたは調整可能白色レーザ光 源と、例えば、488、561及び633nmのラインを提供し、従来のレーザーを装備することができる。 - 画像のコレクションのために、以下の設定を使用してください:励起:490 nmの(EGFP)と585 nmの(mCherryを)適切なレーザー強度(同時励起)で。放出範囲:500から550ナノメートル(EGFP)と605から650ナノメートル(mCherryを);対物レンズ:63X NA(その長作動距離のために)浸漬可能0.9水; Z-スタックのためのステップサイズ:0.5程度である。
- オープン縮図のセットアップやPDA 1、2、3、PDAの障壁を除去するための外科用メスを使用しています。 MMAの上にガラスカバースリップを入れて、気泡を除去するために軽く押してください。顕微鏡ステージ上にマウントスライド。目の上に水の液滴を追加します。Eカバースリップし、試料中のバイオレポーター細胞を見つけるためにmCherryを設定を使用します。
- サンプルの概要を取得し、赤のためのグロー·オーバー·アンダールックアップテーブルを用いて信号対雑音比を最適化する(mCherryを)と緑(EGFP)チャンネル。バイオレポーター蛍光を分析するために、試料上のランダムな位置を選択してください。
注:菌糸はバイオレポーターの放出( 例えば、緑色の自己蛍光)17の範囲内の自家蛍光を示すことがある。このような場合は菌糸ない領域を選択してください。 - 定義し、緑(EGFP)、赤(mCherryを)チャネル内の各位置のためのzスタックを記録します。落射光やレーザー光に長時間露光することにより、試料の漂白は避けてください。
- 10ランダム、均等に分散ポジションの前の手順を繰り返します。
- テストコース(SAM)、CONのAIR、CONのNEGとCONのPOSのすべてのサンプルに同じ設定を使用してすべての手順を繰り返します。
5.画像解析
注:他のオプションの中でのフリーソフトウェアImageJを18(http://rsb.info.nih.gov/ij/download.html)にすることができ、記録されたZ-スタックに赤(mCherryを)と緑(EGFP)の蛍光を分析するために、使用。
- logi_toolプラグイン(http://downloads.openmicroscopy.org/bio-formats/4.4.10/)をインストールしてください。
- ImageJの中でファイルを開きます。 「スプリットチャネル」と密接な緑のチャンネルを選択します。 zスタックに赤色蛍光の面積を定量化するために補助コードファイルとして提供マクロ」mCherryをエリア」を使用してください。マクロで好みの設定を調整します(太字で示されている)。
- 出力は、Z-スタック内の測定ピクセルの閾値を上回る(と定義された最小サイズ以上)を持つテーブルです。
注:すべての値の合計が、スタック内の赤色画素(領域)の総数である。
- 出力は、Z-スタック内の測定ピクセルの閾値を上回る(と定義された最小サイズ以上)を持つテーブルです。
- ImageJの中でファイルを開きます。 「スプリットチャネル」と密接な赤のチャンネルを選択します。マクロを使用してください 216、Z-スタック内の緑色蛍光の強度を定量化するために補助コードファイルとして提供されたeGFP INT」。マクロで好みの設定を調整します(太字で示されている)。
- 出力は、zスタック内のすべての緑のオブジェクト閾値より上(と定義された最小サイズ以上)の平均強度と面積を持つテーブルです。スタック内の緑画素の全強度を計算するには、対応するエリアによって各平均強度を掛けます。
- 相対のeGFP誘導(EGFPのREL)を計算します。
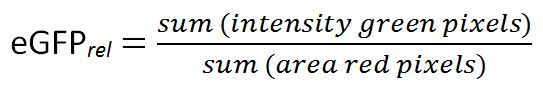 (1)
NOTE:mCherryを構成的に発現されているので、のeGFP 相対の結果値は、細胞の一定量で表さeGFPの量の相対測定値である。またのeGFP RELの計算の詳細については、表3を参照してください。
NOTE:小宇宙セットアップもまたは非生物的汚染物質、ヒートシンクなしに転FLU量の化学的定量化を行うために用いることができる。
- アルミ箔15 mlのガラスバイアルに1mlのGC / MSバイアルインサートを包む。をNa 2 SO 4皿を蒸発させて充填します。可能な汚染を除去するために、450℃で5時間マッフル炉ですべてを置く。活性化したデシケーターのNa 2 SO 4で内部に保管してください。
- 0.5cmの長さにPDMSコーティングされたガラス繊維をカットします。新鮮なメタノール中で4回2時間振盪することにより繊維を洗浄する。繰り返し洗浄は、超純水でさらに4回繰り返し、密封ガラスバイアル中で超純水できれいな繊維を格納する。
- トルエン/アセトン1.5Lの準備(3:1、v / v)の10μgのLはフェナントレン-1-dを10を含む。
- ステップ1、2、プロトコルの3を実行します。 biorずに小宇宙を準備FLU劣化を確認し、バイオレポーター細胞(SAM)とFLU輸送() - - )、およびCONのAIR(SAM()を研究するeporter細胞。
- (バイオレポーター細胞なし)オプション:SAMのMMA内部人工と定量化可能な汚染物質シンクとして(通常SPME実験に使用)ガラス繊維をコーティングした場所3 PDMS( - )は細かい鉗子を使用して。
- 細かい鉗子を用いてガラス繊維を取り出し、インサートGC / MSバイアルにそれぞれ1を移す。
- トルエン200μlを加え、O / N縦に振ると、GC / MSを経由して分析する。 表2に設けられた設定を使用します。
- 15ミリリットルのガラスバイアルに中央の空洞からMMAを転送し、Na 2 SO 4の3へらについて追加。スパチュラを用いて徹底的に混合し、溶剤の10ミリリットルを追加します。ボルテックス混合物を暗所で水平にO / Nを振る。
- 転送1001;インサートをGC / MSバイアルにサンプルのリットル。アセナフチレン-D 08(10 mgのL -1)を10μlを追加し、6.4.3に記載したのと同じプログラムを使用して、GC / MSを経由して分析する。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
ここに示す結果は、すでに15以前を発表されている。詳細な機構的および環境的な議論のための記事を参照してください。
CLSMを介して画像記録した後、最大強度投影は、サンプルの第1の視覚的印象を制御( 図2)を得るために、各顕微鏡ソフトウェアまたはImageJをを用いて行うことができる。その後、データセットは、特定の可視化ソフトウェアによって意味のある特徴を示すために異なって投影することができる。ポジティブコントロール(CONのPOS)が空中コントロール(CONのAIR)のに対してのみ背景eGFP蛍光( 図2B)を示す、明確なeGFPの誘導( 図2A)を示している。試験サンプル(SAM)におけるeGFP蛍光はCON AIR、yに比べて上昇しているようら
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
提示縮図のセットアップは菌糸体による取り込みおよび輸送の後に生物を劣化させることに空間的に分離され、化学物質の生物学的利用能を研究するのに適して証明した。部分的に揮発性化合物の潜在的気相輸送が防止され、細菌のバイオレポーター細胞が重要なシステムの最小の妨害で、従って精巧なサンプル調製を必要とせずに可視化することができる。同時に、サンプルの化学分析が容易に得られる結果を良好に制御するために、総輸送の定量化を可能に行うことができる。しかし、いくつかの点を注意深く前および実験の実行中に考慮されなければならない。重要な点は、任意の細菌または化学的架橋汚染の自由微小生態系を維持することである。多くの微小生態系が並列で実行され、従って、(例えば、デシケーターなど)大きなインキュベーションチャンバーが必要とされるので、これは困難な場合があります。したがって、前のセットアップconstrucに慎重にすべての部品を殺菌することが重要であるる。別の重要な点は、マイクロコズムプラスチックペトリ皿のアプリケーションであってもよい。 PAHとバイオレポーターが直接接触し得ないが、PAHある量のプラスチック材料によって吸収されてもよい。これがもたらすであろうしかし...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、競合する金銭的利益はないと宣言する。
謝辞
ドイツ環境財団(DBU)からの資金提供が承認されました。著者らは、CLSM解析の技術的支援を提供してくれたUte Kuhlicke氏と、熟練した実験支援を提供してくれたBirgit Würz氏、Rita Remer氏、Jana Reichenbach氏に感謝します。著者らは、実りある議論とバイオレポーター株の提供について、Jan Roelof van der Meer教授とRobin Tecon博士に特に感謝します。これは、ヘルムホルツ協会の「環境中の化学物質」(CITE)研究プログラムに貢献しています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 共焦点顕微鏡 | Leica | TCS SP5X, LAS AF - Version 2.6.1; または同等のCLSM | |
| GC HP 7890シリーズGCおよびAgilent 5975C MSD | Agilent | と同等のGC/MSは | |
| GCキャピラリーカラムJ&;W 121-5522 | Agilent | ||
| コルク穴あけ機 | フィッシャー サイエンティフィック | 12863952 | またはその他の |
| カバー スリップ | マリエンフェルド | 107222 | 高性能、No.1.5H |
| GC/MS インスターツ | WICOM | WIC 47080 | |
| GC/MS バイアル 2 ml | WICOM | WIC 41150 | |
| スクリュー キャップ バイアル用蓋/セプタム | DIONEX | 49463 / 049464 | |
| GC/MSバイアル用蓋 | WICOM | WIC 43948/B | |
| 対物レンズスライド | Menzel | 通常の | |
| PDMSコーティングガラス繊維 | Polymicro Technologies, Inc. | V (PDMS) = 13.55 ± 0.02 &マイクロ;l m-1 | |
| ペトリ皿 小さい/大きい | Greiner | 633-102/628-102 | |
| スクリューキャップバイアル 40 ml | DIONEX | 48783 | 他のガラスバイアルを使用することができます |
| スクリューキャップバイアル 60 ml | DIONEX | 48784 | 他のガラスバイアルを使用することができます |
| アセナフチレン d08 | Dr. Ehrenstorfer | C 20510100 | |
| アセトン | カールロス | 9372.2 | |
| 活性炭 | シグマアルドリッチ | 242276-1kg | |
| アガロース | カールロス | 2267.4 | |
| フルオレン | フルーカ | 46880 | |
| マイシン硫酸カール | ロス | T832.2 | 50 mg L-1 |
| メタノール | カールロス | P7171 | |
| Minimal Medium: 100 ml Solution 1 + 25 ml Solution 2 + 5 ml Solution 3 ad. 1,000 ml aqua dest | |||
| Solution 1 | |||
| Ammonium sulfate | Carl Roth | 3746.1 | 5 g L-1 |
| 塩化マグネシウム x 6 H2O | カール・ロス | 2189.1 | 1 g L-1 |
| 硝酸カルシウム x 4 H2O | カール・ロス | P740.1 | 0.5 g L-1 |
| Solution 2 | |||
| 二ナトリウム | カール・ロス | P030.1 | 55.83 g L-1 |
| リン酸一カリウム | カール・ロス | 3904.1 | 20 g L-1 |
| Solution 3 (pH 6.0) | |||
| EDTA | MERCK | 二ナトリウム 1084180250 | 0.8 g L-1 |
| Iron(II) chloride x 4 H2O | MERCK | 1038610250 | 0.3 g L-1 |
| 塩化コバルト(II) x 6 H2O | カール・ロス | T889.3 | 4 mg L-1 |
| マンガン(II) x 1 H2O | カール・ロス | 4320.2 | 10 mg L-1 |
| 銅(II) カール | ・ロス | P023.1 | 1 mg L-1 |
| モリブデン酸ナトリウム x 2 H2O | カール・ロス | 0274.1 | 3 mg L-1 |
| 塩化亜鉛 | メルク | 1088160250 | 2 mg L-1 |
| 塩化リチウム | カール・ロス | P007.1 | 0.5 mg L-1 |
| >塩化スズ(II) x 2 H2O | Carl Roth | 4473.1 | 0.5 mg L-1 |
| >ホウ酸 | Riedel-de-Haen | 11606 | 1 mg L-1 |
| 臭化カリウム | カール・ロス | A137.1 | 2 mg L-1 |
| ヨウ化カリウム | カール・ロス | 6750.1 | 2 mg L-1 |
| 塩化バリウム | カール・ロス | 4453.1 | 0.5 mg L-1 |
| MMA | 最小培地 + アガロース 0.2% | ||
| フェナントレン D10 | Dr. Ehrenstorfer | C 20920100 | |
| Potato Dextrose 寒天: 24 g L-1 ブロス + バクト寒天 1.5%; pH 6.8 | |||
| ポテト デキストロース ブロス | Difco/ Beckton Dickinson | 254920 | |
| バクト寒天 | Difco/ Beckton Dickinson | 214040 | |
| 酢酸ナトリウム x 3 hydr. | カールロス | 6779.1 | |
| 硫酸ナトリウム | MERCK | 1066495000 | |
| トルエン | MERCK | 1083252500 | |
| mTY中:3 g L-1酵母エキス、5 g L-1 bacto トリプトンと 50 mM | |||
| NaCl 酵母抽出物 | Merck | 1037530500 | |
| Tryptone Serva | 4864702 | ||
| 塩化ナトリウム | Carl Roth | 3957.1 | |
| ImageJ (Logi ツール プラグイン | http://rsb.info.nih.gov/ij/download.html と http://downloads.openmicroscopy.org/bio-formats/4.4.10 | ||
| Pythium ultimum株 67-1 | クリストフ・キール博士の研究室から入手。Department of Fundamental Microbiology, University of Lausanne, Switzerland | ||
| Burkholderia sartisoli RP037-mChe | Jan Roelof van der Meer教授の研究室から入手。ローザンヌ大学基礎微生物学部(スイス) |
参考文献
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
