このプロトコルは、HIV-1ヌクレオカプシドタンパク質のシャペロン活性をin vitroで阻害できる分子の迅速な同定を可能にするアッセイであるNAMEを説明しています。
方法論記事
ヌクレオカプシドアニーリング媒介電気泳動(NAME)アッセイは、HIV-1ヌクレオカプシド阻害剤の迅速な同定を可能にする
この記事について
サマリー
要約
安定した三次元折りたたみで折り畳まRNAまたはDNAは、抗腫瘍または抗ウイルス薬の開発において興味深い標的である。 HIV-1の場合には、ウイルスの活動の調節に関与するウイルスタンパク質は、いくつかの核酸を認識する。ヌクレオカプシド蛋白NCp7(NC)は、ウイルス複製の間にいくつかのプロセスを調節する重要なタンパク質である。 NCは、実際にはRNAおよびDNA、それらのアニーリングを容易にする二次構造を不安定化するシャペロンである。 NCの不活性化は、新しいアプローチおよび抗HIV療法のための興味深い標的である。 Nは nnealing- MがEの lectrophoresis ediated ucleocapsid(NAME)アッセイにより、そのようなTARのヘアピン構造およびHIVのCTAR要素として熱力学的に安定な三次元コンホメーションに折り畳まれたRNAおよびDNAの融解およびアニーリングを阻害することができる分子を同定するために開発されたHIV-1のヌクレオキャプシドタンパク質。新しいアッセイは、再いずれかを採用以前の標識を必要とせずcombinantまたは合成タンパク質、およびオリゴヌクレオチド。結果の分析は、従来の核酸の染色に続いて、標準的なポリアクリルアミドゲル電気泳動(PAGE)によって達成される。この作品で報告されたプロトコルは、核酸シャペロンの両方有能な、全長タンパク質または基本的なN末端ドメインを欠くその切断型と名前がアッセイを実行する方法について説明し、どのようにすることによって、NCのシャペロン活性の阻害を評価するためにインターカレースレッディング。また、NAMEは、識別NC阻害剤の作用の推定機構に関する指標を得るために、2つの異なるモードで便利に行うことができる。
概要
ヒト免疫不全ウイルス1型(HIV-1)のヌクレオカプシドタンパク質NCp7(NC)がしっかりと逆転写中に補因子としてウイルス複製に重要な役割を果たして、成熟した感染性ウイルスゲノムRNAと関連している小さな塩基性タンパク質であるゲノムの認識、および包装1-3 NCは、安定な核酸構造の不安定化と相補的な配列のアニーリングを触媒核酸シャペロンとして作用する。デュプレックス不安定化活性は、そのジンクフィンガー構造(12-55ペプチド)にマッピングされているが、その核酸凝集活性が11アミノ酸で主にN末端 ドメインが存在する。4、正に帯電したタンパク質は、アニーリング反応の静電障壁を低下させ二つの別々の相補的配列が一緒になる速度を増加させる。
安定した立体配座に折り畳まれた核酸はfacilitatするNCのシャペロン活動を必要とする電子彼らのアニーリングを5これはNCは鎖転移イベントにおいて重要である逆転写、特に重要である:。マイナス鎖転送において、 マイナス鎖停止 DNAは、単にレトロ転写、R領域に相補的な配列に転送され、アニールされなければならない熱力学がRNAゲノムの3 '末端にテンプレート6は 、この反応によりR領域中のトランス活性化応答領域 (TAR)RNAの安定した構造の存在のためにNCの不存在下で広範に発生していない、そのは、そのDNAコピー(CTAR DNA)。特徴的なステム-ループ構造を持つ7 CTARとTARが、実際には、高度に構造化された領域に関連付けられている必要があります。 NC蛋白質は、これらのヘアピンを変性し、相補的な核酸鎖間の分子間のアニーリングの速度を増加させることにより、マイナス鎖の転送を促進する。 TARとCTARのNCアニーリングのメカニズムを徹底的に調査し、デされましたいくつかの研究論文でTARアニールアッセイとしてスクライビングと提案方式が優れたレビューに描かれている。8-11要約、NCは、そのようなTAR-RNAなどの安定したRNAの二次構造を不安定にその相補的配列の二次構造を不安定化、CTAR-DNA 、およびTAR / CTARヘテロ形成につながるRNA / DNAのアニーリング反応を促進する。10,11により、HIV複製中鎖転移工程が有利で ある。12
NCをNCに向かって小分子によって誘導される潜在的な干渉が損なわNC活性の結果として、ウイルスゲノムの逆転写の低下をもたらすので、新たな抗ウイルス剤の開発のための魅力的な標的である。2,13このアプローチは可能性最終的に成功した抗HIV薬の開発につながる。 NCのスクリーニングの過程で、我々は、よく知られた特性に頼るアッセイを開発し14阻害剤効率的に相補的なオリゴヌクレオチドを不安定化アニールするヌクレオカプシド。10,11の私たちは、Nが nnealing- Mは、Eの lectrophoresis(NAME)アッセイをediated ucleocapsidそれと呼ばれる。 NAMEアッセイは、ハイブリッドTAR / CTARヘテロを生成するその相補的DNA配列(CTAR)とTAR-RNA配列の先端部に対応するオリゴヌクレオチドの我々の場合、相補的核酸の安定的に構造化されたコピー間のアニーリングを仲介するNCを使用して。 NCの存在下でTAR / CTARアニーリング反応の分析は、ネイティブポリアクリルアミドゲル電気泳動(PAGE)によって調べることができる。
このプロトコルは、反応および実験の可能性のトラブルシューティングの結果を分析する方法を、急速に安定したヘアピン構造に折り畳ま室温オリゴヌクレオチドでアニールするようにNAMEアッセイを実行する方法を示しています。核酸の放射性標識は、要求された、とdetectiされていませんオリゴヌクレオチドバンドの上に、従来の染色法により行うことができる。組換え全長タンパク質またはNCの切断合成バージョンのどちらを採用してアッセイは、NC、RNAおよびDNAの強い結合と相関することが示される活性を阻害するスレッドインターカレーターの同定を可能にする。14
プロトコル
素材、核酸およびタンパク質の作製
- 核酸
- 1.5ミリリットルのチューブをオートクレーブ滅菌容器に保管してください。実験室の消耗品からのヌクレアーゼすなわち 、混入物質を除去するために、滅菌フィルターチップを使用してすべてのステップを実行します。
- DEPC処理水にトリス-HCl、10mMの緩衝液pH 7.5を調製し、0.22μmの孔サイズのフィルターで溶液を濾過する。
- 注:「TAR」と呼ばれるオリゴヌクレオチドは、短い(29量体)RNA配列に対応する5'-GGCAGAUCUGAGCCUGGGAGCUCUCUGCC-3 '15 CTARそのDNA相補配列5'-GGCAGAGAGCTCCCAGGCTCAGATCTGCC-3であるが'。
- 100μMストック溶液を作るために上述上記トリス緩衝液中TARとCTAR(1.1.2。)の両方を可溶化する。 -20℃で保存CTAR原液(アリコートは、これらの条件にヶ月間保存することができる)。 RNAの長期保存の場合は、TAR、20μlのアリコートを作るストック溶液は、真空濃縮遠心機を使用して、各アリコートを乾燥し、-80℃で保管してください。使用前に新たに、20μlのDEPC処理水に各TARアリコートを懸濁します。
注:作業TARアリコート2週間-20℃で保存することができる。
- 100μMストック溶液を作るために上述上記トリス緩衝液中TARとCTAR(1.1.2。)の両方を可溶化する。 -20℃で保存CTAR原液(アリコートは、これらの条件にヶ月間保存することができる)。 RNAの長期保存の場合は、TAR、20μlのアリコートを作るストック溶液は、真空濃縮遠心機を使用して、各アリコートを乾燥し、-80℃で保管してください。使用前に新たに、20μlのDEPC処理水に各TARアリコートを懸濁します。
- NC蛋白質と(12から55)NCペプチド
- 報告されているように全長組換えNC蛋白質を準備します。16ストア-20℃でアリコート中の原液。 6410 M -1 cm -1での280nmでの吸光係数を使用して、UV-Vis分光光度計で正確なタンパク質濃度を決定します。
- 合成(12から55)のTris-HCl 10mMのpH7.5中のNCペプチドを再懸濁し、-20℃でアリコートでストック溶液を保存する。 5700 Mの280nmでの吸光係数を使用して紫外可視分光光度計の正しいペプチド濃度を決定-1 -1。
注:(12から55)NCペプチドをHPLC精製し、lyophが得られた塩化亜鉛の二当量を含有する溶液からilized。
- 化合物1
- 化学天秤を用いて、凍結乾燥された化合物1の約1mgを秤量し、高濃度(≈10mM)のストック溶液を得るために、100%DMSOを100μl、おりしも秤量し、それを溶解する。その吸光係数を用いて紫外可視分光光度計での正確な化合物濃度を決定する(354 nmで:11387 M -1 cm -1で)。使用前に-20℃で暗所に原液を保管してください。
2.ゲルのゲル装置と鋳造の設定
- 、ゲルをセットアップし、70%エタノールで2プレート(1長いと短い方)をすすぎ、それらを乾燥させ、その後、長い板の長辺に沿って2 1mmのスペーサを配置するには、ショートプレートでそれをカバーし、一番下にある二つのプレートを合わせてください。
- ゲルをキャストするには、サップが提供する指示に従ってくださいリール(異なるサプライヤーがわずかに異なる装置を使用します。サンドイッチクランプおよびスタックは、各鋳造装置によって提供されます)。すべての場合において、クランプ、スタック、ガスケットがきれいであることを確認すると、前のユーザーが残したアクリルアミドの痕跡を削除します。
- キャスティングスタンドに組み立てられたゲルサンドイッチを配置し、供給者によって特定の指示に従ってください。
注:通常の鋳造スロットの下部にあるきれいなシリコーンガスケットが良好なシールを確実にし、ゲルを注ぐ時にリークを回避するのに役立ちます。 - 漏れがないかチェックするには、ガラス板の間ピペットを用いて蒸留水を注ぐ。サンドイッチを埋めると漏れが発生しないことを確認するためにいくつかの分を待つために水を追加します。サンドイッチが正しく組み立てられている場合は、水を除去し、ガラスを乾燥させるために2杯の間に濾紙を挿入。紙を取り外し、今サンドイッチは、ゲルキャスティングのために準備ができている。
- 室温(RT、25℃)でゲルを注ぐ。ポリアクリルアミドは、非常に神経毒性であることから、手袋を着用してください。私達非変性(天然)の条件で電子連続12%ポリアクリルアミドゲルは、NAMEアッセイを実行する。
- 12%ゲル溶液を準備します(:トリス塩酸890 mMの、ホウ酸890 mMの、EDTA 20 mMの10倍)と24ミリリットルのMilliQ水、4ミリリットルのTBE 10倍バッファを40%アクリルアミド/ビスアクリルアミドの12ミリリットル(19/1)溶液を混合。 400μlのAPSし、使用直前にTEMED50μlのを追加します。溶液を混合し、急速にガラス板の間にソリューションを下に注ぐためにピペットを使用しています。気泡を避け、ガラス板の間に櫛を導入する。完全にサンドイッチを充填するためにゲル溶液を加える。
- ゲルは1時間に45分間重合してみましょう。すぐにサンプルをロードする前に、ゆっくりとコームを除去し、蒸留水で十分に井戸をすすぐ。
- 重合ウェルすすぎ工程の後、垂直ゲル電気泳動のための装置でのゲルサンドイッチを配置する供給者が特定の指示に従ってください。冷却システムが存在する場合、corをゲルシステムを配置することを確認してください冷却コアのRECT位置。
- システムが複数のゲルを処理するように設計されたが、唯一のゲルを実行する必要があると、完全な上部バッファー槽を形成するために、他の側での冷却コアにバッファダムとしてのゲルサンドイッチを取り付ける。
注:ダムが正しく配置されていない場合には、上部のバッファは、ゲルの実行を停止する可能性がリークします。 - (:トリス塩酸89 mMの、ホウ酸89 mMの、EDTA 2mMの1倍)を脱イオン水にバッファを実行しているTBEの2.5 Lを準備します。上部バッファー槽のために離れて約500ミリリットルTBEバッファーのを設定し、下のバッファ室に残りを注ぐ。上部バッファーチャンバー内に残っている500ミリリットルのTBE緩衝液を注ぐ。
- アノードおよびカソードは、適切な位置にあるように、下側バッファ室の上部に蓋を置く。
- 存在する場合、ホースを使って水のタップに、冷却コアを接続します。電気泳動中にヒートシンクとして作用し、水道水が当選時に炉心を通って循環できるようになる水道水でコアを埋めるrophoresis。
3.ヌクレオカプシドアニーリング媒介電気泳動(NAME)アッセイ
- バッファの調製
- TNMGバッファの準備(1×トリス-塩酸が10mM、NaClが20 mMのはMg(のClO 4)2を1mM、pH7.5)中でのDEPC処理水を0.22ミクロンの孔径のフィルターで溶液を濾過する。
NOTE:TNMGバッファは7日間まで4℃で保存することができる。最高の折りたたみ及びアニーリング結果を得るには、作りたてのバッファを使用することをお勧めします。 - DEPC処理水に:SDS(トリス塩酸の100mM、EDTA 4mMの50%W / Vのグリセロール、2%W / V SDS、ブロモフェノールブルーw / vの0.05%GLB SDS)を含むゲルローディングバッファーを準備します。
注:GLBは、オリゴヌクレオチドサンプルはゲルシステムに実行されているどこまで追跡するのに役立ち、ゲルにサンプルをシンクすることができます。 GLBへのSDSの添加はNAMEアッセイの最適な成功のための重要なステップです。この手順に従わない場合には、葛、核酸バンドを区別することは不可能であるlのシステム( 図2)。
- TNMGバッファの準備(1×トリス-塩酸が10mM、NaClが20 mMのはMg(のClO 4)2を1mM、pH7.5)中でのDEPC処理水を0.22ミクロンの孔径のフィルターで溶液を濾過する。
- 準備を制御します
- シリアルに、オリゴヌクレオチドストック溶液を希釈し、TARの1μM溶液10μlを準備するたて10μMのソリューションを使用しています。別途、同じ方法で準備する1μMCTAR10μlのTNMG 1×緩衝液中で。 5分間95℃で各チューブを加熱した後、それらのステム - バルジループ構造をとるようにTARとCTARために室温に冷却残す。
- 制御などのハイブリッドTAR / CTAR1μMの溶液を調製する。 10μlの総容量で、TNMG 1Xで10μMCTARの1μlの10μMTARの1μLを混ぜる。 5分間95℃にチューブを加熱することにより、オリゴヌクレオチドを変性させ、それを残すTARは、その相補配列CTARにアニールする二本鎖ハイブリッドTAR / CTARを形成するためには、室温にゆっくりと冷却する。
- 溶液は、室温に冷却されると、ショートスピン遠心分離を行う。 GLB SDSの3μl加え、ピペットEACチューブ内のH溶液3回、氷上にチューブを置く。担持工程まで氷上に安定したコントロールサンプルを保管してください。
- NC蛋白質と(12-55)NCペプチドの活性を分析するための試料調製
- 各サンプルのたて4μMのオリゴヌクレオチド溶液の2.5μLを使用してください。常にペッティングエラーを防止するために、各溶液の少し過剰量を準備します。上記をコントロールの準備のために報告されたTNMG 1XバッファーにCTARの、別々に、TARの4μMの溶液32.5μLを折ると(ステップ3.2.1。)。
- ミリQ水で80μM溶液に両方のNC蛋白質のストック溶液(12-55)NCペプチドを希釈する。
- TARとCTAR溶液をRTまで冷却されると、両方の管の短いスピン遠心分離を行い、サンプル管の準備を開始する。
- チューブオートクレーブ処理12空の0.5ミリリットルを準備します。ラボサンプルのためのラックに4チューブの3行を置きます。各行は、目を分析するために、それぞれのサンプルを示し、電子全長のNC蛋白質、タンパク質を含まないサンプルとサンプルは、(12-55)NCペプチドの活性を分析する。
- 常にいつでも異なる試薬が使用されているヒントは交換してください。
- 各チューブに折り畳まれたTARの2.5μLと折り畳まれたCTARの2.5を添加する。 NCのと(12から55)NCの分析のためのサンプルに4μlのDEPC処理水を追加します。他のサンプルに5μlのDEPC処理水を追加します。
- それぞれ、のためのサンプルに80μMNCまたは80μMの1μL(12から55)NCの1μlを加え、NCまたは(12から55)NC分析。
- 各チューブ3回内部の溶液をピペットで、( 図1に「0として報告)時間0分サンプルにGLB SDSのすぐ3μLを追加し、最終的にチューブを氷上に置く。すべてのサンプルとコントロールのために、この手順を繰り返します。担持工程まで氷上着実サンプルを保管してください。
- 15分、30分、室温でインキュベーションの1時間後、GLB SDSの3μlを添加EAC内部の溶液をピペットH管3回、氷上にチューブを置く。それぞれ、すべてのサンプルとコントロールのために、この手順を繰り返し、およびロード段階まで氷上に維持する。
- ゲル装置の蓋を外します。以前によく形成櫛でゲルをキャストすることによって説明されているように形成されたウェルにロード各サンプルの13μlの。 図1に報告された順序を以下のサンプルをロードします。
- ゲル装置の蓋を交換してください。電源にゲル装置のリードを取り付けます。電極は電源内の正しいスロットに差し込まれていることを確認してください。
- 電源をオンにして、色素がゲルの底から1.5センチメートルに移行するまで、200 Vの定電圧で2時間30分間ゲルを実行します。
- NCと(12から55)NC上のアントラキノンの活動を分析するための試料の調製
- 化合物1のストック溶液を希釈する。 500μMの10μL、250μM、50μM、化合物の5μMの希釈液を調製のMilliQ水で1。
- 上記で報告された対照試料を調製し(段落3.2。)。
- 各サンプルのたて4μMのオリゴヌクレオチド溶液の2.5μLを使用してください。常にペッティングエラーを防止するために、各溶液の少し過剰量を準備します。前述上記のようにTNMG 1XバッファーにCTARの、別々に、(ステップ3.2.1。)TARの4μM溶液を27.5μLを折ると。
- 水中での80μM溶液への両方のNC蛋白質の原液と(12から55)NCペプチドを希釈する。
- TARとCTAR溶液をRTまで冷却されると、両方の管の短いスピン遠心分離を行い、試料の調製を開始する。
- チューブオートクレーブ処理20空の0.5ミリリットルを準備します。ラボサンプルのためのラックに10のチューブそれぞれの2行を置きます。
- 常にいつでも異なる試薬が使用されているヒントは交換してください。
- 折り畳まれたTARの2.5μlの最初の行のすべてのチューブを追加します。折り畳まれたCTARの2.5μlの2行目のすべてのチューブを追加します。
- 適切な化合物の2μlのを追加します。 1希釈はTARへとCTARへ(500μM希釈に5μMの濃度を増加させる)。化合物の非存在下でのNCおよび(12-55)NCの分析のためのサンプル中の化合物を水と交換してください。 RTで15分間サンプルをインキュベートする。
- 15分のインキュベーション後、コレスTARサンプル(最初の行の管)にCTARサンプル(2行目のチューブ)を混ぜる。
- それぞれ、NC分析NCまたは(12-55)用のサンプルに80μMNCまたは80μMの1μLの1μL(12から55)NCを追加します。
- 15分間のインキュベーション後、各試験管を3回GLB SDS、ピペットの3μlを添加し、チューブを氷上に置く。 NCと(12から55)NC分析用のサンプルを用いて、それぞれ、この手順を繰り返します。担持工程まで氷上着実サンプルを保管してください。
- ゲル装置の蓋を外します。ウェルに各サンプルの13μlのをロードします。 図で報告された順序以下のサンプルをロードするURE 3Bと。
- ゲル装置の蓋を交換してください。電源にゲル装置のリードを取り付けます。電極は電源内の正しいスロットに差し込まれていることを確認してください。
- 電源をオンにして、色素がゲルの底から1.5センチメートルに移行するまで、200 Vの定電圧で2時間30分間ゲルを実行します。
- サンプル調製:NC-プレインキュベーションモードVSオリゴプレインキュベーションモード
- 化合物を希釈 1原液。 500μMの10μL、250μM、50μM、MilliQ水中における化合物1の5μMの希釈を準備します。
- 上記で報告された対照試料を調製し(段落3.2。)。
- 各サンプルの4μMのオリゴヌクレオチド溶液の2.5μLを使用してください。常にペッティングエラーを防止するために、各溶液の少し過剰量を準備します。 TARの4μM溶液を27.5μLを折ると、別々に、CTARのTNMG 1Xバッファーで述べた上記のように(ステップ3.20.1。)。
- 水中での80μM溶液への両方のNC蛋白質の原液と(12から55)NCペプチドを希釈する。
- TARとCTAR溶液をRTまで冷却されると、両方の管の短いスピン遠心分離を行い、試料の調製を開始する。
- 必ずしも毎回試薬が変更されたチップを交換するか、または反応管中に含まれる任意の他の液体または溶液がタッチされる。
- この手順は明らかにラベルを付け、二つの異なるプレインキュベーション手続きのためのサンプルを分離することを確認してください。
- オリゴプレインキュベーションモード
- チューブオートクレーブ処理10空の0.5ミリリットルを準備します。ラボサンプルのためのラックに5チューブの2行を置きます。
- 折り畳まれたTARの最初の行2.5μLの各チューブに追加します。折り畳まれたCTARの2行目2.5μLの各チューブに追加します。
- 適切な化合物の2μlのを追加します。 1希釈はTARへとCTARへ(500μM希釈に5μMの濃度を増加させる)。化合物の非存在下でのNCの分析のためのサンプル中の化合物を水と交換してください。 RTで15分間サンプルをインキュベートする。
- 15分のインキュベーション後、CTARサンプル(第二行)に乗り、通信員TARサンプル(最初の行)でそれらを置く。
- 各サンプルに80μMNCの1μlを加え、室温で15分間サンプルをインキュベートする。
- 15分間のインキュベーション後、各試験管を3回GLB SDS、ピペットの3μlを添加し、チューブを氷上に置く。担持工程まで氷上着実サンプルを保管してください。
- NC-プレインキュベーションモード
- 5空の0.5ミリリットルをオートクレーブし、チューブを準備し、ラボサンプルのためのラックに配置します。
- 各チューブに適切な化合物1希釈の4μL(500μM希釈に5μMから濃度を上昇させる)を追加します。化合物の非存在下でのNCの分析のためのサンプル中の化合物を水と交換してください。
- 80μの各チューブに追加1μL; M NCし、室温で15分間、サンプルをインキュベートする。
- チューブ内に折り畳まれたCTARの15μlの折り畳まれたTAR15μlのを混合し、次のステップでこのTAR + CTARソリューションを使用しています。
- 15分間のインキュベーション後、各サンプルにTAR + CTARミックス溶液5μlを添加し、室温で15分間、サンプルをインキュベートする。
- 15分間のインキュベーション後、各試験管を3回GLB SDS、ピペットの3μlを添加し、チューブを氷上に置く。担持工程まで氷上着実サンプルを保管してください。
注:上のステップ3.5.8からは、分析は、すべてのサンプル(3.5.7からのレジューム)を行うことができる。
- オリゴプレインキュベーションモード
- ゲル装置の蓋を外します。ウェルに各サンプルの13μlのをロードします。 図4に報告された順序以下のサンプルをロードします。
- ゲル装置の蓋を交換してください。電源にゲル装置のリードを取り付けます。電極は、電力補遺で正しいスロットに差し込まれていることを確認してくださいY。
- 電源をオンにして、色素がゲルの底から1.5センチメートルに移行するまで、200 Vの定電圧で2時間30分間ゲルを実行します。
4.ゲルとゲル染色を削除
- 電気泳動後、電源をオフにして、電気リードを外します。冷却システムの水タップをオフにして、コアからホースを外します。
- 蓋を外し、システムを冷却した場合には、冷却コアを削除し、両方のチャンバからバッファをオフに注ぐ。
- 静かに装置からのゲルサンドイッチを分解し、ガラスプレートからすべてのクランプを取り外します。 、プレートからゲルを削除プレートの側へのスペーサの1をプッシュし、プルアップと離れて上部ガラス板に軽くねじってください。ゲルの2隅をつかみ、ガラスからそれを削除するには軽く持ち上げ。
- のための所望の核酸の染色液で適当な容器にゲルを配置攪拌しながら30〜45分。
- 染色後、ゲルシステムでの核酸蛍光信号を検出するネーターイメージングシステム上でゲルを置く。
結果
図1は、ヌクレオカプシドアニーリング媒介電気泳動(NAME)アッセイの代表的な結果を示し、iは 、全長の組換えタンパク質、ii)のタンパク質を含まない、 すなわち CTAR + TARを混合し、RTで1時間までインキュベートすること、 および iiiで)行う)(12-55)NC、N末端 ドメインの11アミノ酸を欠く合成ペプチドを用いて行っ同じアッセイ。予め折り畳まれたTARとCTARを混合し、アニールしたヘテロTAR / CTARの形成はタンパク質の非存在下で、全長組換えNC( 図1の左側のレーン)の存在下でモニターした( 図1の中央のレーン)、および短縮型(12-55)NCペプチド( 図1の右側のレーン)の存在下で行われる。コントロールは、次のとおりです。彼らの遅いannealin続いCTARにTARの安定に折り畳まれた構造体の熱変性して得られた、CTAR、折り畳まれたTAR、およびアニールしたハイブリッド(TAR / CTAR)を折り畳んグラム。14
拡張されたヘテロ二重らせんに二つの安定核酸配列を変性させるNCの能力は明らかである:フルレングスNCタンパク質は、TAR / CTARハイブリッドの形成にすぐにつながる:0 'NCへの追加の間を通過する最小限の時間を示しサンプルと反応を停止ゲルローディング緩衝液の添加;完全な形成がすでに15分間のインキュベーション時間の後に達成される。アニールヘテロ強度の増加は、折り畳まれたCTARとTARオリゴヌクレオチドの強度の減少に匹敵する。ヘテロ二本鎖形成は切断型の存在下でも達成され、合成ペプチドの生物学的活性を確認する、(12-55)NC、すなわち 。蛋白質またはペプチドの非存在下でヘテロ形成が観察されず、TARとCTARオリゴヌクレオチドは、ヘテロ( 図1)に、室温でアニールしない。ですべての実験、不安定な中間体の速い形成時間をかけて減少する( 図1の「中間複合体」)は、一貫して正確な核酸は折りたたみまでCTARとTARのヘアピンを通して鎖交換の提案されたメカニズムで、観察される。17
実験の可能性のトラブルシューティングは、ゲルローディング緩衝液中のSDSの欠如である。 GLBにおけるSDSの非存在下での反応の結果を図2に示し、GLB + SDSによる結果と比較される。予め折り畳まれたTARとCTARを混合し、組換え完全長NC蛋白質と37°Cで3時間の室温で3時間インキュベートした。インキュベーション後、サンプルを2つに分割した。SDSなしの半分ゲルローディングバッファー(GLB)の他の半分にGLBは、SDS(GLB SDS)であったが、添加した。サンプルをゲル上にロードし、そしてゲルによって実行後に核酸バンドの位置を可視化した色素染色。これが予想され、タンパク質と核酸との間の強い結合を示します。NCは存在していたが、サンプルはGLBをロードしたときは、全ての核酸バンドがシフトアップされた。 GLB SDSとの結果がゲルの一番右に示されている:SDSの追加は、コントロールと比較を可能に、タンパク質を変性し、タンパク質と安定な複合体から核酸を放出する。
NAMEアッセイは動的核酸構造を安定化し、NCのシャペロン活性を阻害するためにインターカレー転位する能力を評価するために使用される。14スレッディングインターカレーターは、例えば、アントラキノン環系の反対側の部位に位置する大きな側鎖によって置換された平面状の芳香族分子である図3Aに示されている。18これらのインターカレーターは、核酸の二重らせんを縫うすることができ、最終的に二重の溝に、それらの側鎖の位置をらせん。19,20
図3Bは、化合物1の存在下でNAMEアッセイの結果を示し、既知のスレッディングインターカレーター、完全長のNCまたは切断ペプチドの存在下で18。両方の場合において、NCによってTAR / CTARハイブリッドの形成は、一方、同時に、フリーTARとCTARの量が増加するとインターカレーターの濃度を増加させることによって低減される。 N末端尾部(12-55NC)を欠くタンパク質の切断型は、その活性の阻害に対してより敏感である。この差は、これまでに試験された全ての化合物を用いて検証した。
NAMEアッセイは、折り畳まれたオリゴヌクレオチド(NC-プレインキュベーションモード)を添加したNCとプレインキュベートする試験化合物による、9893核酸基質との15分間の試験化合物をプレインキュベートすることによってのいずれか2つの方法で行うことができる、NCおよび15分間のさらなるインキュベーション(オリゴ広報し、続いてeincubationモード)。全体的なインキュベーション時間は、二つの異なるモードで同じであるが、NCの添加前に折り畳まれたオリゴヌクレオチドを用いたプレインキュベーションは、折り畳まれた核酸へのインターカレーターのスレッドのためのより多くの時間を可能にする。これは彼らのダイナミックな構造の強い安定化とNCシャペロン活動をより容易に抑制に結果。 図4に示すように、2つのモードでNAMEアッセイの解析は、したがって、NC阻害剤の作用機序の違いを増強する:化合物1は、オリゴプレインキュベーションモードでNAMEによって分析したとき( 図4、左のレーン)はるかに低い阻害はNC-プレインキュベーションモードで観察されるのに対し、それは、NC媒介アニーリングの強力な阻害を示す( 図4、右のレーン)。このアッセイで、これらの条件に関連化合物のセットをスクリーニングしながら、阻害濃度の測定のために各experiていることに注意してくださいメントは、 図14(特にIC 50値の周り)狭い間隔の濃度を用いて、少なくとも三連で実施されなければならない
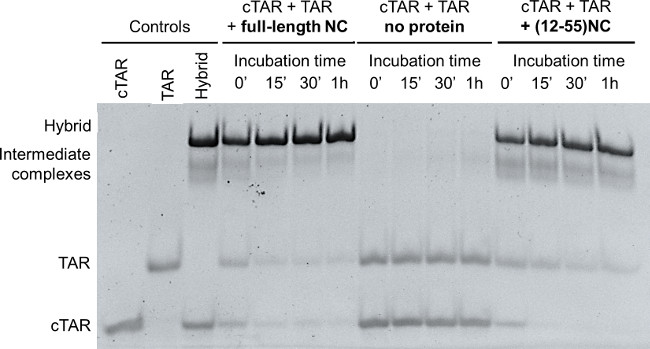
図1:フルレングスNC付きと切り捨て(12から55)NCつ折りTARとCTAR、それぞれ1μM とNAMEアッセイは 、組換えNCまたはでインキュベートした(12から55)NC(オリゴ/ NC = 1 / 8)0分、15分、30分および1時間。タンパク質(0分、15分、30分、1時間)の非存在下でインキュベートしたTARとCTARを陰性対照として使用した。折り畳まれたTAR、折り畳まれたCTARハイブリッドTARは/ CTARはインビトロアニーリング対照として使用した、続いて熱変性した後に得られる。反応はその後GLB SDSを使用して停止した。サンプルは、1×TBE中で12%ポリアクリルアミドゲル上で分離した。電気泳動後のゲル上の核酸は、染色し、イルミ上で検出された。
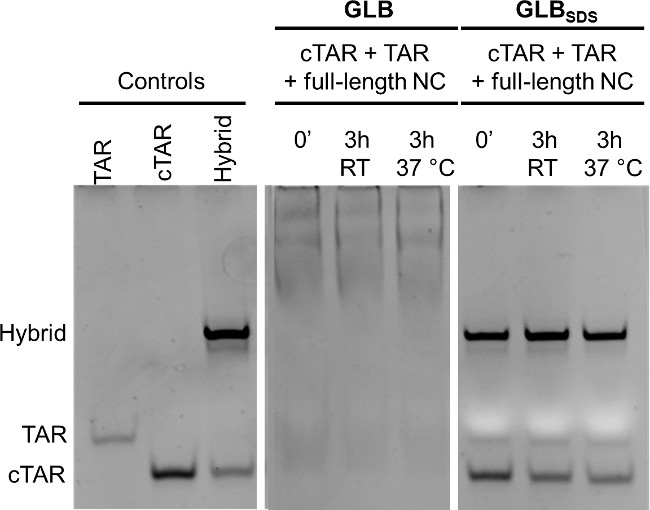
図2:ゲルローディングバッファー中のSDSの影響(GLB)TNMG 1X に予め折り畳んだNC TARとCTAR によるTAR / CTARアニールを 、 分析するときに 、3のために全長組換えNC(オリゴ/ NC = 1/8)と共にインキュベートした。室温または37℃で時間。 GLBまたはGLB SDSその後、NCとインキュベートした試料に添加した。コントロール:TAR、CTARアニールハイブリッドTAR / CTAR(各1μM)。電気泳動は1×TBE中で12%ポリアクリルアミドゲルを用いて行った。電気泳動後のゲル上の核酸は、染色し、イルミ上で検出された。 。この図は、図S4から変更されている:。Sosic、A. らの設計、合成およびHIV-1ヌクレオカプシド阻害剤としてTARとCTARバインダーの生物学的評価MedChemComm 4、1388年から1393年、DOI:10.1039 / c3md00212h(2013) 。
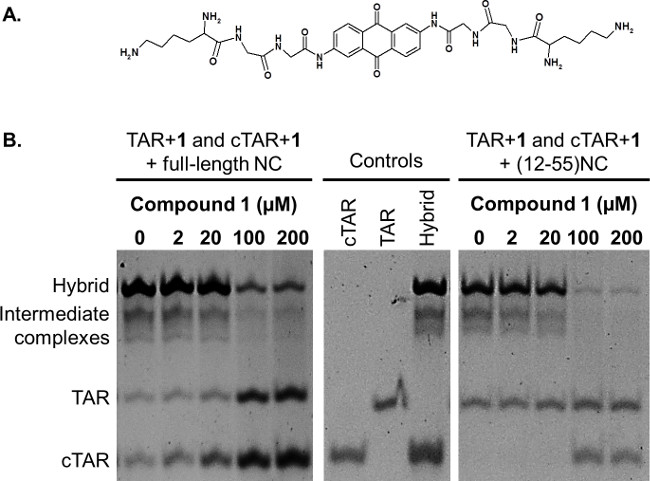
図3:NAMEアッセイによって評価インターカレー1スレッディングのスレッディングインターカレーター1.(B)の(A)化学構造の影響。折り畳まれたTARとCTAR、それぞれ1μMは、完全長のNCまたは(12-55)NC、それぞれ8μMを有する化合物1の示された濃度の存在下でインキュベートした。 CTARと拡張ヘテロTAR折り畳まつ折りTARは、/ CTARを対照として使用した。反応はその後GLB SDSを使用して停止した。サンプルは、1×TBE中で12%ポリアクリルアミドゲル上で分離した。電気泳動後のゲル上の核酸は、染色し、イルミ上で検出された。
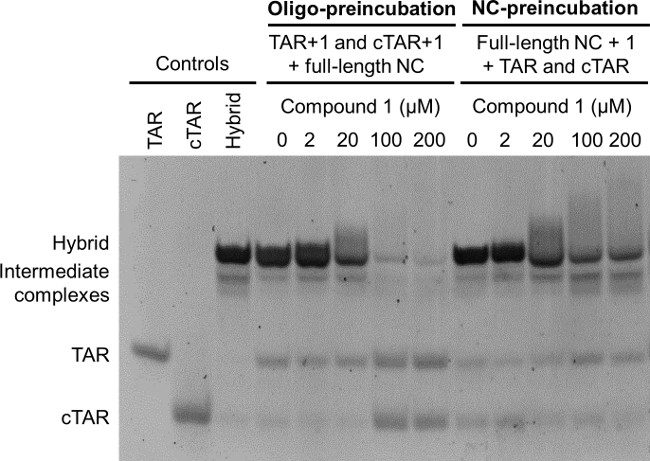
図4:NC-プレインキュベーションモードに対するオリゴプレインキュベーション:NAME検定への影響 オリゴプレインキュベーションMOD。E:、TARを折り畳まれ、各1μMをCTARを折り畳まれた完全長のNC(8μM)の存在下で15分間スレッディングインターカレーター1の示された濃度でプレインキュベートした後、さらに15分間たNC-プレインキュベーション 。 モード :スレッドインターカレー1の示された濃度は、それぞれ1μM、15分間、完全長NC(8μM)と共にプレインキュベートし、次いで、さらに15分間、折り畳まれたTARの存在下でCTAR折り畳まれた。 CTARと拡張ヘテロTAR折り畳まつ折りTARは、/ CTARを対照として使用した。すべての反応は、最終的にGLB SDSを使用して停止した。サンプルは、1×TBE中で12%ポリアクリルアミドゲル上で分離した。電気泳動後のゲル上の核酸は、染色し、イルミ上で検出された。
ディスカッション
NAMEは急速にHIV-1、新規な抗HIV薬の探索において興味深い標的のヌクレオキャプシドタンパク質のシャペロン活性の阻害を評価することができるアッセイである。 NCは、高速かつ、その安定した折りたたみそうで注意深いアニーリングに続いて、高温で熱変性を必要とする室温の核酸でアニーリングする。アッセイは、いずれの完全長NCまたは切り捨て(12から55)NCで行うことができます。どちらの場合も2核酸(RNAおよびその相補DNAコピー)が急速にアニールされる。これは、切断NCペプチドと文献の観察と一致している:アニーリングが弱いNC結合部位でその相補心尖ループの相互作用に続くCTARのステムの効率的な溶融によって開始される、TAR心尖ループの相補的配列と、延長アニーリングしたハイブリッドには、いくつかの不安定な中間体を通って終わる。21
NCは非常に安定であるのprotEINといくつかの問題が実行NAMEが発生する可能性がありながら。これが達成されていない場合に、ゲルが正しい位置での核酸バンドを示さない。しかしバッファ反応を停止するために使用されるゲルのロードで作りたてのSDSを追加することが非常に重要である。実際には、正確にゲル電気泳動によってTAR / CTARのヘテロを視覚化するように、NCは、核酸結合タンパク質であるタンパク質を変性させ、核酸との緊密な複合体からそれを解放するためにLoading Bufferをゲル中に存在しなければならない。これはまた、ゲル、実行時 にシフトしたバンドの形成すなわち実験の可能性のトラブルシューティング、である。この効果は、完全長のNCは、 図2のように、採用されたときに特に顕著であり、核酸に強い凝集効果を有する、高度に塩基性のN末端 尾部の存在にリンクされている。
ターミナル基本尾の存在がショーとして、抑えることがアニーリング反応をより困難にするnは化合物1、代表スレッディングインターカレーターを用いて、図3に、TARおよびCTARのステムループ構造を安定に特に効率的なインターカレーター、すなわち 。実際には、核酸との相互作用のこのタイプは、バルジおよびループが塩基対に嵩高い置換基を容易に糸通しを可能にする、二重らせんの連続性を中断するときに有利である。これらの核酸結合剤によってTARとCTARの安定化は、以前に二つのオリゴヌクレオチドの融解温度の上昇を測定することにより分析した。14また、融解温度の上昇は、HIV-1 NCによって触媒アニーリングの阻害と相関するヘテロ二重TAR / CTARの減少形成につながるとスレッディングインターカレーターは、TAR要素としてRNAの動的な構造のためのバインダーの興味深いクラスであることを示している。14
作用機序は、これらのコンポのために呼び出さ図4に示すようにundsはさらに、別の代替フォーマットでNAMEアッセイを行うことによって確認することができる:薬物二つ折り畳まオリゴとともにインキュベートされたときにインターカレーターの場合、アニールヘテロの阻害が増強される。このようなNC蛋白質の直接の結合剤としての作用の異なる機構に作用する化合物は、以下の異なるプレインキュベーションモードによって影響を受ける。 NAMEアッセイは、したがって、NC阻害剤の同定のための化合物のライブラリーをスクリーニングするために使用することができる二つの方法で行われ、NCを対象に抗HIV薬を探している間にも正のヒットの作用の推定メカニズムを評価する。明らかに、識別されたNC阻害剤の特定の作用機構に主張単独でこれらの技術を使用することは十分ではなく、他の適当な生化学的ア ッセイは、作業仮説を維持するために必要とされる。14
最後に、NAMEは非常に使用していることを強調しなければならない組換えまたは合成のいずれかに精製酵素、試験した化合物によるNCの「 インビトロ 」阻害に関する貴重な情報を与える。これはアッセイの「強さと弱さ」です:NAMEはよく迅速に構築し、解析する構造活性相関を、最終的に合成し、薬剤設計をリダイレクトすることが可能、仮想スクリーニングおよび創薬プログラムの予備的段階における分子モデリングアプローチを補完することができます。しかし、HIVにおける薬剤開発プロジェクトで使用される他の生化学的アッセイとして、NAMEは、ウイルス感染細胞における推定阻害剤の効果についての情報を与えることはありません。
開示事項
著者らは、競合する金銭的利益はないと宣言している。
謝辞
この作業は、Ministero degli Affari Esteri (MAE, DRPG, Unità per la cooperazione scientifica e tecnologica, Grant: PGR Italy-USA) と MIUR, Progetti di Ricerca di Interesse Nazionale (Grant: 2010W2KM5L_006) の支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| cTAR、29-mer DNAオリゴ。脱塩。HPLC精製済み。 | Metabion International AG | 在庫 ソリューションを-20 °で保存します。C | |
| TAR、29-mer RNAオリゴ。脱塩。HPLC精製済み | Metabion International AG | は、在庫アリコートを-80°Cで保管します。C | |
| (12-55)NCペプチド | EspiKem srl | ストック溶液を-20°Cで保存します。C | |
| 1.5 mlチューブ | Eppendorf | 0030 120 086 | 使用前のオートクレーブ |
| 0.5 mlチューブ | Eppendorf | 0030 121 023 | 使用前のオートクレーブ |
| バイオスフィアフィルターチップ0.1-10 & マイクロ;l | Sarstedt | 701,130,210 | |
| バイオスフィアフィルターチップ2-20&マイクロ;l | Sarstedt | 70,760,213 | |
| 生物圏フィルターのヒント200 &マイクロ;l | ザルシュテット | 70,760,213 | |
| シリンジ フィルター 0.22 &マイクロ;m | Biosigma srl | 51,798 | |
| タノール | カルロエルバ | 414631 | |
| ドデシル硫酸ナトリウム | Sigma-Aldrich | 71725-50G | |
| ジメチルスルホキシ | Sigma-Aldrich | D8418-1L | |
| 塩化ナトリウム | Sigma-Aldrich | 71376-1KG | |
| ホウ酸 | Sigma-Aldrich | B0252-2.5KG | |
| エチレンジアミン四酢酸 | Sigma-Aldrich | E5134-500G | |
| 過塩素酸マグネシウム | Sigma-Aldrich | 222283-100G | は1 -20 の M ソリューション°C |
| グリセロール | Sigma-Aldrich | 49770-1L | |
| ブロモフェノール | ブルーGEヘルスケアライフサイエンス | 17-1329-01 | |
| N、N、N′、N′-テトラメチルエチレンジアミン | Σ-Aldrich | T9281-100ML | |
| 過硫酸アンモニウム | ΣΣ-Aldrich | A7460-500G | 使用前に10%の溶液を新たに準備 |
| アクリルアミド-ビスすぐに使用できる溶液40%(19:1) | メルクミリポア | 1006401000 | ポリアクリルアミドは非常に神経毒性があります:ゲルキャスティング中に手袋を着用 |
| ス超高純度 | Applichem | A1086、1000 | |
| DEPC 処理水 | Ambion | AM9922 | |
| 遠心分離機 5415R | Eppendorf | 22,621,408 | |
| NanoDrop 1000 分光計 | Thermo Scientific | ||
| UV-VIS 分光計 Lambda 20 | Perkin Elmer | ||
| Protean II xi Cell | Bio-Rad | 165-1803 | |
| PowerPac Basic Power Supply | Bio-Rad | 164-5050 | |
| SybrGreen II RNA Gel Staining | Lonza | 50523 | TBE 1xで1/10,000希釈します。4°Cで暗所に保管してください。°Cを2週間。 |
| Geliance 600 イメージングシステム | Perkin Elmer |
参考文献
- Druillennec, S., et al. A mimic of HIV-1 nucleocapsid protein impairs reverse transcription and displays antiviral activity. Proc Natl Acad Sci USA. 96, 4886-4891 (1999).
- Darlix, J. L., Garrido, J. L., Morellet, N., Mely, Y., de Rocquigny, H. Properties, functions, and drug targeting of the multifunctional nucleocapsid protein of the human immunodeficiency virus. Adv Pharmacol. 55, 299-346 (2007).
- Thomas, J. A., Gorelick, R. J. Nucleocapsid protein function in early infection processes. Virus Res. 134, 39-63 (2008).
- Mirambeau, G., Lyonnais, S., Gorelick, R. J. Features, processing states, and heterologous protein interactions in the modulation of the retroviral nucleocapsid protein function. RNA Biol. 7, 724-734 (2010).
- Zeng, Y., et al. Probing nucleation, reverse annealing, and chaperone function along the reaction path of HIV-1 single-strand transfer. Proc Natl Acad Sci USA. 104, 12651-12656 (2007).
- Basu, V. P., et al. Strand transfer events during HIV-1 reverse transcription. Virus Res. 134, 19-38 (2008).
- Guo, J., Henderson, L. E., Bess, J., Kane, B., Levin, J. G. Human immunodeficiency virus type 1 nucleocapsid protein promotes efficient strand transfer and specific viral DNA synthesis by inhibiting TAR-dependent self-priming from minus-strand strong-stop DNA. J Virol. 71, 5178-5188 (1997).
- Godet, J., Mely, Y. Biophysical studies of the nucleic acid chaperone properties of the HIV-1 nucleocapsid protein. RNA Biol. 7, 687-699 (2010).
- Darlix, J. L., et al. Flexible nature and specific functions of the HIV-1 nucleocapsid protein. J Mol Biol. 410, 565-581 (2011).
- Lapadat-Tapolsky, M., Pernelle, C., Borie, C., Darlix, J. L. Analysis of the nucleic acid annealing activities of nucleocapsid protein from HIV-1. Nucleic Acids Res. 23, 2434-2441 (1995).
- Vo, M. -N., Barany, G., Rouzina, I., Musier-Forsyth, K. Mechanistic studies of mini-TAR RNA/DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. J Mol Biol. 363, 244-261 (2006).
- Beltz, H., et al. Structural determinants of HIV-1 nucleocapsid protein for cTAR DNA binding and destabilization, and correlation with inhibition of self-primed DNA synthesis. J Mol Biol. 348, 1113-1126 (2005).
- Mori, M., et al. Nucleocapsid Protein: a Desirable Target for Future Therapies against HIV-1. Curr Top Microbiol Immunol. , Forthcoming Forthcoming.
- Sosic, A., et al. Design, synthesis and biological evaluation of TAR and cTAR binders as HIV-1 nucleocapsid inhibitors. MedChemComm. 4, 1388-1393 (2013).
- Tabarrini, O., et al. Studies of Anti-HIV Transcription Inhibitor Quinolones: Identification of Potent N1-Vinyl Derivatives. Chemmedchem. 5, 1880-1892 (2010).
- Hagan, N., Fabris, D. Direct mass spectrometric determination of the stoichiometry and binding affinity of the complexes between nucleocapsid protein and RNA stem-loop hairpins of the HIV-1 Psi-recognition element. Biochemistry. 42, 10736-10745 (2003).
- Ivanyi-Nagy, R., Davidovic, L., Khandjian, E. W., Darlix, J. L. Disordered RNA chaperone proteins: from functions to disease. Cell Mol Life Sciences: CMLS. 62, 1409-1417 (2005).
- Zagotto, G., et al. Tuning G-quadruplex vs double-stranded DNA recognition in regioisomeric lysyl-peptidyl-anthraquinone conjugates. Bioconjug Chem. 22, 2126-2135 (2011).
- Carlson, C. B., Vuyisich, M., Gooch, B. D., Beal, P. A. Preferred RNA binding sites for a threading intercalator revealed by in vitro evolution. Chem Biol. 10, 663-672 (2003).
- Gooch, B. D., Beal, P. A. Recognition of duplex RNA by helix-threading peptides. J Am Chem Soc. 126, 10603-10610 (2004).
- Kanevsky, I., et al. Structural determinants of TAR RNA-DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. Nucleic Acids Res. 39, 8148-8162 (2011).
再版と許可
