脱髄疾患は、リゾレシチンを中枢神経系に局所的に適用することで、動物でモデル化することができます。マウスの脊髄にリゾレシチンを1回注射すると、時間の経過とともに自然に修復する病変が生じます。目標は、脱髄および再髄鞘形成に関与する因子を研究し、修復を強化するための薬剤をテストすることです。
この記事について
サマリー
要約
多発性硬化症は、失われたオリゴデンドロサイトミエリン、軸索およびニューロンを含むプラーク形成を特徴とする中枢神経系の炎症性脱髄疾患である。再ミエリン化は、新たなミエリンは、ミエリン形成乏突起膠細胞に増殖、動員、およびオリゴデンドロサイト前駆細胞の分化の後に産生される内因性修復機構であり、更なる損傷から軸索を保護する必要がある。現在、多発性硬化症の治療のためのすべての治療薬は、炎症の再発を減少させるが、不可逆的な神経学的な衰退への進行を妨げない疾患の異常な免疫成分を、ターゲットにしています。これは、疾患の進行を遅らせ、おそらく神経学的症状を逆転させる可能性が再ミエリン化を促進する戦略が開発されることが不可欠である。脱髄のいくつかの動物モデルは、実験的自己免疫性脳脊髄炎およびcurprizone含め、存在する。ただし、対応時間がある再ミエリン化を研究するためのそれらの使用でtations。より堅牢なアプローチは、げっ歯類の脊髄白質中に洗剤リゾレシチンなどの中枢神経系への毒素の局所注射、である。このプロトコルでは、マウスの腹側白質にリゾレシチン注入に関与する外科的処置は、高速で費用効果的であり、市販されているものよりも追加の材料を必要としないことを示している。この手順は、再ミエリン化プロセスに関与する正常な事象を研究するためだけでなく、候補再ミエリン化を促進する治療薬をスクリーニングするための前臨床ツールとしてだけでなく、重要である。
概要
多発性硬化症(MS)は、免疫細胞の浸潤及び失わミエリン、オリゴデンドロサイト、軸索およびニューロンを含むプラークを特徴とする中枢神経系(CNS)の慢性脱髄疾患である。ほとんどの患者は寛解期間に続く神経症状の広い範囲を伴う炎症の再発、からなる疾患の経過を持っている。これらの患者の半数以上が、最終的には明らかな再発はなく、継続的な神経学的な低下と二次進行段階に移行する。これは、この進行性の悪化が軸索損傷および喪失に起因すると考えられる、慢性の脱髄によって部分的に寄与した。失われたミエリンを復元するための戦略は、このように、疾患の進行を遅らせ、おそらく神経症状を逆転するための有望な治療アプローチと考えられている。
新しい髄鞘が募集さオリゴデンドロサイト前駆細胞から生成されたことにより、再ミエリンは、CNSにおける内因性修復応答であるミエリン形成オリゴデンドロサイトに分化する(OPCは)。再ミエリン化は、1-3かなり堅牢であるために、動物モデルにおいて示されているが、その効率は、年齢4に低下する。それはMS患者5の大部分で不完全であるが、実際のところ、再ミエリン化は、ヒトにおいて起こる。 MSのためのすべての現在利用可能な薬物は主に病気の異常な免疫成分を標的とし、再発の低減に有効であるが、著しく疾患の進行を遅らせることはありません。 MSの管理のための治療戦略次世代の再発および進行6の両方を防止するために、内因性再ミエリン化の増強を伴う免疫調節の進歩を統合する。
CNSで脱と再ミエリン化を研究する一つの方法は、脊髄の白質1,3,7に洗剤リゾホスファチジルコリン(リゾレシチン)の直接注射することを含む。この手順は、十分に特徴づけdemyelinatを生産けが主にマクロファージ/ミクログリアの浸潤および活性化8,9、反応性アストログリオーシス、軸索の恒常性/軸索損傷、およびOPCの増殖と遊走10の摂動からなるがる。病変は、予想通り、数週間の期間にわたって進化し、完全に再ミエリン化が最終的に可能である。この方法は、脱と再ミエリン化に関与するイベントの振り付けを研究する上で特に有用であった。また、脱髄傷害後の修復を促進する候補治療法の前臨床試験のためのツールとして採用されている。
プロトコル
注:この手順で使用する動物は動物管理上のカナダ人評議会(CCAC)のガイドラインに従って世話た。倫理はカルガリー大学の動物ケア委員会によって承認された。
1.注射用シリンジを準備
- 少量のアリコート(75μL)で-20℃で、店舗; 1%のリン酸緩衝生理食塩水で液(pH7.4 PBS)にリゾレシチン溶かす。 RTにバイアルを解凍する。
NOTE:リゾレシチンが未溶解であれば、均一な溶液を形成し、約30分間超音波洗浄機(40 kHz)のチューブを超音波処理する。 - 繊細な先端部を損傷しないように細心の注意を払って、事前に引っ張らガラスキャピラリーを処理します。 10μlの注入シリンジのナットを緩めてフェルールの嵌合端が整列し、毛細血管が円錐形のフェルール( 図1)でジャストサイズであることを確認、2フェルールに続く毛細血管の平坦な端にそれを通します。 isopropで注射器をすすぐイルアルコール及びプランジャーを取り外します。乾燥したら、注入注射器の上にタイトな針アセンブリの手をねじ込みます。
- プライミングシリンジに金属ハブ針を取り付けます。ピアース針でゴムディスクとベースにそれを下にスライドさせます。リゾレシチンでプライミング注射器を埋める。液体は、針の先端に表示されるまで、静かにプライミング注射器を押し下げる。これは気泡が注入注射器に導入されることはありませんが保証されます。
- 注入シリンジにプライミング注射器の金属ハブ針を挿入します。毛細血管が液で先端にいっぱいになるまでゴムディスクとしっかりシールを作り、ゆっくりプライミングシリンジを押し下げる。同時に気泡を導入することなく、注入シリンジのバレルを埋めるために押しながら慎重にプライミング注射器を取り外します。注入シリンジにプランジャーを挿入し、プランジャが優しく押されたようなソリューションは、キャピラリの先端から流れを確認してください。
注意:気泡がキャップに表示された場合illaryまたは注射器を注入し、注射器の準備を最初から繰り返す必要があります。注入装置内の連続流体は、正確な注入量を確保することが重要です。 - 定位マイクロマニピュレータのアームに完成した注入シリンジを取り付けます。この完成した装置が再充填される必要の前に15〜20の動物を注入することができます。
- プライミングシリンジから残りのリゾレシチンを捨てる。撤回し、イソプロピルアルコールを数回押すと、金属ハブ針を取り外す。再び充填する前に蒸発させるためにプライミング注射器の残りのイソプロピルアルコールのために数時間待ちます。
2.手術手順のために動物を準備
注:この手順は、雌のC57BL / 6マウスについて記載した8〜10週齢ている。
- ケタミン(200ミリグラム/ kg)およびキシラジン(10mg / kg)のまたは施設動物ケア規制あたり腹腔内注射で動物を麻酔する。計画する注射用麻酔を使用している場合で約1時間、麻酔下にある動物。
- 動物が深くしっかりと足をつまんで麻酔をしていることをテストします。適切に麻酔した動物は、ピンチに応答しません。
- バリカンを使用して、耳に近い動物の背側2-3 cm 2の面積を、剃る。耳を傷つけないように注意してください。
- ガーゼパッドに適用される70%のエタノールできれいな部分を拭いてください。すべてのクリップされた髪はエリアから削除されていることを確認してください。ヨウ素とエリアを消毒する。
- 作業中は乾燥を防ぐために、目にワセリンを適用します。
- 手順を開始する準備ができるまで加熱された回収室で動物を保管してください。
3.手術手順を実行します
注:手順のすべてのステップのための適切な無菌操作を確認してください。これは手袋、hairnets、マスク、ドレープの適切な使用が含まれています。すべてのツールはコンタックに来る前に滅菌する必要があります動物とトン。
- 定位フレーム、背側までに動物を移動し、背骨の湾曲を誇張するために折り畳まれた紙タオルによって中間部分に上昇。外科テープで腕や尾を固定し、歯クランプで頭部を固定します。安定耳のバーは、この手順のために必要ではない。
- ちょうど耳の下に開始し、尾側方向に切断、3cmの正中切開を作るためにメスを使用してください。
- 2つの大きな脂肪構造間の格差を見つけて、これらを引き離すために、それぞれの手で細かい鉗子を使用しています。手術野を開くには、リトラクターを広げた。
- 手術用顕微鏡下では、T2の椎骨の顕著な成長過程を見つけ(注:この機能は、C57BL / 6マウス系統の特徴である)。よりよいT2を可視化するためにオーバーレイ筋肉組織を通じて、閉じた春のハサミで鈍的切開を行います。鉗子を使用して、適切な解剖学的位置を確認するために、T3、T4の硬い表面のために感じる。
- 春のはさみを使用して、T3とT4の間の結合組織の(2〜3ミリメートルの深さ)浅い横カットを行う。によるマウス脊柱の上部胸部椎骨間の自然の間隔に、椎弓切除術は、脊髄を明らかにする必要はない。深すぎるカットはコードを貫通し、損傷していることに留意してください。
注:出血の小さな程度は、このステップの間が一般的です。この問題が発生した場合、出血治まっ(30〜60秒)までの領域にスポンジ槍を開催しています。 - 脊髄を視覚化。コードを露出させ、この髄膜層がまだカットされなかった場合、それは目に見える硬膜の厚い層で覆われます。著名な血管が脊髄のおおよその正中線を通して尾/吻側を実行します。
注:この血管系は、正中線のためのランドマークとして使用すべきではありません。代わりに、適切な照明が脊柱に隣接するグレー白質の境界を明らかにする必要があり、これらは正中線を推定するために使用されるべきである。 - 硬膜の場合それがクリアされるまでそのまま残り、32のG金属針で穏やかな横方向の擦り傷を作る。目標は、厚いと見ることが困難ではない残りの根本的な髄膜をカットしないが、硬膜を除去することである。
注:脳脊髄液の放出は、くも膜の違反を示し、これは、組織への機械的な損傷を与えることなく発生する可能性がありながら、蓄積された脳脊髄液は、より良いコードの表面を可視化するためにスポンジ槍で削除する必要があります。 - 所定の位置に注入する注射器を移動し、キャピラリの先端がかろうじて正中線の両側の直ぐ横の脊髄に触れるまでゆっくりとそれを下げる。所定の位置に腕をロックします。
- ベースライン位置測定を行うために、Z方向定位アームの段階的な測定値を使用してください。この読みから、1.3ミリメートルを引く。組織を貫通するの迅速かつ浅い下向きの運動を使用し、新しい測定に到達するまで、慎重にキャピラリーを下げる。オプション:必要に応じて、背側の列の病変は正中線で同じ突き刺し運動と0.3ミリメートル(詳細については、議論を参照)の深さで製造することができる。
注:これらの値は、T3とT4の間で注入するための固有のものです。脊髄内の他の場所で噴射を行うことを選択した場合、これらの値は、任意の利用可能なマウス脳アトラスから導出されなければならない。 - 腹側脊髄白質にリゾレシチン押し下げマイクロマニピュレーターを使用してください。 0.5μlの最終容量で、その結果、2分間マイクロマニピュレータの1回転ごとに5秒を行います。ソリューションの逆流を防止するために、2つの追加分の場所に毛細血管のままにしてから、慎重に毛細血管を削除します。
- 脊柱を重ね筋肉/脂肪組織内の単一の縫合糸を結ぶ。皮膚を閉じるには、非中断された縫合糸を使用してください。切開部位へのより多くのヨウ素を適用します。
- それが回復するまで、そのケージに戻した後、加熱された回収室で動物を置きます。鎮痛薬の適用後動作的制度的動物管理規則に従って。動物が完全に歩行可能と自己摂食とすぐ麻酔からの彼らの回復として飲むことのできるように追加の術後ケアは通常は必要ありません。
- 残りの動物のための手順を繰り返します。
注:習熟すると、操作は特に縫合糸を結ぶ第二の人の助けを借りて、動物あたり10〜15分で完了することができます。先端が鈍いとなり、交換しなければならない前に、同一のガラスキャピラリーは、約15-20手術のために使用することができる。代わりに、リゾレシチンの脊髄にPBSを注射して、説明したように制御手術は同一に行うことができる。私たちは、将来の使用のために毛細血管のクリーニングはお勧めしません。
4.組織の処理と解析
- 所望の時点で、ケタミン(500 mg / kgを)およびキシラジン(25mg / kgの)の腹腔内過剰摂取で動物を生け贄に捧げる。病変は通常、follで進化による方法:1-3日、アクティブな脱髄。 3-7日、OPCの募集。 7-10日、オリゴデンドロサイト分化。 10-21日、アクティブな再ミエリン2,10,11。
- 最初のPBS中の20 mlの氷冷4%パラホルムアルデヒド、続いて20ミリリットルRT PBSを経心灌流12を実行し、組織学のために組織を調製した。半または超薄切片用樹脂包埋組織の調製のために、ステップ4.9を参照してください。
- 各脊椎、脊柱の頸部の終わりで始まり、下位胸椎レベルまで作業を切断するように湾曲した骨のはさみを使用して脊髄を削除します。 4℃でPBS中の4%パラホルムアルデヒド中で脊髄O / Nを修正。少なくとも72時間、4℃でPBS中30%のショ糖にコードを切り替えます。
- 脊髄の背側表面上の異常として注射部位を同定する。 (中央の注射部位との)組織の3ミリメートルピースをカットし、最適な切削温度(OCT)Coを含むcryomoldsにピースを揃えるmpound。 10月には完全に凍結するまで2-メチルブタンとドライアイスの冷蔵混合物中のcryomoldsの下側を一時停止します。セクションの準備ができるまで-80℃で保管してください。
- 顕微鏡スライド上に20μmの幅でセクションクライオスタット上で脊髄を、空気乾燥Oに許可/ N、-20℃でスライドを格納する前に。
- ミエリン13のエリオクロムシアニン組織学的染色を用いて病変の位置およびサイズを検出する。 RTですべての手順を実行します。 30分間空気乾燥スライド。 1分間ずつ段階的エタノール溶液中で再水和に続いて1分(100%、95%、90%、70%、50%、水)のためのクリアリング剤の代わりにスライドする。
- 水で1分間洗浄した15分間のエリオクロムシアニン溶液中でスライド、。水で1分間洗浄し、続いて10秒間、0.5%水酸化アンモニウム中で分化する。明視野マイルで1分間取り付けメディアそれぞれ、カバースリップ、および画像のため(上記のように順序を逆に)段階的なエタノール溶液中で脱水するcroscope。
- 軸索とミエリンを可視化するために免疫組織化学を使用してください。 30分間空気乾燥スライド。 RTで2分間ごとに、段階的なエタノール(水中、50%、70%、90%、95%、100%)で脱水し、再び水に順序を逆にする。このステップでは、個々のミエリンリング14のより高い解像度になる。
- RTで60分間、PBS中10%ヤギ血清と0.25%のトリトンX-100を使用して、非特異的抗体相互作用をブロックする。一次抗体(:2000、ウサギ抗MBP 1:マウス抗SMI312 1千)で希釈し、PBS中にし、O / N 4℃でスライド上でインキュベートする。
- 室温でPBSで5分間5回洗浄する。 PBS中、室温で60分間スライド上でインキュベートした二次抗体(500:500、アレクサ546抗マウス1のAlexa 488抗ウサギ1)で希釈する。室温でPBSで5分間5回洗浄する。マウントは、蛍光顕微鏡でgelvatolとイメージを使用して、カバーガラスと摺動する。
- オリゴデンドロサイト系統の細胞を可視化するために免疫組織化学を使用してください。 STの手順に従ってくださいディスコグラフィ4.7、脱水/再水和工程を省略し、10%ウマ血清の代わりにヤギ血清を用いて。ヤギ抗PDGFRα1:100、マウス抗CC1 1:200、ウサギ抗OLIG2 1:200以下の一次抗体希釈液を使用してください。アレクサ488抗ヤギ1:500、アレクサ594抗マウス1:500、アレクサ647抗ウサギ1:500以下の二次抗体の希釈液を使用してください。
- 半または超薄切片用組織を調製するために、第腔的潅流を行い、12mlの 20 RT PBSをPBS中の20 mlの氷冷4%パラホルムアルデヒド/ 1%グルタルアルデヒドが続く。ステップ4.3で説明したように、脊髄を除去します。 4℃でPBS中の4%パラホルムアルデヒド/ 1%グルタルアルデヒドでO / Nを修正。
- ステップ4.4で説明したように注射部位を特定します。注射部位を含む組織の1ミリメートルの部分をカット。必要に応じて病変のいずれかの側に追加の1mmのブロックは、同様に調製することができる。
- ドラフト内で、氷上で各ブロックに10倍量の1%四酸化オスミウム/ 1.5%フェロシアン化カリウムを加える60分間。
注:四酸化オスミウムは、毒性の高い物質であり、細心の注意を払って取り扱ってください。四酸化オスミウムと接触する全ての材料は、中和のためにコーン油(四酸化オスミウム溶液の倍容量)中に配置されるべきである。 - コーン油に廃棄、室温で10分間、0.2Mカコジルでコードを3回洗浄する。段階的エタノール溶液(水中、50%、70%、90%、95%で2回、100%で2回、プロピレンオキシドと2回)、室温で10分間で脱水する。
- 製造元の指示に従って樹脂に埋め込むコード。
- ウルトラ上のブロックをカットし、顕微鏡スライド上の水滴の上のセクションをマウントします。乾燥するまでホットプレート(約50℃)の上に置いてスライドする。
- 50℃で10〜15秒間、スライド上の1%トルイジンブルー/ 2%のホウ砂溶液を数滴添加することにより、ミエリンを可視化する。マウントメディアと水、ドライ、そしてカバースリップですすいでください。明視野顕微鏡での画像セクション。
結果
腹側白質へリゾレシチンの焦点注入は約3ミリメートル( 図2)の距離にわたって検出可能である離散脱髄病変を生成します。病変ミエリンのためのコア(MBP)と軸索(SMI312)の免疫組織化学染色は7日間( 図3)でミエリンを剥奪された軸索を示しています。 14日目までに、多くの軸索は、再ミエリン化の発生を示唆して、MBP陽性リングに囲まれている。オリゴデンドロサイト系譜(PDGFRα、OLIG2、CC1)の細胞の染色、7日、並びにするOPCと比較して、成熟稀突起神経膠細胞の分布と比較して14日後の総細胞数の両方の有意な増加があった( 図4) 。この知見と一致して、トルイジンブルーで染色した半薄のセクションでは、これらは私が再ミエリン化されていることを示す、まれに7日間( 図5)で検出されない14日目で、薄いミエリン鞘の存在を明らかにnternodes。
手順は、動物間で再現性が高い。重い呼吸が毛細血管-これは通常、十分な鎮静の問題ではないの静止位置を変更したときにばらつきが発生します。軸索の損傷は、モデル1の最古の使用以来、記載されている病変の中心部、を除いて、最小限であるように思われる。それはまた、PBSを注射コントロールで観察可能であるように私たちは、これはガラスキャピラリーから機械的損傷であると信じる。それにもかかわらず、ばらつきが小さくなる傾向があり、我々と同様の手順を使用して他のグループ15ごとに、わずか4の動物を用いた実験条件の違いを検出した。
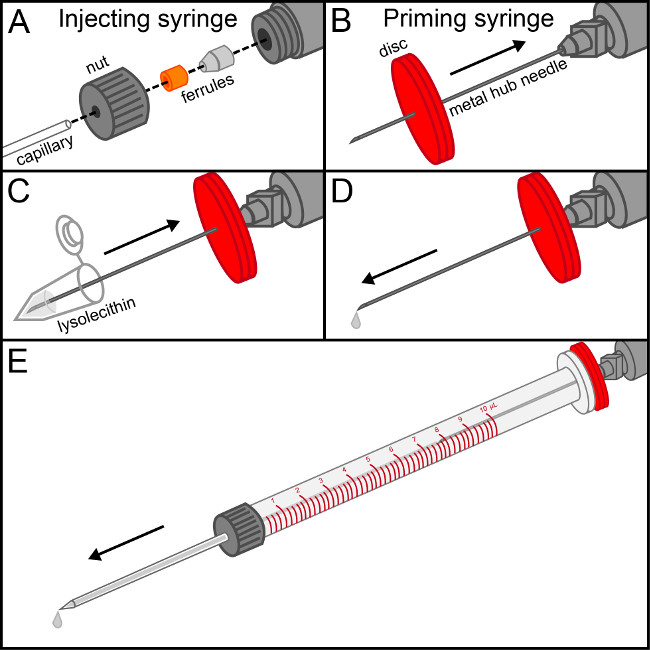
注入注射器の図1のアセンブリ。(A)注入シリンジのナットは、T上にねじ込まれている彼らの交配は、インターロックを終了するような2フェルールが続くガラスキャピラリーの彼フラット終わり、。毛細管がしっかり円錐フェルールにぴったりされると、アセンブリがタイト注入注射器の端部に手がねじ込まれている。(B)プライミング注射器に取り付けた金属ハブ針をゴムディスクの中心を片とそれを滑り降りる塩基(C)プライミングシリンジに溶液をリゾレシチン撤回。(D)リゾレシチンの最初の一滴が針の先端に表示されるまで、ゆっくりプライミングシリンジを押す。(E)は、注入のバレル内にプライミング注射器を挿入ゴム製のディスクとしっかりシールを作る注射器、。それは毛細血管の最後に実行されるまでゆっくりとソリューションを押し下げる。注入シリンジに気泡を導入することなく、金属ハブ針を除去するために、プランジャーに圧力を維持しながら慎重にプライミング注射器を引き抜く。/ 52679 / 52679fig1large.jpg「ターゲット= "_空白」をアップロードする>この図の拡大版をご覧になるにはこちらをクリックしてください。
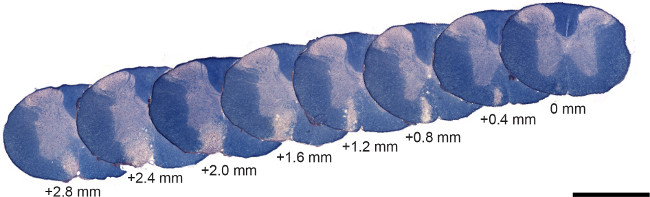
エリオクロムシアニンで染色病変リゾレシチン図2.代表。連続切片エリオクロムシアニンで染色し、14日に特徴リゾレシチン病変の(400μmの間隔を空け)はミエリン(青)を可視化する。その脱髄が腹側白質に制限され、病変が吻側/尾側方向に約3ミリメートルにまたがることに注意してください。スケールバー= 1ミリメートル。 この図の拡大版をご覧になるにはこちらをクリックしてください。
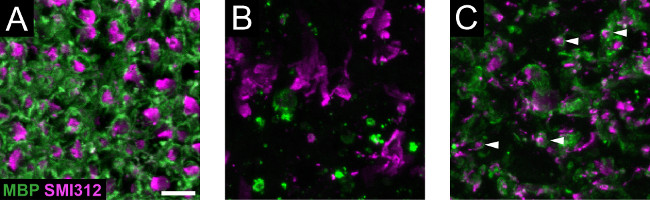
図3.軸索およびミエリンリゾレシチンモデル。 (A)偽(PBS)は、ミエリンリングによって囲まれている健康な軸索 を示した。7日後の病変リゾレシチン(B)Aが裸出軸索ならびに劣化したミエリンを示す7日後に脊髄を注入した。(C)14日目であり、a軸索(白矢印で示す例)の割合は、ミエリンリングの再出現と関連している。スケールバー=10μmである。 この図の拡大版をご覧になるにはこちらをクリックしてください。
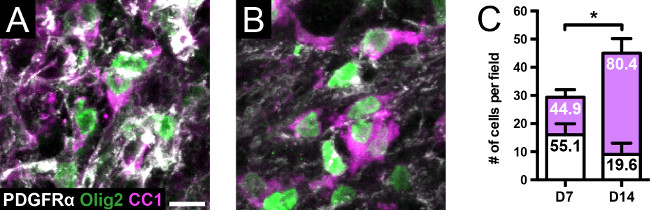
図リゾレシチンモデル4.オリゴデンドロサイト系譜細胞。 (A、C)7日目には、CC1の+オリゴデンドロサイト(マゼンタバー)に対するより大きなPDGFRα+ OPCの表現(白バー)の相対性がある。バー内の数字は割合を表す。 OLIG2はにプローブしたオリゴデンドロサイト系譜細胞の染色を確認する。(B、C)を 14日目に、そこに7日に(p <0.05、両側t検定に比べてオリゴデンドロサイト系譜細胞の合計数の有意な増加は、群あたりn = 4 )。 7日後に(p <0.0001、フィッシャーの直接確率検定)と比較して14日目でのOPCの乏突起膠細胞の分布に有意な増加がある。 =10μmのスケールバー。各フィールドは、60Xの元の倍率で撮影している。値は、平均±SDである。 * P <0.05を意味します。 この図の拡大版をご覧になるにはこちらをクリックしてください。
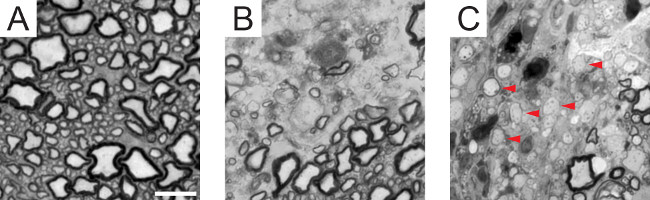
リゾレシチンモデル図5.再ミエリン化。 (A)HEAに腹側白質の部分を半薄染色断面トルイジンブルーlthyマウス(B)7日目。各ミエリン厚の口径の広い範囲にわたって軸索を示し、ミエリン鞘の欠如は、(右下)を受けない領域に隣接して観察された。14日目(C)、薄く有髄シース(赤い矢印で示す例は)再ミエリン化のセグメントを示す、病変全体に表示されます。スケールバー=10μmである。 この図の拡大版をご覧になるにはこちらをクリックしてください。
ディスカッション
多くの動物モデルは、実験的自己免疫性脳脊髄炎(EAE)モデルは、最も認識可能、MSを研究するために開発されてきた。 EAEは、げっ歯類は、ミエリンペプチドの断片に対して免疫と麻痺を昇順で顕在炎症性病変の発達を受けている。半または極薄のために組織を処理する際に第一に、炎症性病変の位置が多少ランダムであり、病変を見つける:このモデルは免疫MS薬の前臨床試験のために有用であったが、それは3つの主な理由で再ミエリン化を研究するための理想的ではないのセクションでは、挑戦することができます。第二は、再ミエリン化は、特定の時間にわたって発生し、単一EAE病変の正確な年齢は継続的な非侵襲的磁気共鳴画像なしで知ることができないということである。第三は、再ミエリン化は、齧歯動物における天然に存在する現象であり、EAEにおける薬物処置後の再ミエリン化の証拠は、薬物の主要な結果であるが、でないことである炎症を低減する二次的な現象をステッド。
脱髄を製造する別の一般的な方法は、食事中の銅キレート剤のクプリゾンを導入することによって達成される。これは以下のような脳梁に、広範な脱髄をもたらす。まず、軸索の直径(したがって、ミエリン厚さ)他のCNS領域よりも小さくしているため、薄く髄鞘再形成シースは脱髄ことはありませんでしたものと区別がつかないことができます:次の理由から、再ミエリン化のサイトとして脳梁を研究する上での制限があります。マウスの脳梁が> 70%の無髄軸索16が含まれているため第二に、それは再ミエリン化セグメントは17が正常に発生し、成人、中に損傷したミエリンまたはデノボミエリン合成の真の修理があるかどうかは不明であることができます。
それは、再ミエリン化を研究するための最良のモデルは、毒素の直接注入は、どちらリゾレシチン、ethidであることを私たちの信念である尾側脳花梗18または脊髄白質にイウム、または他のもの、。前者の位置は、正確な3次元定位注射によって達成され、そしてによる小脳果柄のサイズが小さいため、より大きなげっ歯類(ラット)に限定される。これは脱と再ミエリン化を研究するトランスジェニックマウスの豊富なリソースを除外します。脊髄は、しかし、簡単にアクセス外科的な多くの大きな白い質路が含まれています。吻側胸椎セグメントにおける椎骨の間のスペースは尾側胸部の外科的処置に必要なステップである椎弓切除術を必要とせずに、脊髄の露出が可能になります。特に腹側白質を標的とする利点は、軸索は再ミエリン化の定量化を行うこと、背側の白質より均一に大きいということで少ない曖昧なタスク類似した脳梁に関連する課題に。さらに、腹側白質がはるかに大きいTを構成する注入するARGETエリア。同じ偏差は腹側にまだ目立つ脱髄病変を生み出すだろうが横方向に背側領域に数百ミクロンのは、列外に毛細血管を置くだろう。いくつかのプロトコルは、同じ動物19の背側と腹側列の両方にリゾレシチン注入する。これにより、適切な毛管配置の可能性とより少ない動物において定量可能な病変の数の両方を増加させることができる。提示され、現在のデータは、動作時に8〜10週齢の動物からのものであるが、我々はまた、再ミエリン化が4著しく遅いと記載されている8~10月齢マウス、同じ手順を使用して成功を収めている。
再ミエリン化の定量化は、些細な仕事ではありません。セントラルドグマは、再ミエリン化セグメントは、それらの健全な対応物よりも平均して長さが短く、薄く、かつ断面半Oをこのようにして得比計算(軸索直径軸索+ミエリンの直径で割った)ことを断定Rの超薄切片は、標準的な手順となっている。しかし、再ミエリン化セグメントは、時間2にわたって増粘及び再ミエリンオリゴデンドロサイトのトランスジェニックレポーターを用いた最近の研究は、多くの節は、最終的に制御装置20と区別できないとなることを示唆していることが知られている。病変内の成熟したオリゴデンドロサイトの数を定量することはオリゴデンドロサイトは、節間の広い数を作ることができるように、修理を測定するための間接的な方法であり、再ミエリン-応じてモデルにかなりの割合のシュワン細胞3から発生する使用は、することができます。再ミエリン化が跳躍伝導21の復元にリンクされているようにもちろん、修理の究極の測定基準は、神経学的欠損の機能回復となる。再ミエリン化は、いくつかの種22,23における機能の回復に関連しているが、これはネズミリゾレシチン研究において標準的な手順になっていない。これは明白なobservの欠如に起因する可能性が高いそのようなEAEとさえクプリゾンなどのより強固な脱髄のモデルに比べて背側または腹側の病変のいずれかからでき赤字、。私たちは、再ミエリン化を注射し、その後の回復をリゾレシチンに起因する機能的な赤字は、唯一の細かい感覚機能するの敏感なテストを使用して観測可能であると考えています。
ぶっきらぼう方法論的アプローチとはいえ、上記の動物モデルのいずれかと一緒に「再ミエリン」のPubMedの検索は、EAE(188)とクプリゾン(197)に比べて(109)リゾレシチンためのより少ない検索ヒットを示しています。脱髄をリゾレシチン私たちの引数が再ミエリン化を研究するための優れたアプローチであれば、なぜそれが少なくとも議論されている?おそらく、この方法を使用するための不安は、手術を行う際の技術的困難の信念に由来する。実際には、この手順は、すべてのコマーある材料を必要とし、高速で費用対効果がなく、全くルーチン組織切開よりも困難でcially利用できる。それは、このプロトコルはミエリン修復の刺激的拡大分野を研究するための彼らのレパートリーにこの強力なモデルを追加したいもののために役立ちことを願っています。
開示事項
著者らは開示するものは何もない。
謝辞
>jove_content<このプロジェクトは、カナダの多発性硬化症協会とアルバータ・イノベーツ・ヘルス・ソリューションCRIOチーム・プログラムからの助成金によって資金提供されました。MBKは、Alberta Innovates - Health Solutionsおよびカナダの多発性硬化症協会から学生資格を取得しています。SKJは、カナダ多発性硬化症協会のアルバータ州endMS地域研究研修センターからの大学院生支援助成金によって資金提供されています。著者は、ヤン・ファン・ミンネン博士と神経生物学の再生ユニットのコア施設のトレーニングと機器の使用に感謝したいと思います。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 春はさみ | ファインサイエンスツール | 15004-08 | |
| 鉗子 | ファインサイエンスツール | 11254-20 | |
| リトラクター | ファインサイエンスツール | 17003-03 | |
| クリッパー | フィリップス | QG3330 | |
| 加熱回収チャンバー | ペコサービス | V1200 | |
| サージカルテープ | 3M | 1527-1 | |
| メスの柄 | ファインサイエンスツール | 10003-12 | |
| メス刃 | フェザー | No.15 | |
| スポンジ 槍 | ビーバー ビジテック | 581089 | |
| 5-0 ビクリル縫合糸 | エチコン | J511G | |
| 湾曲 タフカット スプリングハサミ | ファインサイエンスツール | 15123-12 | |
| 32G 金属針 | BD | ||
| ニードルホルダー | ファインサイエンスツール | 12002-14 | |
| 角度付き鉗子 | ファインサイエンスツール | 11251-35 | |
| 綿先端アプリケーター | ピューリタン | 806-WC | |
| ガーゼパッドセーフ | クロス応急処置 | 3763 | |
| 10 μlシリンジ | ハミルトン | 7635-01 | 、マイクロリットルではなく、ガス密シリンジ |
| 圧縮継手 | ミルトン | 55750-01 | ルールと取り外し可能なナットが含まれていますが、10&muに付属するナット。lシリンジは、よりタイトフィット |
| プライミングキット | です ハミルトン | PRMKIT | には、プライミングシリンジ、取り外し可能なハブニードル、ゴムディスクが含まれています |
| 引っ張られたガラス毛細血管 | WPI | TIP10TW1 (10個入り) | には、10 &muの毛細血管が含まれています。m内径。30 μm内径も機能します (TIP30TW1) |
| 定位フレーム | デビッド・コップフ 楽器 | モデル900 | |
| 超音波洗浄機 | フィッシャーサイエンティフィック | FS-20 | |
| ッシュテック 最適切断温度 (OCT) コンパウンド | VWR | 25608-930 | |
| ティッシュテック 中間クライオモールド | VWR | 25608-924 | |
| クライオスタット | ライカ | CM1900 | |
| 顕微鏡スライドVWR | 48311-703 | ||
| 明視野顕微鏡 | オリンパス | BX51 | |
| ウルトラミクロトーム | ライカ EM UC7 | EM UC7 | |
| リゾフォスファチジルコイン | Σ | L1381 | |
| 2-メチルブタン | Σ M32631 | ||
| トリトン x-100 | σ | X-100 | |
| ヤギ血清 | σ | G9023 | |
| マウス 抗 SMI312 抗体 | コーヴァンス | SMI-312R | 1:2,000希釈 |
| ウサギ抗MBP抗体 | アブカム | AB40390 | 1:1000希釈ヤ |
| ギ抗PDGFR&α;抗体 | R&D Systems | AF1062 | 1:100 希釈 |
| ウサギ抗 Olig2 抗体 | ミリポア | AB9610 | 1:200 希釈 |
| マウス 抗 CC1 抗体 | Calbiochem | OP80 | 1:200 希釈 |
| Alexa Fluor 488 ヤギ 抗ウサギ IgG | ライフ テクノロジー | ズ A-11008 | 1:500 希釈 |
| アレクサ フロー 546 ヤギ 抗マウス IgG | ライフ テクノロジー | A-11003 | 1:500希釈 |
| Alexa Fluor 488 ロバ 抗ヤギ IgG | ジャクソン イムノ | 705-546-147 | 1:500 希釈 |
| アレクサ フルーア 594 ロバ アンチマウス IgG | ジャクソン イムノ | 715-586-151 | 1:500 希釈 |
| アレクサ フルーア 647 ロバ アンチウサギ IgG | ジャクソン イムノ | 711-606-152 | 1:500 希釈 |
| PBS | オキソイド | BR0014 | |
| イソプロピルアルコール | シグマ | 、109827 | |
| ケタミン | 、CDMV | ||
| 、キシラジン | 、CDMV | ||
| ヨウ素、 | ウエストペネトン | 、2021 | |
| 年、ワセリン、ワセリン、ワセリン、ゼリー | 、VWR | パラ | |
| シグマ | P6148 | ||
| 、スクロース | 、シグマ | S5016 | |
| エリオクロム シアニン R | シグマ | 32752 | |
| 硫酸 | シグマ | 320501 | |
| 塩化鉄(III) | シグマ | 157740 | |
| 水酸化アンモニウム | シグマ | 320145 | |
| アクリトール | ライカ バイオシステムズ | 3801700 | |
| シトリソルフ | フィッシャー サイエンティフィック | 22-143-975 | |
| 馬血清 | Sigma | H0146 | |
| グルタルアルデヒド | 電子顕微鏡科学 | 16220 | |
| 四酸化オスム | 電子顕微鏡科学 | 19150 | 高毒性 |
| ヘキサシアノ鉄酸カリウム (II) 三水和物 | Sigma | P3289 | |
| コーン油 | Sigma | C8267 | |
| ポリビニルアルコール | Sigma | P8136 | |
| グリセロール | Sigma | G9012 | |
| カコジル酸 | 電子顕微鏡科学 | 12300 | |
| プロピレンオキシド | 電子顕微鏡科学 | 20401 | |
| EMBEDキット | 電子顕微鏡科学 | 14120 | |
| トルイジンブルーO | Sigma | T3260 | |
| 四ホウ酸ナトリウム十水和物 | シグマ | S9640 | |
| レシピ | |||
| エリオクロームシアニン溶液 | |||
| リオクロームシアニン | R0.8g | ||
| 硫酸 | 400ml0.5% | ||
| 鉄(III) | 20ml10% | ||
| 水 | 80 ml | ||
| *硫酸にエリオクロムシアニンを加え、続いて塩化鉄(III)と水を加えます。溶液は使用後も保管できます。年に一度、新鮮なものを作ります。 | |||
| ゲルバトール | |||
| 成分 | |||
| PBS | を加える量140mL | ||
| ポリビニルアルコール | 20g | ||
| グリセロール | 40g | ||
| *よく混ぜ、 37°に置く;C O/N、1,960 x g で遠心分離機 30 分、分注して 40 本のチューブに |
参考文献
- Blakemore, W. F., Eames, R. A., Smith, K. J., McDonald, W. I. Remyelination in the spinal cord of the cat following intraspinal injections of lysolecithin. J. Neurol. Sci. 33 (1-3), 31-43 (1977).
- Jeffery, N. D., Blakemore, W. F. Remyelination of mouse spinal cord axons demyelinated by local injection of lysolecithin. J. Neurocytol. 24 (10), 775-781 (1995).
- Blakemore, W. F. Invasion of Schwann-cells into the spinal-cord of rat following local injections of lysolecithin. Neuropathol. Appl. Neurobiol. 2 (1), 21-39 (1976).
- Shields, S. A., Gilson, J. M., Blakemore, W. F., Franklin, R. J. Remyelination occurs as extensively but more slowly in old rats compared to young rats following gliotoxin-induced CNS demyelination. Glia. 28 (1), 77-83 (1999).
- Patrikios, P., et al. Remyelination is extensive in a subset of multiple sclerosis patients. Brain. 129 (Pt 12), 3165-3172 (2006).
- Keough, M. B., Yong, V. W. Remyelination therapy for multiple sclerosis). Neurotherapeutics. 10 (1), 44-54 (2013).
- Hall, S. M. The effect of injections of lysophosphatidyl choline into white matter of the adult mouse spinal cord. J. Cell Sci. 10 (2), 535-546 (1972).
- Miron, V. E., et al. M2 microglia and macrophages drive oligodendrocyte differentiation during CNS remyelination. Nat. Neurosci. 16 (9), 1211-1218 (2013).
- Kotter, M. R., Setzu, A., Sim, F. J., Van Rooijen, N., Franklin, R. J. Macrophage depletion impairs oligodendrocyte remyelination following lysolecithin-induced demyelination. Glia. 35 (3), 202-212 (2001).
- Lau, L. W., et al. Chondroitin sulfate proteoglycans in demyelinated lesions impair remyelination. Ann. Neurol. 72 (3), 419-432 (2012).
- Fancy, S. P., et al. Dysregulation of the Wnt pathway inhibits timely myelination and remyelination in the mammalian CNS. Genes Dev. 23 (13), 1571-1585 (2009).
- Gage, G. J., Kipke, D. R., Shain, W. Whole animal perfusion fixation for rodents. J. Vis. Exp. (65), (2012).
- Skihar, V., et al. Promoting oligodendrogenesis and myelin repair using the multiple sclerosis medication glatiramer acetate. Proc. Natl. Acad. Sci. U.S.A. 106 (42), 17992-17997 (2009).
- Plemel, J. R., et al. Platelet-derived growth factor-responsive neural precursors give rise to myelinating oligodendrocytes after transplantation into the spinal cords of contused rats and dysmyelinated mice. Glia. 59 (12), 1891-1910 (2011).
- Chong, S. Y., et al. Neurite outgrowth inhibitor Nogo-A establishes spatial segregation and extent of oligodendrocyte myelination. Proc. Natl. Acad. Sci. U.S.A. 109 (4), 1299-1304 (2012).
- Sturrock, R. R. Myelination of the mouse corpus callosum. Neuropathol. Appl. Neurobiol. 6 (6), 415-420 (1980).
- Young, K. M., et al. Oligodendrocyte dynamics in the healthy adult CNS: evidence for myelin remodeling. Neuron. 77 (5), 873-885 (2013).
- Woodruff, R. H., Franklin, R. J. Demyelination and remyelination of the caudal cerebellar peduncle of adult rats following stereotaxic injections of lysolecithin, ethidium bromide, and complement/anti-galactocerebroside: a comparative study. Glia. 25 (3), 216-228 (1999).
- Mei, F., et al. Micropillar assays as a high-throughput screening platform for therapeutics in multiple sclerosis. Nat. Med. 20 (8), 954-960 (2014).
- Powers, B. E., et al. Remyelination reporter reveals prolonged refinement of spontaneously regenerated myelin. Proc. Natl. Acad. Sci. U.S.A. 110 (10), 4075-4080 (2013).
- Smith, K. J., Blakemore, W. F., McDonald, W. I. Central remyelination restores secure conduction. Nature. 280 (5721), 395-396 (1979).
- Jeffery, N. D., Blakemore, W. F. Locomotor deficits induced by experimental spinal cord demyelination are abolished by spontaneous remyelination. Brain. 120 (Pt 1), 27-37 (1997).
- Duncan, I. D., Brower, A., Kondo, Y., Curlee, J. F. Jr, Schultz, R. D. Extensive remyelination of the CNS leads to functional recovery. Proc. Natl. Acad. Sci. U.S.A. 106 (16), 6832-6836 (2009).
再版と許可
